我们提出了一种利用布里渊光散射光谱技术检测细胞外基质中弹性蛋白及胰蛋白酶纯化的I型胶原纤维的方案,以获取其完整的弹性特性。
本文内容
摘要
摘要
布里渊光谱技术是生物医学领域中一种新兴的技术。该技术通过可见光与热激发产生的声波(即以每秒数公里速度传播的声子)之间的相互作用,探测样品的力学特性。以非破坏性、无接触的方式获取材料的弹性和结构信息,从而为体内应用及疾病的潜在诊断开辟了途径。本研究描述了布里渊光谱技术在细胞外基质中弹性蛋白及胰蛋白酶消化的I型胶原纤维生物力学研究中的应用。细胞外基质中的纤维蛋白是生物组织的基本组成单元,研究其力学与物理行为对于建立正常组织中的结构-功能关系以及揭示疾病状态下发生的变化至关重要。本文同时介绍了采用反射基底进行样品制备、布里渊光谱测量的实验流程,并提供了光学系统结构及光谱数据分析方法的详细说明。
引言
布里渊光散射(Brillouin light scattering, BLS)效应由莱昂·布里渊(Léon Brillouin)于1922年发现1。该效应表现为可见光被材料中热激发的声学声子非弹性散射。在固体物理学中,声学声子是指晶格中所有原子的相干振动。一维晶格中由两种不同原子交替排列构成的链是一种简单模型,可用于说明通过BLS探测到的声学声子与通过红外吸收和拉曼散射探测的光学声子之间的区别(图1)。声学声子表现为链中原子同相运动,其位移方向沿传播方向(纵声学声子)或垂直于传播方向(横声学声子);而光学声子则是原子的反相运动,产生振荡的电偶极矩(纵模或横模)。
布里渊光散射(BLS)光谱自20世纪20年代起已应用于分析科学领域;然而,直到20世纪80年代,通过使用串联多通法布里-珀罗光谱仪,才实现了高对比度的测量。自此以来,BLS在凝聚态物质(利用光子-声子相互作用)2-4 和磁性材料(通过光子-磁振子相互作用)5 的分析应用中取得了越来越多的进展。在生物医学应用方面的开创性研究6-8 为多种方法的发展奠定了基础,包括本文所采用的方法以及先前描述的方法9,后者使用类血小板构型的反射基底,以实现对样品弹性张量的完整表征。
在本研究中,我们将布里渊光散射(BLS)光谱技术应用于结缔组织细胞外基质的基本组成成分——纤维蛋白弹性蛋白(elastin)和I型胶原蛋白(type I-collagen)。I型胶原蛋白是一种刚性的三重螺旋分子,可通过广泛的交联作用在横向和纵向组装,形成肌腱等组织中近乎刚性的纤维。胶原蛋白网络常与弹性蛋白网络共存;弹性蛋白具有独特性质,可通过熵效应及其与环境之间的疏水相互作用产生长程弹性,对肺和皮肤等组织的功能至关重要。在当前的研究中,这两种纤维均采用六方晶体模型进行建模。9 第一部分描述了从动物组织中提取纤维并制备光谱测量样品的实验方案。第二部分介绍了布里渊光谱装置的搭建及对纤维进行光谱采集的操作流程。第三部分详细说明了用于分析布里渊光谱数据的方法,以提取其中包含的相关力学信息。随后,展示了典型的实验结果并进行了讨论。
方案
注意:使用前请查阅生物安全规程及所有相关的材料安全数据表(MSDS)。本实验所用激光器为3B类激光器,必须遵守当地关于安全使用该系统的相关规定。进行激光光谱测量时,请采取一切适当的安全措施,包括佩戴个人防护装备(安全护目镜)。
尾部肌腱取自因其他目的而被实施安乐死的7-8周龄Wistar大鼠,安乐死操作遵循欧盟法规1099/2009以及《动物福利(屠宰或处死)条例1995》。牛颈韧带取自当地屠宰场。
1. 样品纤维的制备
注意:细胞外基质的蛋白质纤维可以通过不同方法从各种组织中提取。本实验方案基于广泛应用的流程进行了优化。
- 从大鼠尾巴中提取胶原纤维
- 通过腹腔注射戊巴比妥钠(100 mg/kg 体重)处死大鼠,然后使用单刃剃须刀片在尾部与身体连接处直接切断尾部。将尾部用保鲜膜包裹,并在 -20 °C 冷冻保存,直至使用。
- 从冰箱中取出尾部,在仍处于冷冻状态时从近端切取一段长约 20 mm 的尾段,然后将其置于盛有磷酸盐缓冲液(PBS,pH 7.4)的培养皿中,在室温下自然解冻。
- 尾段解冻后,使用手术刀沿尾段长度方向切开皮肤,分离表皮,随后剥离以暴露尾椎周围约四束被鞘包裹的肌腱束。
- 使用精细镊子小心操作,避免施加预拉伸力,轻柔地将每根纤维从鞘中抽出,放入含有蒸馏水和 0.01% w/v 叠氮化钠(NaN3)的样品瓶中,以防止细菌生长,并冷藏保存。单根尾部可获得约三十根肌腱纤维。
- 为获得纯化的I型胶原纤维,需对肌腱纤维进行三步酶消化处理10,以去除蛋白聚糖及其他非胶原成分。
- 首先,将纤维浸入含 0.125 U/ml ABC型硫酸软骨素酶的溶液中,该溶液由 0.05 M Tris 缓冲液和 0.06 M 醋酸钠(CH3COONa)组成,pH 8.0,在 37 °C、200 rpm 摇床培养箱中孵育 24 小时。
- 然后,将纤维转移至含 1 U/ml 链霉菌透明质酸酶的溶液中,该溶液由 0.05 M Tris 缓冲液和 0.15 M 氯化钠(NaCl)组成,pH 6.0,在 37 °C 摇床培养箱中继续孵育 24 小时。
- 最后,将纤维浸入含 1 mg/ml 胰蛋白酶的溶液中,该溶液由 0.05 M 磷酸氢二钠(NaHPO4)和 0.15 M NaCl 组成,pH 7.2,在 37 °C 摇床培养箱中孵育 16 小时。
- 将纯化后的纤维保存于含蒸馏水和 0.01% NaN3 的样品瓶中,冷藏保存,直至用于测量。
- 从牛颈韧带中提取弹性纤维
- 从屠宰场获取牛颈韧带,用保鲜膜包裹后于 -20 °C 冷冻保存,直至使用。
- 为制备纯弹性蛋白,从冰箱中取出韧带,在室温下自然解冻,使用手术刀去除脂肪组织,然后按照Lansing法11在沸水浴中进行消化处理,步骤如下:
- 用蒸馏水配制 0.1 M 氢氧化钠(NaOH)溶液,加入锥形瓶中的去脂韧带组织中,确保完全浸没组织。
- 将锥形瓶置于 95 °C 水浴中煮沸 45 分钟。
- 从消化瓶中取出韧带,将不溶性组织块反复用蒸馏水冲洗,直至冲洗液 pH 达到 7.0(使用 pH 计监测)。
- 将组织从最后一次冲洗液中取出,浸入含 0.01% NaN3 的蒸馏水中(以防止细菌生长),密封容器后冷藏保存。
- 从冰箱中取出组织,使用镊子小心操作,避免施加过大外力或预拉伸,轻柔地从大块组织中分离出较小的弹性纤维段(长 20 至 50 mm,厚约 ca. 2 mm),并将其置于含 PBS 溶液(pH 7.4)的培养皿中。
- 使用精细镊子轻柔分离出直径约 1 mm 的细小纤维束,并用手术刀将其切割为数毫米长度的片段。
- 将纤维转移至含蒸馏水(含 0.01% NaN3 以防止细菌生长)的样品瓶中,冷藏保存,直至用于测量。
- 将纤维固定于反射性基底上
- 使用金刚石切割器切割一块反射性硅胶载片。
- 为构建水合环境,裁剪一条 Parafilm 膜,使其覆盖硅胶载片,并在中央留出空腔(大小足以容纳一根纤维),然后将其贴附于硅胶基底上。
注:对于干燥纤维测量,将 Parafilm 膜裁剪为 U 形,使得在步骤 1.3.4 密封时其中一侧保持开放,与空气相通。 - 从冰箱中取出纤维,使用精细镊子从保存液中取出单根纤维,置于盛有纯水的小培养皿中,在室温下清洗 5 分钟。随后取出纤维,转移至硅胶基底上 Parafilm 空腔的中心位置。
注意:操作过程中避免拉伸纤维造成损伤,同时避免在基底上重新调整样品方向,以免改变其力学性能。 - 在纤维上方覆盖一片薄玻璃盖玻片,并使用加热的电烙铁轻轻在玻璃表面滑过,使下方 Parafilm 熔化并密封腔室。
注意:避免电烙铁尖端过于接近纤维或过度加热基底,以防损伤纤维。 - 将密封后的腔室置于平坦表面,并在其上方施加轻微重物,静置约 12 小时,以确保样品与硅基底之间充分接触,同时避免对样本造成损伤。
- 移除重物,并使用螺丝将腔室牢固固定在基底上。
2. 布里渊实验的设置与纤维光谱的采集
- 样品室的准备
- 将按照第1.3部分制备的样品安装到配备有测角仪的垂直样品架上,以便在保持恒定散射角(2θ)的同时实现样品的面内旋转。Φ = 90°;参见 图 SI-1)和散射体积位置。
- 通过透镜对激光在样品上的焦点进行精确调节。9
注意:激光输出功率可能过高,导致样品灼伤。务必将其设置为足够高以获得良好灵敏度,但又不能过高以免损坏样品。此处我们使用的功率为 约 样品上的功率为76 mW,足以获得良好的灵敏度,同时不会灼伤样品,尤其考虑到样品较薄且与基底接触,有助于散去激光照射产生的热量。 - 将样品置于45°角Φ使用游标卡尺将入射激光束对准。通过运行测量并最大化光谱中峰的强度(见下文)来实现最佳定位。
- 设置光谱仪
- 打开用于数据采集和处理的软件,设置并采集样品的布里渊光谱12此处所述方法适用于多通带通干涉仪(multipass tandem interferometer)图 SI-1A).
- 独立调节控制单元施加于压电陶瓷的电压,以对准两个法布里-珀罗(FP)干涉仪。在此预对准过程中,观察每个FP反射的光。当两个FP反射的光强趋于零时,即达到正确对准状态。
- 校准光谱:可及的频率范围,或 自由光谱范围 (FSR)取决于第一个法布里-珀罗腔的两面反射镜之间的距离, L,通过 FSR = c/2L,其中 c 是光速和 L 通过百分表进行测量。
- 同步两个法布里-珀罗干涉仪的扫描,并将光学系统切换至串联多通配置。通过对透射激光光强的反馈控制,可在测量过程中自动维持两个法布里-珀罗干涉仪的准直。
- 布里渊光谱的测量
注意:布里渊光谱对样品的温度和水合状态高度敏感,因此严格控制这些参数是获得可重复光谱的关键。- 开始采集样品的布里渊光谱,并持续运行直至获得良好的信噪比。所需时间可能为数分钟,具体取决于样品的散射截面、浓度和厚度。
注意:信噪比并无通用经验法则,实验人员需根据具体分析的样品来评估光谱质量。光谱质量与测量时长之间存在权衡,因此实验参数应根据具体应用需求进行选择。 - 对于干燥样品的测量,需连续采集光谱(每张光谱均按步骤2.3.1操作),直至观察不到峰位的变化。当样品与室温环境达到平衡,且进一步干燥不再影响光谱时,即实现此状态。
- 选择光偏振方向(VV 或 VH;V 表示垂直于散射平面,H 表示平行于散射平面),并在每个相对于光纤轴的角度处采集光谱θ ; 图 SI-1通过手动旋转样品平面来实现。
- 将布里渊光谱保存至文件,以供后续处理。
- 开始采集样品的布里渊光谱,并持续运行直至获得良好的信噪比。所需时间可能为数分钟,具体取决于样品的散射截面、浓度和厚度。
3. 布里渊光谱分析
注意:布里渊峰的拟合分析可以使用多种函数进行。本文选用阻尼谐振子(DHO)函数4,13,因为该模型适用于源自黏弹性介质中阻尼声学模式的峰形。
- 布里渊峰的拟合分析
- 在布里渊光谱中选择感兴趣峰的光谱范围。
- 若光谱背景远高于零,则在拟合中启用基线校正。
注意:不同光谱之间的基线可能有所变化。需确保校正方法具有系统性和可重复性。 - 对感兴趣的布里渊峰,使用DHO函数4,13进行详细的最小二乘拟合,迭代进行直至收敛,获得最佳拟合曲线。然后将拟合结果保存至文件。
- 从每个布里渊双重峰的两个峰的拟合参数中获取平均值。
- 根据峰频率(使用下述表达式)计算声波传播速度。
- 通过图表绘制拟合结果,例如,声波速度随相对于纤维轴的角度 θ 的变化,并应用相关模型(例如,针对声学各向异性体系9)提取弹性张量系数等力学参数。
结果
本实验所使用的布里渊光谱仪装置(图 SI-1A此前已有描述。9 采用单模532 nm固体激光器,样品处输出功率为76 mW。通过一个20 cm消色差透镜将激光聚焦至样品,并以背向散射几何构型收集样品的散射光。利用串联多通程法布里-珀罗干涉仪对散射光进行滤波,随后由低噪声光电二极管探测器进行检测。该方法可提供极高的对比度(约 120 dB)以及通过法布里-珀罗标准具的自对准压电扫描实现的稳定性。引入起偏器和检偏器以选择入射光和散射光的偏振方向。通常在保持起偏器固定以选择入射光偏振的垂直(V)方向的条件下,通过检偏器交替选择散射光偏振的垂直(V)或水平(H)方向来获取光谱。在此配置下,分别检测到纵向和横向声学模式。
典型的布里渊光谱由于弹性散射而呈现一个强烈的中心峰,以及一个或多个等间距偏移的峰组,或 布里渊双线,这是样品力学特性的特征表现。在这些测量中,散射光既可能来自体声子在样品内部沿近乎垂直于样品方向的传播,也可能来自入射光在样品-基底界面反射后,体声子沿表面平行方向传播所产生的散射(PS模式)。9
图2 显示了在VV偏振下获得的干燥和水合胰蛋白酶消化胶原纤维的BLS光谱,光谱分辨率为0.2 GHz,自由光谱范围为30 GHz,每条光谱采集时间约为10分钟。每条光谱对应一个特定的旋转角度。 θ (图 SI-1C)。在干燥的胶原纤维中 θ = 0°,纵向模式在 (18.92 ± 0.02) GHz 处产生一个体相峰,而 PS 模式位于 (9.85 ± 0.03) GHz图 2A)。PS 峰向较低频率移动 θ 从……开始 0° (声子探测纤维的轴向取向)到 90° (声子探测径向取向),而体相峰在改变条件下仅发生轻微红移 θ 在同一范围内(声子在整个旋转过程中探测准径向方向)。在湿胶原纤维中,由纵向声子引起的两个峰在整个实验过程中基本保持不变,体相峰位于 约 10.5 GHz 和 4.9 GHz 处的 PS 峰图2B)。这表明由于水合作用,峰值频率(相对于18.92 GHz和9.85 GHz的数据)降低了80%至100%,因而材料刚度显著下降。需要注意的是,水合胶原的体相模式和PS模式的频率接近纯水的振动模式,说明其弹性常数是水和纤维贡献的综合结果,其中水起主导作用。
图3展示了在θ = 30°、VH偏振条件下测得的干燥胰蛋白酶消化胶原纤维的频谱;VV偏振的泄漏使得PS峰和体相(bulk)峰仍可被观察到。横向模式在(4.1 ± 0.2) GHz(θ = 0°)处产生一个峰,当θ从0°变化到90°时,该峰发生轻微的蓝移。图中同时给出了横向模式峰和PS峰的拟合结果。通过峰的曲线拟合分析提取峰参数,并据此推导声波速度:VL = vλ/√2,其中v为拟合所得模式频率,λ为激发波长(532 nm)。需要注意的是,在此几何构型下,由于散射几何关系qs = 2ki sin(Φ) 的存在(图SI-1b,c),无需知晓材料的折射率即可获得声学模式速度,因此该方法具有显著优势。
图 4 是纵波和横波模式(PS峰和T峰)测得的声波速度随角度θ变化的曲线图 . 采用六边形对称弹性固体模型进行拟合分析7 — 以下公式 A1 和 A2 — 提供了经胰蛋白酶消化的干 I 型胶原纤维弹性张量的五个组分(表1).
纵向和横向声波速度由以下公式给出9
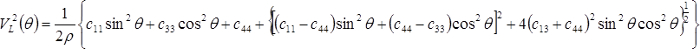 ,(A1)
 ,(A2)
其中,ρ 为材料的密度,且 c11, c33, c44 和 c13 是表征具有六方对称性系统的五个弹性常数中的四个。第五个常数, c12,可由以下近似关系推导得出 c12 ~ c11 - 2c44.7
这些系数与先前从未纯化的胶原纤维中获得的系数相似。9 对于系数 c13,纯化胶原纤维表现出明显差异,这导致其纵向弹性模量 Eǁ 和横向弹性模量 E 的值相近(分别约为 7.2 和 7.7 GPa)。
图5 是湿态胶原的纵向声波速度与 θ 在此情况下,未观察到频率的周期性变化,表明在误差范围内速度恒定。 图6 显示在干燥和水合状态下测得的弹性纤维光谱 θ = 0°横模在这些样品中未被检测到。在干燥的弹性蛋白中,体相峰出现在16.8 GHz,而PS模出现在8.2 GHz。9 (比干胶原相应峰值低13%和20%)。湿弹性蛋白纤维在(12.30 ± 0.01) GHz处呈现体相峰值(比干弹性蛋白体相峰值频率低37%)。由于弹性峰在该频率范围内的强烈拖尾,湿弹性蛋白的PS模态在谱图中不明显。另一方面,位于 约 7.5 GHz 归因于体相水。
图7展示了干弹性蛋白纤维中声波速度对θ的依赖性。根据这些数据,获得了弹性张量分量(及力学模量)(表1)。9 与湿态胶原类似,水合弹性蛋白纤维的力学模量也表现出各向同性的特征。这些结果表明,布里渊光谱技术能够提供有关材料刚度、组成及结构特征的相关信息。
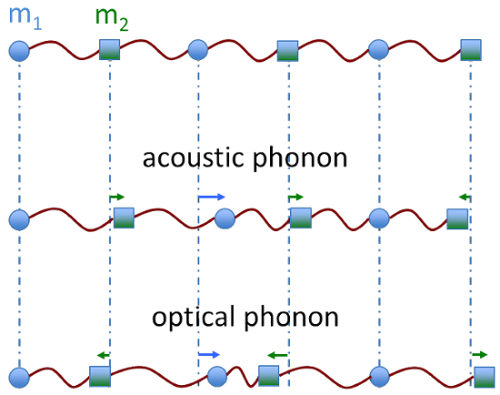
图 1. 一维原子链中的声学声子与光学声子。 一维双原子链中声学振动与光学振动的示意图。原子质量分别为 m1 和 m2,并交替排列。箭头表示原子的位移方向。请点击此处查看此图的放大版本。

图 2. 大鼠尾腱中经胰蛋白酶纯化的 I 型胶原纤维的布里渊光谱。 图中显示了在不同相对于纤维轴的角度 θ(单位:度)下,通过 VV 测量获得的(A)干燥纤维和(B)水合纤维的光谱。同时展示了纯蒸馏水的光谱。所有光谱均以体相峰的强度(高度)为基准进行了归一化处理。标签 B 和 PS 分别表示与体相模式和平行于表面模式相关的峰。误差棒表示标准误差(计数次数的平方根)。请点击此处查看该图的放大版本。

图3. 大鼠尾腱中经胰蛋白酶纯化的I型胶原纤维的布里渊光谱 VH 测量中的光谱 θ = 30°标签 T、PS 和 B 分别表示与横向模式、平行于表面模式和体相模式相关的峰。还展示了使用阻尼谐振子(DHO)模型对 T 和 PS 模式进行拟合分析的结果。误差棒表示标准误差(计数数量的平方根)。 请点击此处以查看此图的放大版本。

图 4. 干燥胰蛋白酶纯化胶原中声波速度随相对于纤维轴角度的变化图。 干燥胶原纤维的纵波和横波声波速度由布里渊峰的拟合分析得出。数据拟合至六角对称弹性固体模型。红线:方程 A1(R2 = 0.99);蓝线:方程 A2(R2 = 0.36)。误差棒表示对布里渊光谱进行 Levenberg-Marquardt 非线性最小二乘拟合后,协方差矩阵对角线元素平方根所得的标准误差。请点击此处查看该图的放大版本。

图 5. 水合胰蛋白纯化胶原中纵向声波速度随纤维轴角度变化的曲线图。 由布里渊峰拟合分析得出的水合胶原纤维的纵向声波速度。图中所示曲线为视觉引导线,表示该范围内声波速度的平均值。误差棒表示对布里渊谱进行Levenberg-Marquardt非线性最小二乘拟合后,从协方差矩阵对角线元素的平方根计算得到的标准误差。请点击此处查看该图的高清版本。
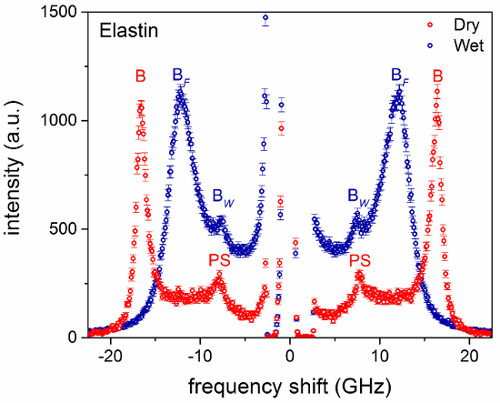
图6. 牛颈韧带弹性纤维的布里渊光谱 干燥与水合纤维的光谱 θ = 0°光谱均以体相峰的强度(高度)进行归一化。标签 B 和 PS 分别表示与体相模式和表面平行模式相关的峰。BF 和 BW 分别指纤维和水的主体峰。误差棒表示标准误差(计数次数的平方根)。 请点击此处以查看此图的放大版本。

图7. 干弹性蛋白中纵向声波速度随纤维轴角度变化的曲线图。 由布里渊峰拟合分析得出的干弹性蛋白纤维的纵向声波速度。数据拟合至六方对称弹性固体模型。红线:方程A19(R2 = 0.74)。误差棒表示对布里渊谱进行Levenberg-Marquardt非线性最小二乘拟合后,协方差矩阵对角元素平方根所得的标准误差。请点击此处查看该图的高清版本。

图 SI-1. 布里渊实验装置示意图及布里渊光散射(BLS)几何构型。(A)由固态激光器发射的入射光通过消色差透镜照射到样品上。由体声学声子以及由与样品接触的基底表面反射光所产生的声子所散射的光,由同一透镜收集,经串联多通法布里-珀罗干涉仪滤波后,由光电倍增管检测。FP1 和 FP2 表示构成串联结构的两个干涉仪。偏振片用于选择入射光的偏振态,分析器用于选择散射光的偏振态。(B)样品与反射性硅基底表面接触时的 BLS 几何构型。样品上方放置一片玻璃盖片(未显示),以密封样品腔,并通过基底角落的垫片施加轻微压力。入射光(ki)穿过透镜,在空气-样品界面发生折射(k'i),并聚焦于样品-基底界面。由同一透镜收集的散射光(k's)来源于与体声子(qb)以及沿样品表面传播的表面声子(qs)的相互作用。光传播方向与表面法线之间的夹角分别标记为 Φ 和 Φ'。(C)样品及其所采用坐标系的示意图;z 轴定义为与纤维方向平行的特殊轴。角度 θ 和 α 分别表示表面声子 qs 和体声子 qb 的传播方向与 z 轴之间的夹角。ki、k'i、ks、k's:入射光与散射光的波数;qb、qs:体声子模式与表面声子模式的波矢。(转载自参考文献9。)请点击此处查看该图的放大版本。
表1. 通过声波速度拟合分析得到的弹性张量系数。 干燥的经胰蛋白酶纯化的I型胶原纤维(本研究)和弹性蛋白纤维(参考文献9)的弹性张量系数。
| 样品 | 弹性系数 (GPa) | |
| 胰蛋白酶消化的胶原蛋白 | c33 | 18.7 ± 0.1 |
| c11 | 14.4 ± 0.2 | |
| c44 | 3.4 ± 0.1 | |
| c12 | 7.2 ± 0.2 | |
| c13 | 11.2 ± 0.3 | |
| 弹性蛋白 | c33 | 11.5 ± 0.2 |
| c11 | 10.4 ± 0.1 | |
| c44 | 1.9 ± 0.2 | |
| c12 | 6.6 ± 0.2 | |
| c13 | 6.8 ± 0.3 | |
讨论
布里渊散射光谱是一种独特工具,可以前所未有的细节表征蛋白质纤维弹性张量的各个分量。此外,该测量可在微观尺度上进行,从而为我们提供关于生物结构微观力学的新见解,使我们首次能够理解近年来所揭示的基质结构和生物化学复杂性在力学上、可能还包括功能上的重要意义。
该技术可在千兆赫兹(GHz)频率范围内测量机械性能。这一领域此前从未被用于研究结构生物大分子,它不仅提出了关于弹性分子机制的基本科学问题,同时也为解答这些问题提供了手段。
我们描述了从动物组织中提取胶原蛋白和弹性蛋白纤维的步骤,并利用反射基底测量布里渊散射光谱,以全面表征纤维的生物力学特性。该方案中的关键步骤在于确保获得纯化的纤维,并建立适当的实验条件,以实现对纤维蛋白的可重复测量。然而,必须注意的是,提取过程可能会改变纤维的力学性质。
该技术的改进包括与光学显微镜联用,实现微聚焦布里渊散射及成像分析方法13,以及可能与其他互补技术(例如,拉曼散射)相结合。目前该技术的应用主要集中于离体生物材料,但重要的技术进展——例如基于多级VIPA标准具的方法14——正推动该技术从实验室走向临床应用,并已在多种场景中得到验证15,16,包括潜在的活体(in vivo)应用。VIPA方法是我们所描述技术的一种替代方案,其具有更快的数据采集速度,但在分析此类不透明样品时未必适用。此外,在使用VIPA标准具的实验装置中,采用反射基底并不现实,因为其对比度不足以有效抑制准弹性光信号。由于光谱数据采集速度较慢以及材料本身散射截面较弱,该技术在动态生物系统中的应用以及对组织深层区域的数据获取可能受到限制,但技术上的进一步优化有望提升当前性能。
BLS 有望成为细胞外基质基础生物物理研究的重要工具,从而为基质生长过程中力学性质的演变及其在病理性退变中的丧失提供新的见解。然而,必须注意的是,该测量方法为非侵入性,因此可被实施 体内事实上,这一目标已在角膜中实现。16 此类工作可能为开发针对多种结缔组织疾病的新型诊断工具提供平台。
超声弹性成像和原子力显微镜(AFM)是微机械性能测量的替代方法,但布里渊光散射(BLS)技术相比前者具有更高的空间分辨率(达到亚细胞尺度),并且与AFM不同,BLS不对样品施加任何机械力,也不局限于仅分析表面特征。胶原蛋白和弹性蛋白的布里渊模量处于GPa量级,而基于宏观应变测得的杨氏模量则在MPa量级(更多细节将另文报道)。该结果表明弹性模量存在差异,且强烈依赖于激发频率,这是由于纤维具有黏弹性行为所致。BLS可应用于生物医学科学中的广泛问题和材料研究,不仅有助于解答生物组织生理与病理方面的科学问题,还可作为一种物理工具,促进在分子水平上对材料及其相互作用的基础理解。
披露
作者无任何利益冲突披露。
致谢
本工作由工程与物理科学研究理事会资助[资助编号 EP/M028739/1]。RSE 获得 2015 年桑坦德研究生研究奖的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Chondroitinase ABC | Sigma-Aldrich | C2905 | |
| Tris缓冲液 | Fluka | 93358 | |
| 醋酸钠 | Fisher Scientific | S608-500 | |
| PBS | Sigma-Aldrich | P4417 | |
| 叠氮化钠 | Fisher Scientific | S2002 | |
| 链霉菌透明质酸酶 | Sigma-Aldrich | H1136-1AMP | |
| 氯化钠 | Fisher Scientific | S7653 | |
| 胰蛋白酶 | Sigma-Aldrich | T4665 | |
| 磷酸钠 | Sigma-Aldrich | S9638 | |
| 氢氧化钠 | Fisher Scientific | S320-500 | |
| 纯水 | Millipore | ZRQS0P3WW | 实验室自制 |
| 蒸馏水 | Bibby Scientific Limited | D4000 | 通过蒸馏装置实验室自制 |
| Euthatal | Merial | J01601A | |
| 串联干涉仪 TFP-1 | JRS Scientific Instruments | ||
| 冷冻柜 | Lec | TU55144 | |
| 冰箱 | Zanussi | ZBA15021SA | |
| 加热板 | Fisher Scientific | SP88857206 | |
| 夹具 | VWR | 241-7311 & 241-7201 | |
| 铁架台 | VWR | 241-0093 | |
| 温度计 | Fisher Scientific | 13-201-401 | |
| 保鲜膜 | Sainsbury's | 7650540 | |
| Parafilm | Sigma-Aldrich | P7793-1EA | |
| 硅胶 | IDB Technologies | N/A | 无目录编号,需按要求订购。 |
| 盖玻片 | VWR | 631-1571 | |
| 锥形瓶 | VWR | 214-1175 | |
| 烧杯 | VWR | 213-0469 | |
| 量筒 | VWR | 612-3838 | |
| 小瓶 | VWR | 548-0051 & 548-0863 | |
| 培养皿 | VWR | 391-0441 | |
| 手术刀 | Swann Morton Ltd | 0914 & 0308 | |
| 金刚石刻划笔 | RS Instruments | 394-217 | |
| 电烙铁 | RS Instruments | 231-5332 | |
| 精细镊子 | VWR | 232-0188 | |
| 双头微型刮勺 | VWR | 多种规格 | |
| pH计 | Hanna Instruments | HI-2210-02 | |
| 旋转摇床 | IKA | 0002819000 |
参考文献
- Brillouin, L. Diffusion de la lumière et des rayonnes X par un corps transparent homogène; influence de l'agitation thermique. Ann. Phys. 17, 88-122 (1922).
- Caponi, S., Corezzi, S., Mattarelli, M., Fioretto, D. Stress effects on the elastic properties of amorphous polymeric materials. J. Chem. Phys. 141 (21), 214901(2014).
- Mattarelli, M., Montagna, M., Still, T., Schneider, D., Fytas, G. Vibration spectroscopy of weakly interacting mesoscopic colloids. Soft Matter. 8 (15), 4235-4243 (2012).
- Comez, L., Masciovecchio, C., Monaco, G., Fioretto, D. Solid State Physics. Robert, E. C., Robert, L. S. 63, Academic Press. 1-77 (2012).
- Madami, M., et al. Direct observation of a propagating spin wave induced by spin-transfer torque. Nat. Nanotechnol. 6 (10), 635-638 (2011).
- Harley, R., James, D., Miller, A., White, J. W. Phonons and the elastic moduli of collagen and muscle. Nature. 267 (5608), 285-287 (1977).
- Cusack, S., Miller, A. Determination of the elastic constants of collagen by Brillouin light scattering. J. Mol. Biol. 135 (1), 39-51 (1979).
- Vaughan, J. M., Randall, J. T. Brillouin scattering, density and elastic properties of the lens and cornea of the eye. Nature. 284 (5755), 489-491 (1980).
- Palombo, F., et al. Biomechanics of fibrous proteins of the extracellular matrix studied by Brillouin scattering. J. R. Soc. Interface. 11 (101), (2014).
- Sivan, S. S., et al. Age-related accumulation of pentosidine in aggrecan and collagen from normal and degenerate human intervertebral discs. Biochem. J. 399 (1), 29-35 (2006).
- Leon, W. C. Methods in Enzymology. 144, Academic Press. 196-214 (1987).
- Fioretto, D., Scarponi, F. Dynamics of a glassy polymer studied by Brillouin light scattering. Mater. Sci. Eng. A. 521-522, 243-246 (2009).
- Palombo, F., Madami, M., Stone, N., Fioretto, D. Mechanical mapping with chemical specificity by confocal Brillouin and Raman microscopy. Analyst. 139 (4), 729-733 (2014).
- Scarcelli, G., Yun, S. H. Multistage VIPA etalons for high-extinction parallel Brillouin spectroscopy. Opt. Express. 19 (11), 10913-10922 (2011).
- Scarcelli, G., Kim, P., Yun, S. H. In Vivo Measurement of Age-Related Stiffening in the Crystalline Lens by Brillouin Optical Microscopy. Biophys. J. 101 (6), 1539-1545 (2011).
- Scarcelli, G., Yun, S. H. In vivo Brillouin optical microscopy of the human eye. Opt. Express. 20 (8), 9197-9202 (2012).
重印与许可
