本文介绍了一种利用埋藏的标记种子条带和氯化三苯基四氮唑(TZ)活力检测法,在野外条件下评估种子存活率、萌发率和休眠状态的实验方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
我们以向日葵(Helianthus annuus)作为示例研究物种,介绍了一种用于估算种子库动态随时间变化的技术。通过将可渗透的聚酯纤维布条与胶水折叠并粘合,可制成包含种子及识别信息的分隔小室,同时允许种子接触土壤渗滤液、水分、微生物以及环境温度。布条可根据需要设计成不同数量和大小的分隔室,使研究人员能够在同一物种内不同基因型、不同物种之间,或经历不同处理的种子之间进行比较。与单个种子袋相比,布条形式更便于整体回收。虽然可在同一条布带上设置重复的种子袋,但不同的布条可作为区组使用,或在不同时间点取出,以观察种子行为随时间的变化。我们使用高温热熔胶枪划分各个小室,并在将种子以及标注区组和取出时间的标签放入后密封布条。随后将种子布条埋入田间预定深度,并标记位置以便后续回收。通过在土壤表面覆盖金属网纱,可有效防止穴居动物捕食。在完成预定的埋藏时间后,挖出布条并对种子进行萌发、休眠和死亡状况的评估。虽然明显死亡的种子通常可通过肉眼与未萌发但存活的种子区分开来,但休眠种子需通过标准的氯化三苯基四氮唑(TTC)染色法测定种子活力,以进行确切鉴定。
引言
该方法的总体目标是在田间条件下可靠地评估种子随时间的存活率。
土壤种子库是指散布在土壤表面、地表凋落物中或土壤剖面内的一类具有活力但尚未萌发的种子储备,这些种子可短暂存在或持续存活多年1,2。当采用与本文所述相似的种子埋藏方法进行为期17年、涉及数十个物种的研究时,发现其中许多被测物种仍存在具有活力的种子3。种子休眠是指在适宜幼苗存活的环境条件尚未具备之前,种子萌发受到抑制的现象4。保持休眠状态可使种子在严冬低温、养分匮乏或季节性干旱等恶劣条件下存活,直到外界触发因素解除休眠,从而启动萌发过程。解除休眠的触发因素多种多样,包括长期低温暴露、火灾残留化合物的作用,或种皮受到机械磨损以及动物胃酸接触等物理性破坏5。由于萌发信号往往具有属或种的特异性,并通常是自然选择长期作用的结果,因此不适当的萌发时间会导致适应不良的种子萌发现象,可能造成种子或幼苗死亡,或导致幼苗生长不良。尽管根据休眠解除机制的不同,休眠已被划分为多种类型(例如,物理性休眠、生理性休眠)6,但种子休眠仍是植物生物学中了解最少的课题之一。因此,在相关生态条件下对单个种子或种子群体状态进行评估的野外研究,其解释力高于仅依赖实验室标准萌发试验的研究。
利用已知的种子特性可为休眠机制提供深入见解。种子休眠的调控机制十分复杂,涉及对生理和形态因素的遗传控制。尽管目前尚未完全阐明休眠机制的全部范围,但已形成一个普遍模型,该模型涉及两种植物激素——赤霉素(Gibberellic Acid, GA)和脱落酸(Abscisic Acid, ABA)之间的反馈关系7。在具有生理成分的种子休眠通用模型中,GA作为打破休眠的信号分子,而ABA则维持种子的休眠状态。母体遗传效应以及母体生长环境可通过母体产生的组织和发育信号影响种子休眠及其他种子性状(如种子大小)8。母体产生的外部结构(或称种皮覆盖物)可能单独或与生理信号协同作用,维持种子休眠状态。由于这些母源性种皮结构由母本植株的基因控制,因此可能无法反映种子本身的核基因组成。我们利用一系列栽培-野生向日葵(Helianthus annuus)杂交后代的瘦果,来解析母体效应与胚胎遗传效应对种子性状的影响9,10。 因此,包含多种物种、杂交类型或基因型的研究设计,有助于获取关于种子休眠、萌发与存活的生态学和遗传学信息。
种子萌发和存活表型如何影响种群动态的一个重要实例可见于作物-野生杂交区。在作物驯化过程中,选择作用消除了大多数种子休眠特性,并降低了种子在生长季之外环境中的存活能力。然而,在作物-野生杂交区,栽培种与野生种之间的基因流动或杂交可能将作物等位基因(或遗传变异)重新引入野生种群,从而对种子库动态产生潜在影响。在作物-野生杂交区可能出现的栽培种与野生近缘种之间的杂交后代,可能表现出多种中间型的休眠表型,其中仅有少数表型能够耐受非栽培条件(例如,冬季)11。
本文的目的是展示如何利用种子埋藏条带法,在不同时间段评估多种类型种子的萌发、休眠和存活情况,以研究其在田间条件下的自然变异。在我们的示例中,我们采用了来自15种作物-野生杂交组合类型的向日葵种子,因为我们关注母体和胚胎遗传效应对种子特性的影响。
访问受限。请登录或开始试用以查看此内容。
方案
1. 收集多个物种或单个物种的受控杂交种子
注意:本示例使用了15种不同杂交类型的种子,这些种子来源于物种 Helianthus annuus(向日葵),其母本(结籽亲本)包括野生型、杂交型和栽培型。
- 在生长季结束时,将成熟的种子穗采集到带有标签的袋子中。清除杂质后,将种子放入信封,并按标准格式标注亲本杂交类型(即,母本 × 父本)。
- 将相同数量、相同亲本杂交类型的种子等量混合,装入大信封中。例如,从10种相同的母本和父本组合的杂交类型中各取100粒种子进行混合。在信封上标注可识别的杂交类型信息。这些大信封中的种子作为种子母本,用于第2节中填埋条的填充。
| 母本 | |||
| 父本 | 野生型:WxW | F1代:WxC | 栽培种:CxC |
| 野生型:WxW | 0% WxW | 25% F1xW † | 50% CxW † |
| 回交后代:WxF1 或 F1xW | 12.5% WxBC | 37.5% F1xBC | 62.5% CxBC |
| F1代:WxC | 25% WxF1 † | 50% F1xF1 | 75% CxF1 † |
| F2代:F1xF1 | 25% WxF2 | 50% F1xF2 | 75% CxF2 |
| 栽培种:CxC | 50% WxC † | 75% F1xC † | 100% CxC |
表1. 人工授粉产生的亲本杂交类型。 向日葵栽培-野生杂交杂交类型通过人工授粉获得,用于种子埋藏实验。对于所有杂交类型,母本列在前面,父本列在后面。标有 † 的杂交类型属于互作杂交类型配对,具有相同百分比的栽培等位基因但母本不同。该表先前发表于:Pace, B. A. et al. (2015)15。
2. 制备定制种子埋藏条
注意:本示例中设置了三个移除时间处理组,每组15个重复,共需要45条条带。本示例每条条带包含15个隔室,因此需要足量的细网眼聚酯织物或蚊帐材料,以制作15个尺寸为7 cm × 10 cm的隔室。参见图1。
- 为每条种子条裁剪一条 20 × 105 cm 的织物条。
- 测量并标记出各个区室,然后将织物对折。使用高温热熔胶枪密封其中一端较短的边缘(10 cm)。待胶水略微冷却但尚未完全凝固时,将织物两侧压紧,以形成密封。
警告:高温热熔胶及胶枪喷嘴若长时间接触皮肤,可能导致烫伤。 - 从折叠边缘开始,沿每个区室标记处向开口端的短边涂抹胶线。沿胶线将两层织物压合,确保各区室之间密封严密、无孔隙。种子在区室间迁移将导致实验误差。
注意:区室制作完成后,未折叠的一侧边缘应保持开放,以便后续装入种子及其标识信息(杂交类型名称)。 - 为每条织物条上的各区室随机分配种子杂交类型。
- 每个区室装入数量一致的种子(本示例中每个区室装入 20 粒)。标签可使用工业级永久性记号笔书写在裁剪合适的塑料园艺标牌上,以确保其能够耐受埋藏环境。
注意:也可采用其他标记方法。 - 每个区室装入种子并贴上标签后,立即使用高温热熔胶枪将该区室密封。依此操作直至整条种子条完全密封。在第一个区室处对整条种子条进行总体标记,注明重复编号、区组和/或处理信息。
注意:在本研究中,由于涉及不同时间点取样、区组设计以及区组内的重复条带,因此包含了所有上述信息。 - 在开始制作下一条种子条前,检查各区室之间是否存在缝隙,并根据需要进行局部补胶。
- 每个区室装入数量一致的种子(本示例中每个区室装入 20 粒)。标签可使用工业级永久性记号笔书写在裁剪合适的塑料园艺标牌上,以确保其能够耐受埋藏环境。
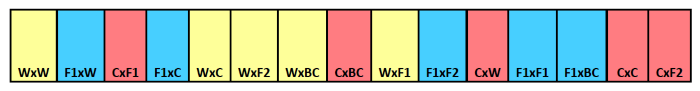
图 1. 埋藏种子条带示意图。 埋藏条带示例,显示各个区室的杂交类型标识。母本列在前面,父本列在后面。不同颜色表示不同的母本来源:野生型为黄色,F1 杂交种为蓝色,栽培作物为红色。请点击此处查看此图的放大版本。
3. 在田间埋藏种子条
- 挖掘指定深度的样坑以放置种子条。将种子条分配到各个区组中,每个区组内的种子条随机排列,以便在数据分析时将移除日期作为主区因素,区室标识(本例中为杂交类型)作为裂区因素。
- 用土壤覆盖种子条。将金属网纱裁剪至比样坑每边大10 cm,并覆盖在埋藏的种子条上方。使用U型钉固定网纱边缘,并用土壤覆盖网纱四周。
注意:此覆盖用于排除掘穴的种子捕食者。作为另一种选择,Mercer et al.13 由于其野外地点鼹鼠压力较大,曾制作并埋入由金属网纱构成的箱体以完全包围种子条。 - 放置彩色测量标志旗,以区分种子条的位置和移除日期,辅以清晰的书面记录。
4. 挖掘条带并评估种子
- 挖出指定取出日期的种子条带。在种子条带运送到实验室进行种子评估之前,需保持其处于阴凉湿润的环境中。可通过将条带用湿报纸包裹后放入冷藏箱中进行运输或过夜寄送来实现。
- 在水中冲洗条带上的泥浆和土壤,直至条带足够清洁,外部杂物不会遮挡种子。
- 使用剪刀一次剪开一个隔间。统计已萌发的种子并将其移除。统计明显死亡的种子(例如,腐烂或腐败的种子)。将未萌发的种子放置在已标记的湿润培养皿大小的吸水纸上,以进一步区分未萌发、休眠和死亡的种子。
- 将含有未萌发种子的培养皿放入设定为标准萌发条件的生长箱中:25 °C /10 °C,12 小时光照/12 小时黑暗。让种子萌发一周时间。在此期间萌发的种子记为具有活力,但由于未在田间条件下萌发,因此归类为未萌发。
- 经过生长箱处理后,使用氯化三苯基四氮唑(Tetrazolium chloride, TZ)13对剩余未萌发的种子进行活力检测。具体操作为:根据AOSA《氯化三苯基四氮唑检测手册》14,配制适用于研究物种的TZ百分比溶液。本示例中使用1%的溶液。
- 将未萌发的种子切成两半,取其中可见胚和胚乳的一半,放入含有足够TZ溶液的培养皿中,以浸没种子为宜(种子可能漂浮,属正常现象)。
- 将含TZ溶液的培养皿放入设定为30 °C的培养箱中,孵育3小时。注意:若需要,可采用更高温度以加快反应速度,但存在染色过深的风险。
- 从培养箱中取出培养皿并进行评估。若种子胚部被染成红色,则表明其具有萌发能力;未被染色的种子为死亡种子。有关边缘情况及特定物种的进一步判读,请参考AOSA《氯化三苯基四氮唑检测手册》。
访问受限。请登录或开始试用以查看此内容。
结果
具有不同母本来源和作物等位基因百分比的杂交类型在发芽率、未发芽种子和死亡种子百分比方面,随去除时间的不同而存在差异(表1;图2和图3)。通过对未发芽种子进行TZ检测,我们发现第二次取出时(早春)存在部分真正休眠的种子(表2),而到第三次取出时(春季)所有未发芽的种子均为真正休眠状态。
总体而言,较低的作物等位基因百分比降低了晚秋季节的适应不良性萌发(图 2)。在早春取样时,所有杂交类型的萌发率均较高,但在死亡率和未萌发比例上存在差异(图 3)。特别是,以作物为母本的杂交类型死亡率较高,而以野生型为母本的杂交类型更倾向于保持未萌发状态。到春季时,部分杂交类型的萌发率有所下降。尽管这一现象看似违反直觉,但很可能是由于较早萌发的杂交类型在埋藏条带中发生了种子...
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍了利用种子埋藏条带在田间预设的时间段内观察多种种子材料的萌发、休眠及死亡情况的方法。与使用单个包装袋相比,采用条带的主要优势在于:(1)制作条带及其分隔小室的速度快于制备多个独立包装;(2)可在一次操作中快速、便捷地取出多个小室,避免遗漏或误取包装袋的风险。在本示例中,有两个取样时间处于冬季,此时土壤坚硬、野外环境寒冷,该方法可显著减少人力投入并降低人为误差的可能性。种子条带还有助于实验管理,研究人员可在实验室中对各小室的位置进行随机化处理,从而避免在田间操作时因人为失误而破坏随机性。通过选择覆盖预期自然萌发时间范围的取样时间点,我们能够推断种子库的动态特征——在本例中,即杂交种子在种子库中长期存留并贡献于未来种群的潜力。该方法的一个局限性在于,种子在不同小室之间可能发生一定程度的迁移,其程度取决于种子大小。因此(如实验方案所述),研究人员必须仔细检查各小室之间高温胶水密封的完整性,以最大限度减少种子迁移。
通过周密考虑时间安排,可以避免种子埋藏实验中的一些问题。应根据研究物种的自然生命周期和研究目标,选择合适的埋藏和取样时间。最好在自然散播种子后尽快进行埋种。取样时间的选...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究得到了美国农业部国家食品与农业研究所生物技术风险评估资助项目竞争性资助(项目编号:2006-39454-17438)的支持,资助对象为 A. Snow、K. Mercer 和 H. Alexander。采用本方法开展的实验在堪萨斯大学野外站进行,并由该站提供支持;堪萨斯大学野外站是堪萨斯生物调查局和堪萨斯大学的研究单位。作者谨此感谢 P. Jourdan 和 E. Regnier 对本稿件早期版本提出的有益评审意见。此外,本研究还受益于堪萨斯大学野外站、俄亥俄州立大学(OSU)沃特曼农场、OSU 的美国农业部观赏植物种质中心,以及 OSU 园艺与作物科学系种子生物学实验室工作人员的贡献,特别感谢 E. Renze、S. Stieve、A. Evans 和 E. Grassbaugh 提供的技术支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 小型硬币信封 | 任意 | ||
| 大型硬币信封 | 任意 | ||
| 细密聚酯蚊帐网 | 任意 | ||
| 高温热熔胶枪 | 任意 | ||
| 高温热熔胶棒补充装 | 任意 | ||
| 工业级永久性记号笔 | 任意 | ||
| 塑料园艺标签 | 任意 | ||
| 剪刀 | 任意 | ||
| 铲子 | 任意 | ||
| 金属网筛布 | 任意 | ||
| 测量标志旗(多种颜色) | 任意 | ||
| 湿报纸 | 任意 | ||
| 保温箱 | 任意 | ||
| 吸水纸 | 任意 | ||
| 培养皿 | 任意 | ||
| 温度控制生长室 | 任意 | ||
| 剃须刀片 | 任意 | ||
| 培养皿 | 任意 | ||
| 氯化四氮唑 | 任意 | ||
| 水 | 任意 | ||
| 恒温培养箱 | 任意 |
参考文献
- Walck, J. L., Baskin, J. M., Baskin, C. C., Hidayati, S. N. Defining transient and persistent seed banks in species with pronounced seasonal dormancy and germination patterns. Seed Sci Res. 15 (3), 189-196 (2005).
- Alexander, H. A., Schrag, A. M. Role of soil seed banks and newly dispersed seeds in population dynamics of the annual sunflower. Helianthus annuus. J Ecol. 91, 987-998 (2003).
- Burnside, O. C., Wilson, R. G., Weiseberg, S., Hubbard, K. Seed longevity of 41 weed species buried 17 years in eastern and western. Weed Sci. 44 (1), 74-86 (1996).
- Baskin, C. C., Baskin, J. M. Seeds: Ecology, biogeography, and evolution of dormancy and Germination. , Academic Press. San Diego, CA. (2001).
- Finch-Savage, W. E., Leubner-Metzger, G. Seed dormancy and the control of germination. New Phytol. 171, 501-523 (2006).
- Baskin, J. M., Baskin, C. C. A classification system for seed dormancy. Seed Sci Res. 14 (1), 1-16 (2004).
- Donohue, K., et al. Environmental and genetic influences on the germination of Arabidopsis thaliana in the field. Evolution. 54 (4), 740-757 (2005).
- Roach, D. A., Wulff, R. D. Maternal effects in plants. Ann Rev Ecol Syst. 18, 209-235 (1987).
- Pace, B. A., Alexander, H. M., Emry, J. D., Mercer, K. L. Seed fates in crop-wild hybrid sunflower: crop allele and maternal effects. Evol Appl. 8 (2), 121-132 (2015).
- Alexander, H. M., Emry, D. J., Pace, B. A., Kost, M. A., Sparks, K. A., Mercer, K. L. Roles of maternal effects and nuclear genetic composition change across the life cycle of crop-wild hybrids. Am J Bot. 101 (7), 1176-1188 (2014).
- Stewart, N. C., Matthew, J., Halfhill, D., Warwick, S. I. Transgene introgression from genetically modified crops into their wild relatives. Genetics. 4, 806-817 (2003).
- Mercer, K. L., Shaw, R. G., Wyse, D. L. Increased germination of diverse crop-wild hybrid sunflower seeds. Ecol Appl. 16, 845-854 (2006).
- Delouche, J. C., Still, T. W., Rapset, M., Lienhard, M. The tetrazolium test for seed viability. Mississippi Sta Uni Ag Exp Sta Techn Bull. 51, 1-63 (1962).
- Association of Official Seed Analysts. Tetrazolium Testing Handbook. , 653 Constitution Avenue NE, Washington, DC 20002, USA. (2010).
- Alexander, H. M., Emry, D. J., Pace, B. A., Kost, M. A., Sparks, K. A., Mercer, K. L. Roles of maternal effects and nuclear genetic composition change across the life cycle of crop-wild hybrids. Am J Bot. 10 (7), 1176-1188 (2014).
- Weiss, A. N., Primer, S. B., Pace, B. A., Mercer, K. L. Maternal effects and embryo genetics: germination and dormancy of crop-wild sunflower hybrids. Seed Sci Res. 23, 241-255 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
