我们描述了一种利用果蝇(Drosophila melanogaster)自愿摄入乙醇作为奖赏状态变化指标的方法,用于诱导其产生奖赏性和非奖赏性体验的实验方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
我们描述了一种利用果蝇(Drosophila melanogaster)测量乙醇自我给药行为的实验方案,以此作为评估奖赏状态变化的间接指标。本方法展示了一种简便途径,用于探查果蝇的奖赏系统,调控与自然奖赏相关的经验,并将乙醇的自主摄入作为奖赏状态改变的衡量指标。该方法为研究在经验介导的内部状态变化中起作用的神经元和基因提供了有效工具。本方案包含两个独立部分:一是使果蝇经历奖赏性和非奖赏性体验,二是通过检测乙醇的自主摄入量来评估获取药物奖赏的动机。这两个部分可分别独立使用:前者可用于诱导经验调控,作为后续下游实验的初始步骤;后者可作为独立的双选择摄食实验。该方案无需复杂的设备,因此可在任何具备基本果蝇培养工具的实验室中实施。
引言
动物通过经验调整行为,使其能够适应环境的变化1。在此过程中,动物将自身的内部生理状态与外部环境的变化相整合,并据此在多种行为中选择其一,以提高生存和繁殖的机会。奖赏系统在进化过程中形成,旨在通过强化对个体和物种生存至关重要的行为,来驱动这些行为的发生——例如摄食或饮水等促进短期生存的行为,以及交配行为或育幼等保障长期生存的行为2。滥用药物等人工化合物也能通过劫持介导自然奖赏的神经通路,影响奖赏系统2。
在过去的二十年中,果蝇Drosophila melanogaster已被确立为研究乙醇对行为影响的分子和神经机制的有前景的模式生物3,4。
此前,我们已鉴定出果蝇中一类表达神经肽的神经元(NPF/NPF受体(R)神经元),这类神经元能够将自然奖赏(如交配经历)与获取药物奖赏的动机联系起来5。NPF的表达水平对交配经历和药物奖赏(如乙醇中毒)均敏感。NPF表达水平的变化会转化为乙醇自我给药行为的改变5,其中高水平NPF降低、低水平NPF则增加果蝇对乙醇的摄取偏好。激活NPF神经元对果蝇具有奖赏效应,表现为果蝇对与激活配对的气味表现出强烈偏好,同时乙醇摄入量也相应减少。更重要的是,激活NPF神经元会干扰果蝇形成乙醇中毒与气味线索之间正向关联的能力。NPF/R系统、奖赏记忆与乙醇摄入之间的因果关系表明,可以通过乙醇自我给药行为来评估奖赏状态的变化5。
在本出版物中,我们展示了一种整合性方法,用于激活果蝇的天然奖赏系统并检测奖赏状态的变化。该方法包括两个独立部分:首先采用训练方案调控与天然奖赏相关的经历,随后通过双选择毛细管饲喂实验(CAFE)评估乙醇的自我摄入,以此作为奖赏状态变化的指标。CAFE实验类似于啮齿类动物药物自我摄入研究中使用的双瓶选择实验,已被证明能够反映果蝇中类似成瘾行为的某些特性6。
访问受限。请登录或开始试用以查看此内容。
方案
注意:实验设计的总体概述:本实验设计包含一种改良的求偶抑制实验方案7-9,其中雄性果蝇在4天内连续经历3轮训练,分别接受具有奖励和无奖励的体验。在体验阶段结束后,果蝇将接受为期3至4天的双选自愿乙醇摄入行为检测。本文所述方案包括多个准备步骤,其中部分步骤可提前完成,并可用于多个实验;而另一些步骤则需在实验开始前适时进行(表1)。
1. 准备步骤
- 准备毛细管饲喂系统
- 加热一支 27 G 针头,并用其在试剂瓶上沿穿刺出小孔(图 1)。
- 使用剃刀刀片将瓶塞横向切成两半。在瓶塞表面标记四个点,形成正方形,用于定位毛细管支架。使用 18 G 针头在瓶塞上打出 4 个孔(图 1b)。
- 使用剃刀刀片切割微量移液器吸头,使其能够牢固地固定 5 µL 玻璃毛细管,这些毛细管作为适配器使用。
- 将 4 个毛细管适配器插入已准备好的瓶塞中。
- 在瓶塞上标记出两个含乙醇和两个不含乙醇的毛细管的位置。
注意:建议在所有试剂瓶中保持这两类毛细管的位置一致。注意孔的大小,过大的孔会导致果蝇从瓶中逃逸。此外,建议将瓶塞较光滑的一面(通常与切割面相对)朝下插入试剂瓶,因为切割过程会产生一些细小松散的纤维,果蝇可能被缠住。 - 准备大量试剂瓶和适配器,用于步骤 2.3 中描述的毛细管饲喂系统(CAFE)实验。
- 准备小型玻璃食物瓶
- 在收集果蝇的前一天(步骤 1.4),将 200 个玻璃瓶放置在微量离心管架上。使用微波炉加热融化果蝇食物(根据玉米糖浆配方,参见材料表)。向每个玻璃瓶中加入 2 mL 果蝇食物(尽量避免将食物沾到瓶壁上)。待食物凝固后,用塑料薄膜覆盖瓶口。
注意:含食物的玻璃瓶可在 4 °C 下保存数周。 - 在收集果蝇当天,将瓶子从冰箱中取出,并在用于饲养果蝇前使其恢复至室温(RT)。
注意:如果食物瓶已存放数周,请确保食物仍保持完整且未从瓶壁脱落,否则果蝇可能被困在食物与玻璃之间的缝隙中。
- 在收集果蝇的前一天(步骤 1.4),将 200 个玻璃瓶放置在微量离心管架上。使用微波炉加热融化果蝇食物(根据玉米糖浆配方,参见材料表)。向每个玻璃瓶中加入 2 mL 果蝇食物(尽量避免将食物沾到瓶壁上)。待食物凝固后,用塑料薄膜覆盖瓶口。
- 配制毛细管饲喂实验的储备食物溶液
- 为配制储备食物溶液(5% 蔗糖和 5% 酵母提取物),将 5.88 g 酵母提取物和 5.88 g 蔗糖溶解于 100 mL 蒸馏水中。
注意:该储备溶液极易被污染,因此建议对其进行高压灭菌(121 °C,30 分钟,不启用干燥程序),并分装为 850 µL 的工作分装液,于 4 °C 保存直至使用。储备液中各成分浓度为 5.88%,在使用前(步骤 2.3)加入 15% 乙醇或水(将 150 µL 加入 850 µL 预制食物溶液中)后,最终浓度将达到 5%。
- 为配制储备食物溶液(5% 蔗糖和 5% 酵母提取物),将 5.88 g 酵母提取物和 5.88 g 蔗糖溶解于 100 mL 蒸馏水中。
- 收集实验用果蝇
- 使用 CO2 垫收集 200 只未经处理的雄性果蝇。
注意:可使用任何与实验问题相关的实验室品系。在羽化高峰期,可从五瓶果蝇中轻松收集到 250 只果蝇。收集时需特别注意选择刚羽化的果蝇(处女果蝇特征:体色鲜亮,腹部带有粪便斑点)。实验用果蝇应在含食物的小型玻璃瓶中单独饲养,并培养至 3–4 日龄后再用于实验。 - 使用软塞封闭瓶子。
注意:在训练阶段,当使用口吸器在经历期将雌性果蝇移入或移出瓶子时,这些软塞将非常有用。
- 使用 CO2 垫收集 200 只未经处理的雄性果蝇。
- 收集训练用果蝇
注意:所有收集的果蝇应置于 25 °C、70% 相对湿度(RH)的 12 h/12 h 光照/黑暗循环培养箱中。12 h/12 h 的光暗循环可根据需要设定起始时间。- 处女雌性训练用果蝇
- 从野生型(WT)品系或处女果蝇筛选品系中收集 500 只处女雌性训练用果蝇,作为具有接受交配行为的雌性。将雌性果蝇以每瓶 25 只的密度饲养于常规大小的食物瓶中,并培养至 3–4 日龄后再用于实验。
- 交配后雌性训练用果蝇
- 从野生型(WT)品系或处女果蝇筛选品系中收集 300 只处女雌性果蝇,用于训练前的交配(步骤 1.6.1)。
注意:雌性果蝇以每瓶 10 只的密度饲养于常规大小的食物瓶中,并培养至 3–4 日龄后再用于实验。
- 从野生型(WT)品系或处女果蝇筛选品系中收集 300 只处女雌性果蝇,用于训练前的交配(步骤 1.6.1)。
- 用于产生交配后雌性训练用果蝇的雄性果蝇
- 收集 150 只雄性果蝇(不必须为处女果蝇)。
注意:雄性果蝇以每瓶 15 只的密度饲养于常规大小的食物瓶中,并培养至 3–4 日龄后,与处女雌性果蝇配对以产生交配后的训练用雌性果蝇。
- 收集 150 只雄性果蝇(不必须为处女果蝇)。
- 处女雌性训练用果蝇
- 产生交配后雌性训练用果蝇
- 为获得用于训练的交配后雌性果蝇,可在训练阶段前 16–18 小时(步骤 2.1)10,将每组 10 只处女雌性果蝇与 15 只雄性果蝇配对,方法是将装有雄性果蝇的瓶子倒扣入装有雌性果蝇的瓶子中。
注意:此操作通常应在训练当天的前一晚进行。雄性与雌性果蝇 1.5:1 的比例可确保所有雌性均完成交配。 - 在实验当天,使用口吸器将雄性果蝇从瓶中吸出,从而将交配后的雌性与雄性分离。该操作应在每次训练日开始前立即进行。
- 为获得用于训练的交配后雌性果蝇,可在训练阶段前 16–18 小时(步骤 2.1)10,将每组 10 只处女雌性果蝇与 15 只雄性果蝇配对,方法是将装有雄性果蝇的瓶子倒扣入装有雌性果蝇的瓶子中。
2. 实验步骤
- 设置实验阶段
- 尽可能在培养箱的光照阶段开始时启动实验。将训练用雌性果蝇(包括处女蝇和交配过的雌蝇)放入行为观察室中。
注意:建议在行为实验箱或任何安静且隐蔽的环境中进行实验, 25 °C 以及60-65%的相对湿度(RH)。保持湿度在50%以上非常重要,因为求偶和交配行为依赖于信息素感知,而信息素感知已知对湿度敏感。
- 尽可能在培养箱的光照阶段开始时启动实验。将训练用雌性果蝇(包括处女蝇和交配过的雌蝇)放入行为观察室中。
- 让雄性果蝇经历奖励性和非奖励性体验
- 将装有单只雄蝇的玻璃小瓶放置在微量离心管架上,沿管架边缘排列小瓶。
注意:这种设置使实验者能够方便地观察发生交配的果蝇对,而无需将试管从架子上取出。 - 按照步骤2.2.1所述,准备两组各100个玻璃小瓶,每瓶含一只雄蝇,分别放置于不同的架子上,用于经历奖励性和非奖励性交配体验的雄蝇即 拒绝交配和已交配
- 吸出训练用雌蝇,加入到各含有雄蝇的试管中。设置计时器为1小时。从被拒绝组开始,向每支试管中加入一只交配过的雌蝇;随后处理待交配的雄蝇组,向每支试管中加入一只未交配雌蝇。
- 密切观察交配过程,确保与处女雌蝇接触的雄蝇在1小时内成功交配,而与已交配雌蝇接触的雄蝇不发生交配。为持续监测被拒绝交配的雄蝇群体1小时,另设置一个15分钟的计时器,每隔15分钟观察一次雄蝇行为。
- 淘汰在第一次训练阶段结束时成功交配的拒绝组雄性,以及未成功交配的交配组雄性。
- 用移液器将先前交配过的雌性训练果蝇吸出,转移至普通果蝇培养管中,留待下一次条件化训练使用。随后,轻柔地将雌性果蝇从已交配的雄性群体中吸出。
- 让果蝇静置1 h。
- 重复步骤 2.2.3 至 2.2.7 两次。
- 按照步骤 2.2.3 - 2.2.8 每天重复训练,持续 3 天。
- 将装有单只雄蝇的玻璃小瓶放置在微量离心管架上,沿管架边缘排列小瓶。
- 记录摄食量(CAFE)
- 在最后一次条件化训练结束时(第四天),吸出单独饲养的雄蝇,并将其分组转移至毛细管饲喂小瓶中。插入果蝇时,先用软塞暂时封住毛细管饲喂小瓶,待所有果蝇放入后,迅速更换为预制的毛细管饲喂塞。将每个实验组的6–8只果蝇分装至一个小瓶中,每种实验条件至少制备8个小瓶。
- 轻轻向插塞顶部加入5 mL水以润湿插塞。加水时需小心,避免液体溢出至小瓶中。每个小瓶中加入等量的水。
注意:此步骤旨在减少毛细管中的蒸发,因此在实验剩余时间内需每天重复一次。根据相对湿度的不同,后续几天可能需要减少添加到塞子中的水量。 - 通过向储备食物分装液中分别加入乙醇或水,制备两种独立的食物溶液,使终浓度为15%。
- 为了将毛细管充满两种食物溶液,需制备 5 µL 液体食物滴在实验室试纸条上,使溶液充满毛细管,直至达到 5 µL 标记。务必使用毛细管靠近末端的透明部分 5 µL 黑色标记线
注意:可将6至8个毛细管接头连接在一起,同时填充多个毛细管,并将其用作固定毛细管的插件。 - 轻轻敲击毛细管,使其在石蜡条上定位,确保食物溶液液面恰好对准黑线标记。将每根毛细管末端浸入少量矿物油液滴中,以密封毛细管。此步骤可最大限度减少食物溶液的潜在蒸发。
- 将两根含乙醇的毛细管和两根不含乙醇的毛细管分别插入塞子的4个接口/支架中,直至毛细管暴露端刚刚从瓶内露出(距塞子表面1 mm或更短)。
注意:将毛细管开口保持在靠近湿润塞的位置可减少蒸发,并便于果蝇取食,因为果蝇通常停在塞子上,并沿暴露的毛细管向下爬行以摄取食物。 - 除了装有实验果蝇的管子外,还需准备一个不含果蝇的空白管。该对照用于评估自然蒸发情况。
注意:尽量保持毛细管开口相对于塞子的位置相对一致,因为位置差异可能导致蒸发量不同,从而产生误导性的消耗数据。实验过程中应维持足够的湿度,并将毛细管开口尽可能靠近湿润塞,因为低湿度以及与湿润塞距离过大会导致不受控的蒸发。 - 使用直尺测量每根毛细管中液面相对于黑色标记线的相对位置(单位:mm),并记录这些数值。
注意:若液面恰好位于黑线处,读数应为零;若液面在黑线上方或下方,则读数分别为正值或负值。液体的初始液面位置用于设定最终耗氧量(O/N)数值的参考点。 - 将小瓶放回培养箱中孵育24小时。在整个实验过程中,于固定时间更换毛细管。
- 从样品瓶中轻轻取出毛细管,并测量液体液面相对于黑色标记线的高度。
- 仔细检查模拟小瓶中的液位。
注意:如果液面下降超过2 mm,则表明蒸发量较大,消耗量数据不可靠。 - 用2 mL水轻轻润湿塞子,然后插入一套新的毛细管,具体操作如步骤2.3.3 - 2.3.10所述。将小瓶重新放回培养箱中孵育24 h。
- 确定偏好
- 通过从初始液面高度减去终点时的最终液面高度,计算每根毛细管的总消耗量。
- 将两根毛细管中相同食物的数值合并即 不含乙醇的毛细管与含乙醇的毛细管应分开存放。
- 通过从含有乙醇的毛细管消耗量中减去不含乙醇的毛细管消耗量,再除以同一瓶中所有毛细管的总消耗量,计算乙醇偏好值。
- 计算同一实验组所有小瓶的偏好指数的平均值。
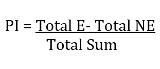
注意:非乙醇1(NE1)、非乙醇2(NE2)、乙醇1(E1)、乙醇2(E2)、总非乙醇量(Total NE)= NE1 + NE2、总乙醇量(Total E)= E1 + E2、总消耗量(Total Sum)= Total NE + Total E,以及乙醇偏好指数(PI)
访问受限。请登录或开始试用以查看此内容。
结果
此前,Devineni 等 结果显示,当果蝇被给予选择摄取含乙醇食物的机会时,它们表现出对含乙醇食物的强烈偏好,而非不含乙醇的食物6图中展示的是我们在检测未经训练方案处理的雄性果蝇对乙醇的先天偏好时获得的一些代表性结果。
收集刚羽化的野生型Canton S雄蝇,饲养至4日龄,检测其在4天内对乙醇的天然摄食偏好(图2)。通过分析乙醇和非乙醇溶液的摄食量发现,果蝇对含15%乙醇的食物表现出显著的摄食偏好,优于不含乙醇的食物(图2)。
通过对比不同的性经历,我们先前已证明,允许多只雄性果蝇群体交配(“交配-群养”)时,其乙醇偏好显著低于被已交配雌性拒绝的单只饲养雄性果蝇(“被拒-单养”)。我们采用了多种对照实验,将饲养环境的影响与交...
访问受限。请登录或开始试用以查看此内容。
讨论
本文基于 Devineni 等6 以及 Shohat-Ophir 等5 之前描述的研究,详细阐述了一种综合方法,用于检测奖赏寻求行为的变化。本实验方案的第一部分采用不同类型的性互动作为经验输入,第二部分则使用双选择摄食实验来评估该经验对乙醇摄取偏好的影响。
如 Devineni 等人et al.6 所示,果蝇对乙醇的自我摄入是一种稳定的行为,其特征最初表现为较低且多变的偏好,随后偏好逐渐增强并趋于一致。这种逐渐发展的偏好可能反映了一个学习过程,即果蝇学会将乙醇的药理作用与其所在位置相关联,尽管乙醇具有令人不悦的味道6,并且在初次接触乙醇蒸气时已知会引发厌恶反应11。若每天改变含有乙醇的毛细管的位置,则果蝇的偏好水平将保持恒定,这有力地证明了学习在其中所起的作用,并提示果蝇可能在偏好的毛细管附近留下了化学线索12。此外,不同实验之间偏好曲线的形状、斜率和起始点可能略有差异,但经历奖赏性与非奖赏性体验的...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢 U. Heberlein 和 A. Devineni 长期以来的讨论和技术指导。同时感谢 Shohat-Ophir 实验室成员 A. Benzur、L. Kazaz 和 O. Shalom 在方法演示过程中提供的帮助。特别感谢 Eliezer Costi 为本实验室建立了果蝇系统。本研究得到了以色列科学基金会(384/14)和玛丽·居里职业整合基金(CIG 631127)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 聚苯乙烯 25 x 95 mm 样品瓶 | FlyStuff | 32-109 | |
| 窄口塑料样品瓶塞 | FlyStuff | 42-102 | |
| 一次性无菌针头 18 G 和 27 G | 可从任意公司采购 | 1.20 X 38 mm (18 G x 1 1/2") , 0.40 X 13 mm (27 G x 1/2") | |
| 10 x 75 mm 硼硅酸盐玻璃一次性培养管 | kimble chase | 73500-1075 | |
| 5 μL 刻度移液管 | VWR | 53432-706 | 白色编码,容量为 5 μL |
| 矿物油 | Sigma-Aldrich | M5904 | |
| 蔗糖,分子生物学级 | CALBIOCHEM | 573113 | |
| 微生物学用酵母提取物粉末 | 可从任意公司采购 | ||
| 乙醇 | Sigma-Aldrich | 32221 | |
| 标准移液器吸头(微量移液器) | ThermScientific | T114R-Q | 体积:0.1 - 20 μL(超微量) |
| IDENTI-PLUGS(泡沫管塞) | Jaece | L800-A | 适用于 6 - 13 mm 开口 |
| IDENTI-PLUGS(泡沫管塞) | Jaece | L800-D | 适用于 35 - 45 mm 开口 |
| virginator 果蝇品系 | bloomington 果蝇品系中心 | #24638 | |
| 窄口样品瓶,托盘包装(PS) | Genesee Scientific Corporation | # 32-109BR | |
| 果蝇培养基配方与方法 | Bloomington 果蝇品系中心 | http://flystocks.bio.indiana.edu/Fly_Work/media-recipes/molassesfood.htm | |
| 丙酸 | Sigma-Aldrich | P5561 | |
| 磷酸 | Sigma-Aldrich | W290017 | |
| 对羟基苯甲酸甲酯 | Sigma-Aldrich | H3647 | |
| 琼脂 | 可从任意公司采购 | ||
| 玉米粉 | 可从任意公司采购 | ||
| Grandma's 糖蜜 | B&G Foods, Inc | 未标明 | |
| 速溶干酵母 | 可从任意公司采购 |
参考文献
- Robinson, G. E., Fernald, R. D., Clayton, D. F. Genes and social behavior. Science. 322, 896-900 (2008).
- Koob, G. F. Neurobiological substrates for the dark side of compulsivity in addiction. Neuropharmacol. 56, Suppl 1 18-31 (2009).
- Kaun, K. R., Devineni, A. V., Heberlein, U. Drosophila melanogaster as a model to study drug addiction. Hum Genet. 131, 959-975 (2012).
- Devineni, A. V., Heberlein, U. Addiction-like behavior in Drosophila. Commun Integr Biol. 3, 357-359 (2010).
- Shohat-Ophir, G., Kaun, K. R., Azanchi, R., Mohammed, H., Heberlein, U. Sexual deprivation increases ethanol intake in Drosophila. Science. 335, 1351-1355 (2012).
- Devineni, A. V., Heberlein, U. Preferential ethanol consumption in Drosophila models features of addiction. Curr Biol : CB. 19, 2126-2132 (2009).
- McBride, S. M., et al. Mushroom body ablation impairs short-term memory and long-term memory of courtship conditioning in Drosophila melanogaster. Neuron. 24, 967-977 (1999).
- Ejima, A., Smith, B. P., Lucas, C., Levine, J. D., Griffith, L. C. Sequential learning of pheromonal cues modulates memory consolidation in trainer-specific associative courtship conditioning. Curr Biol. 15, 194-206 (2005).
- Ejima, A., et al. Generalization of courtship learning in Drosophila is mediated by cis-vaccenyl acetate. Curr Biol. 17, 599-605 (2007).
- Keleman, K., Kruttner, S., Alenius, M., Dickson, B. J. Function of the Drosophila CPEB protein Orb2 in long-term courtship memory. Nat Neurosci. 10, 1587-1593 (2007).
- Kaun, K. R., Azanchi, R., Maung, Z., Hirsh, J., Heberlein, U. A Drosophila model for alcohol reward. Nat Neurosci. 14, 612-619 (2011).
- Xu, S., et al. The propensity for consuming ethanol in Drosophila requires rutabaga adenylyl cyclase expression within mushroom body neurons. Genes Brain Behav. 11, 727-739 (2012).
- Devineni, A. V., Heberlein, U. The evolution of Drosophila melanogaster as a model for alcohol research. Annu Rev Neurosci. 36, 121-138 (2013).
- Ro, J., Harvanek, Z. M., Pletcher, S. D. FLIC: high-throughput, continuous analysis of feeding behaviors in Drosophila. PloS one. 9, 101107(2014).
- Itskov, P. M., et al. Automated monitoring and quantitative analysis of feeding behaviour in Drosophila. Nat Commun. 5, 4560(2014).
- Yapici, N., Cohn, R., Schusterreiter, C., Ruta, V., Vosshall, L. B. A Taste Circuit that Regulates Ingestion by Integrating Food and Hunger Signals. Cell. 165, 715-729 (2016).
- Peru, Y. C., et al. Long-lasting, experience-dependent alcohol preference in Drosophila. Addict Biol. 19, 392-401 (2014).
- Dus, M., et al. Nutrient Sensor in the Brain Directs the Action of the Brain-Gut Axis in Drosophila. Neuron. 87, 139-151 (2015).
- Anderson, D. J., Adolphs, R. A framework for studying emotions across species. Cell. 157, 187-200 (2014).
- Gibson, W. T., et al. Behavioral responses to a repetitive visual threat stimulus express a persistent state of defensive arousal in Drosophila. Curr Biol. 25, 1401-1415 (2015).
访问受限。请登录或开始试用以查看此内容。
重印与许可
