胰岛素诱导的血管舒张可调节肌肉灌注,并增加血液与组织间质之间溶质交换可用的微血管表面积(微血管招募)。本文介绍了结合活体显微镜与对比增强超声技术,以同时评估胰岛素在较大血管和微循环中的作用。 体内
本文内容
摘要
摘要
已有研究表明,胰岛素的血管作用有助于调节胰岛素敏感性。胰岛素对肌肉灌注的影响可调控餐后营养物质和激素向胰岛素敏感组织的输送。本文介绍一种结合活体显微镜(IVM)与对比增强超声(CEUS)的技术,用于同时可视化小鼠后肢内收肌室的肌肉阻力动脉及微循环灌注情况in vivo。同时评估胰岛素在血管树多个层次的作用,对于研究胰岛素多种血管活性效应与肌肉灌注之间的关系具有重要意义。本研究的实验在小鼠中进行。首先,插入尾静脉导管,用于输注麻醉剂、血管活性化合物以及超声造影剂(脂质包裹的微泡)。其次,在腹股沟区域做一小切口,以暴露内收肌室的动脉系统。然后将超声探头置于对侧后肢上部,以获得肌肉的横断面图像。为评估基础状态参数,先测量动脉直径,随后以恒定速率输注微泡,以估算肌肉血流量和微血管血容量(MBV)。在进行高胰岛素-正常血糖钳夹实验前后及期间应用该联合技术,可评估胰岛素诱导的动脉直径变化、微血管肌肉灌注以及全身胰岛素敏感性的改变。此外,还可量化微循环与阻力动脉对胰岛素反应之间的时间关系。该方法还支持对小鼠进行纵向追踪观察,因而成为研究血管功能及全身胰岛素敏感性变化的有力工具。
引言
当血糖水平升高时,胰腺会将胰岛素分泌到血液中,胰岛素通过阻力动脉和毛细血管迅速分布至其靶组织,例如骨骼肌。骨骼肌负责约80%的餐后葡萄糖摄取1。已证明,胰岛素向骨骼肌间质的递送是胰岛素促进葡萄糖代谢利用这一代谢作用的限速步骤2,3,4。在10至15分钟内,胰岛素可增加毛细血管血容量(即微血管募集),这一效应发生在总血流量增加之前5,6。微血管募集扩大了可用于营养物质(以及胰岛素)交换的内皮表面积7,8。胰岛素介导的微血管募集先于骨骼肌葡萄糖摄取的变化,并且与其独立相关8,9。胰岛素对血管系统的作用被称为“血管胰岛素敏感性”。
研究表明,肥胖型Zucker大鼠的胰岛素介导的微血管招募及胰岛素诱导的血管舒张功能均受到损害10,11。此外,毛细血管密度降低的瘦型小鼠也表现出肌肉胰岛素抵抗12。在Kubota et al. 具有影响力的研究中显示,内皮细胞中胰岛素信号传导受损会导致胰岛素诱导的微血管 招募减少,从而使骨骼肌的葡萄糖摄取降低约40%13。这些微血管功能的异常不仅出现在肌肉组织中,也存在于心脏、视网膜和肾脏等多种其他组织和器官中14,15,16。这些实例及其他研究17,18,19,20表明,胰岛素的血管效应是胰岛素抵抗及其并发症的(病理)生理学中的重要机制。
尽管有大量证据表明胰岛素可增加骨骼肌的微血管血容量(MBV)5,6,但这一过程的具体机制尚未完全阐明9。在血管系统的不同层次上,内皮依赖性血管舒张在血管胰岛素敏感性的多个方面起着关键作用21,22,23。血管胰岛素敏感性可表现为胰岛素诱导的阻力动脉舒张,以及前毛细血管小动脉的舒张,从而增加灌注的微血管交换表面积7,24,25。
活体显微镜(IVM)已应用于多种组织准备,包括小鼠背部的皮肤褶夹26、小鼠和大鼠的肠系膜27、小鼠肢体缺血模型28以及仓鼠颊囊29。增强对比超声成像(CEUS)是另一种可用于评估心脏30及骨骼肌31微循环的成像技术。该技术利用惰性气体填充的微泡,其流变学行为类似于红细胞,并完全保留在血管腔内。这些微泡通过静脉以恒定速率输注,以达到稳态。随后,可使用高能超声波破坏微泡。微泡在感兴趣区域(ROI)的再充盈速度代表血流速度(MFV),而对比图像的总信号强度则代表微泡体积(MBV)。CEUS可重复进行(亦可用于人类),并推动了对胰岛素抵抗状态下血管功能障碍的理解(参见Barrett et al.32)。
在本研究中,我们描述了一种通过同时使用体内显微镜(IVM)和对比增强超声(CEUS)来研究肌肉灌注调控的新技术。本文重点探讨胰岛素在小鼠后肢内收肌区域的血管作用。该区域是小鼠体内最大的骨骼肌群之一,便于对代表性肌肉的局部葡萄糖摄取进行研究。该区域非常适合进行IVM观察,因为其动脉可通过标准化的手术方法方便地制备和可视化28。此外,我们课题组及其他研究团队已证实,该区域也可应用CEUS技术33,34。
联合使用体内显微技术(IVM)和对比增强超声技术(CEUS)的一个优势在于,能够在同一肌肉群中分别评估胰岛素对较大微动脉(供血动脉或阻力动脉)以及微循环(毛细血管床)的作用。此外,同时应用这两种方法有助于了解胰岛素在阻力动脉和微循环水平上的时间作用特征。这种联合的IVM与CEUS技术也可应用于其他血管生物学研究领域。例如,可通过基因敲除模型研究各种蛋白质以及某些影响内皮功能的病理生理状态所起的作用。此外,这两种技术可在同一只小鼠的多个时间点重复使用,从而减少研究所需的时间和成本。
方案
所有动物实验均已获得当地动物护理与伦理委员会的批准。从小鼠麻醉诱导开始直至高胰岛素-正常血糖钳夹实验结束,整个实验流程大约需要2小时。
1. 显微外科准备
- 诱导麻醉并同时给予镇痛 一只体重为20–25 g的雄性小鼠,在禁食14小时或过夜后,通过腹腔注射给予芬太尼(0.31 mg/kg)、咪达唑仑(6.25 mg/kg)和乙酰丙嗪(6.25 mg/kg)(FMA麻醉),然后将其置于可调节肛温的恒温加热垫上,以维持体温在37 °C。
- 使用基于酒精的溶液多次对操作台和设备进行消毒。
- 将27 G针头连接至一段10 cm长的聚乙烯管(PE-20),并将该管连接至四通接头。将针头插入尾静脉,并使用组织粘合胶固定。此导管将用于微泡、胰岛素、葡萄糖和麻醉剂的输注。
注意:在插管过程中,使用含肝素(5 U/mL)的无菌生理盐水冲洗尾静脉(约 10 µL),可降低导管堵塞的可能性。 - 在整个手术过程和实验方案中,通过持续静脉输注FMA麻醉剂来维持麻醉状态 通过尾静脉插管,以33.75 µL/kg/min的速率注射。
- 将小鼠仰卧放置,使用耐热胶带固定四肢,暴露大腿上部区域。通过轻微外旋髋关节(后肢足部朝上)并使膝关节呈40–60°角,以标准化大腿内收肌群区域的肌肉拉伸程度。
- 双侧腹股沟和大腿上部区域使用脱毛膏去除毛发。用湿润的棉签收集所有松散的毛发。
- 将小鼠置于体视显微镜下,在10倍至16倍放大倍数下进行以下手术操作。
- 使用剪刀在腹股沟韧带平行方向上做一条2 cm的切口,位置位于腹部曲率外侧图1)。使用动脉夹在切口远端的远侧施加牵拉力(图1D这将有助于根据需要调整窗口,并有助于固定石蜡油(见步骤 1.12)。
- 将脂肪组织从腹壁分离。为避免出血,应轻柔地将脂肪垫从腹壁剥离,而非直接在脂肪垫中进行解剖。向远端轻柔牵拉脂肪垫有助于分离过程。图1C).
- 识别股动脉,并沿其向下追踪至第一个主要分支(腹壁下动脉和股薄肌动脉)图2)。股动脉在大收肌表面发出的第一个主要分支是股薄肌动脉,随后该动脉走行至股薄肌深面。股薄肌动脉将用于体内显微镜成像(IVM)。
- 辨认覆盖在肌肉和血管上的透明深筋膜。使用锐头镊子向上提起筋膜,并用显微剪刀将其剪开。
- 用一滴(200 µL)医用液体石蜡(室温或预热至 37 °C)覆盖暴露的肌肉,以防止制备的组织干燥。确保油滴不会泄漏。使用动脉夹调整切口处的皮肤褶皱,形成一个小腔以容纳浸润血管的石蜡油。
- 将小鼠置于已预先校准的显微镜(16倍光学放大)下,调整位置使股薄肌动脉在计算机屏幕上呈垂直方向。将显微镜连接至配备摄像头和计算机分析系统的装置,该系统能够从图像数据集中提取血管直径。血管直径定义为血管管腔两侧内壁之间的距离。建议对动脉直径进行持续监测与测量。
- 将光源置于距离后肢足够远的位置(至少20 cm),以减少光线引起的头部热传导。
- 将预热的超声传导凝胶涂抹于对侧后肢近端。将超声探头垂直置于股骨长轴方向。
- 仔细调整超声探头的角度和方向,以获得内收肌群的横截面图像。注意保持超声探头相对于小鼠的位置稳定,以确保在基线和高胰岛素血症测量时处于相同的成像平面。
- 让小鼠稳定30分钟。在记录基线直径前,股薄肌动脉的直径应稳定10分钟。
2. 基线与高胰岛素血症状态下的测量
- 确保计算机程序已保存用于体内显微镜检查的股薄肌动脉基线直径。
- 按照所述方法预先制备微泡35 使用库尔特计数器计数,调整浓度至 2.5 × 10⁹ 实验前每毫升的气泡数。
- 由于微泡只能在超声设备的造影模式下观察到,因此需控制影响图像及所采集造影数据的参数(见2.3.1),并在数据采集过程中保持这些参数的一致性。
- 在超声设备上使用以下设置:对比增益设为35分贝;时间增益补偿设为关闭;线密度设为高;焦点区域数量设为宽;发射功率设为4%;发射波束宽度设为标准;SV门设为4;灵敏度设为1;帧平均(Persistence)设为关闭。将焦点区域的位置对准感兴趣区域的中心。
- 保存一段短片段(5 秒)。该片段将用于计算背景信号。
- 用手轻轻振荡含有微泡的小瓶,使其形成均匀的悬液。通过尾静脉插管以每分钟5 µL的速度开始输注微泡。将输注管置于振荡涡旋仪(每分钟200次)上,以维持微泡的均匀悬液状态。
- 微泡持续输注5分钟,以达到稳态水平。在微泡输注开始后5分钟和10分钟时,使用超声设备上的微泡破坏功能(MBD)获取微泡的时间-强度曲线。图3A取这两次测量信号的平均值,以获得基线灌注数据。
- 在获得基线数据后,按照所述方法开始高胰岛素-正葡萄糖钳夹实验34使用尾部导管(在1.3步骤中置入)给予胰岛素和葡萄糖(以及麻醉剂)。
- 简言之,通过给予200 mU/kg胰岛素推注,随后持续输注胰岛素(7.5 mU/kg/min)60分钟,诱导高胰岛素血症状态。采用可调节的20% D-葡萄糖输注以维持正常血糖水平。
- 使用血糖监测仪每5分钟从尾静脉检测一次血糖,并通过调整可变的葡萄糖输注速率使血糖维持在5 mM。通过计算最后30分钟内的平均葡萄糖输注速率来确定胰岛素敏感性。
- 确保使用计算机程序在高胰岛素-正常血糖钳夹开始后的预定时间点(例如 10、30 和 60 分钟)记录股薄肌动脉的直径。
- 在胰岛素钳夹25分钟和/或55分钟后,开始第二次(高胰岛素血症)CEUS测量,以分别记录30分钟和/或60分钟时的MBV。操作步骤同2.4和2.5所述。断开四通连接器上的麻醉端口,用于注入微泡造影剂;微泡注射结束后,重新连接麻醉管路。
- 在完成体外微血管成像(IVM)和胰岛素输注开始后60分钟的对比增强超声(CEUS)测量后,通过心脏穿刺法采集小鼠血液用于后续分析。此操作同时可处死小鼠。仔细分离股薄肌动脉和股动脉,并将其保存以用于后续所需的实验(用于 例如,蛋白质印迹,免疫组织化学, 离体 压力血管造影实验36,37,38).
3. 离线分析
注意:IVM 和 CEUS 测量结果的分析应由经过设盲的研究人员离线进行。CEUS 可通过使用 MBD 功能以高强度超声波暂时破坏微泡,从而实现微循环与较大血管的区分。由于微泡在相应血管中的流速不同,较大血管内的信号(以任意单位(a.u)测量)恢复速度比微循环中的信号更快。
- 使用离线工作站或超声设备上的软件进行分析。
- 绘制感兴趣区域(ROI)以包含微循环;另绘制一个独立的ROI以包含较大的股血管(图3A)。
- 利用软件内置的ROI复制功能,为背景、基线和高胰岛素血症状态下的微循环和大血管ROI分别复制相应的区域。
- 从基线和高胰岛素血症状态的强度信号中减去背景测量的强度信号。
- 将微循环的强度信号除以股血管的强度信号,即可比较基线与高胰岛素血症状态下的微血管血容量(MBV)。
结果
高胰岛素-正常血糖钳夹实验(胰岛素敏感性)期间的葡萄糖输注速率为 180.21 ± 19.81 µmol/kg/min。在内收肌室局部应用石蜡油以稳定血管,未引起动脉平均基础直径的改变(73.6 ± 29.0 µm 与 68.8 ± 17.9 µm 相比;p = 0.58),但有助于减少所测动物的变异程度(图 4A)。胰岛素持续性地增加了股薄动脉的直径(60 分钟时增加 14.58 ± 6.2%;N = 9),该变化与生理盐水输注引起的直径变化(-6.3 ± 4.9%;N = 6)相比具有显著差异(p < 0.0001)。胰岛素诱导的血管舒张在 10 分钟后即可明显观察到(10.09 ± 5.1%;p = 0.002),并在 30 分钟后达到其最大舒张能力的约 95%。
通过CEUS检测,与生理盐水输注组(-10.63 ± 27.87%,N = 6)相比,胰岛素持续使肌肉微血管血容量(MBV)增加了33.5%(± 31.04%,N = 7;p = 0.0009)(图5A、图5B)。所展示的数据为肌肉MBV的信号强度除以股血管信号强度的比值,该处理方式可降低不同测量之间及不同小鼠之间的实验变异(数据未显示)。股血管中的信号强度与循环中微泡浓度呈线性关系(图3C)。对股血管信号进行校正,理论上可消除所用微泡浓度差异带来的影响(图3D)。本节数据以均值 ± 标准差形式表示。
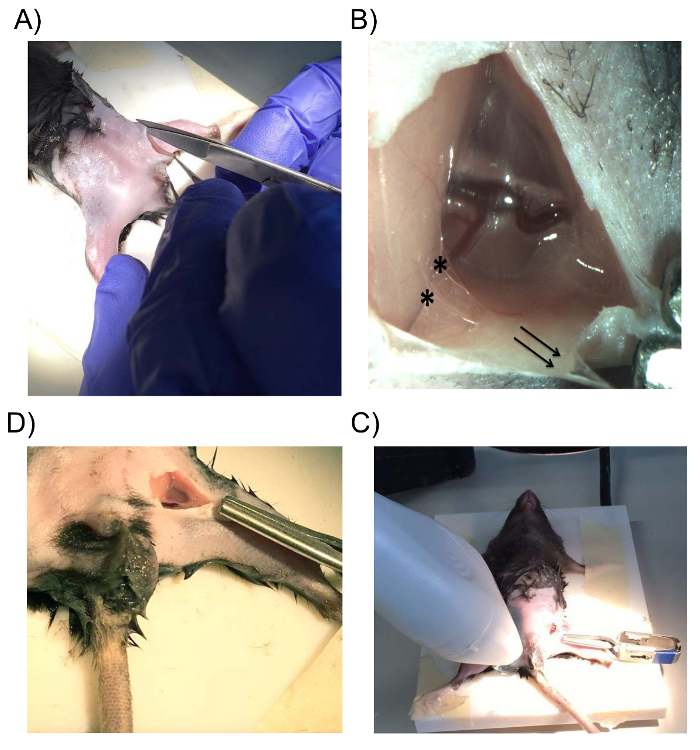
图1: 后肢内收肌间隔的手术暴露。(A)在腹股沟处做切口,方向与腹股沟韧带平行。(B)向远端方向轻柔牵拉脂肪垫(黑色箭头),可显露脂肪垫与腹壁之间的结缔组织(*)。(C)可使用血管夹调整切口的皮肤皱褶,形成一个小腔隙以容纳浸润血管的石蜡油。(D)在使用校准显微镜观察制备好的股薄动脉后,将超声探头置于对侧后肢上部。请点击此处查看此图的放大版本。
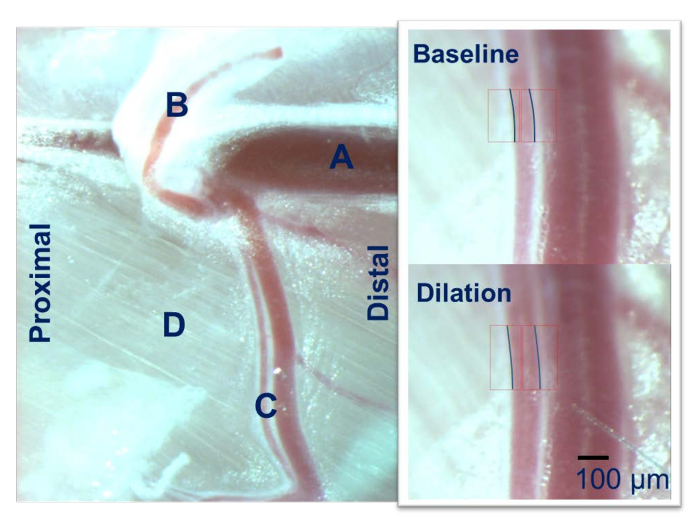
图 2: 小鼠后肢的活体显微观察。 股动脉(A)发出腹下腹壁动脉(B)和股薄动脉(C),后者走行于内收肌群(D)上方。股薄动脉用于通过校准显微镜进行活体显微观察(IVM)。请点击此处查看该图的放大版本。
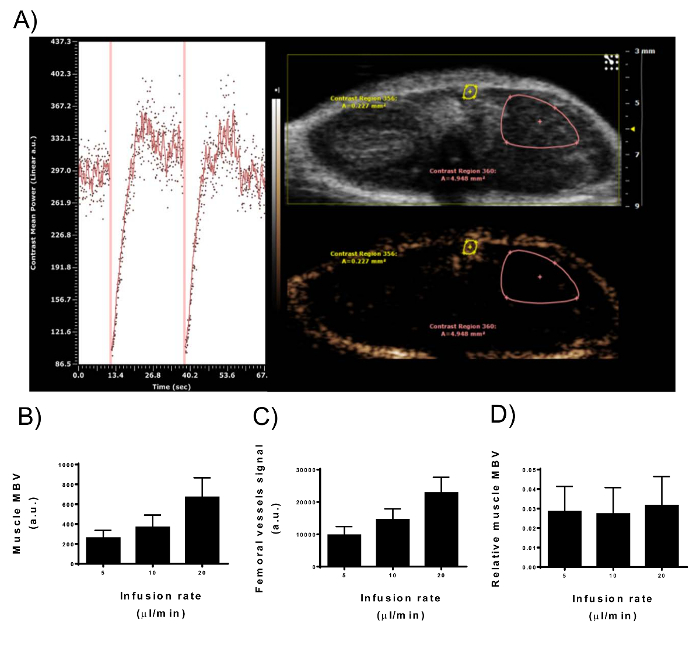
图 3: 增强对比超声在肌肉微血管血容量及股血管中的信号强度。 (A)在雄性小鼠后肢上部持续输注微泡期间,数字成像平台的非线性对比成像模式视图。右侧面板:绘制两个感兴趣区域(ROI),分别代表肌肉微血管血容量(MBV)和股血管。ROI 仅包含内收肌室的浅层部分,因为信号强度随深度增加而减弱。左侧面板:来自肌肉 MBV ROI 的时间-强度曲线。垂直线表示通过高能超声波破坏微泡(MBD)。MBD 后,成像平面内无对比剂,随后微泡逐渐重新填充。10–15 秒后,对比增强达到峰值。(B–D)达到稳态信号后,将浓度为 2.5 × 10⁹ 个微泡/mL 的输注速率加倍(5、10、20 µL/min)。肌肉 MBV(B)和股血管(C)的信号强度随循环中微泡浓度的加倍而同步变化。(D)通过股血管信号对肌肉 MBV 进行校正,可消除因不同微泡浓度引起的信号强度变异性(N = 9;误差棒表示标准差)。请点击此处查看该图的放大版本。
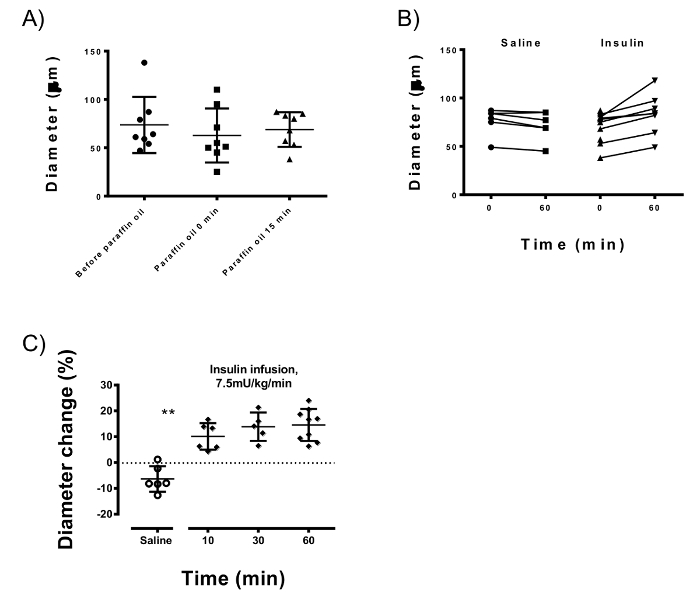
图 4: 股薄动脉的活体显微测量。 (A)石蜡油减少了不同动物股薄动脉的直径变异(未使用石蜡油时为 29.0 µm,使用后为 17.9 µm),同时保持平均基础直径稳定(73.6 µm 对比 68.8 µm;p = 0.58)。 (B)基础状态及胰岛素或生理盐水输注 60 分钟后的动脉直径。与生理盐水输注相比,胰岛素输注 60 分钟后 consistently 扩张股薄动脉(p <0.0001)。 (C)胰岛素诱导的血管扩张在输注开始后 10 分钟出现(p = 0.002),并在 30 分钟时达到最大扩张的 95%。误差线表示标准差;统计学分析采用非配对 Student's T 检验。 请点击此处查看该图的放大版本。
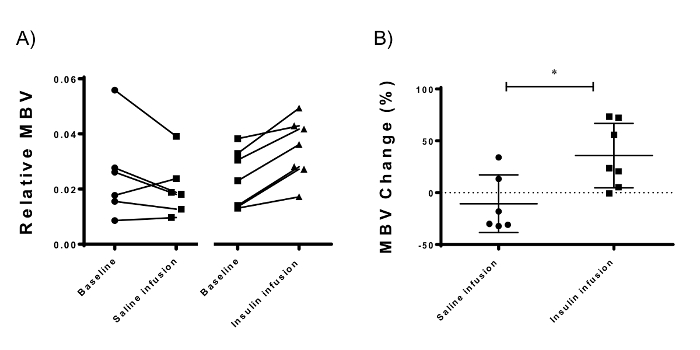
图 5: 利用小鼠后肢内收肌间隔的对比增强超声造影测量微血管血容量。 (A)胰岛素输注开始后 30 分钟,微血管血容量(MBV)出现持续性升高。(B)高胰岛素血症状态与基线状态之间的测量差值(MBV 变化)被定义为胰岛素介导的微血管招募。与生理盐水输注组(-10.63 ± 27.87%,N = 6)相比,胰岛素诱导的微血管招募为 33.5%(± 31.04%,p = 0.016;N = 7)。误差线表示标准差;统计学分析采用非配对 Student's T 检验。请点击此处查看该图的放大版本。
讨论
我们已开发出一种技术,可同时利用体内显微镜(IVM)评估胰岛素对大动脉的血管作用,并利用对比增强超声(CEUS)评估胰岛素对骨骼肌微循环的作用。实现成功且可靠测量的关键步骤包括:1)正确暴露股薄肌动脉而不引起出血;2)防止浸泡动脉的石蜡油泄漏;3)建立通畅的静脉通路(尾静脉插管),用于输注血管活性物质(胰岛素)和对比剂(微泡)。
在肥胖和胰岛素抵抗的背景下,肌肉微血管功能障碍的研究正受到越来越多的关注14,25,39,40。肥胖和胰岛素抵抗对血管功能的不利影响体现在血管树的不同层次上。因此,需要采用不同的方法来评估这些变化。在同一小鼠中联合使用体内显微镜(IVM)和对比增强超声(CEUS)技术,为量化胰岛素在血管系统不同层次的作用提供了强有力的工具。IVM 可实现对阻力动脉的直接可视化和定量分析,而 CEUS 则可用于评估胰岛素诱导的肌肉灌注变化。
研究内收肌室具有多个优势。动脉易于接触,且由于切口位置表浅,实验结束后可用5.0号可吸收无菌缝线关闭皮肤切口。实验完成后,动物通过皮下注射0.1 mg/kg剂量的布托啡诺作为镇痛剂,并置于温暖环境中恢复。小鼠对该操作耐受性良好,在研究的35只以上动物中,未出现动物死亡或后肢感染的情况。这使得对动物进行纵向随访或研究成为可能。然而,本实验所用动物采用1.8%异氟烷吸入麻醉,氧气流速为0.4 L/min,通过麻醉面罩给药。与异氟烷麻醉41,42不同,FMA麻醉不会干扰外周胰岛素敏感性。未来的研究计划是评估小鼠从FMA麻醉中恢复的情况。
内收肌群的血管隔室同样具有重要研究价值,因为可以借此评估多种介导局部及远端血管效应的血管活性物质。例如,可通过灌流技术28或外科操作在血管周围植入缓释药物的套管43,将这些化合物直接施加于目标组织。此外,股薄肌动脉可被分离出来并在压力血管肌动图仪中进行研究。本研究团队及其他学者已利用压力血管肌动图仪获得了大量实验证据,用于记录胰岛素及其他血管活性物质对这条动脉的离体(ex vivo)作用36,37,38。
使用体内显微技术(IVM)的一个固有局限性在于需要通过手术暴露肌肉,并使用石蜡油稳定血管。目前尚不明确这些操作是否会影响动脉的天然微环境。然而,图3A显示,浸润在石蜡油中的股薄肌动脉其基础直径并未发生显著变化。已有研究证明,矿物油能有效抑制氧气扩散,从而保护组织免受高氧环境的影响44。此外,石蜡油有助于减少动脉基础直径的波动。因此,我们建议使用石蜡油,并让制备的组织静置至少30分钟。值得注意的是,若使用缓冲盐溶液替代石蜡油,或完全不使用油,会导致动脉直径高度不稳定并出现血管收缩(数据未显示)。此外,在实验结束时,我们分离了浸润在石蜡油中的股薄肌动脉,并在体外通过压力肌动图检测其反应性。ex vivo结果显示,这些经石蜡油处理的动脉在胰岛素和乙酰胆碱(一种血管舒张剂)刺激下,其反应性与对照组动脉相似(数据未显示)。一致的胰岛素诱导血管舒张效应明确表明,本研究中描述的IVM实验方案可产生可靠的结果。
在同一小鼠中同时应用这两种技术,可以相互弥补各自的内在局限性:CEUS 能够在未受干扰的肌肉中活体估算微血管血容量(MBV),但无法观察单个血管;而 IVM 能够实现对单个血管的观察,却无法估算 MBV。未来的研究计划是将精索肌的 IVM 显微成像与对侧内收肌的 CEUS 检测相结合。这种改进可同时获得 MBV 的估算值(通过 CEUS)以及对毛细血管的直接光学观察(通过 IVM)。本方案还可进一步优化:用于尾部插管的四通连接器可更换为五通连接器。如此可避免在进行第二次 CEUS 测量(见步骤 2.9)时拆卸麻醉管路。根据我们的经验,小鼠对当前方案耐受良好。本方案的另一项可调整之处在于胰岛素钳夹速率的选择。本研究采用 7.5 mU/kg/min 的钳夹速率,属于超生理水平。根据具体实验需求,可采用较低的胰岛素钳夹速率(例如 3 mU/kg/min)。
尽管我们发现所述方案具有可靠性,但仍存在一些需要注意的特定局限性。在某些情况下,动脉直径的测量可能并非最佳状态。执行制备步骤需要对该模型具备一定的操作经验。必须确保石蜡油不会从血管环境泄漏,因为添加新的石蜡油会扰动血管并改变其直径,此时需让动脉再静置30分钟。此外,光源在石蜡油表面的反射(如方案步骤1.14中所述)有时过强,导致难以观察动脉。可通过调整光源方向,使光线以一定角度照射石蜡油表面且与动脉方向平行,以减轻此问题。
总之,本研究中描述的体内显微镜(IVM)与对比增强超声(CEUS)技术的结合,使得量化胰岛素在血管系统不同水平上的多种效应成为可能。对股薄肌动脉进行的体内显微镜观察可揭示上游血管变化,这些变化影响了通过对比增强超声测量的下游微血管灌注。我们建议在同一小鼠中联合使用多种实验技术,以更全面地评估血管功能。
披露
Visual Sonics 公司承担了开放获取费用,而文章的结构和内容仍完全由作者负责。
致谢
感谢Ing. Duncan van Groen为本研究中使用的图像分析软件(ImageGrabber)进行编程。本研究的资金由荷兰科学研究组织(Netherlands Organisation for Scientific Research)提供的VIDI资助(资助号016.136.372)提供。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| C57BL/6 小鼠 | Charles river | 实验所用小鼠为本实验室繁育 | |
| Vevo 2100 高分辨率超声成像系统 | VisualSonics inc. | ||
| MS250 非线性换能器 | VisualSonics inc. | ||
| Vevo 2100 软件 | VisualSonics inc. | ||
| 超声耦合剂(Aquasonic 100,无色) | CSP Medical | 133-1009 | 用于传导超声波的耦合剂 |
| 涡旋振荡器 | VWR international | 58815-234 | |
| 加热垫 | Pantlab | ||
| Freestyle Precision Xceed | Abbott | 用于在高胰岛素-正常血糖钳夹实验期间测量血糖水平 | |
| 胰岛素 Novorapid | Novo Nordisk | ||
| 葡萄糖一水合物 | Merck Millipore | 1083421000 | |
| 缓冲盐溶液 | B. Braun | 152118062 | |
| PE-20 医用导管 | Becton, Dickinson and Company | 427405 | |
| 27 号针头 | Becton-Dickinson & Co | 305109 | |
| 医用胶带 | 3M | ||
| 超声探头支架 | 本实验室自制 | ||
| 棉签 | 多种等效产品 | ||
| 脱毛膏 | 多种等效产品 | ||
| 凝胶组织粘合剂 | Derma+flex | GA30005-2222 | |
| 输液泵 | Harvard Apparatus | Harvard Apparatus PHD 2000 | |
| 小型精细直剪刀 | Fine Science Tools (FST) | 14090-09 | |
| 持针器 | Fine Science Tools (FST) | 12500-12 | |
| 细尖直镊 | Fine Science Tools (FST) | 11251-20 | |
| 体视显微镜 | Olympus | SZX12 | |
| 相机 | Basler | scA1390-17gc | |
| 图像采集程序 | 本实验室自制 | 图像采集系统 | |
| 计时器 | VWR | 33501-418 | |
| 1 mL 注射器 | Fisher | 14-817-25 | |
| 光纤光源 | Schott | KL1500 | 理想情况下配备可调节臂 |
| 石蜡油 | 多种等效产品 | ||
| 名称 | 公司 | 目录编号 | 备注 |
| 微泡 | |||
| 1,2-二硬脂酰基-sn-甘油-3-磷脂酰胆碱 | Avanti Polar Lipids | 850365C | |
| 聚氧乙烯硬脂酸酯 | Sigma | p3440 | |
| 全氟丁烷气体 | F2 Chemicals | C4F10(g) | |
| Decon FS200 超声波清洗仪 | Decon Ultrasonics Ltd | ||
| Vialmix | Lantheus Medical Imaging | 515370-0810 | |
| Multisizer 库尔特计数器 | Beckman Coulter Inc |
参考文献
- DeFronzo, R. A., Tobin, J. D., Rowe, J. W., Andres, R. Glucose intolerance in uremia. Quantification of pancreatic beta cell sensitivity to glucose and tissue sensitivity to insulin. The J Clin Invest. 62, 425-435 (1978).
- Chiu, J. D., et al. Direct administration of insulin into skeletal muscle reveals that the transport of insulin across the capillary endothelium limits the time course of insulin to activate glucose disposal. Diabetes. 57, 828-835 (2008).
- Herkner, H., et al. Transcapillary insulin transfer in human skeletal muscle. Eur J Clin Invest. 33, 141-146 (2003).
- Yang, Y. J., Hope, I. D., Ader, M., Bergman, R. N. Insulin transport across capillaries is rate limiting for insulin action in dogs. J Clin Invest. 84, 1620-1628 (1989).
- Clerk, L. H., et al. The vasodilatory actions of insulin on resistance and terminal arterioles and their impact on muscle glucose uptake. Diabetes Metab Res Rev. 20, 3-12 (2004).
- Vincent, M. A., et al. Microvascular recruitment is an early insulin effect that regulates skeletal muscle glucose uptake in vivo. Diabetes. 53, 1418-1423 (2004).
- Barrett, E. J., et al. The vascular actions of insulin control its delivery to muscle and regulate the rate-limiting step in skeletal muscle insulin action. Diabetologia. 52, 752-764 (2009).
- Vincent, M. A., Clerk, L. H., Rattigan, S., Clark, M. G., Barrett, E. J. Active role for the vasculature in the delivery of insulin to skeletal muscle. Clin Exp Pharmacol Physiol. 32, 302-307 (2005).
- Clark, M. G., Rattigan, S., Barrett, E. J., Vincent, M. A. Point: There is capillary recruitment in active skeletal muscle during exercise. J Appl Physiol (1985). 104, 889-891 (2008).
- Wallis, M. G., et al. Insulin-mediated hemodynamic changes are impaired in muscle of Zucker obese rats. Diabetes. 51, 3492-3498 (2002).
- Eringa, E. C., Stehouwer, C. D., Roos, M. H., Westerhof, N., Sipkema, P. Selective resistance to vasoactive effects of insulin in muscle resistance arteries of obese Zucker (fa/fa) rats. Am J Physiol Endocrinol Metab. 293, 1134-1139 (2007).
- Bonner, J. S., et al. Muscle-specific vascular endothelial growth factor deletion induces muscle capillary rarefaction creating muscle insulin resistance. Diabetes. 62, 572-580 (2013).
- Kubota, T., et al. Impaired insulin signaling in endothelial cells reduces insulin-induced glucose uptake by skeletal muscle. Cell Metab. 13, 294-307 (2011).
- Levy, B. I., et al. Impaired tissue perfusion: a pathology common to hypertension, obesity, and diabetes mellitus. Circulation. 118, 968-976 (2008).
- Schelbert, H. R. Coronary circulatory function abnormalities in insulin resistance: insights from positron emission tomography. J Am Coll Cardiol. 53, 3-8 (2009).
- Wong, T. Y., et al. Associations between the metabolic syndrome and retinal microvascular signs: the Atherosclerosis Risk In Communities study. Invest Ophthalmol Vis Sci. 45, 2949-2954 (2004).
- Bonadonna, R. C., et al. Role of tissue-specific blood flow and tissue recruitment in insulin-mediated glucose uptake of human skeletal muscle. Circulation. 98, 234-241 (1998).
- Ellmerer, M., et al. Reduced access to insulin-sensitive tissues in dogs with obesity secondary to increased fat intake. Diabetes. 55, 1769-1775 (2006).
- Ellmerer, M., et al. Physiological hyperinsulinemia in dogs augments access of macromolecules to insulin-sensitive tissues. Diabetes. 53, 2741-2747 (2004).
- Vincent, M. A., et al. Mixed meal and light exercise each recruit muscle capillaries in healthy humans. Am J Physiol Endocrinol Metab. 290, 1191-1197 (2006).
- de Jongh, R. T., Serne, E. H., RG, I. J., de Vries, G., Stehouwer, C. D. Impaired microvascular function in obesity: implications for obesity-associated microangiopathy, hypertension, and insulin resistance. Circulation. 190, 2529-2535 (2004).
- Ketel, I. J., et al. Obese but not normal-weight women with polycystic ovary syndrome are characterized by metabolic and microvascular insulin resistance. J Clin Endocrinol Metab. 93, 3365-3372 (2008).
- Khan, F., et al. Impaired microvascular function in normal children: effects of adiposity and poor glucose handling. J Physiol. 551, 705-711 (2003).
- Clark, M. G. Impaired microvascular perfusion: a consequence of vascular dysfunction and a potential cause of insulin resistance in muscle. Am J Physiol Endocrinol Metab. 295, 732-750 (2008).
- Serne, E. H., et al. Impaired skin capillary recruitment in essential hypertension is caused by both functional and structural capillary rarefaction. Hypertension. 38, 238-242 (2001).
- Sriramarao, P., Anderson, W., Wolitzky, B. A., Broide, D. H. Mouse bone marrow-derived mast cells roll on P-selectin under conditions of flow in vivo. Lab Invest. 74, 634-643 (1996).
- Leister, I., et al. A peritoneal cavity chamber for intravital microscopy of the liver under conditions of pneumoperitoneum. Surg Endosc. 17, 939-942 (2003).
- Cardinal, T. R., et al. Chronic hindlimb ischemia impairs functional vasodilation and vascular reactivity in mouse feed arteries. Front Physiol. 2, 91(2011).
- Duling, B. R. The preparation and use of the hamster cheek pouch for studies of the microcirculation. Microvasc Res. 5, 423-429 (1973).
- Wei, K., et al. Quantification of myocardial blood flow with ultrasound-induced destruction of microbubbles administered as a constant venous infusion. Circulation. 97, 473-483 (1998).
- Clerk, L. H., Rattigan, S., Clark, M. G. Lipid infusion impairs physiologic insulin-mediated capillary recruitment and muscle glucose uptake in vivo. Diabetes. 51, 1138-1145 (2002).
- Barrett, E. J., Keske, M. A., Rattigan, S., Eringa, E. C. CrossTalk proposal: De novo capillary recruitment in healthy muscle is necessary. J Physiol. 592, 5129-5131 (2014).
- Aman, J., et al. Effective treatment of edema and endothelial barrier dysfunction with imatinib. Circulation. 126, 2728-2738 (2012).
- Boer, M. P., et al. Globular adiponectin controls insulin-mediated vasoreactivity in muscle through AMPKalpha2. Vascul Pharmacol. 78, 24-35 (2016).
- van den Brom, C. E., et al. Myocardial Perfusion and Function Are Distinctly Altered by Sevoflurane Anesthesia in Diet-Induced Prediabetic Rats. J Diabetes Res. 2016, 5205631(2016).
- Meijer, R. I., et al. Perivascular adipose tissue control of insulin-induced vasoreactivity in muscle is impaired in db/db mice. Diabetes. 62, 590-598 (2013).
- Meijer, R. I., et al. Insulin-induced changes in skeletal muscle microvascular perfusion are dependent upon perivascular adipose tissue in women. Diabetologia. 58, 1907-1915 (2015).
- Sun, D., Kaley, G., Koller, A. Characteristics and origin of myogenic response in isolated gracilis muscle arterioles. Am J Physiol. 266, 1177-1183 (1994).
- Jonk, A. M., et al. Microvascular dysfunction in obesity: a potential mechanism in the pathogenesis of obesity-associated insulin resistance and hypertension. Physiology (Bethesda). 22, 252-260 (2007).
- Wiernsperger, N., Nivoit, P., De Aguiar, L. G., Bouskela, E. Microcirculation and the metabolic syndrome. Microcirculation. 14, 403-438 (2007).
- Horber, F. F., et al. Isoflurane and whole body leucine, glucose, and fatty acid metabolism in dogs. Anesthesiology. 73, 82-92 (1990).
- Sui, H., et al. Quantifying insulin sensitivity and entero-insular responsiveness to hyper- and hypoglycemia in ferrets. PLoS One. 9, 90519(2014).
- Pires, N. M., et al. Local perivascular delivery of anti-restenotic agents from a drug-eluting poly(epsilon-caprolactone) stent cuff. Biomaterials. 26, 5386-5394 (2005).
- Young, D. A., Chi, M. M., Lowry, O. H. Energy metabolism of skeletal muscle biopsies stimulated anaerobically without load in vitro. Am J Physiol. 250, 813-820 (1986).
重印与许可
标签
