本实验方案描述了如何结合溶酶体酶抑制,利用蛋白质印迹(Western blotting)和免疫细胞化学技术来证明睫状神经营养因子受体-α(CNTFRα)的下调,该下调由细胞因子样因子-1(CLF-1)与内吞受体sorLA之间的相互作用介导。
方法文章
SorLA 和 CLC:CLF-1 依赖性下调 CNTFRα 的机制研究:通过蛋白质印迹、溶酶体酶抑制及免疫细胞化学方法验证
本文内容
摘要
摘要
异源二聚体细胞因子心肌营养素样细胞因子:细胞因子样因子-1(CLC:CLF-1)靶向糖基磷脂酰肌醇(GPI)锚定的CNTFRα,形成三聚体复合物,进而招募糖蛋白130/白血病抑制因子受体-β(gp130/LIFRβ)以启动信号转导。CLC和CNTFRα均为信号转导所必需,但迄今为止,CLF-1仅被认为是一种促进CLC分泌的假定辅助因子。然而,最近研究表明,CLF-1包含三个结合位点:一个用于结合CLC;一个用于结合CNTFRα(可能促进三聚体复合物的组装);另一个用于结合内吞受体sorLA。后一结合位点使CLF-1、CLC:CLF-1以及三聚体(CLC:CLF-1:CNTFRα)复合物均能以高亲和力与sorLA结合,在表达sorLA的细胞中,可溶性配体CLF-1和CLC:CLF-1被迅速摄取并内化。在共表达CNTFRα和sorLA的细胞中,CNTFRα首先与CLC:CLF-1结合形成膜相关三聚体复合物,同时通过CLF-1中游离的sorLA结合位点与sorLA相连。因此,本身不具备内吞能力的CNTFRα可被CLC:CLF-1介导的sorLA依赖性内吞作用“拖拽”并一同内化。
本实验方案描述了用于证明以下内容的实验步骤:i) 由sorLA介导且依赖CLC:CLF-1的细胞膜表面CNTFRα表达下调;ii) sorLA介导的CNTFRα内吞作用及其向溶酶体的靶向运输;以及iii) 在sorLA介导的CNTFRα表达下调后,细胞对CLC:CLF-1刺激的反应减弱。
引言
CLC 和 CLF-1 构成异源二聚体细胞因子 CLC:CLF-1 的两个亚基1-3。在细胞信号诱导过程中,CLC:CLF-1 首先结合其主要受体——糖基磷脂酰肌醇(GPI)锚定的 CNTFRα,形成膜结合的三聚体复合物。随后,CLC:CLF-1:CNTFRα 复合物招募 gp130/LIFRβ,通过 Janus 激酶/信号转导子和转录激活子 3(JAK/STAT3)通路介导跨膜信号传导4。缺乏这三个亚基中任何一个的小鼠均表现出相同的表型,并在出生后 24 小时内因面神经元数量减少和吸吮能力不足而死亡5-8。人类的研究发现同样强调了这三个亚基的功能一致性。因此,导致 CLC:CLF-1 或 CNTFRα 功能障碍的人类突变(纯合或复合杂合突变)均会引起所谓的冷诱导性多汗症/Crisponi 综合征,该疾病表现为吸吮和吞咽障碍、多种畸形特征、体温骤升以及在低温环境下出现矛盾性大量出汗等症状9-11。
体外 CLC 与 CNTFRα 的组合对于与 gp130/LIFRβ 相互作用并诱导细胞内信号传导既是必需的,也是充分的12CLF-1的作用则尚不明确。它不直接参与信号传导,长期以来被认为是一个附属结构,主要功能是促进CLC的细胞分泌。1然而,最近的研究发现,CLF-1 具有除上述功能外更关键的作用,涉及 CLC 和 CNTFRα 的信号传导及其代谢周转。因此,CLF-1 似乎包含三个独立的结合位点:一个用于其与 CLC 的经典结合;一个介导与 CNTFRα 的直接结合;第三个为高亲和力位点,可与内吞受体 sorLA 相互作用。由于 CLC 和 CLF-1 均似乎 与CLC:CLF-1复合物相比,对CNTFRα的结合亲和力显著较低,因此可以推测CLF-1(通过其CNTFRα结合位点)促进CLC与CNTFRα的结合,从而增强信号传导13.
CLF-1与sorLA的相互作用是本次报告的核心问题,其作用机制完全不同。sorLA是构成Vps10p结构域受体家族的五种Ⅰ型受体之一。14在多种组织中均有表达,尤其在脑组织和神经组织中表达显著。15与同家族的其他成员相似,sorLA 含有一个位于N端的配体结合型 Vps10p 结构域,此外还包含其他类型的结构域,包括在低密度脂蛋白受体家族成员中发现的配体结合元件15其胞质尾区与多种衔接蛋白相互作用, 例如,衔接蛋白-1和-2以及sorLA介导了结合蛋白的有效内吞作用及其细胞内分选与转运16-18Vps10p结构域包含一个由十个叶片组成的大型β-螺旋桨结构19,20,可结合一系列无关的配体,包括CLF-1(但值得注意的是,不包括CLC)13CLF-1 中的结合位点即使在与 CLC 和 CNTFRα 形成复合物后仍可接近,这意味着 sorLA 不仅可结合游离的 CLF-1,还能结合 CLC:CLF-1 二元复合物以及三元复合物 CLC:CLF-1:CNTFRα13SorLA介导CLF-1和CLC:CLF-1的快速内吞,但这些蛋白为可溶性蛋白,而CNTFRα通过GPI锚定于细胞膜表面。因此,问题是CLC:CLF-1:CNTFRα复合物的结合是否允许SorLA内化整个复合物,从而改变CNTFRα在细胞膜表面的表达水平(以及细胞对CLC:CLF-1信号诱导的后续敏感性),和/或影响CNTFRα的周转。
本报告中描述的实验旨在阐明以下问题:
sorLA 是否介导 CLC:CLF-1 依赖性的细胞膜表面 CNTFRα 下调?为阐明这一点,最初尝试通过代谢标记和脉冲-追踪实验(如文献21所述)来确定 CNTFRα 的 turnover(在有无 sorLA 的情况下)。然而,使用 [35S]半胱氨酸和 [35S]甲硫氨酸混合物对 CNTFRα 进行标记的实验显示放射性掺入量极低。这表明新合成程度非常低,极有可能无法补偿受体的突然且显著的丢失。因此,为确定当 CNTFRα 通过 CLC:CLF-1 与 sorLA 相互连接时是否发生下调,决定仅通过蛋白印迹法(Western blotting)检测 CLC:CLF-1 处理前后细胞内 CNTFRα 的总蛋白量,并比较转染与未转染 sorLA 的细胞中的结果。
sorLA 是否将 CNTFRα 靶向运输至溶酶体?为了回答这一问题,通过免疫细胞化学方法检测了 CNTFRα 的定位情况,该蛋白通过 CLC:CLF-1 介导与 sorLA 结合并被内化;实验使用针对 CNTFRα 以及晚期内体/溶酶体标志物溶酶体相关膜蛋白 1(LAMP-1)的抗体进行标记。实验在使用和未使用溶酶体酶抑制剂处理的细胞中分别进行。其基本假设是:如果 CNTFRα 在溶酶体内被降解,那么经酶抑制剂处理的细胞中应可观察到 CNTFRα 信号在 LAMP-1 阳性囊泡中的积累,而未经处理的细胞中则应几乎检测不到或完全检测不到 CNTFRα 信号。
CNTFRα 下调是否会降低细胞对 CLC:CLF-1 刺激的反应?由 CLC、CLF-1 和 CNTFRα 组成的三聚体复合物通过 gp130/LIFRβ 异源二聚体,利用 JAK/STAT3 通路进行信号传导。因此,通过 Western 印迹检测并定量 sorLA 转染细胞中磷酸化 STAT3(pSTAT3)与总 STAT3 的水平,探讨了 CNTFRα 下调后细胞对 CLC:CLF-1 信号反应能力的变化。
方案
1. CNTFRα 裂解液的蛋白质印迹分析
- 分别使用 pcDNA3.1/zeo(-) 和 pcDNA3.1/hyg(-) 载体,在人胚胎肾 293(HEK293)细胞中表达全长 sorLA 和 Myc 标签的 CNTFRα 构建体。根据制造商的说明书,使用商用转染试剂将构建体转染至 HEK293 细胞中。在含有 150 µg/mL Zeocin 和/或 500 µg/mL Hygromycin B Gold13 的培养基中筛选稳定克隆。
- 将表达 CNTFRα-Myc 或共表达 CNTFRα-Myc/sorLA 的 HEK293 转染细胞以相同数量接种于两个 4 孔板中,如图 1所示。在 37 ˚C、5% 二氧化碳培养箱中,使用添加了 10% 胎牛血清(FBS)、100 U/mL 青霉素和 100 μg/mL 链霉素(完全培养基)的 Dulbecco 改良 Eagle 培养基(DMEM)培养细胞。
- 等待细胞生长至 50 - 80% 汇合度。
- 吸去孔中培养基,用 Dulbecco 磷酸盐缓冲盐水(DPBS)洗涤一次,并根据图 1所示,加入新鲜完全培养基,其中含或不含(对照)10 nM CLC:CLF-1。将细胞在 37 ˚C 下继续孵育。
- 孵育 0 和 5 小时后,收集培养基并将其储存在 4 ˚C 的 1.5 mL 离心管中。随后,向每孔加入含有蛋白酶抑制剂混合物的 1% Triton X-100 裂解缓冲液(20 mM Tris-HCl,10 mM EDTA,pH 8.0)(4 ˚C,1 分钟)。然后将细胞裂解物转移至 1.5 mL 离心管中(4 ˚C)。
- 将含有培养基和细胞裂解物的离心管以 3,000 × g 离心 3 分钟(4 ˚C),并将上清液转移至新的 1.5 mL 离心管中(4 ˚C)。弃去沉淀。取 5 μL 每个细胞裂解物上清液转移至新的 1.5 mL 离心管中——用于后续测定蛋白含量(步骤 1.7)。立即向所有上清液中加入非还原性 LDS 上样缓冲液,并涡旋混匀样品。
- 使用 5 μL 的等分试样,根据制造商说明书,利用商用蛋白定量试剂盒测定细胞裂解物上清液中的蛋白含量。
- 将样品在 95 ˚C 下加热 5 分钟。
- 取等量蛋白样品进行还原性 SDS-PAGE13 和 Western blotting13,使用兔抗 sorLA16 抗体(5 μg/mL)、鼠抗 β-actin 抗体(0.4 μg/mL)和鼠抗 Myc 抗体(1 μg/mL),以及相应的 HRP 标记二抗(1:2,000),检测培养基和细胞裂解物中 sorLA、β-actin 和 CNTFRα-Myc 的表达水平。
- 根据制造商说明书,采用密度测定法对条带进行定量分析。
2. 联合溶酶体抑制剂的免疫细胞化学
- 如图2所示,将稳定转染CNTFRα-Myc/sorLA的HEK293细胞接种于4孔板中的盖玻片上。以上述完全培养基培养细胞。
- 等待细胞融合度达到20 - 40%。
- 吸除孔中培养基,根据图2所示,向细胞中加入含或不含50 μg/mL亮抑酶肽(leupeptin)和胃蛋白酶抑制剂A(pepstatin A)(leu/pep)(可抑制溶酶体水解酶)的完全培养基。将细胞在37 ˚C条件下孵育。在随后24小时孵育期间,每6小时更换一次培养基。
- 孵育24小时后,再次更换培养基(含或不含leu/pep),并此次加入10 nM CLC:CLF-1。将细胞在37 ˚C条件下继续孵育5小时。
- 用PBS洗涤细胞一次,随后在pH 7的4%多聚甲醛中室温固定15分钟。
注意:多聚甲醛具有高毒性,避免接触皮肤、眼睛和黏膜。操作时应佩戴手套和护目镜,并在通风橱内配制溶液。 - 用PBS洗涤细胞一次,随后在含0.5%皂苷的PBS中室温通透5分钟。
- 将山羊抗CNTFRα抗体(1 μg/mL)(注意:此处不使用用于Western blotting的小鼠抗Myc抗体)和小鼠抗LAMP-1抗体(15 μg/mL)用含0.5%皂苷的缓冲液稀释,室温孵育细胞2小时。
- 用含0.5%皂苷的缓冲液洗涤细胞4次(每次5分钟),然后加入驴抗山羊Alexa 488标记和驴抗小鼠Alexa 568标记的二抗(6 μg/mL),室温孵育2小时。
- 用含0.5%皂苷的缓冲液洗涤细胞4次(每次5分钟),再用去离子水洗涤两次(每次1分钟),最后使用封片剂将盖玻片封固于显微镜载玻片上。
- 使用激光共聚焦显微镜,配备63X C-复消色差水浸物镜(NA 1.2),对细胞进行共聚焦显微分析以观察抗体染色情况。
3. pSTAT3 水平的 Western 印迹检测
- 将表达内源性水平CNTFRα的HEK293-sorLA细胞接种于4孔板中,如图3所示。按上述方法在完全培养基中培养细胞。
- 待细胞融合度达到50 - 80%时进行下一步操作。
- 吸除孔中培养基,用PBS洗涤一次,然后根据图3所示,向细胞中加入含或不含10 nM CLC:CLF-1的新鲜完全培养基。于37 ˚C孵育5小时。
- 再次吸除培养基,用无血清无抗生素的DMEM(空白培养基)洗涤细胞两次,随后在空白培养基中重新孵育细胞90分钟(37 ˚C)。
- 再次吸除培养基,并根据图3所示,向细胞中加入含或不含5 nM CLC:CLF-1的新鲜空白培养基(以启动STAT3磷酸化)。于37 ˚C孵育15分钟。
- 迅速吸除培养基,每孔加入含有蛋白酶抑制剂混合物和磷酸酶抑制剂混合物的1% Triton X-100裂解缓冲液(20 mM Tris-HCl, 10 mM EDTA, pH 8.0),在4 ˚C裂解细胞1分钟。随后将细胞裂解液转移至1.5 mL离心管中(置于4 ˚C)。
- 取各上清液5 μL转移至新的1.5 mL离心管中——用于后续蛋白含量测定(步骤3.8)。立即向所有上清液中加入非还原性LDS上样缓冲液,并涡旋混匀样品。
- 根据试剂盒说明书,使用商用蛋白定量试剂检测5 μL样品的蛋白含量。
- 室温下对各样品进行超声处理,直至 其不再黏稠(约1分钟),随后于95 ˚C加热5分钟。
- 取等量蛋白样品进行SDS-PAGE13和Western blotting13,使用兔抗pSTAT3抗体(1:2000)、鼠抗STAT3抗体(1:1,000)以及相应的HRP标记的鼠和兔二抗(1:2,000),检测细胞裂解液中pSTAT3和总STAT3的表达水平。
- 根据试剂盒说明书,采用密度测定法对条带进行定量分析。
结果
图1展示了方案1中细胞接种及CLC:CLF-1孵育的示意图。图2展示了方案2中细胞接种以及leu/pep和CLC:CLF-1孵育的示意图。图3展示了方案3中细胞接种、CLC:CLF-1孵育及刺激的示意图。图4展示了sorLA介导的CLC:CLF-1依赖性CNTFRα下调。图5展示了sorLA介导的CNTFRα内吞作用及溶酶体靶向。图6展示了CNTFRα下调后对CLC:CLF-1刺激反应降低的结果。
需要注意的是,在0小时时,代表CNTFRα-Myc的条带密度相似,而在转染sorLA的细胞中,5小时后条带变弱,表明CNTFRα-Myc发生了下调(图4)。图5显示,在经亮氨酸/蛋白酶抑制剂(leu/pep)处理的细胞中,CNTFRα-Myc在LAMP-1阳性囊泡中发生聚集;相比之下,在未经亮氨酸/蛋白酶抑制剂处理的细胞中未观察到CNTFRα-Myc的聚集。这表明CNTFRα-Myc被分选至溶酶体并被降解。如图6所示,与未暴露于CLC:CLF-1的细胞相比,预刺激细胞中pSTAT3的水平显著降低。这与在预刺激细胞中观察到的sorLA介导的CNTFRα下调一致(图4)。
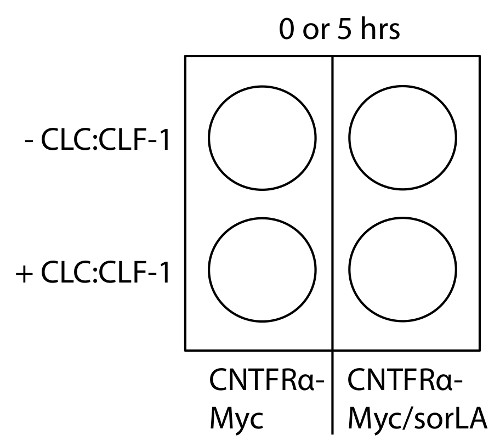
图1: 方案1中细胞接种与CLC:CLF-1孵育的示意图。 将HEK293-CNTFRα-Myc和HEK293-CNTFRα-Myc/sorLA细胞分别接种于两个4孔板中(0小时和5小时),并按所示条件用CLC:CLF-1孵育细胞。 请点击此处查看该图的放大版本。
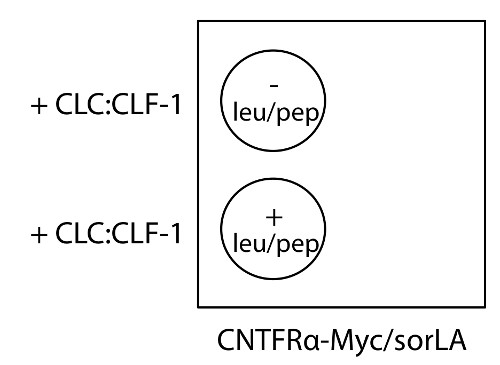
图 2:方案 2 中细胞接种及亮氨酸/蛋白胨与 CLC:CLF-1 孵育的示意图。将 HEK293-CNTFRα-Myc/sorLA 细胞接种于 4 孔板中的盖玻片上,并根据指示用或不用亮氨酸/蛋白胨以及 CLC:CLF-1 对细胞进行孵育。请点击此处查看该图的放大版本。
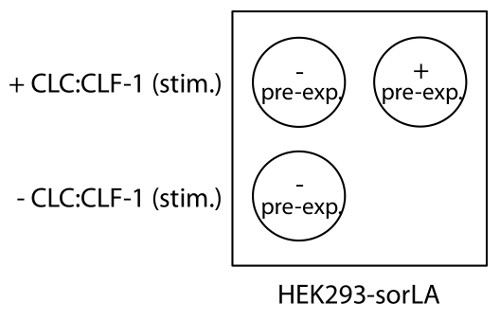
图 3: 方案 3 中细胞接种及 CLC:CLF 孵育与刺激的示意图。将 HEK293-sorLA 细胞接种于一个 4 孔板中,并用或不用 CLC:CLF-1(预处理)孵育细胞以下调 CNTFRα,随后进行 CLC:CLF-1 刺激(刺激)以启动 STAT3 磷酸化,如图所示。请点击此处查看该图的放大版本。
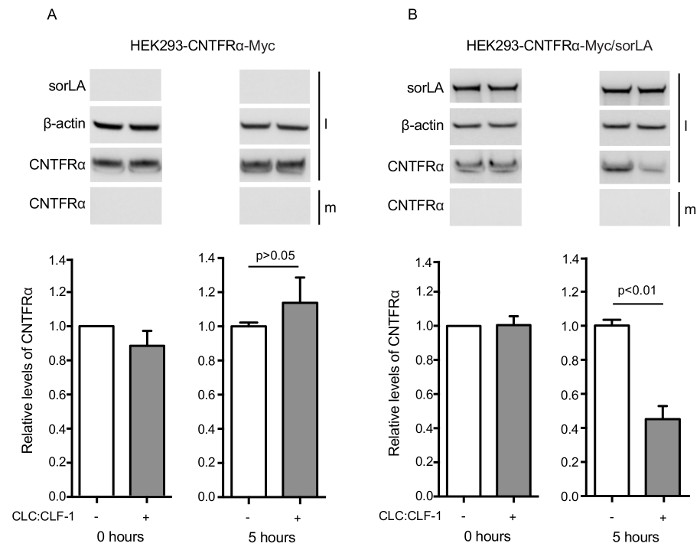
图4: 结果显示 SorLA 介导 CLC:CLF-1 依赖性下调 CNTFRα。 (A) HEK293-CNTFRα-Myc 和 (BHEK293-CNTFRα-Myc/sorLA 细胞在无(白色柱)或含(灰色柱)10 nM CLC:CLF-1 的条件下孵育。在孵育 0 和 5 小时后终止反应,通过 Western 印迹检测培养基(m)和细胞裂解液(l)中 CNTFRα-Myc 的含量,并采用密度测定法进行定量。上图显示代表性实验的 Western 印迹结果,下图显示细胞裂解液中检测到的 CNTFRα-Myc 水平。数据以转染单基因或双基因细胞在 0 小时的 CNTFRα-Myc 水平为参照进行归一化。每根柱代表均值 ± 标准误(n = 3). 使用 t 检验计算 p 值。经原始图示后复制13. 请点击此处以查看此图的放大版本。
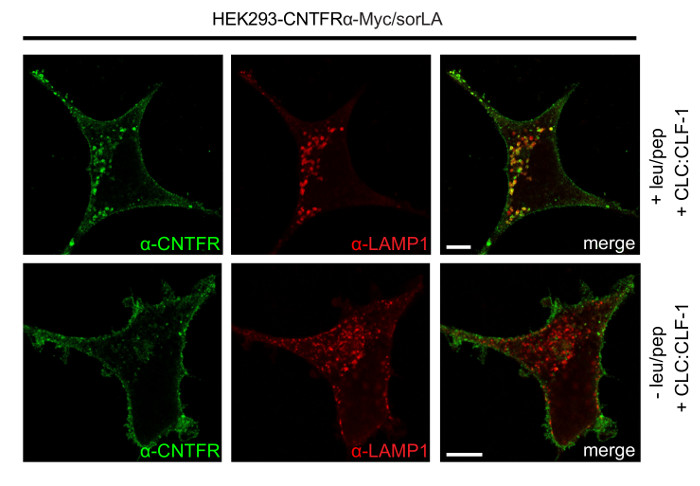
图5: 结果显示SorLA介导CNTFRα的内吞作用及向溶酶体的靶向运输。 HEK293-CNTFRα-Myc/sorLA细胞经有或无leu/pep处理后,与10 nM CLC:CLF-1共孵育5小时,固定,并按照方案2所述使用抗CNTFRα和抗LAMP-1抗体进行染色。比例尺:5 μm。改编自原始图13。 请点击此处查看该图的放大版本。
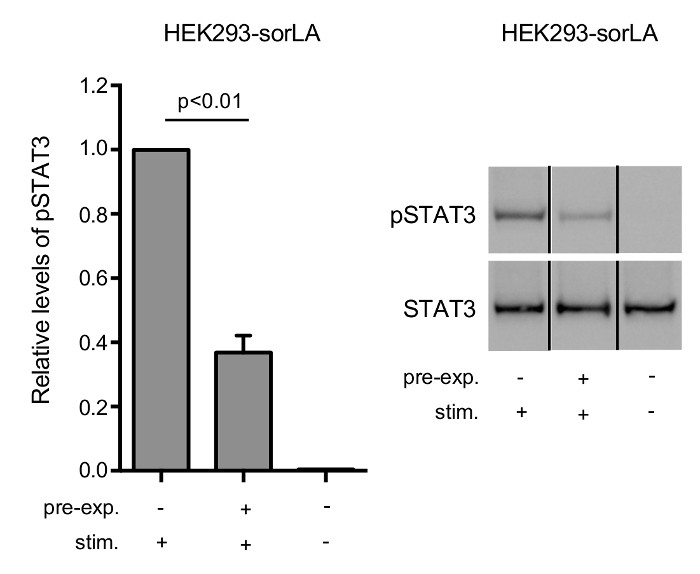
图 6: sorLA 介导的 CNTFRα 下调伴随着细胞对 CLC:CLF-1 刺激反应的降低。
HEK293-sorLA 细胞在有或无 10 nM CLC:CLF-1 的条件下预孵育 5 小时(预处理),随后在空白培养基中饥饿处理 90 分钟,并用 5 nM CLC:CLF-1 刺激 15 分钟(刺激)。(左图)柱状图显示细胞中 pSTAT3 的相对水平。每根柱代表相对于未预孵育 CLC:CLF-1 但经 CLC:CLF-1 刺激的细胞中 pSTAT3 水平的均值 ± 标准误(n = 3)。p 值通过 t 检验计算。(右图)Western blot 显示了一次代表性实验中 pSTAT3 和 STAT3 的反应情况。经原图13授权重印。 请点击此处查看该图的放大版本。
讨论
本文所述方案可用于特异性展示sorLA介导的CLC:CLF-1依赖性CNTFRα下调及其向溶酶体的靶向运输,以及伴随的对CLC:CLF-1刺激反应减弱现象。
HEK293细胞系非常适合本实验方案,因其内源性CNTFRα和sorLA表达水平极低,易于转染,能够表达gp130/LIFRβ,且细胞体较大,适合进行免疫细胞化学染色。然而理论上,任何具有类似特性的细胞系也应同样适用。
该方案包含两个关键步骤。第一步涉及第2.3步,其中亮氨酸/肽培养基必须在24小时内大约每6小时更换一次。若未按时更换,可能导致溶酶体酶处于活性状态,从而造成溶酶体中蛋白积累减少或无法检测到。第二步关键步骤(第3.4步)涉及与CLC:CLF-1预孵育后的洗涤操作。必须彻底去除未结合的配体,并使细胞在未添加成分的DMEM(空白培养基)中恢复一段时间,以避免持续刺激。这将确保在后续使用CLC:CLF-1重新刺激(第3.5步)时,pSTAT3的本底水平保持在较低水平。
值得注意的是,图6 表明,细胞反应(pSTAT3)随着 sorLA 介导的 CNTFRα 下调而平行减弱。然而需要强调的是,尽管细胞反应的减弱与 CNTFRα 池的减少一致(且在 CNTFRα 减少时可预期出现),但这并不能证明低水平的 CNTFRα 表达本身足以解释细胞反应的减弱。因此,在 pSTAT3 上游信号通路中任何功能组分的变化——由预刺激或转染所引起——均可能对反应的改变有所贡献。
该方案的基本概念不仅限于这一特定的受体系统。通过修改该方案(即 另一种细胞系,其他抗体,其他配体 等等它也可用于检测配体诱导的其他受体的下调,无论这些过程是否涉及 sorLA。然而需要注意的是,通过蛋白质印迹法分析受体下调主要适用于受体 例如,GPI锚定受体在未受刺激的细胞中表现出较慢的更新速率和较低的新合成水平。因此,对于新合成水平较高的受体,配体诱导的下调可能被新受体的合成所补偿。在此情况下,受体库的下调可通过代谢标记结合脉冲-追踪实验来测定,如文中所述21或者,可使用不会干扰受体结合的碘标记抗体( preferably Fc片段)来 "标签" 受体的胞外域,随后可通过放射性计数细胞沉淀和培养基来确定预期的下调情况。
出于实验操作的考虑,我们使用携带 Myc 标签的 CNTFRα 质粒转染细胞,在本实验方案中,采用小鼠抗-Myc 抗体进行 Western 印迹检测该受体。相比之下,免疫细胞化学及双重标记实验中则使用了抗山羊 CNTFRα 抗体,原因是 LAMP-1 使用小鼠来源的抗体进行检测——显然,若同时使用两种小鼠来源的一抗,将导致二抗产生非特异性(重叠)染色。需要注意的是,由于抗山羊 CNTFRα 抗体同样适用于 Western 印迹(结果未显示),因此本方案可轻松修改并应用于未标记 CNTFRα 转染的细胞。
最近的研究表明,内吞作用受体sortilin也能以高亲和力结合CLC:CLF-122。因此,sortilin可能与sorLA类似,通过CLF-1与CLC:CNTFRα相互连接,并同样介导CNTFRα的内吞作用和溶酶体靶向。采用sortilin替代sorLA,本实验方案可用于阐明这一问题。
披露
作者无任何利益冲突需要披露。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Zeocin | InvivoGen | ant-zn-1 | |
| Hygromycin B Gold | InvivoGen | ant-hg-1 | |
| FuGENE 6 转染试剂 | Roche | 11 815 091 001 | |
| 4 孔板(Nunclon Delta 表面) | Thermo Scientific | 176740 | |
| Safe-Lock 管 | Eppendorf | 0030 120.086 | |
| Dulbecco 改良 Eagle´s 培养基(DMEM) | Lonza | BE12-604F/U1 | |
| 胎牛血清(FBS) | Thermo Scientific | 10270106 | |
| 青霉素/链霉素 | Thermo Scientific | 15140122 | |
| Dulbecco 磷酸盐缓冲液 (DPBS) | HyClone | SH30028.02 | |
| CLC:CLF-1 | R&D Systems | 1151-CL/CF | |
| 小鼠抗 LAMP-1 | DSHP | H4A3 | |
| 兔抗 sorLA | 参考文献 16 | ||
| 小鼠抗 β-actin | Sigma | A2228 | |
| 小鼠抗 Myc | Genscript | A00704 | |
| 山羊抗 CNTFRα | R&D Systems | AF-303 | |
| 兔抗 pSTAT3 | Cell Signaling Technology | 9145s | |
| 小鼠抗 STAT3 | Cell Signaling Technology | 9139s | |
| 抗小鼠 HRP 标记抗体 | Cell Signaling Technology | 7076s | |
| 抗兔 HRP 标记抗体 | Cell Signaling Technology | 7074s | |
| 抗山羊 HRP 标记抗体 | Dako | P0160 | |
| 驴抗山羊二抗,Alexa Fluor 488 标记 | Invitrogen | A11055 | |
| 驴抗小鼠二抗,Alexa Fluor 568 标记 | Invitrogen | A10037 | |
| 亮抑酶肽 | Sigma | L8511-5MG | |
| 胃蛋白酶抑制剂 A | Sigma | P4265-5MG | |
| Triton X-100 | AppliChem | A1388 | |
| Tris-HCl | Merck | 1,082,191,000 | |
| EDTA:Titriplex III | Merck | 1,084,180,250 | |
| cOmplete mini EDTA-free | Roche | 11836170001 | |
| PhosSTOP | Roche | 04 906 837 001 | |
| LDS 样品缓冲液(4x) | Novex | NP0007 | |
| Bio-Rad 蛋白测定试剂 | Bio-Rad | 500-0006 | |
| 4% 多聚甲醛(PFA) | VWR | 97,135,000 | |
| 皂苷 | Sigma | S7900-100G | |
| 封片介质 | Dako | S3023 |
参考文献
- Elson, G. C., et al. CLF associates with CLC to form a functional heteromeric ligand for the CNTF receptor complex. Nat Neurosci. 3 (9), 867-872 (2000).
- Senaldi, G., et al. Novel neurotrophin-1/B cell-stimulating factor-3: a cytokine of the IL-6 family. Proc Natl Acad Sci U S A. 96 (20), 11458-11463 (1999).
- Elson, G. C., et al. Cytokine-like factor-1, a novel soluble protein, shares homology with members of the cytokine type I receptor family. J Immunol. 161 (3), 1371-1379 (1998).
- Lelievre, E., et al. Signaling pathways recruited by the cardiotrophin-like cytokine/cytokine-like factor-1 composite cytokine: specific requirement of the membrane-bound form of ciliary neurotrophic factor receptor alpha component. J Biol Chem. 276 (25), 22476-22484 (2001).
- Zou, X., et al. Neonatal Death in Mice Lacking Cardiotrophin-Like Cytokine (CLC) is Associated with Multifocal Neuronal Hypoplasia. Vet Pathol. 46 (3), 514-519 (2008).
- Forger, N. G., et al. Cardiotrophin-like cytokine/cytokine-like factor 1 is an essential trophic factor for lumbar and facial motoneurons in vivo. J Neurosci. 23 (26), 8854-8858 (2003).
- Alexander, W. S., et al. Suckling defect in mice lacking the soluble haemopoietin receptor NR6. Curr Biol. 9 (11), 605-608 (1999).
- DeChiara, T. M., et al. Mice lacking the CNTF receptor, unlike mice lacking CNTF, exhibit profound motor neuron deficits at birth. Cell. 83 (2), 313-322 (1995).
- Crisponi, L., et al. Crisponi syndrome is caused by mutations in the CRLF1 gene and is allelic to cold-induced sweating syndrome type 1. Am J Hum Genet. 80 (5), 971-981 (2007).
- Crisponi, G. Autosomal recessive disorder with muscle contractions resembling neonatal tetanus, characteristic face, camptodactyly, hyperthermia, and sudden death: a new syndrome. Am J Med Genet. 62 (4), 365-371 (1996).
- Sohar, E., Shoenfeld, Y., Udassin, R., Magazanik, A., Revach, M. Cold-induced profuse sweating on back and chest. A new genetic entity. Lancet. 2 (8099), 1073-1074 (1978).
- Guillet, C., et al. Functionally active fusion protein of the novel composite cytokine CLC/soluble CNTF receptor. Eur J Biochem. 269 (7), 1932-1941 (2002).
- Larsen, J. V., et al. Cytokine-Like Factor 1, an Essential Facilitator of Cardiotrophin-Like Cytokine:Ciliary Neurotrophic Factor Receptor alpha Signaling and sorLA-Mediated Turnover. Mol Cell Biol. 36 (8), 1272-1286 (2016).
- Willnow, T. E., Petersen, C. M., Nykjaer, A. VPS10P-domain receptors - regulators of neuronal viability and function. Nat Rev Neurosci. 9 (12), 899-909 (2008).
- Jacobsen, L., et al. Molecular characterization of a novel human hybrid-type receptor that binds the alpha2-macroglobulin receptor-associated protein. J Biol Chem. 271 (49), 31379-31383 (1996).
- Nielsen, M. S., et al. Sorting by the cytoplasmic domain of the amyloid precursor protein binding receptor SorLA. Mol Cell Biol. 27 (19), 6842-6851 (2007).
- Jacobsen, L., et al. The sorLA cytoplasmic domain interacts with GGA1 and -2 and defines minimum requirements for GGA binding. FEBS Lett. 511 (1-3), 155-158 (2002).
- Klinger, S. C., et al. SorLA regulates the activity of lipoprotein lipase by intracellular trafficking. J Cell Sci. 124 (7), 1095-1105 (2011).
- Kitago, Y., et al. Structural basis for amyloidogenic peptide recognition by sorLA. Nat Struct Mol Biol. 22 (3), 199-206 (2015).
- Quistgaard, E. M., et al. Ligands bind to Sortilin in the tunnel of a ten-bladed beta-propeller domain. Nat Struct Mol Biol. 16 (1), 96-98 (2009).
- Larsen, J. V., et al. Human sorCS1 binds sortilin and hampers its cellular functions. Biochem J. 457 (2), 277-288 (2014).
- Larsen, J. V., et al. Sortilin facilitates signaling of ciliary neurotrophic factor and related helical type 1 cytokines targeting the gp130/leukemia inhibitory factor receptor beta heterodimer. Mol Cell Biol. 30 (17), 4175-4187 (2010).
重印与许可
