体节前中胚层(PSM)中的基因表达受分节钟调控而呈现振荡模式。Notch 信号通路的动态活性是该过程的关键。我们结合成像与计算分析方法,从空间表达数据中提取时间动态信息,证明在脊椎动物的体节前中胚层中,Delta 配体与 Notch 受体的表达呈现振荡规律。
本文内容
摘要
摘要
在体节形成过程中,成对的上皮性体节以一种渐进的方式从原节中胚层(PSM)前端出芽形成,具有严格的物种特异性周期。该过程的周期性由一种称为“分节时钟”的分子振荡器调控,该振荡器作用于PSM细胞中。此“时钟”驱动基因表达在PSM中沿后-前方向呈现周期性振荡模式。这些所谓的时钟基因是三个信号通路的关键组分:Wnt、Notch和成纤维细胞生长因子(FGF)。此外,Notch信号对于相邻细胞间胞内振荡的同步化至关重要。我们最近对这一机制调控方式有了新的认识。当配体激活时,Notch受体被切割,释放其胞内结构域(NICD),后者进入细胞核并调控基因表达。NICD具有高度不稳定性,其依赖磷酸化的降解过程可限制Notch信号的持续时间。已知NICD在PSM中的生成(和降解)呈振荡模式,且其表达模式类似于时钟基因。我们最近报道了介导细胞间耦合的Notch受体及其Delta配体在mRNA和蛋白质水平均表现出动态表达。本文中,我们描述了所使用的高灵敏度检测方法和详细的图像分析工具,并结合自主设计的计算模型,从表达周期的不同时间点提取并叠加表达数据。这使我们能够构建出在整个振荡周期中受体、配体以及Notch靶标时钟基因动态表达的时空图谱。本文还介绍了PSM组织外植体的制备与培养方案,以及对mRNA或蛋白质进行染色的实验流程。同时,我们解释了如何对共聚焦图像进行后续的计算分析并按时间顺序排列,从而生成时钟基因表达快照的有序序列,即下文定义的“kymograph”(时空表达图),用于可视化Delta样1蛋白(Dll1)和Notch1在整个PSM中的时空表达模式。
引言
体节是发育中的脊椎动物体轴伸长过程中形成的最初节段,是脊柱、肋骨和真皮组织以及肌肉和内皮细胞的前体。在体节形成过程中,上皮性体节由未分节的前体节中胚层(PSM)发育而来(参见文献1综述)。该过程受“"分节时钟"调控,分节时钟由一组振荡基因和蛋白质构成的网络组成,其中大部分属于Notch信号通路。分节时钟包含多种负反馈环路,可在单个细胞内实现Notch活性的脉冲式产生2(参见文献3–6综述)。尽管细胞内振荡机制已被充分表征,但这些振荡如何在PSM组织中实现跨细胞协调仍不清楚。最近通过实验和理论研究均表明,这些振荡对体节形成过程至关重要,且Notch通路在分节过程及振荡基因表达中均发挥关键作用7,8。然而,已有大量报道指出,Notch受体1(Notch1)和类Delta配体(Dll)-1在PSM中呈现静态梯度分布9,10,11。
我们假设,体节发生钟在胚体后部(PSM)的节律性振荡依赖于主要Notch信号通路受体和配体Notch1与Dll1在小鼠PSM中周期性的激活。此前有研究报道这些蛋白存在静态的头-尾梯度,而我们认为,该结论是由于免疫染色技术的灵敏度不足所致,因此无法检测到PSM尾部区域Dll1和Notch1的低水平波动。
我们设计了一种方法,可更深入地研究这些因素,将实验数据与数学建模相结合,以预测节律蛋白在体节前体区(PSM)中协调振荡的潜在机制12。
本方法的总体目标是检测并量化体节前区(PSM)中低水平、动态的蛋白质表达,并根据已知的钟控基因Lunatic fringe(Lfng)的表达模式,绘制目标蛋白的表达谱。由于小鼠胚胎中分节钟的一个周期需要2小时才能完成,因此需要多种样本,以构建在PSM中一个Lfng振荡周期内Dll1和Notch1蛋白表达的完整时空分布图谱。为此,我们开发了本实验方案,以实现对整体胚胎中完整且对侧分离的PSM外植体进行高通量的低丰度蛋白表达检测。然而,该技术也可适用于旨在研究任何可被分离为对侧两半的胚胎组织中低水平蛋白动态变化的研究。
方案
所有实验均在项目许可证号6004219下进行,严格遵守1986年《动物(科学程序)法》及英国政府内政部《科学程序中使用动物的实践规范》。
1. PSM 外植体解剖
- 从野生型(CD1)小鼠定时交配所产生的胚胎中获取尾部组织13简而言之,在胚胎发育第10.5天(E10.5),将怀孕的供体小鼠置于二氧化碳箱中实施安乐死。取出子宫角,并将其放入含有1×无菌磷酸盐缓冲液(PBS)的容器中,操作需遵循英国内政部许可证规定或相应当地法规。将子宫角转移至含有新鲜无菌PBS的组织培养皿中。后续所有解剖步骤均在此溶液中进行。
- 在体视显微镜下,使用弯头剪刀剪开子宫角的厚实肌层膜,并用精细镊子小心取出每个胚胎。注意确保在此过程中不损伤尾部组织。使用弯头剪刀和精细镊子剥离每个胚胎的羊膜囊,注意避免损伤胚胎。
- 使用手术针或弯头剪刀,于胚胎后肢芽后方切断,以采集每个胚胎的尾部组织。
- 用镊子和针将尾部组织腹面朝下保持平衡。通过沿中线将胚胎尾部组织切分为两半,从每段胚胎尾部制备成对的体节前体组织(PSM)外植体;操作时用针轻轻 rocking(摇动)。确保神经管、脊索和体节前体组织在两个外植体之间均等分配。
- 将每个对侧PSM外植体用移液器接种到35 mm塑料培养皿盖的下表面,加入少量预热的(37 °C) 培养基(DMEM-F12 + 0.1% L-谷氨酰胺替代物,添加10%胎牛血清、10 nM人bFGF和1%青霉素/链霉素)。
- 将培养皿置于盖子上方,迅速倒置,使PSM组织悬挂在盖子下方的培养基“悬滴”中。将PSM外植体置于湿润的培养环境中培养 37 °C 1 - 2 小时。
- 将PSM外植体成对转移至24孔组织培养板的各个孔中。在室温(RT)下,用含4%多聚甲醛的PBS溶液固定1 h,或 4 °C 过夜(O/N)。 注意:聚甲醛具有毒性,使用该溶液时必须采取适当的安全防护措施。
注意:所有后续洗涤和孵育步骤均在24孔组织培养板中进行。 - 在室温下,于摇床上使用细塑料巴斯德吸管用 PBS 溶液清洗样本孔,更换新鲜 PBS 溶液,重复 3 - 4 次。每对 PSM 外植体中,一个用于免疫组织化学(步骤 2),另一个用于荧光标记 原位 已知生物钟基因的杂交(步骤 3)。
2. PSM 外植体的免疫组织化学
- 将步骤1中获得的每对胚胎来源的一个PSM外植体置于含2% Triton X-100的PBS中,在室温下于摇床上洗涤1小时,然后用PBS短暂漂洗样本。将样本中的PBS更换为封闭液(含2%牛血清白蛋白(BSA)和10%正常山羊血清(NGS)的PBS + 0.1% Tween-20),在4 °C下于摇床上孵育过夜。
注意:本节中后续所有洗涤和孵育步骤均需在室温下于摇床上进行,除非另有说明。可使用细尖塑料或玻璃巴斯德移液管轻松更换洗涤液。 - 将所需的一抗/一抗混合物用工作缓冲液(含0.1% BSA、0.3% NGS和0.2% Triton X-100的PBS)稀释。在本示例中,将Dll1和Notch1抗体按1:25比例稀释于工作缓冲液中。
注意:若使用其他抗体,则需优化以确定本步骤所需的合适稀释倍数。 - 将外植体在抗体溶液中于4 °C下于摇床上孵育3至5天。务必包括一些仅加入不含一抗的工作缓冲液的样本,作为二抗对照。
- 用移液器将一抗溶液回收至1.5 mL储存管中,并于4 °C保存。
注意:回收的一抗可根据所用抗体情况重复使用多次。 - 在室温下于摇床上,先用PBS对样本进行两次洗涤,每次5至10分钟;随后用含2% Triton X-100的PBS洗涤三次,每次10分钟。
- 将荧光标记的二抗/二抗混合物(与所用一抗匹配表位)用工作缓冲液稀释。可选:在此溶液中加入20 µg/mL Hoechst 33342以对细胞核进行复染。
注意:本步骤可能需要优化以确定合适的稀释倍数。在本示例中,通常使用1:400的稀释比例。 - 将二抗溶液在16 × g离心10分钟,以防止抗体聚集体形成。向每个样本孔中加入250至500 µL二抗溶液,注意避免使用最后几微升液体,因其可能含有抗体聚集体。
- 用锡箔纸包裹样本板以减少光照,在4 °C避光条件下于摇床上孵育样本3至5天。
- 在样本封片前,在室温下于摇床上用含0.1% Tween-20的PBS(PBST)洗涤两次,每次10分钟,再用PBS洗涤一次,持续5分钟(参见步骤4)。
3. 荧光 原位 PSM 外植体的杂交(FISH)
- 若保存于其他容器中,将剩余的对侧PSM外植体转移至24孔组织培养板的各个孔中。
- 在PBST中加入50%乙醇,于室温(RT)在摇床上洗涤样品10分钟,随后在100%乙醇中于摇床上洗涤两次,每次10分钟,以脱水组织。
注意:除非另有说明,本节中所有后续洗涤和孵育步骤均需在室温下于摇床上进行。 - 用含50%乙醇的PBST洗涤10分钟以重新水化组织,随后在PBST中洗涤两次,每次5分钟。
注意:步骤3.2和3.3是本实验方案必需的固定步骤,不可省略。 - 将样品在含0.1% Tween-20的PBS(PBST)中加入10 µg/mL蛋白酶K,于无振荡条件下孵育5分钟。迅速去除蛋白酶K,并用PBST短暂冲洗样品,随后在含4%甲醛和0.1%戊二醛的PBST中后固定组织30分钟。注意:甲醛和戊二醛均有毒性,操作时必须采取适当的安全防护措施。
注意:以下涉及50%和100%杂交液的洗涤和孵育步骤(步骤3.6–3.9)应在无振荡条件下进行。 - 在PBST中洗涤样品两次,每次10分钟,然后在室温下用50%杂交液(适用于内含子探针:50%甲酰胺、5×柠檬酸钠-氯化钠(SSC)、5 mM EDTA、50 µg/mL tRNA、0.2% Tween-20、0.1% SDS和100 µg/mL肝素)的PBST溶液中洗涤一次。将样品在65 °C无振荡条件下孵育10分钟。
- 用预热(65 °C)的杂交液快速冲洗样品两次,然后将样品在65 °C的杂交液中孵育≥2小时(最长可达48小时)(较长的孵育时间可提高信噪比)。去除上一步的杂交液,替换为0.25–0.5 mL预热(65 °C)的杂交液,其中含有针对已知节律钟组分的地高辛(DIG)标记反义RNA探针。
注意:例如,使用浓度为20 µL/mL的内含子Lunatic fringe(Lfng(i))探针检测新生的Lfng mRNA。本步骤中探针的稀释比例取决于具体探针,需进行优化。 - 用封口膜密封培养板以防止蒸发,并将样品在65 °C下于探针溶液中孵育两个夜晚。
- 使用细尖塑料巴斯德移液管回收探针以重复使用,并于20 °C保存。用预热(65 °C)的杂交后溶液(50%甲酰胺、0.2% Tween-20和1× SSC)快速冲洗样品两次,随后在预热的杂交后溶液中于65 °C再洗涤两次,每次20分钟。
- 在预热的含0.1% Tween-20的Tris缓冲盐溶液(TBST)中加入50%杂交液,于65 °C洗涤样品15分钟。用TBST冲洗样品两次,随后在摇床上于室温下用TBST洗涤30分钟。
- 将外植体在封闭液(TBST + 2%封闭缓冲液试剂(BBR)+ 20%热灭活山羊血清)中预孵育至少2小时。更换为新鲜封闭液,其中加入1:200稀释的辣根过氧化物酶(HRP)标记抗地高辛抗体。于4 °C孵育过夜(O/N)。
- 抗体孵育后,在室温下用TBST冲洗样品三次,然后将其转移至新的24孔组织培养板的各个孔中。用TBST洗涤外植体三次,每次1小时。
- 此时,将样品转移至0.5 mL储存管或48孔组织培养板的各个孔中,以减少后续酪酰胺信号放大(TSA)检测试剂所需的体积。
- 使用尽可能小的体积,在TSA扩增缓冲液(见试剂列表)中于室温无振荡条件下孵育样品1分钟,确保样品完全浸没于溶液中。
- 将TSA试剂(见试剂列表)以1:50的稀释比例加入样品扩增缓冲液中。迅速混匀,使TSA试剂均匀分布,用锡箔纸包裹培养板或管子,并在避光条件下孵育60–90分钟。
- 去除TSA扩增溶液,用TBST洗涤样品三次,每次5分钟。将外植体转移回24孔组织培养板以增加洗涤体积,并在含1%过氧化氢的TBST中孵育1小时。用TBST洗涤三次,每次5分钟,再用PBST洗涤两次,每次5分钟,然后进行样品封片(见步骤4)。
4. 成像样本制备
- 为每对组织块准备一张带电荷的粘附玻片,方法是在玻片上添加厚度为0.12 mm的成像间隔垫,以防止盖玻片压碎样本。从间隔垫的一侧移除粘性衬垫,并将有粘性的一面朝下贴到玻片上,用力按压以确保间隔垫与玻片密封。
注意:在后续步骤中,应尽量使样本处于低光照或黑暗环境中,以避免荧光漂白。使用玻璃巴斯德吸管将组织块对吸取并滴加至已准备好的玻片上,位于间隔垫中心区域,确保组织块的解剖面朝向玻片。将对侧配对的组织块并排排列。 - 使用玻璃巴斯德吸管尽可能吸除玻片上的液体,并用折叠的无尘纸轻轻吸去样本周围残留的水分。
- 让样本在玻片上粘附45–60秒,直至组织呈现粘稠且半透明状。在此期间,使用镊子移除间隔垫上剩余的粘性衬垫。注意不要让样本干燥。
- 在间隔垫中心区域的样本上加入一大滴兼具封片与透明功能的溶液(含0.5%对苯二胺和20 mM Tris,pH 8.8,溶于90%甘油中)。注意:该溶液在氧化后会变为棕色或黑色。
- 小心地将圆形盖玻片(1.5号)覆盖在样本上方,确保封片液均匀分布,并且盖玻片的所有边缘均与间隔垫接触。将加好盖玻片的玻片倒置放置在无尘纸上。
- 用力按压,确保盖玻片完全粘附于间隔垫,并挤出多余的封片液。重复按压过程,直至无更多封片液渗透到纸上。
- 适当清洁并标记玻片,并在避光条件下保存,短期可存放于-20 °C,长期则存放于-80 °C。取出玻片进行成像前,需使其完全解冻。
- 使用共聚焦显微镜对封片后的样本进行成像,采用拼接图像采集模式和高倍物镜。使用40X油镜物镜,以4-µm的z轴步长,分别利用488-nm、568-nm和647-nm激光激发本研究中用于蛋白和mRNA检测的绿色、红色和远红荧光染料12。
注意:拼接图像在采集后通过软件拼合为单一图像用于分析。
5. 采集后图像分析
- 使用图像分析软件在每个实验样本的体节中定义感兴趣区域。
- 为了量化表达水平,在进行后续定量之前,需减去背景并以无一抗对照样本的水平对图像进行阈值处理。为每个样本定义一个原点、一个轴和一个单位长度。
- 计算 M 个样本中每个样本沿标准化头尾轴位置的荧光强度12。在对强度图进行归一化后,将强度曲线并列排列,得到一个强度矩阵 f(i,j),用于描述第 jth 样本中第 ith 空间位置的强度。
6. 样本的时间顺序排列
- 为了推断已知生物钟组分的时间顺序,首先定义其强度矩阵,然后重新排列该强度矩阵的列,以获得一个时间上具有周期性的模式。为此,定义以下函数
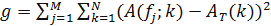
其中 A(fjk) 表示自相关函数的 jth 柱 f 和 AT 是一个目标自相关函数,用于强加模式的时间周期性,其表达式为
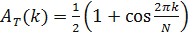
- 使用 Metropolis-Hastings 算法(或其他最小化算法)12 确定使该函数最小化的样本顺序 g因此,确定 M 个样本的排序,以最大化已知时钟组分的时间周期性。
- 根据推断出的 M 个样本的时间顺序,构建配对通道中表达模式的有序延时图像12.
结果
本方案可实现小鼠体节发生区(PSM)中目标蛋白与生物钟基因转录的时空分布可视化12。例如,Dll1(图1A-C)和 Notch1(图1D-F)蛋白的表达显示出与Notch信号通路调控的节段时钟基因Lfng新生转录不同步的振荡模式。通过量化Dll1、Notch1和Lfng(i)信号强度沿PSM前后(AP)轴的分布(图1G),可清晰揭示这些靶标分子的振荡表达动态(图1H-J)。本方案结合高分辨率固定组织图像数据的采集后图像分析,能够清晰地可视化并量化整个时钟周期中Dll1和Notch1蛋白表达的时空表达谱。
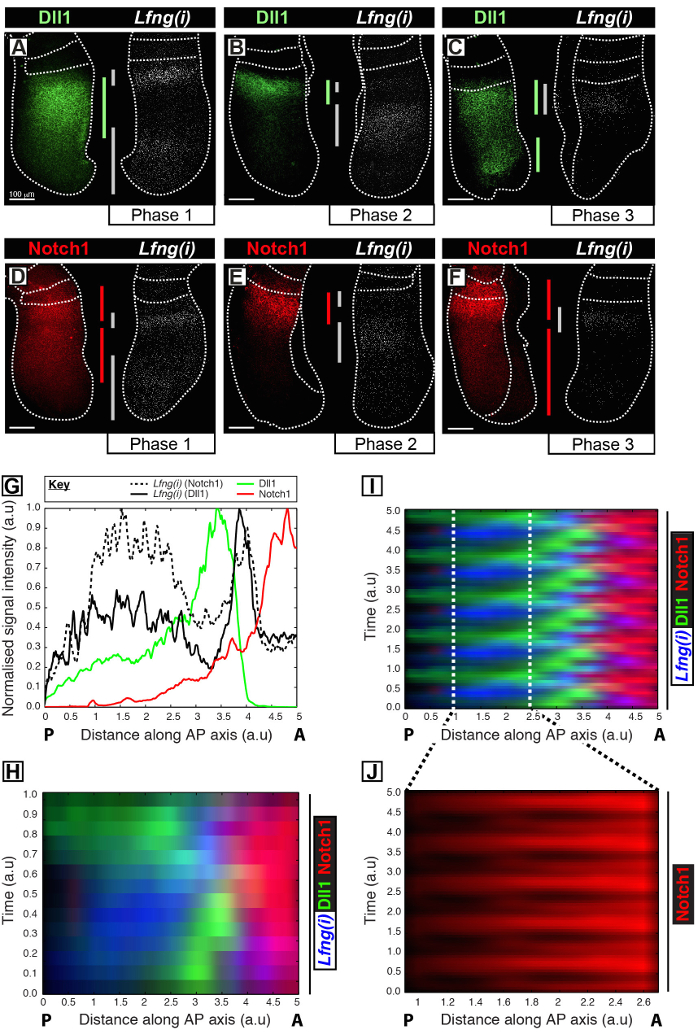
图 1:Dll1 与 Notch1 蛋白表达动态的时空可视化与定量分析。 (A-F)来自六个 E10.5 胚胎的成对体外培养组织(A-F),显示 Dll1 蛋白(A-C)或 Notch1 蛋白(D-F)在一侧半胚中的空间分布,以及相应对侧半胚中 Lfng 前体 mRNA(Lfng(i))的检测结果。各图按体节时钟周期的第 1 相(A 和 D)、第 2 相(B 和 E)和第 3 相(C 和 F)排列,相位由 Lfng(i) 表达的空间分布确定。沿体节中胚层(PSM)前后轴方向,Dll1(绿色)、Notch1(红色)和 Lfng(i)(灰色)表达区域的范围以对应颜色的条形标示。虚线标示了最近形成体节的位置、PSM 的外缘以及相邻的神经组织(C 和 E)。比例尺(每张图左下角,A-F)为 100 µm。(G)一个强度图示例,展示沿 PSM 轴向信号强度的变化。数据来自两对体外培养组织:一对显示一个培养物中的 Lfng 前体 mRNA(黑色虚线)与对侧培养物中的 Notch1 蛋白(红色)比较(胚胎 1);另一对显示另一个培养物中的 Lfng 前体 mRNA(黑色实线)与对侧培养物中的 Dll1 蛋白(绿色)比较(胚胎 2)。测得的信号强度(y 轴)随轴向位置(x 轴;PSM 前部 [A] 在右侧,后部 [P] 在左侧)绘制。(H)一个时空图(kymograph),展示多个 PSM 中 Dll1、Notch1 和 Lfng(i) 的空间分布。时空图的每一行代表单个 PSM 培养物的信号强度,各行按 Lfng 前体 mRNA 的时空分布顺序排列。(I)通过周期性延展(H)中所示数据,模拟多个时钟振荡过程中 Dll1、Notch1 和 Lfng(i) 的时空分布,突出显示 Dll1 与 Notch1 表达动态的振荡特性。(J)通过放大(I)中虚拟时空图中标示的区域,突出显示尾部 PSM 中 Notch1 蛋白的脉冲式表达。改编自参考文献 12。请点击此处查看该图的放大版本。

图 2: Dll1 与 Notch1 蛋白表达时空动态的定量分析。(A)一个强度图示例,显示体节前体区(PSM)中信号强度的轴向变化。数据来自两对分离的外植体,其中一对外植体的一半显示Lfng前体mRNA(黑色虚线),与其对侧半片外植体中的Notch1蛋白(红色)相对比;另一尾部外植体的一半显示Lfng前体mRNA(黑色实线),与其对侧半片外植体中的Dll1蛋白(绿色)相对比。测得的信号强度(y轴)按轴向位置(x轴;头端[A]在右侧,尾端[P]在左侧)绘制。(B-H)动态图谱(kymographs)展示了Notch1、Dll1、NICD和Lfng(i)在多个PSM中的空间分布。(B和C)PSM切片中NICD(B)和Dll1(C)的表达;(D和E)对侧外植体半片中Lfng(i)(D)和Dll1(E)的表达;(F和G)对侧外植体半片中Lfng(i)(F)和Notch1(G)的表达。引自参考文献12。请点击此处查看该图的放大版本。
讨论
方案中的关键步骤
本方案描述了一种灵敏的方法,用于对 E10.5 小鼠体节前区(PSM)外植体中低水平蛋白表达及振荡动态进行定量分析。该方法包含一套可靠的免疫组织化学与荧光检测流程。 原位 杂交(FISH)后,进行高分辨率整体共聚焦成像,随后对显微图像进行分析及时间序列分段,以生成体节前区(PSM)中蛋白质表达的时空图谱。蛋白和mRNA检测中较高的信噪比对于该技术的成功至关重要。在洗涤步骤中必须确保所有溶液充分更换,并在步骤3的相关阶段维持65 °C洗涤温度。在启动本方案前,应投入时间筛选针对目标分子的高效抗体和RNA探针,并在整体样本上对这些试剂进行充分验证,这将带来显著优势。
修改与故障排除
在执行本方案时可能遇到的主要问题源于信号检测的强度和质量不佳。这在很大程度上取决于用于免疫组织化学或FISH步骤的抗体或RNA探针的有效性。在获得足够的信号检测效果之前,可能需要对多个不同步骤进行优化。信号检测效果差的一个常见原因是固定不当;必须使用新鲜的PFA,或在4 °C下储存不超过一周的PFA来固定样品。固定的时长也可能需要根据所使用的抗体或RNA探针进行优化。对于抗体,建议尽可能遵循制造商的说明;而对于RNA探针,我们建议参考已发表的文献。
在本研究中,我们使用了一种RNA探针,可特异性检测生物钟基因Lfng的前体mRNA(pre-mRNA)。由于其相对丰度较低,为获得良好的信号检测效果,检测Lfng pre-mRNA需要在含有5×柠檬酸钠-氯化钠(SSC)的杂交缓冲液中与探针进行较长时间的孵育。相同的条件可能也适用于其他检测低表达mRNA的探针;但根据我们的经验,检测更稳定的mRNA靶标时,可能需要缩短探针杂交时间,并降低杂交缓冲液中的SSC浓度(例如,1.3×SSC)。对于免疫组织化学和FISH实验,该方案必须首先在整体胚胎上进行优化,并通过实验经验确定抗体或探针的最佳浓度。
技术的局限性
如上所述,该技术的成功高度依赖于蛋白质和 mRNA 检测的质量。我们已列出若干改进蛋白质和 mRNA 检测的建议,但如果无法实现高质量的荧光信号检测,则实验将无法进行。每个组织样本中可分析的蛋白质靶标数量受限于共聚焦显微镜的光谱分辨率以及所用抗体的表位。在本研究中,我们能够在每个样本上同时使用最多三个表位进行蛋白质检测,并结合一种 DNA 染料12。本方案仅允许检测一个 mRNA 靶标,尽管可采用当前其他替代方法将可检测的 mRNA 靶标增至最多三个14。
该技术相对于现有/替代方法的重要性
本文所述方法提供了一种灵敏的技术,用于检测整体尾芽组织(PSM)外植体中低水平的蛋白质波动。通过在相应的对侧外植体中对已知的钟基因(clock gene)进行荧光原位杂交(FISH),可实现对这些动态变化的量化分析。该方法生成一系列延时图像(kymograph),可按一个体节时钟周期进行排列,从而突出显示目标分子在此时间范围内的时空表达动态。该技术与其他方法的一个关键区别在于采用了计算自动化手段对大规模数据集进行时间排序,使得对新型时钟组分的时空表达动态能够以无偏倚的方式进行分析。例如,该技术揭示了Dll1和Notch1蛋白及其振荡在整个PSM中是如何共调控的。在此背景下,其他替代方法也曾依赖免疫染色技术,但未能检测到本方法中明显可见的尾部PSM中Dll1和Notch1蛋白水平的微小波动。相反,这些研究报道了一种稳定的表达梯度,其在头部区域最强9,10,11。这可能是因为本方案中的一抗孵育时间较长(3至5天,而非过夜),这可能是检测低水平蛋白所必需的。由于Dll1和Notch1在PSM头部区域的表达水平相对较高,研究者可能因此选择以较低曝光参数成像,从而影响了尾部蛋白表达的检测灵敏度。另一个潜在差异源于Chapman et al. 的研究中使用了未固定的组织,其中尾部PSM中Dll1和Notch1的瞬时表达可能未能得到良好保存9。
掌握该技术后的未来应用或发展方向
一旦掌握本实验方案,即可对体节前体组织(PSM)中任何目标蛋白进行高通量表达分析。可同时处理来自多窝小鼠的PSM外植体,以获得分析所需的大量样本。尽管本研究中仅使用了野生型胚胎,但也可采用基因修饰胚胎进行此类分析,以评估一个或多个因子在蛋白表达动态中的重要性。除PSM外,本方案还可适用于其他由左右对侧半部分组成的体系,用于灵敏检测低水平蛋白表达及振荡动态。一个可借鉴本方案的例子是小鼠神经管中动态蛋白表达的研究,因为可将神经管分为对侧两半进行培养,且已有研究表明Notch信号通路在其中不仅存在,而且对模式形成具有重要作用15。我们鼓励其他研究团队将本方案拓展至其他体系,并为今后的优化提供反馈意见。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了医学研究委员会(MRC)授予 RAB 的博士生奖学金、医学研究委员会(MRC)授予 CSLB 的博士生奖学金,以及惠康基金会(WT)授予 JKD 的项目资助(WT089357MA)。本工作还获得了惠康基金会战略奖(097945/Z/11/Z)的支持。我们感谢 E. Kremmer 博士惠赠 Dll1 抗体,以及 O. Pourquie 博士惠赠 Lfng RNA 探针。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMEM-F12 | Gibco (ThermoFisher Scientific) | 11320033 | |
| GlutaMAX™-1 (100x) | Gibco (ThermoFisher Scientific) | 35050 | |
| 胎牛血清,经鉴定,符合欧盟标准,南美来源 | Gibco (ThermoFisher Scientific) | 10270106 | |
| 重组人碱性成纤维细胞生长因子(154个氨基酸) | Peprotech | 100-18B | |
| 青霉素/链霉素 | Gibco (ThermoFisher Scientific) | 15140122 | |
| 抗小鼠单克隆Notch1抗体^ | BD Pharmingen | 552466 | |
| 抗大鼠多克隆Dll1抗体^* | N/A | N/A | |
| Lfng 内含子反义RNA探针^* | N/A | N/A | |
| 16% 多聚甲醛 | Pierce (ThermoFischer Scientific) | PI28908 | |
| 蛋白酶K,重组,PCR级 | Roche (Sigma-Aldrich) | 31158 | |
| 磷酸盐缓冲液(PBS),pH 7.4 | 实验室自制 | N/A | |
| 吐温-100(Triton-X 100) | Sigma-Aldrich | T8787 | |
| 牛血清白蛋白(BSA) | Sigma-Aldrich | 5470 | |
| 正常山羊血清(NGS)(热处理) | Gibco (ThermoFisher Scientific) | 16210072 | |
| Hoechst 33342 | ThermoFischer Scientific | H3570 | |
| 吐温-20(Tween-20) | Sigma-Aldrich | P9416 | |
| 乙醇 | Sigma-Aldrich | 46139 | |
| 戊二醛 | Sigma-Aldrich | 340855 | |
| 甲酰胺 | Sigma-Aldrich | F9037 | |
| 柠檬酸钠-生理盐水(SSC) | Sigma-Aldrich | 93017 | |
| EDTA | Sigma-Aldrich | 798681 | |
| tRNA | Roche (Sigma-Aldrich) | 101095 | |
| 肝素 | Sigma-Aldrich | H3149 | |
| Tris缓冲生理盐水(TBS) | 实验室自制 | N/A | |
| 封闭缓冲液试剂 | Roche (Sigma-Aldrich) | 11096176001 | |
| 抗DIG辣根过氧化物酶(HRP)偶联抗体 | Roche (Sigma-Aldrich) | 11207733910 | |
| 酪胺信号放大(TSA)试剂盒 | Perkin Elmer | NEL744001KT | |
| *本研究中使用的Dll1抗体和RNA探针未商业化供应。请参见致谢部分以了解来源。 | |||
| ^读者应根据自身研究兴趣选择适用的抗体/RNA探针。 |
参考文献
- Oates, A. C., Morelli, L. G., Ares, S. Patterning embryos with oscillations: structure, function and dynamics of the vertebrate segmentation clock. Development. 139 (4), Cambridge, England. 625-639 (2012).
- Krol, A. J., Roellig, D., et al. Evolutionary plasticity of segmentation clock networks. Development. 138 (13), Cambridge, England. 2783-2792 (2011).
- Dequéant, M. -L., Ahnert, S., et al. Comparison of Pattern Detection Methods in Microarray Time Series of the Segmentation Clock. PLoS ONE. 3 (8), 2856(2008).
- Bailey, C., Dale, K. Somitogenesis in Vertebrate Development. , John Wiley & Sons, Ltd. Chichester, UK. 1-15 (2015).
- Maroto, M., Bone, R. A., Somitogenesis Dale, J. K. Somitogenesis. Development. 139 (14), Cambridge, England. 2453-2456 (2012).
- Kageyama, R., Masamizu, Y., Niwa, Y. Oscillator mechanism of notch pathway in the segmentation clock. Developmental Dynamics. 236 (6), 1403-1409 (2007).
- Ferjentsik, Z., Hayashi, S., et al. Notch Is a Critical Component of the Mouse Somitogenesis Oscillator and Is Essential for the Formation of the Somites. PLoS Genetics. 5 (9), 1000662(2009).
- Wiedermann, G., Bone, R. A., Silva, J. C., Bjorklund, M., Murray, P. J., Dale, J. K. A balance of positive and negative regulators determines the pace of the segmentation clock. eLife. 4, 05842(2015).
- Chapman, G., Sparrow, D. B., Kremmer, E., Dunwoodie, S. L. Notch inhibition by the ligand DELTA-LIKE 3 defines the mechanism of abnormal vertebral segmentation in spondylocostal dysostosis. Human Molecular Genetics. 20 (5), 905-916 (2011).
- Sparrow, D. B., Chapman, G., et al. A Mechanism for Gene-Environment Interaction in the Etiology of Congenital Scoliosis. Cell. 149 (2), 295-306 (2012).
- Okubo, Y., Sugawara, T., Abe-Koduka, N., Kanno, J., Kimura, A., Saga, Y. Lfng regulates the synchronized oscillation of the mouse segmentation clock via trans-repression of Notch signalling. Nature communications. 3, 1141(2012).
- Bone, R. A., Bailey, C. S. L., et al. Spatiotemporal oscillations of Notch1, Dll1 and NICD are coordinated across the mouse PSM. Development. 141 (24), Cambridge, England. 4806-4816 (2014).
- Shea, K., Geijsen, N. Dissection of 6.5 dpc mouse embryos. Journal of Visualized Experiments. (2), 160(2007).
- Denkers, N., García-Villalba, P., Rodesch, C. K., Nielson, K. R., Mauch, T. J. FISHing for chick genes: Triple-label whole-mount fluorescence in situ hybridization detects simultaneous and overlapping gene expression in avian embryos. Developmental Dynamics. 229 (3), 651-657 (2004).
- Stasiulewicz, M., Gray, S. D., et al. A conserved role for Notch signaling in priming the cellular response to Shh through ciliary localisation of the key Shh transducer Smo. Development. 142 (13), Cambridge, England. 2291-2303 (2015).
重印与许可
