活体共聚焦成像为生物学家研究发育过程提供了强有力的工具。本文中,我们介绍了一种对发育中的拟南芥(Arabidopsis)花进行活体共聚焦成像的详细实验方案。
本文内容
摘要
摘要
植物生长与发育的研究长期以来依赖于使用死亡且固定的组织进行实验,缺乏适当的细胞分辨率。近年来,共聚焦显微镜技术的进步,结合多种荧光染料的开发,已克服了这些问题,使得在活体样本中以较高的细胞分辨率同时研究多个基因的表达成为可能。活体共聚焦成像为植物生物学家提供了研究发育过程的有力工具,已被广泛用于研究根的生长以及茎尖分生组织侧面侧生器官的形成。然而,该技术在花发育研究中的应用尚不广泛,部分原因在于花成像所特有的挑战,例如萼片在花分生组织上方生长,会过滤掉下层组织的荧光信号。本文中,我们提供了一套详细的实验方案,用于在活体发育中的拟南芥花芽上进行活体共聚焦成像,可使用正置或倒置显微镜完成。
引言
植物体的大部分结构是在胚胎发育后形成的,起源于茎和根尖端或近尖端的干细胞群,即顶端分生组织。成年植物所有地上部分的结构均来自茎顶端分生组织(SAM),该组织在其侧面持续产生侧生器官:在营养生长期产生叶,在转入生殖生长期后则产生花分生组织(FMs)。花分生组织进一步发育为花朵。拟南芥的茎顶端分生组织以迭代式螺旋模式逐个产生侧生器官,而花分生组织则以部分同步的方式在四个轮生结构中同时启动多个发育程序,形成四种类型的花器官。尽管控制不同花器官身份特化的遗传调控网络已得到部分解析(综述见参考文献1,2),但花发育的许多方面,如花器官的定位以及各轮之间边界的建立,仍知之甚少。
早期植物发育的分子遗传学研究主要依赖于诸如 原位 杂交与GUS报告基因分析基因表达。尽管这些方法提供了大量信息,并极大地促进了我们对植物生长和花发育的理解,但仍存在重要局限性:它们缺乏良好的细胞分辨率,难以在同一材料中轻松观察多个基因的表达模式,更重要的是,仅能应用于死亡且固定的组织。近年来共聚焦显微镜技术的进步已克服了这些局限,为发育生物学家提供了研究植物形态发生过程的有力工具。特别是共聚焦显微镜能够实现对活体组织和器官在其形成过程中进行连续观察,这对于全面理解发育这一本质上的动态过程至关重要。
活体共聚焦成像已被广泛用于分析植物地上部分的生长以及顶端分生组织(SAM)产生侧生器官的过程例如 参考文献3,4,5,6),但少数报道除外(例如 参考文献7,8,9,10),但尚未被广泛应用于花发育的研究。已有针对茎尖分生组织(SAM)的活体共聚焦成像方案(例如 参考文献11,12),并为如何对包围SAM的发育中花芽进行成像提供了良好基础。然而,对花芽成像存在特定挑战:例如,花芽会迅速变得比SAM更大,且在第4阶段,萼片开始覆盖FM(阶段划分参见参考文献)13),并减弱来自深层组织的荧光信号(图2A)。本文提供了一项详细方案,介绍如何使用正置或倒置显微镜配合浸水物镜对发育中的拟南芥花芽进行活体共聚焦成像。我们此前已在参考文献中发表过该方案14.
方案
1. 培养基与培养皿的准备
- 通过将圆形塑料培养皿(直径约 6 cm,深约 2 cm)中加入 2% 琼脂糖至 0.5 cm 高度,制备解剖用培养皿。
- 制备成像培养皿。
- 对于直立式共聚焦显微镜,将矩形塑料铰链盒(长约 7 cm,宽约 4.5 cm,深约 3 cm)中加入成像培养基至 0.5 cm 高度(见第 1.3 节“成像培养基”;图 1F)。
- 对于倒置共聚焦显微镜:将小型培养皿(直径约 3.5 cm,深约 1 cm)完全加满成像培养基(见第 1.3 节“成像培养基”;图 1G)。
- 制备成像培养基。
- 单点成像时,使用 1% 琼脂糖。
- 延时实验时,使用顶端生长培养基(0.5× Murashige 和 Skoog 基本盐混合物不含维生素,1% 蔗糖,0.8% 琼脂糖,用氢氧化钾溶液调节 pH 至 5.8,并添加维生素 [0.01% myo-肌醇,0.0001% 烟酸,0.0001% 盐酸吡哆醇,0.001% 盐酸硫胺素,0.0002% 甘氨酸] 和细胞分裂素 [500 nM N6-苄基腺嘌呤])15。
2. 植物生长
- 在含有适当筛选剂的MS平板(0.5或1倍Murashige和Skoog基本盐混合物,不含维生素,0.8%琼脂,用氢氧化钾溶液调节pH至5.8)上播种已灭菌的种子。将平板置于长日照(16小时光照)或连续光照、16-22 °C条件下培养两周。
- 将幼苗移栽至土壤中,保持足够间距以促进健壮生长。将植株置于短日照、16-22 °C条件下培养三周。
注意:移栽后直接在长日照或连续光照条件下培养会导致过早开花,花序活力较弱,且更难进行解剖。同样,若在短日照条件下培养超过三周,则会导致不受日照长度影响的开花现象,且花序活力减弱。 - 将植株转移至长日照(16小时光照)或连续光照、16-22 °C条件下培养,直至开花。当花序长度为2-10 cm时,茎尖最易于解剖。
3. 茎尖的解剖
- 可选:使用细磨石和一滴轻质油,在体视显微镜下将镊子尖端磨成刀刃状而非针状。
- 用镊子推动花序梗基部,直至其折断,从而去除主花序上的角果、较老的花蕾和侧生花序。在无需放大观察的情况下尽可能多地去除花朵(图1,比较 A 和 B)。
- 用镊子在解剖培养皿的琼脂糖中刺一个垂直孔,切掉花序末端约 0.5 cm,然后将其垂直插入琼脂糖中。剩余的花蕾必须位于琼脂糖表面以上。
- 向成像培养皿中加入无菌去离子水,使茎尖完全浸没。将解剖培养皿置于体视显微镜下,用 1,000 µL 移液器产生水流,以清除茎尖周围 trapped 的空气(图1,比较 C 和 D)。
- 在体视显微镜下,用镊子推动不需要成像的花蕾的花梗基部或花蕾顶部,直至花梗断裂,从而去除这些花蕾(图1E)。关键是要使花梗在与茎连接处干净地折断,因为残留的花梗会妨碍后续幼小花蕾的去除。
- 如果仅对第 5 阶段及更早阶段的花蕾进行成像(图2A),则在解剖第 6–8 阶段花蕾前先移除水分;如果要对第 5 阶段及更晚阶段的花蕾进行成像,则继续进行萼片消融操作(见第 5.1 节);否则,进入步骤 3.7。
- 用镊子在成像培养皿的培养基中刺一个垂直孔,将已解剖的茎尖垂直插入培养基中,使仅茎顶端分生组织及其周围的花蕾露出培养基表面。根据需要成像的花蕾位置,可能需要轻微倾斜样品,因为花蕾的朝向不一定与茎完全一致(图2A)。
- 如需染色,请继续对样品进行染色处理。若不进行染色和/或不立即成像,则加入水并盖上成像培养皿以防止脱水。若使用倒置显微镜,应将成像培养皿放入透明塑料盒中并密封。

图 1:活体共聚焦成像用茎尖的制备。(A–E)用于成像的茎尖解剖过程。开花枝在去除角果和较老花朵前(A)和后(B)的状态。(C–D)解剖皿中浸于水中的茎尖,顶端带有气泡(C)以及去除气泡后(D)的状态。(E)解剖皿中已去除第5阶段以上花蕾后的茎尖。(F–G)在直立式(F)和倒置式(G)共聚焦显微镜载物台上成像皿中的茎尖视图。在(F)中,40倍水浸物镜位于其中一个茎尖上方,物镜尖端浸入水中。在(G)中,茎尖倒置于40倍水浸物镜上方,通过水柱将成像介质与物镜尖端相连。(F)中的插图显示红色矩形区域的高倍放大图像,其中茎尖已插入成像介质;红线和蓝线分别表示介质和水的表面。(H–I)两种自制装置示例,可用于向水浸物镜尖端补充加水:由火花塞套管制成的硅橡胶套管(H),以及用无粉乳胶手套手指部分临时制作的套管(I)。标尺 = 0.5 cm(A 和 B),0.1 cm(C 和 D),100 µm(E)。该图最初发表于参考文献14。请点击此处查看此图的放大版本。
4. 染色
注意:成像过程中,可分别使用碘化丙啶或FM4-64对细胞壁或质膜进行染色,以实现细胞水平的分辨率。或者,也可使用荧光蛋白标记质膜的报告基因品系6,16。
- 从成像培养皿中移除水,并确保培养基表面干燥,以避免染料被稀释。
- 在体视显微镜下,用10 µL移液器将20至30 µL的1 mg/mL碘化丙啶溶液或80 µg/mL FM4-64溶液滴加到已分离的顶端组织上。确保整个样品被染料覆盖,以实现均匀染色。
- 若使用碘化丙啶,染色2分钟;若使用FM4-64,则染色20分钟。
- 用无菌去离子水冲洗两次。
5. 萼片切除
注意:在第4阶段,萼片原基开始覆盖花分生组织(FM)。随着其生长,会遮挡来自下层组织的荧光,从而阻碍成像过程。可通过安装在持针器上的金属针手动去除萼片,或利用激光消融刚出现的萼片原基以阻止其生长。此外,在某些情况下也可使用突变体,例如 apetala1-1,该突变体中萼片缺失或被类似叶片的器官所替代,这些器官不会覆盖花分生组织,而花的中心部分仍能正常发育(图2F)17。
- 使用装有直金属针的螺丝锥对第5阶段及更晚阶段的花蕾进行萼片切除(图2,E1-E2)
- 将装有已解剖顶端的解剖皿置于体视显微镜下,并将放大倍数调至最大。将茎尖浸入无菌去离子水中,或者在解剖萼片过程中,使用1,000 µL移液器定期向茎尖滴加水以保持湿润。
- 使用螺丝锥将针头置于远轴萼片顶部,方向与茎尖呈切线方向。轻轻将萼片从茎尖方向推开,直至其从花蕾上断裂分离。
- 以类似方式处理近轴萼片,但应将萼片朝向茎尖方向推动。
- 以类似方式处理侧萼片,但针头应相对于茎尖呈辐射状定位,并将萼片向侧面推离花蕾。
- 将茎尖浸入无菌去离子水中数分钟,以防止脱水。
- 在第3-4阶段对萼片原基进行激光消融(图2,C5-D5)
- 将含有染色后已解剖顶端的成像皿放置在共聚焦显微镜载物台上。定位并聚焦于顶端,如同准备对其进行成像(参见第6节“成像设置”)。
- 使用激光消融系统软件定义消融区域,该区域对应于即将覆盖花分生组织之前萌发的萼片原基的顶部和尖端(通常,远轴和近轴萼片为第3阶段,侧萼片为第3阶段晚期/第4阶段早期)。
- 设置适当的激光功率和驻留时间,以消融足够数量的细胞,同时避免对下方组织造成过度损伤。通常情况下,根据所使用的激光消融系统不同,需通过试错法初步确定合适的参数,确保去除足够的细胞以防止萼片后续生长覆盖花分生组织,同时不影响花蕾其余部分。若激光功率和驻留时间过高,会导致花中心组织受损,影响其生长和/或存活。一旦确定合适参数,可在后续实验中重复使用。
注意:若初次消融效果不足,可在随后几天内进行第二次消融(图2,C4 和 D2)。
6. 成像设置
- 使用正置显微镜。
- 向装有已解剖茎尖的成像培养皿中加入无菌去离子水,使培养基表面被 2.5–5 mm 深的水覆盖(图 1F)。确保样本完全浸没在水中。
注意:使用正置显微镜成像时,可将多个茎尖置于同一成像培养皿中。然而,若成像过程超过一小时,碘化丙啶容易被稀释,部分样本在成像前可能需要重新染色。 - 将成像培养皿放置于显微镜载物台上(图 1F)。降低水浸物镜,同时升高载物台,使物镜尖端浸入水中。操作时需谨慎,避免压碎已解剖的茎尖或将物镜浸入成像培养基中。
- 若物镜尖端附着气泡,可用 1,000 µL 移液器产生水流将其清除。
- 在落射荧光照明下,通过 XY 控制器将其中一个已解剖的茎尖移至物镜视野中。通过目镜观察,并使用 Z 控制器对样本进行调焦。操作时应小心,避免压碎样本。
- 使用共聚焦显微镜软件,对准待成像的花芽进行放大,随后开始样本成像。
- 向装有已解剖茎尖的成像培养皿中加入无菌去离子水,使培养基表面被 2.5–5 mm 深的水覆盖(图 1F)。确保样本完全浸没在水中。
- 使用倒置显微镜。
- 使用 1,000 µL 移液器,在物镜尖端滴加一滴无菌去离子水。
- 将成像培养皿倒置持握,再用 1,000 µL 移液器向已解剖的茎尖上滴加一滴无菌去离子水。
- 将成像培养皿倒置放置于显微镜载物台上(图 1G)。操作时需小心,避免压碎样本。
- 在落射荧光照明下,通过 XY 控制器将已解剖的茎尖移至物镜尖端上方。使用 Z 控制器缓慢降低载物台,直至样本接触物镜尖端的水滴。此时应在物镜尖端与培养基之间形成一段水柱。
- 若未形成水柱,可小心地用 1,000 µL 移液器向样本处追加一滴水。可在物镜周围加装临时套管,以便在物镜尖端添加更多水,从而有助于水柱的建立与维持(图 1H 和 图 1I)。
- 在落射荧光照明下,通过目镜观察,并使用 Z 控制器对样本进行调焦。操作时应小心,避免压碎样本。
- 使用共聚焦显微镜软件,对准待成像的花芽进行放大,随后开始样本成像。
- 若进行延时成像实验,需在两次成像间隔期间将成像培养皿中的水倒出并密封,以防止样本脱水。将含有样本的成像培养皿置于长日照(16 小时光照)或连续光照、16–22 °C 的条件下培养。每次成像前需对样本重新染色。
注意:尽管发育中的花器官细胞分裂较快,但花分生组织中的细胞每两天分裂一次或两次,因此每隔 24 小时进行一次成像即可轻松追踪细胞谱系。如有需要,也可每六小时成像一次。
7. 成像参数的考量
注意:成像参数的设置在很大程度上取决于所使用的共聚焦系统。以下是对某些参数的建议,这些参数适用于任何共聚焦显微镜。有关成像参数的更多考虑,请参见讨论部分及参考文献14。
- 对于 XY 分辨率:使用 1,024 x 1,024 以获得良好的细胞分辨率。或者,使用 512 x 512 以缩短成像时间,但会降低分辨率。
- 对于 Z 分辨率:将步进大小设置为 0.5–1.5 µm。减小步进大小可提高 Z 轴分辨率,但会增加成像时间。
- 对于针孔:将针孔设置为 1–1.5 爱里单位。增大针孔可提高信号强度,但也会增加来自非焦平面的噪声。
8. 共聚焦数据的可视化
- 将花发育各时间点的静态图像制作成视频。
- 在软件中打开静态图像(jpeg 或 tif 格式)例如,FiJi。
- 前往图像 > 堆叠 > 图像合并为堆栈。打开的图像将被组合成一个堆栈。
- 如果堆栈中图像的顺序与时间顺序不一致,请使用 Stack Sorter 插件(Plugins > 堆叠 > 堆栈排序器)对它们进行重新排序。
- 要将图像序列转换为视频,请转到文件 > 另存为 > AVI.
结果
图2展示了表达不同荧光报告基因的活体拟南芥花芽的共聚焦Z轴层扫图像的不同视角,这些样本经碘化丙啶染色(图2,A-C5 和 G)或FM4-64染色(图2,E1-F),以实现清晰的细胞分辨率。大多数共聚焦系统能够同时成像两种发射光谱不重叠的荧光染料,例如GFP或YFP分别与碘化丙啶或FM4-64联合使用(图2A-2F)。性能更优的共聚焦系统还能够在同一样本中分离发射光谱部分重叠的多种荧光染料,例如GFP与YFP,以及dsRed与碘化丙啶(图2G)。
展示了三个延时实验的示例 图2 并在萼片切除后显示花芽正常发育,萼片切除采用激光消融系统进行(图2, C1-C5 和 D1-D5)或使用手钻和金属针手动操作(图2, E1-E2)。请注意图中所示的花蕾 图2, E1-E2 来自一个 superman-1 突变体植株,因此在第7阶段的花芽中心未观察到心皮原基。对图示花芽中 newly 出现的萼片原基进行激光消融 图2, C1-C5 阻止其覆盖FM,因此FM在5期仍可成像(图2, C5)。相反,在所示花蕾的情况下 图2, D1-D5,激光消融仅延迟了萼片的生长,但萼片最终仍生长并覆盖了第5阶段花分生组织的大部分区域(图2, D5相反,如果在激光消融过程中使用过高的激光功率和过长的停留时间,损伤会扩散到花的中心区域,影响其生长,有时甚至导致整个花蕾随后死亡。
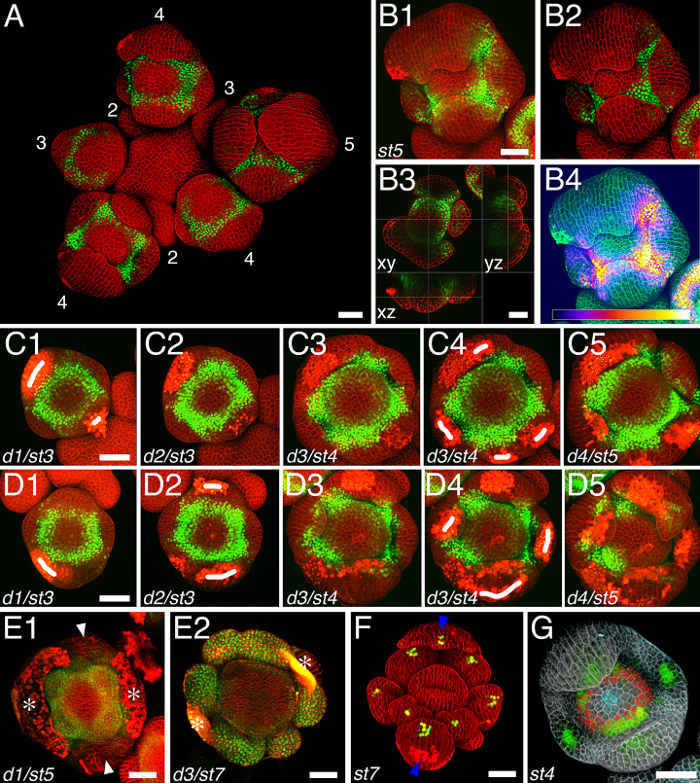
图 2:活体花蕾共聚焦Z轴层析成像的可视化。A 和 B2 为透明度视图;B1 和 B4-G 为最大强度投影;B3 为正交切片视图。(A-E2)表达 APETALA3 基因 Venus 报告基因(绿色)的花;细胞壁用碘化丙啶染色(红色,B4 除外,为绿色)。(A)花序;数字表示花发育阶段;第4和第5阶段花的萼片会遮挡 Venus 报告基因的荧光信号,该信号通常呈环状分布。注意部分花蕾相对于花序呈现倾斜状态。(B1-B4)同一第5阶段花蕾的共聚焦Z轴层析图像的四种不同视图:最大强度投影(B1 和 B4),其中 Venus 信号强度以绿色像素亮度编码(B1)或以“火焰”色彩编码(B4;色标位于图版底部);透明度视图(B2)和正交切片视图(B3;图中注明了XY、XZ和YZ切片方向)。(C1-C5)单个花蕾从第3阶段到第5阶段为期4天的时间序列成像;在第1天和第3天进行激光消融(标记为白色条纹),足以阻止第5阶段花蕾中心被萼片覆盖。(D1-D5)单个花蕾从第3阶段到第5阶段为期4天的时间序列成像;在第1、2、3天进行激光消融仍不足以阻止萼片覆盖花蕾中心。(E1-E2)人工去除远轴和近轴萼片(E1)以及全部萼片(E2)后的单个花蕾;白色箭头指示残留的萼片;白色星号指示去除萼片后留下的疤痕。(F)第7阶段 apetala1-1 突变体花表达 DR5-3xVenusN7 报告基因18(绿色);质膜用FM4-64染色(红色);蓝色箭头指示取代萼片的叶状结构,这些结构未覆盖花蕾中心。(G)第4阶段花蕾表达荧光GFP报告基因标记的 DORNROSCHEN-LIKE7(绿色)、Venus报告基因标记的 SUPERMAN(红色)以及dsRed报告基因标记的 CLAVATA319(青色);细胞壁用碘化丙啶染色(灰色)。d:天;st:阶段。比例尺 = 25 µm;B1、B2 和 B4,C1-C5 以及 D1-D5 中的比例尺相同。本图改编自参考文献14。请点击此处查看此图的放大版本。
讨论
本文提供了一种利用共聚焦显微镜和水浸物镜对活体发育中的拟南芥花芽进行成像的实验方案。该方法既可在正置显微镜上完成,也可在倒置显微镜上完成,但使用前者更为简便快捷。值得注意的是,不同的共聚焦系统在成像速度、灵敏度以及波长分离能力方面存在显著差异。目前最先进的共聚焦显微镜能够在同一样本中同时成像多个不同通道(例如 GFP、YFP、dsRed 和碘化丙啶;图2G)。一些共聚焦显微镜配备了光谱检测器,可同时采集多种荧光染料的荧光信号,并在后续进行分离。然而,当使用常规检测器时,则必须使用特定的激光器和滤光片组合来激发并分离不同荧光染料的发射信号。某些荧光染料具有完全不重叠的发射光谱(例如 CFP 和 YFP),可以同时成像;而其他一些荧光染料的发射光谱部分重叠(例如 GFP 和 YFP),通常需要分别成像,这会延长成像时间。对发射光谱相近的荧光染料进行成像时,通常还需限制每个通道所采集的光谱范围,以防止一种荧光染料的信号渗漏到另一通道中。这种限制会导致采集信号强度的损失,可通过提高激光功率和增益来补偿。然而,过长的成像时间或过高的激光功率可能导致样本发生光漂白和/或光损伤。激光功率和/或增益的增加也可能导致背景噪声升高。针对每个样本,信号强度、分辨率与成像时间之间的优化需通过反复试验完成,并始终涉及多方面的权衡取舍。
本方案介绍了如何对解剖后茎尖侧面发育中的花芽进行活体共聚焦成像。有人可能会认为,由于茎尖脱离了植株其余部分,并在含有细胞分裂素的培养基中生长,这可能会影响茎尖分生组织(SAM)及花的发育。然而,该培养基是通过反复试验经验性设计的,旨在确保分离的茎尖分生组织能够以正常的 plastochron 产生新的花芽,并且这些花芽能够正常发育15。类似地,萼片的解剖似乎并不影响基因表达模式或花其余部分的发育。其他方案详细描述了对仍与植株其余部分相连的茎尖分生组织进行活体共聚焦成像的方法(例如参考文献11)。这些方案可被调整用于发育中花朵的成像,特别是在研究与细胞分裂素相关的过程时,提供了一种有用的替代方法。然而,它们也存在若干缺点:茎会伸长并扭曲,从而改变花芽的方向;此外,虽然使用直立式显微镜对与植株相连的茎尖进行成像是可行的,但在倒置显微镜下进行此类操作则要复杂得多。
浸没式物镜的数值孔径(NA)高于 "干燥" 透镜(即 物镜与样本之间由空气分隔),因此能提供更高的样本分辨率,这在使用共聚焦显微镜时至关重要。使用水浸式物镜不仅比干镜具有更高的数值孔径(NA),还能防止在成像过程中茎尖脱水。尽管甘油和油镜的数值孔径高于水镜,但它们需要使用盖玻片,而这对茎尖这类尺寸的样本而言极为不便,尤其在延时实验过程中茎尖仍在持续生长。鉴于样本尺寸较大(根据花发育阶段的不同,图像堆栈厚度可超过150 µm),使用长工作距离的物镜也非常重要。我们通常采用20倍或40倍物镜,数值孔径为1,工作距离为1.7–2.5 mm。
共聚焦显微镜软件提供了多种可视化共聚焦数据的方式,包括三维重建图像(图2,B1、B2 和 B4)以及切片视图(图2,B3)。尽管最常用的三维视图是共聚焦Z序列的最大强度投影(图2,B1 和 B4),但一些软件(例如 ZEN 和 Imaris)还提供透明度视图,可滤除样品深层区域的信号(图2,B2),这在观察表皮层中发生的过程或基因表达时尤为有用。信号强度可以用单一颜色编码(图2,B1),基于像素强度,也可采用彩色编码(图2,B4)。
活体共聚焦成像不仅为花发育研究提供了宝贵的定性信息,还可能为发育生物学家提供大量定量数据。不同的软件(例如 Imaris、FiJi、MARS-ALT、MorphoGraphX15,20,21)可用于量化表达一种或多种报告基因的细胞数量或体积,或量化不同细胞中报告基因的表达水平。这些软件还可用于自动细胞分割、细胞谱系追踪以及生长的定量分析。这些不同的软件提供了相似的工具,但在许多方面也存在差异。MARS-ALT 和 MorphoGraphX 是专门为植物设计的15,20,21,而 Imaris 和 FiJi 并非如此。MorphoGraphX 仅支持表皮层的分割与分析,而 Imaris 和 MARS-ALT 可对整个样品进行分割与分析。然而,MARS-ALT 要求事先从三个不同角度对同一样品进行成像15,而 Imaris 仅需单个图像堆栈。获取定量信息对于深入理解花发育过程至关重要。
披露
作者无任何利益冲突需要披露。
致谢
作者谨向 Elliot M. Meyerowitz 教授致以感谢,感谢他的支持以及对本文手稿的宝贵意见;同时感谢达特茅斯学院的 Ann Lavanway 以及加州理工学院生物成像中心的 Andres Collazo 博士,他们在解决活体共聚焦成像中的技术问题方面提供了帮助。Nathanaël Prunet 的工作由美国国立卫生研究院通过授予 Elliot M. Meyerowitz 的基金 R01 GM104244 提供资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 镊子 | Electron Microscopy Sciences | 72701-D | Dumont Style 5 Inox,用于顶端组织解剖 |
| 手摇钻 | Ted Pella, Inc. | 13560 | 80 cm 长,用于萼片消融 |
| 直型不锈钢针 | Ted Pella, Inc. | 13561-50 | 直径 0.1 mm,长 1.2 cm,用于萼片消融 |
| 圆形塑料盒 | Electron Microscopy Sciences | 64332 | 透明,直径 6 cm,深 2 cm,用作解剖培养皿 |
| 矩形带铰链盒 | Durphy Packaging Co. | DG-0730 | 透明,长 2-7/8”,宽 2”,深 1-1/4”,用作直立显微镜成像培养皿 |
| 组织培养皿,聚苯乙烯,无菌 | VWR | 25382-064 | 透明,直径 3.5 cm,深 1 cm,用作倒置显微镜成像培养皿 |
| P10 和 P1000 移液器 | 配相应滤芯吸头 | ||
| 体视显微镜 | 最大放大倍数为 80–90X | ||
| 激光消融系统 | 用于萼片消融 | ||
| 激光扫描共聚焦显微镜系统 | |||
| 20 或 40X 水浸物镜 | 数值孔径(NA)为 1,工作距离为 1.7–2.5 mm | ||
| 琼脂糖 | |||
| 蔗糖 | |||
| Murashige 和 Skoog 基本盐混合物 | Sigma-Aldrich | M5524 | 不含维生素 |
| 肌醇 | Sigma-Aldrich | I7508 | 维生素 |
| 烟酸 | Sigma-Aldrich | N0761 | 维生素 |
| 盐酸吡哆醇 | Sigma-Aldrich | P6280 | 维生素 |
| 盐酸硫胺素 | Sigma-Aldrich | T1270 | 维生素 |
| 甘氨酸 | Sigma-Aldrich | G8790 | 维生素 |
| N6-苄基腺嘌呤 | Sigma-Aldrich | B3408 | BAP,一种细胞分裂素 |
| 碘化丙啶溶液 | Sigma-Aldrich | P4864 | 1 mg/mL 水溶液,用于细胞壁染色 |
| FM4-64 | Invitrogen | F34653 | 用水稀释至 80 μg/mL,用于质膜染色 |
参考文献
- Prunet, N., Jack, T. P. Flower Development in Arabidopsis: There Is More to It Than Learning Your ABCs. Methods Mol. Biol. 1110, 3-33 (2014).
- Stewart, D., Graciet, E., Wellmer, F. Molecular and regulatory mechanisms controlling floral organ development. FEBS J. , (2016).
- Heisler, M. G., et al. Patterns of auxin transport and gene expression during primordium development revealed by live imaging of the Arabidopsis inflorescence meristem. Curr. Biol. 15 (21), 1899-1911 (2005).
- Reddy, G. V., Meyerowitz, E. M. Stem-cell homeostasis and growth dynamics can be uncoupled in the Arabidopsis shoot apex. Science. 310 (5748), 663-667 (2005).
- Yadav, R. K., et al. WUSCHEL protein movement mediates stem cell homeostasis in the Arabidopsis shoot apex. Genes & Dev. 25 (19), 2025-2030 (2011).
- Reddy, G. V., Heisler, M. G., Ehrhardt, D. W., Meyerowitz, E. M. Real-time lineage analysis reveals oriented cell divisions associated with morphogenesis at the shoot apex of Arabidopsis thaliana. Development. 131 (17), 4225-4237 (2004).
- Chandler, J. W., Jacobs, B., Cole, M., Comelli, P., Werr, W. DORNROSCHEN-LIKE expression marks Arabidopsis floral organ founder cells and precedes auxin response maxima. Plant Mol. Biol. 76 (1-2), 171-185 (2011).
- Urbanus, S. L., et al. In planta localisation patterns of MADS domain proteins during floral development in Arabidopsis thaliana. BMC Plant Biol. 9, (2009).
- Hong, L., et al. Variable Cell Growth Yields Reproducible OrganDevelopment through Spatiotemporal Averaging. Dev. Cell. 38 (1), 15-32 (2016).
- Roeder, A. H., et al. Variability in the control of cell division underlies sepal epidermal patterning in Arabidopsis thaliana. PLoS Biol. 8 (5), e1000367(2010).
- Heisler, M. G., Ohno, C. Live-imaging of the Arabidopsis inflorescence meristem. Methods Mol. Biol. 1110, 431-440 (2014).
- Tobin, C. J., Meyerowitz, E. M. Real-Time Lineage Analysis to Study Cell Division Orientation in the Arabidopsis Shoot Meristem. Methods Mol. Biol. 1370, 147-167 (2016).
- Smyth, D. R., Bowman, J. L., Meyerowitz, E. M. Early flower development in Arabidopsis. Plant Cell. 2 (8), 755-767 (1990).
- Prunet, N., Jack, T. P., Meyerowitz, E. M. Live confocal imaging of Arabidopsis flower buds. Dev. Biol. , (2016).
- Fernandez, R., et al. Imaging plant growth in 4D: robust tissue reconstruction and lineaging at cell resolution. Nat. Methods. , (2010).
- Cutler, S. R., Ehrhardt, D. W., Griffitts, J. S., Somerville, C. R. Random GFP::cDNA fusions enable visualization of subcellular structures in cells of Arabidopsis at a high frequency. Proc. Natl. Acad. Sci. U S A. 97 (7), 3718-3723 (2000).
- Irish, V. F., Sussex, I. M. Function of the apetala-1 gene during Arabidopsis floral development. Plant Cell. 2 (8), 741-753 (1990).
- Vernoux, T., et al. The auxin signalling network translates dynamic input into robust patterning at the shoot apex. Mol. Systems Biol. 7, 508(2011).
- Zhou, Y., et al. Control of plant stem cell function by conserved interacting transcriptional regulators. Nature. 517 (7534), 377-380 (2015).
- Barbier de Reuille, P., et al. MorphoGraphX: A platform for quantifying morphogenesis in 4D. Elife. 4, 05864(2015).
- Barbier de Reuille, P. B., Robinson, S., Smith, R. S. Quantifying cell shape and gene expression in the shoot apical meristem using MorphoGraphX. Methods Mol. Biol. 1080, 121-134 (2014).
重印与许可
