两种图像分析算法,果蝇 神经肌肉接头形态计量学”和“果蝇 神经肌肉接头突触小结形态计量 已创建,以自动量化九种形态学特征 果蝇 神经肌肉接头(NMJ)
方法文章
高通量多参数定量分析的两种算法 果蝇 神经肌肉接头形态学
* These authors contributed equally
本文内容
摘要
摘要
突触形态与突触效能密切相关,在许多情况下,形态学上的突触缺陷最终会导致突触功能障碍。Drosophila 幼虫神经肌肉接头(NMJ)是谷氨酸能突触的成熟研究模型,已被广泛研究数十年。通过鉴定导致 NMJ 形态缺陷的突变,研究人员发现了一系列调控突触发育与功能的基因。其中许多基因是在大规模研究中被发现的,这些研究主要采用定性方法来检测 Drosophila NMJ 的形态异常。然而,定性分析的局限性在于,许多对 NMJ 形态起细微调控作用的因素可能被忽略。尽管定量分析对于发现更细微的形态差异至关重要,但由于此类分析工作量大,目前尚未被普遍采用。本实验方案详细描述了两种可用于定量、精确且客观地分析 Drosophila NMJ 形态的图像分析算法:“Drosophila NMJ Morphometrics”和“Drosophila NMJ Bouton Morphometrics”,二者均以兼容 Fiji 的宏形式提供。该方法专为分析使用常用标记物 Dlg-1 和 Brp 进行免疫标记的 NMJ 终末而设计。此外,本方案还展示了其在其他标记物(如 Hrp、Csp 和 Syt)中的广泛应用。这些宏能够评估九项 NMJ 形态学特征:NMJ 面积、NMJ 周长、突触小泡数量、NMJ 长度、最长分支长度、岛屿数量、分支数量、分枝点数量以及 NMJ 终末中活动区的数量。
引言
智力障碍、自闭症谱系障碍和精神分裂症等认知障碍通常以突触功能异常为特征1,2,3。突触的形态与功能密切相关;形态学缺陷可导致突触功能障碍,反之,异常的突触传递也会影响突触的成熟与形态4,5,6。
为了更好地理解突触生物学,并阐明突触变化如何影响健康与疾病状态下的脑功能,研究人员已采用多种模式生物开展研究7,8,9。该 果蝇 神经肌肉接头是一个被广泛研究且已充分确立的 体内 谷氨酸能突触生物学模型10,11在过去的几十年中,该模型已被用于生理学和以基因为中心的研究,以及大规模的遗传筛选,旨在检测神经肌肉接头(NMJs)之间的形态学差异。特别是正向遗传筛选已鉴定出许多调控突触发育与功能的关键因子和机制。12,13,14,15,16然而,大多数此类筛选依赖于对神经肌肉接头(NMJ)终末形态的视觉评估,以及对突触异常的定性检测或少数形态学特征的半定量评分。因此,一些较为细微且肉眼难以察觉的突触形态学异常很容易被遗漏。为了能够全面检测出定量差异,必须通过系统性地量化相关形态学参数,对NMJ进行精确评估。手动测量NMJ特征十分耗时,尤其是在涉及多个关注的NMJ特征和/或进行大规模遗传筛选时。为了支持多参数、高通量的形态学分析并实现客观量化,开发了两个宏工具 "果蝇 神经肌肉接头形态计量学" 和 "果蝇 神经肌肉接头突触小结形态测量" 已开发17两个宏均在开源图像分析软件Fiji中运行18,并实现对共聚焦和非共聚焦图像的定量分析。
"Drosophila NMJ 形态计量学"用于测量经突触后标志物Disc large-1(Dlg-1)或突触前辣根过氧化物酶(Hrp)免疫染色,并与活性区标志物bruchpilot(Brp)共标记的NMJ终末。该方法可量化九项形态学参数(下文将进一步描述):NMJ面积、NMJ周长、突触小球数量、NMJ长度、NMJ最长分支长度、岛状结构数量、分支数量、分叉点数量以及突触终末中的活性区数量(图1)。尽管本宏中包含用于确定突触小球数量的算法,但其未达到准确性的标准17。为了准确评估突触小球数量,必须使用"Drosophila NMJ 突触小球形态计量学"宏,该宏专门设计用于量化经抗Synaptotagmin(Syt)或抗Cysteine string protein(Csp)免疫染色并共标记Brp的NMJ样本。"Drosophila NMJ 突触小球形态计量学"宏可量化以下参数:突触小球数量、NMJ突触小球总面积、NMJ长度、NMJ最长分支长度、岛状结构数量、分支数量、分叉点数量以及活性区数量(图2)。
该宏由3个子宏组成:(I) "转换为堆栈"可识别所有可用的图像文件,并为两个通道创建Z轴超堆栈(Z-hyperstacks)以及最大强度投影图像。该宏的输出结果为每个突触生成两个新文件,分别命名为"stack_image_name"和"flatstack_image_name"。II) "定义感兴趣区域(ROI)"将依次打开所有最大投影图像"flatstack_image_name",并提示用户手动定义包含目标突触终末的感兴趣区域(ROI)。该步骤的设计旨在排除连接至邻近肌肉和/或其他类型突触终末(例如1s型)的突触,这些结构可能存在于图像中11。(III) "分析"将对ROI边界内的图像区域进行全自动分析。此步骤完成后,用户将获得两个新文件:"results.txt",其中包含所有数值测量结果的注释;以及一个"res_image_name.tif"文件,用于展示宏生成的基础图像分割结果。在图像分析过程中,从每个突触终末中提取出三个结构:神经肌肉接头(NMJ)轮廓、NMJ骨架以及Brp阳性活性区的数量。NMJ轮廓用于确定NMJ的面积及其周长,随后通过分水岭算法分离以计算突触小结(boutons)的数量。从骨架中可推导出五个NMJ特征:NMJ总长度、任意两个端点之间最长连续路径的长度总和(最长分支长度)、每个NMJ中未连接的区室数量(称为"islands")、分支总数以及分支点数量(一个分支点连接三个或更多分支)。Brp通道中Brp阳性斑点的数量即为活性区数量。标注后的NMJ轮廓(黄色线条)、NMJ骨架(蓝色线条)以及Brp阳性活性区数量(以白色焦点表示)将在结果图中显示,同时各参数的测量值将被汇总至一个(.txt)输出文件中(图3)。
Drosophila NMJ 形态测量学" 和 "Drosophila NMJ 突触小泡形态测量学" 最初由 Nijhof et al.17 描述并进行了广泛验证。本论文重点介绍使用宏工具 "Drosophila NMJ 形态测量学" 和 "Drosophila NMJ 突触小泡形态测量学" 分析 NMJ 形态的方法。在使用宏进行分析之前,需完成 NMJ 解剖和免疫染色。这些是关键步骤,所采用的免疫组织化学标记组合必须适用于宏分析。本方案第 1 节简要提及了这些步骤,并引导用户参考详细描述这些操作流程的相关文献。
方案
1. 图像处理前的准备工作
- 执行 果蝇 三龄游走幼虫(L3)的敞口书式制备,如前所述19.
- 共免疫标记 果蝇 使用两种标记物组合对NMJ终末进行分析:Dlg-1或Hrp与Brp联合使用 "果蝇 神经肌肉接头形态测量",以及Syt或Csp与Brp共同用于分析 "果蝇 神经肌肉接头终末支形态测量"20.
注意:可使用抗体偶联试剂盒(如 Zenon Alexa Labeling Kits)对同一物种来源的抗体进行预标记,从而实现抗体的联合使用。17. - 使用选定的显微镜对神经肌肉接头终末进行成像, 例如, 荧光显微镜(带或不带ApoTome)或共聚焦显微镜。
- 获取NMJ终末的双通道图像序列。
- 调整显微镜设置,使通道1采集用Dlg-1(或Hrp、Syt、Csp)免疫标记的NMJ终末,通道2采集用Brp免疫标记的NMJ终末。
- 可选地,使用宏分析单通道图像(仅用一种抗体免疫标记突触的图像)。图像中的NMJ仅用Dlg-1或Hrp进行免疫标记,用于分析 "果蝇 神经肌肉接头形态测量",或Syt、Csp "果蝇 神经肌肉接头突触小结形态测量".
注意:仅使用抗Brp抗体进行免疫染色无法分析突触。
- 将获得的图像导出为单独的“.tiff”文件。若图像未按前述方式采集,在运行宏之前需先反转通道顺序。
- 获取NMJ终末的双通道图像序列。
2. 软件需求与安装
- 从以下网站下载宏:"Drosophila NMJ Morphometrics" 和 "Drosophila NMJ Bouton Morphometrics": https://doi.org/10.6084/m9.figshare.2077399.v121。
- 将光标移至文件夹 "Macros update 1",然后点击出现的选项 "view"。该文件夹内容的列表将显示出来。此文件夹包含宏 "Drosophila NMJ Morphometrics" 和 "Drosophila NMJ Bouton Morphometrics"。
注意:这两个宏均兼容 Fiji 1.4 版本,该版本也包含在同一文件夹中。这些宏可能无法在较新的版本上运行。请使用提供的 1.4 版本。即使计算机上已安装较新版本的 Fiji,启动此版本也不会出现问题。 - 点击 "Download all"。文件夹内容将以 .zip 文件形式下载到计算机。解压缩已下载的文件。
- 将 Drosophila_NMJ_Morphometrics.ijm 和 Drosophila_NMJ_Bouton Morphometrics.ijm 文件复制到 Fiji.app/plugins/ 目录中。重新启动程序后,这些宏将出现在 Plugins 下拉菜单的底部。
3. 运行子宏 "Convert to Stack" 以创建 NMJ 图像的 Z 投影和超堆栈
- 在工具栏中选择“插件”,然后在下拉菜单中选择 "Drosophila NMJ Morphometrics",以启动图形界面。
- 在宏的图形界面中定义 "唯一文件字符串" 设置。
注意:显微镜软件在将图像堆栈存储为单独的 '.tiff 文件时,会使用一个标识签名来组织层面和平面。输入的唯一文件字符串必须指明该软件为第一个通道的第一个层面所分配的签名(重要提示:必须标明最低层面和通道编号)。 - 仅选择子宏 "转换为堆栈",点击 "确定",然后选择图像所在的文件夹。如果选择的是包含多个子文件夹的主目录,则主目录及子文件夹中所有符合唯一文件字符串条件的单个 '.tiff 文件都将被处理。
- 如果 z 堆栈仅包含一个通道,请勾选 "仅通道 1" 选项。
- 请注意,每个 NMJ 图像将默认生成两个新文件,分别命名为 stack_image_name 和 flatstack_image_name。仅保留这些堆栈和扁平堆栈文件用于后续分析。此时可删除原始的 .tiff 文件序列,以减少所需的存储空间并避免潜在的错误来源。
4. 运行子宏 "Define ROI" 以勾画感兴趣的神经肌肉接头终末区域
- 启动"Drosophila NMJ Morphometrics"的图形界面。
- 仅选中复选框"Define ROI",然后点击"OK",选择存放名为 flatstack_name 图像的主目录,再点击"Select"。子宏"Define ROI"将自动搜索所选主目录下的所有子文件夹。
- 当第一幅投影图像打开时,在工具栏中选择"Freehand selections"工具。
- 使用鼠标绘制一个仅包含目标完整NMJ终末的选区,然后在"Define terminal"窗口中点击"OK"。宏将自动处理下一幅投影图像。
- 继续勾画下一个感兴趣区域(ROI),并重复此过程直至所有ROI均被定义。ROI图像文件将被命名为"roi_image_name",并存储在与已生成的图像堆栈和投影图像相同的目录中。该子宏的输出结果为一幅二值图像,其中ROI以白色显示,背景为黑色。
5. 运行子宏 "Analyze" 以量化 NMJ 终末特征
- 转到工具栏,选择 "插件" 并使用:
"果蝇神经肌肉接头形态计量学" 在分析使用抗Dlg-1或抗Hrp(通道1)与抗Brp(通道2)共同免疫标记的突触时,或 "果蝇神经肌肉接头突触小结形态计量学" 在分析使用抗Syt或抗Csp(通道1)与Brp(通道2)进行免疫标记的突触时。- 当需要分析单通道图像堆栈(结构通道 Dlg-1 或 HRP)时 "果蝇神经肌肉接头形态计量学",或Syt、Csp "黑腹果蝇神经肌肉接头终末分支形态计量学"),选中该复选框 "仅通道 1".
- 调整与待分析图像对应的标尺。
- 如果图像中一个像素对应 2.5 µm,则设置 Scale-Pixels = 1,Scale-Distance in µm = 2.5。若上述两项均保持为 0,则神经肌肉接头(NMJ)的面积、周长、长度和最长分支长度将以像素数量表示。
- 如有需要,调整该宏的默认分析设置。仅当子宏“Analyze”先前运行结果不理想时才进行调整(参见本节末尾及第6节中关于如何优化设置的说明)。
- 选中复选框 "Analyze" 和 "Wait",然后点击 "OK"。
- 在对双通道图像运行子宏 "Analyze" 时,请选中 "Wait" 复选框。否则,由于计算机资源有限,可能导致活性区计数出现错误。
- 当新的窗口 "Choose a Directory" 打开后,选择存放图像的目录,然后点击 "select"。该宏将分析主目录中存储的所有图像,以及(如适用)其子文件夹中的图像(使用之前运行子宏生成的三个文件:stack_image_name、flatstack_image_name 和 roi_image_name)。宏会逐个连续处理每幅图像。每幅图像堆栈的处理可能需要数分钟(具体时间取决于计算机性能)。
- 运行宏后,注意每个被分析的突触将在父文件夹中生成一个名为 res_image_name 的新图像文件。定量测量结果将保存为 "results.txt" 文件。
- 检查所有结果图像,以发现并排除存在分割错误的图片。可能的分割错误详见 Table 3,并附有调整设置以避免此类错误的建议。Figure 4 中提供了存在此类分割错误的结果图像示例。
注:当使用用户界面中显示的默认设置运行该宏时,与人工评估相比,宏评估的准确率约为95%17。
6. 调整图像的宏设置
- 当超过 5% 的图像显示分割错误时,尝试不同的算法以确定/选择最适合图像的宏设置。
- 调整滚动球半径值
注意:滚动球半径功能用于减去图像的背景。在使用荧光显微镜获取的图像上进行操作和/或图像具有较高背景噪声时,此功能至关重要。减去背景有助于宏的自动阈值步骤实现对 NMJ 终末的适当分割。- 选择由子宏“转换为堆栈”生成的三个 NMJ stack_image_name 图像。选择能够代表整个图像数据集的图像。
- 在工具栏中选择 图像 | 颜色 | 拆分通道。将创建两个图像堆栈,分别代表通道 1 和通道 2,并保存它们。
- 打开属于通道 1 的图像堆栈,对应 Dlg-1、Hrp、Syt 或 Csp 免疫标记。
- 运行滤镜 "减去背景",方法是在工具栏中选择 "处理",然后在下拉菜单中选择 "减去背景…
- 在弹出窗口中点击预览复选框,并将滚动球半径调整为最适合图像的值。“滚动球半径”设置应调整至能增强突触与背景之间对比度的数值(见 图 5A’)。
- 示例参见 图 5。在面板 A 中,部分突触显示与背景相同的灰度级别,而在 图 5 面板 A’ 中,滚动球半径设为 500 时,突触与背景之间呈现出强烈对比。
- 通过在工具栏中选择 图像 | 堆栈 | Z 投影,创建 Z 投影,选择 投影类型 = 最大强度,并保存生成的图像。当确定了合适的滚动球半径值后,使用相同的滚动球半径值对剩余的代表性图像运行“减去背景”算法。创建 Z 投影并保存(保存至任意目录)。
注意:对于 8 位或 RGB 图像,滚动球半径值应至少等于图像中不属于背景的最大物体的半径。对于 16 位和 32 位图像,半径应与像素值范围成反比22。
- 确定将使用的不同自动阈值
- 打开上一步(6.2.6)中保存的 Z 投影图像,选择 图像 | 调整 | 自动阈值 | 尝试全部。
- 当出现一个以所有不同自动阈值算法生成的二值化结果图像时,确定最适合图像的算法。
- 稍后运行宏时,相应地在宏设置中更改阈值。
- 使用更严格的阈值(如 "RenyiEntrophy" 或 "Moments")作为 NMJ 轮廓的阈值,使用更宽松的阈值(如 "Li")来确定 NMJ 骨架,使用 "Huang" 来确定活性区。当图像非常清晰且背景极少或无背景时,可使用 "Huang" 作为" NMJ 轮廓阈值。否则,图像分割后可能会缺失部分突触。
- 示例参见 图 5B。绿色框突出显示的自动阈值可实现突触的适当分割。红色框突出显示了一些不合适的阈值示例(请在高倍镜下检查突触)。在后者中,要么缺失部分突触,要么包含了部分背景。更多信息请参见参考文献 23。
- 确定小颗粒的最大尺寸
注意:此功能将排除由NMJ轮廓阈值和骨架阈值检测到的所有小于所定义数值的颗粒 "小颗粒沉降" 从分析中排除。该值以像素为单位定义。此功能用作噪声滤波器,在所获图像中存在较高水平的非均匀背景(如晶体/灰尘)时非常有用。- 打开步骤 6.2.6 中保存的 Z 投影图像,通过“分析 | 设置比例尺”设置比例以检测像素数量。应用以下设置:像素距离 = 1,已知距离 = 1,像素纵横比 = 1,长度单位 = pixel,然后点击确定 "好的". 点击 "椭圆选择" 工具栏中的工具。
- 使用鼠标圈选免疫染色图像中孤立存在的单个颗粒,这些颗粒不属于神经肌肉接头(NMJ)。Windows 用户按下 Ctrl+m,Mac 用户按下 cmd+m。随后将弹出结果窗口,显示所选颗粒的面积(以像素数量表示)。
- 重复上述步骤多次,使用图像中出现的多个伪影,以确定最大的污染颗粒/伪影面积。该数值将在后续运行宏时作为参数设置的依据。运行宏时,设置 "小颗粒尺寸" 观察到的最小颗粒尺寸加上25%的裕量
- 参见 图5D 以一个例子说明。检测到的最大晶体面积为112像素。 "小颗粒尺寸" 设置参数时,使用该宏处理此图像应将数值设定为 125 - 150。
- 确定最小突触小结大小
注:此功能将从分析中排除所有由NMJ轮廓阈值检测到但小于设定值的突触小结。该值以像素为单位定义。- 按照第6.4节所述的相同步骤操作,但在此情况下,绘制一个选区包围NMJ末端中最小的突触小结。选择与所测突触小结中最小者相对应的最小面积。该值即为后续运行宏时在“最小突触小结大小”设置中应设定的数值。
- 定义 "Maxima 噪声容差" 值
- 为宏定义“Find maxima 噪声容差”值,请打开第 6.2.2 节中保存的通道 2 Z-stack 图像。
- 在弹出菜单中进入插件选项卡,选择 Process | Maximum(3D),当 maximum_image_name 出现时(可能需要几分钟),关闭原始图像堆栈。
- 选择 Maximum…_image_name(新获得的图像堆栈),然后选择 Plugins | Process | Minimum (3D),当新的图像 Minimum of Maximum…_image_name 出现后,关闭 Maximum … _image_name 堆栈。
- 在工具栏中选择 Process | Find maxima…。将打开一个新窗口 "Find maxima…"。勾选 "Preview point selection…" 复选框,并在 "Noise tolerance" 框中填入宏的默认设置值 50。图像中的极大值点将以小十字标记显示。
- 如果观察到过多被标注的活性区,即出现不在选定堆栈平面焦点上的活性区上的十字,或在背景中检测到的假阳性活性区,则应增加“Noise tolerance”值。
- 相反,如果观察到活性区标注不完整,即处于焦点内的活性区未被识别,则应降低“Maxima 噪声容差”值。根据此流程反复尝试不同数值,直至十字准确地标记处于焦点内的活性区。将此数值填入“Find maxima 噪声容差”设置中。
- 参见 图 5C 示例。检测到了过多的活性区。在 图 5C’ 中,仅当提高“Maxima 噪声容差”值时,才仅检测到处于焦点内的活性区。
- 如果观察到过多被标注的活性区,即出现不在选定堆栈平面焦点上的活性区上的十字,或在背景中检测到的假阳性活性区,则应增加“Noise tolerance”值。
- 使用第 5.1 步中选择的代表性图像,并结合此前所有步骤中定义的设置,运行子宏 "Analyze"。
- 调整 Brp-点状物的下限和上限阈值
- 请注意,在按照第 6.6 步运行宏后,将生成一个名为 2_active_zone_stack_image_name 的新文件。在此图像堆栈中,由 "Find maxima" 功能检测到的活性区在每一层中以白点标示。
- 通过将该文件拖放到工具栏中打开,并选择 Image | Stack | Z-project | Projection type = Sum slices。将获得 2_active_zone_stack_image_name 的投影图像。
- 选择 Image | Adjust | Threshold。将打开一个新窗口 "Threshold"。滑动上方滑块,选择一个阈值,使得所有目标焦点/Brp 阳性斑点均以红色显示。
注:若阈值设得过低,将导致过多活性区被计数;若设得过高,则部分活性区将被遗漏。- 参见 图 5E 示例。当阈值设为 400 时,大多数活性区(以 1 像素焦点表示)未被包含在分割结果中,因为它们未以红色高亮显示(图 5E)。当阈值设为 50 时,所有活性区均以红色高亮显示(图 5E’)。
- 将此值定义为最低阈值。将“Upper puncta threshold”保持在最大值。
- 使用本节所有先前步骤中定义的设置,重新运行“Analyze”子宏处理代表性图像。仔细评估生成的图像文件,确保分割结果正确。若不符合要求,请根据分割错误的类型重新调整设置(参见 图 4、表 3)。
结果
文本结果文件将出现在主目录中。该文件汇总了每张图像的所有测量参数。结果与文件名相关联,且参数将按照指定的顺序依次汇总。 表1和表2。
Res_image_name 是一个由三幅图像组成的图像堆栈。第一幅图像突出显示了由宏根据通道1(免疫标记 Dlg-1、Hrp、Syt 或 Csp)确定的 NMJ 终端的轮廓和骨架。第二幅图像是第一幅图像的复制版本,并额外显示了在通道2中检测到的 Brp 阳性斑点,这些斑点以示意图形式表示为焦点。第三幅图像提供了第二通道的最大投影以及所识别的 Brp 阳性焦点。
在宏输出结果图像中,神经肌肉接头(NMJ)轮廓阈值以黄色表示。NMJ的面积、周长及突触小节数量均由该阈值推算得出。
在宏输出结果图像中,神经肌肉接头(NMJ)骨架的阈值以蓝色表示。NMJ长度、最长分支长度、分支数量、分支点和孤岛均由此阈值推导得出。
NMJ 活动区阈值未在宏输出结果图像中显示。该阈值用于确定 Brp 阳性焦点可能被宏识别的区域,旨在生成一个略大于 NMJ 轮廓阈值所定义范围的 NMJ 区域。若选择的阈值过于严格,则位于突触边缘的 Brp 阳性焦点可能会被排除;若阈值过于宽松,则背景噪声可能被误计为 Brp 阳性信号点(图 1 - 2)。
为验证该性能 "果蝇 神经肌肉接头形态计量学" 宏观检测中,测试了三种已知在不同神经肌肉接头(NMJ)参数上表现出突触缺陷的突变条件。每种缺陷均由该宏观程序执行的不同图像分割方法检测得出(分别为NMJ轮廓、骨架或活性区)17)。在通过可诱导RNAi靶向三个目的基因,并对L3幼虫进行解剖及神经肌肉接头(NMJ)免疫染色后,运行该宏程序。所得NMJ形态学测量数据随后采用t检验进行成对(RNAi组 versus 对照组)比较。在全部三个基因中,突变体与对照组之间均发现统计学差异,所影响的参数与先前报道的形态学缺陷一致。这证实该宏程序确实能够有效识别先前描述的NMJ形态缺陷 果蝇 神经肌肉接头
Ankyrin 2 (Ank2, CG42734) 突变体已知表现出突触形态缺陷,包括突触小结融合和更小的神经肌肉接头(NMJ)。这些缺陷在 Ank2 突变体24,25 以及 Ank2 沉默果蝇中均有观察到26。与遗传背景对照组数据集(w;UAS-Dicer-2/UAS-KK60100;elav-Gal4/+)(平均值分别为 451.95 µm2 和 288.62 µm)相比,全神经元 Ank2-RNAi 沉默果蝇(w;UAS-Dicer-2/UAS-Ank2 RNAi KK107238;elav-Gal4/+)的 NMJ 末端表现出显著更小的 NMJ 面积(平均值 = 339.25 µm2;t 检验 p = 2.18 × 10⁻⁸)和周长(平均值 = 238.24 µm;t 检验 p = 1.82 × 10⁻³),该结果来自运行“Drosophila NMJ 形态测量”分析(图 6A & 4B)。
GTP酶 Rab3 (CG7576)对于bruchpilot的正常分布是必需的 rup 突变体表现出活性区数量显著减少27. 在通过测量Brp阳性焦点数量时,观察到活性区数量显著减少 "果蝇 神经肌肉接头形态计量学" 神经肌肉接头终末中全神经元的宏成像 Rab3 基因敲低果蝇 (w;UAS-Dicer-2/UAS-RNAi KK100787;elav-Gal4每个NMJ终末的平均活性区数量 Rab3-RNAi 检测到 138 个,而对照数据集中检测到 290 个(/+) t检验 p = 4.43 × 10⁻²⁹) (图6A & 4C).
Highwire(hiw,CG32592)是神经肌肉接头(NMJ)生长的重要调控因子;hiw 基因的突变会导致 NMJ 末端过度生长并出现分支延伸28。利用“Drosophila NMJ Morphometrics”工具对全神经元特异性 Hiw-RNAi 沉默品系(w;UAS-Dicer-2/UAS-RNAi-GD36085;elav-Gal4/+)的 NMJ 末端进行测量,发现骨架化分析所得参数存在显著差异:总长度(平均值 = 147.36 µm;对照组平均值 = 122.07 µm;t 检验 p = 7.31 × 10⁻⁷)、最长分支长度(平均值 = 122.19 µm;对照组平均值 = 105.65 µm;t 检验 p = 4.62 × 10⁻⁴)、分支数量(平均值 = 7.69;对照组平均值 = 5.74;t 检验 p = 2.52 × 10⁻²)以及分支点数量(平均值 = 2.73;对照组平均值 = 1.79;t 检验 p = 3.31 × 10⁻²)。与遗传背景对照(w;UAS-Dicer-2/UAS-GD60000;elav-Gal4/+)相比,所有这些参数均显著增加(增幅为 120–180%)(图 6A & 4D)。
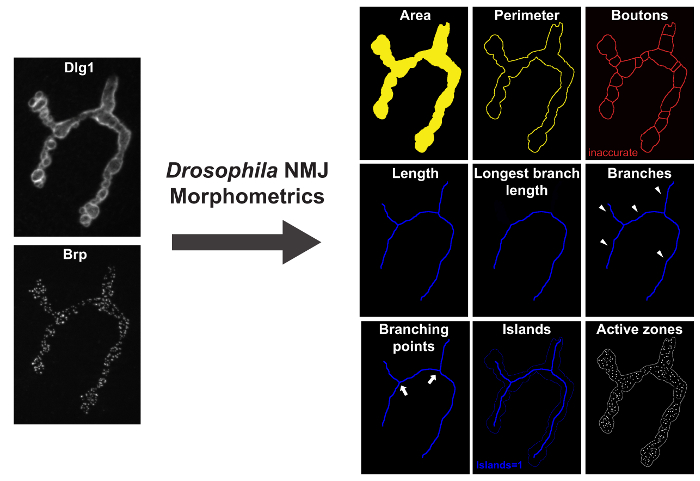
图 1:Drosophila NMJ 形态测量法可量化 Drosophila NMJ 的 9 项参数。左侧为在配备 ApoTome 的荧光显微镜下成像的 Dlg-1 和 Brp 免疫标记的 NMJ 末端图像。右侧为运行“Drosophila NMJ 形态测量法”后生成的结果图像。参数面积、周长和突触小结由宏标注的黄色轮廓标示。参数长度、最长分支长度(LBL)、分支数、分枝点和孤岛由宏标注的蓝色轮廓表示。Brp 免疫标记的焦点(即活动区)在结果图像中以宏生成的白色斑点表示。请点击此处查看该图的高清版本。
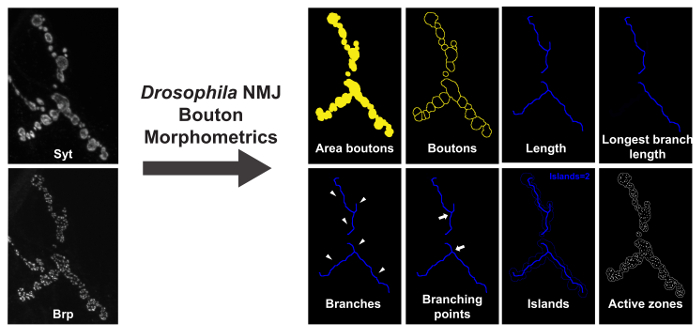
图2:Drosophila NMJ 突触小泡形态测量法可测定 Drosophila NMJ 的8项参数。 左侧为经Syt-1和Brp免疫标记的NMJ末梢,在荧光显微镜(配备ApoTome)下成像的结果。右侧为运行“Drosophila NMJ 突触小泡形态测量法”后生成的结果图像。突触小泡数量和突触小泡面积参数由宏标注的黄色轮廓表示。长度、最长分支长度(LBL)、分支数、分支点和孤岛参数由宏标注的蓝色轮廓表示。Brp免疫标记的信号点(即活动区)在结果图像中以宏生成的白色斑点表示。请点击此处查看该图的放大版本。
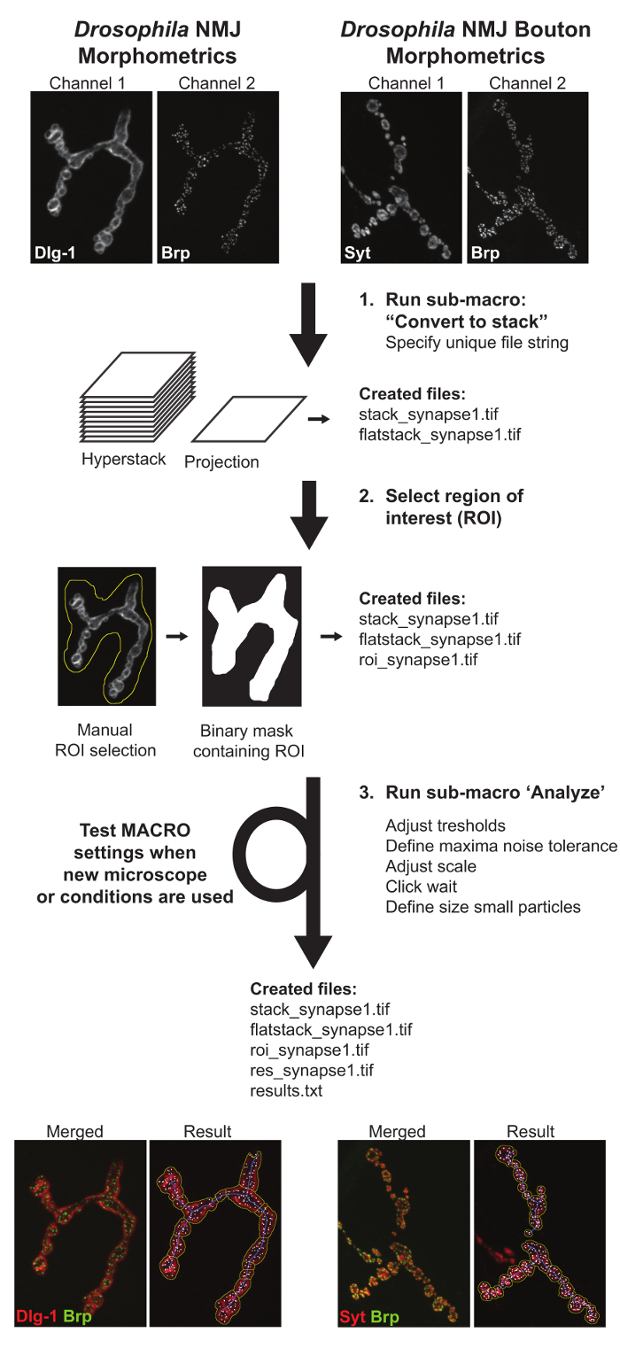
图3:Drosophila NMJ 形态测量及 Drosophila NMJ 突触小结形态测量宏程序的流程图。 第一个子宏“转换为堆栈”对成像的NMJ生成投影和超堆栈图像。第二个子宏“定义感兴趣区域(ROI)”需要手动输入以确定目标NMJ终末的位置。第三个子宏“分析”用于测量所有NMJ参数。系统将生成一个包含定量数值的文本文件以及一张显示参数划分结果的图像文件,以帮助用户评估宏程序的执行效果。当图像在不同条件下获取时,必须对宏程序的设置进行测试和调整,以确保分析的准确性。 请点击此处查看该图的高清版本。
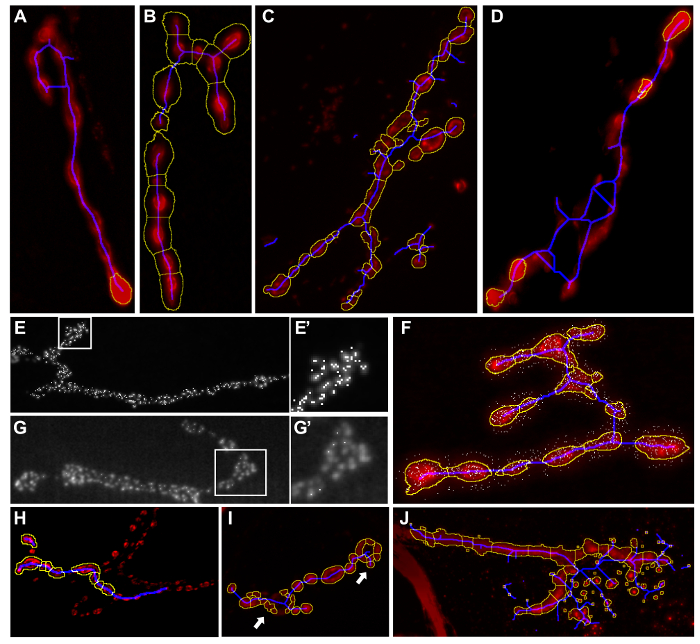
图4:不恰当的宏分割结果示例。运行“Drosophila NMJ 形态测量”或“Drosophila NMJ 突触小球形态测量”后的结果图像。部分突触末端未被包含在黄色轮廓线内(A)。部分背景区域被黄色轮廓线错误地包含在突触末端内(B)。蓝色骨架线延伸超出突触末端范围(C - D)。检测到的活动区过多(E - E')。部分活动区未被分析检测到(G - G')。在突触外检测到活动区(F)。突触小球分割错误(仅适用于运行 Drosophila NMJ 突触小球形态测量时),存在突触小球遗漏(H)或分割检测出过多突触小球(I)。背景中的颗粒物(如晶体或灰尘)被错误地纳入分割结果中(J)。如何调整参数设置以避免这些错误的信息见表3。请点击此处查看该图的放大版本。
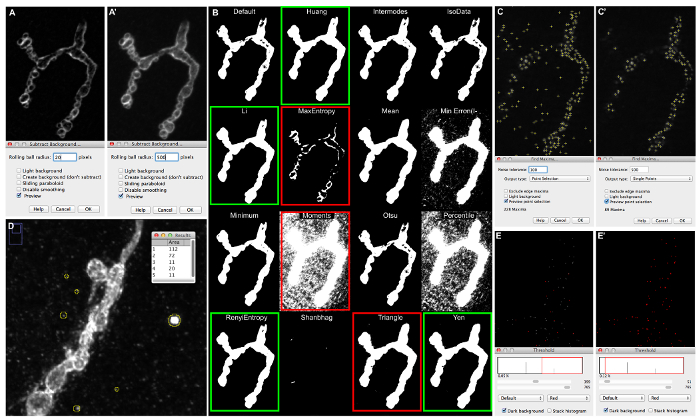
图 5:宏观参数设置调整示例及其对图像分割的影响。(A)在荧光显微镜(配备 ApoTome)下拍摄的 Dlg-1 免疫标记突触的“背景减除”预览图,当“滚动球半径”设为 20(A)或 500(A')时的结果。(B)执行“图像 | 调整 | 自动阈值 | 尝试所有”后得到的输出图像,展示了由 16 种不同自动阈值算法获得的图像分割结果。(C)设置“噪声容差”为 50(C)和 500(C')时的“寻找极值点”预览;分割检测到的活性区以小十字标记。(D)在共聚焦显微镜下拍摄的抗 Hrp 免疫标记突触图像背景中出现的“小颗粒”的测量结果。(E)由 2_active_zone_stack_ima-ge_name 叠加生成的“求和投影”图像,阈值分别设为 400(E)和 50(E')。请点击此处查看该图的高清版本。
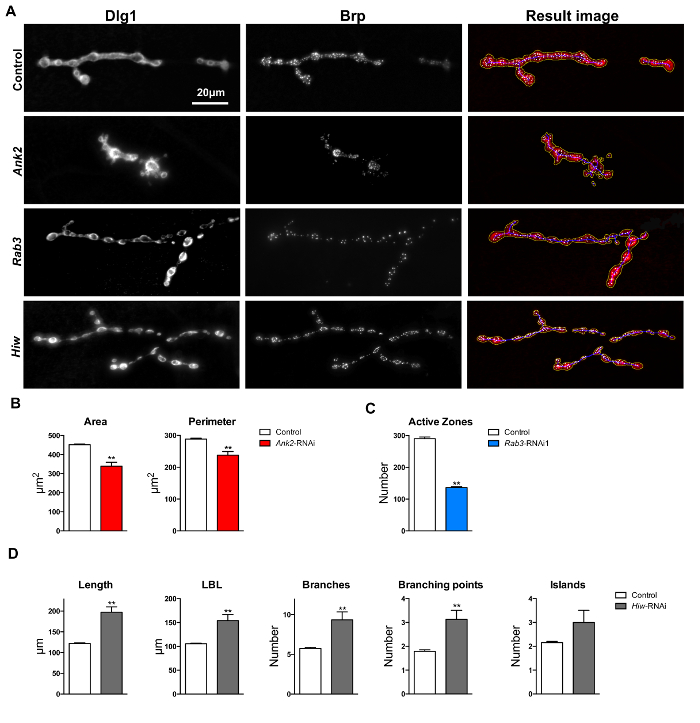
图6:肌肉4上NMJ的宏观评估与定量分析。(A)在Dlg-1和Brp免疫标记的NMJ末端上运行“Drosophila NMJ形态测量”宏后得到的结果图像。宏标注的黄色轮廓表示面积、周长和突触小结等参数。宏标注的蓝色轮廓表示长度、最长分支长度(LBL)、分支数、分枝点数和孤岛数等参数。Brp免疫标记的焦点(活性区)在结果图像中由宏显示为白色斑点。比例尺为20 µm。(B)与遗传背景对照相比,Ankyrin2 RNAi敲低表现出更小的NMJ面积和周长。(C)与遗传背景对照相比,Rab3敲低导致每个NMJ末端的Brp阳性活性区数量减少。(D)与遗传背景对照NMJ相比,Highwire敲低导致NMJ更长、最长分支长度更高、分支更多且每个NMJ末端的分枝点更多。误差线表示标准误(SEM),** p < 0.01,双尾T检验。请点击此处查看该图的放大版本。
| 参数 | 神经肌肉接头结构 | 说明 |
| 面积 (µm²) | 神经肌肉接头轮廓 | 完整标记的神经肌肉接头的面积 |
| 周长 (µm) | 神经肌肉接头轮廓 | 对应于该面积的周长 |
| #突触小结 | 神经肌肉接头轮廓 | 神经肌肉接头的突触小结数量(“串珠状”结构) |
| 长度 (µm) | 骨架 | 整个神经肌肉接头终末的总长度 |
| 最长分支长度 (µm) | 骨架 | 连接神经肌肉接头任意两个端点的最长连续路径的长度之和 |
| #分支 | 骨架 | 分支的总数 |
| #分支点 | 骨架 | 分支点的数量(一个分支点可产生多个分支) |
| #孤岛 | 骨架 | 不相连的 Dlg1 阳性突触区室(或其他染色标记)的数量 |
| #活性区 | Brp 阳性斑点 | 基于 Brp 染色所确定的活性区数量 |
表1:通过“Drosophila NMJ Morphometrics”测量的神经肌肉接头参数。 使用“Drosophila NMJ Morphometrics”宏所测量的神经肌肉接头参数将以文本文件中的列表形式呈现,其顺序如本表所述。本表重印自 Nijhof et al.17
| 参数 | NMJ 结构 | 说明 |
| 突触小结 | NMJ 轮廓 | NMJ 突触小结(“串珠状”结构)的数量 |
| 小结面积 | NMJ 轮廓 | 所有突触小结的总面积 |
| 长度(µm) | 骨架 | NMJ 末梢的总长度 |
| 最长分支长度(µm) | 骨架 | 连接 NMJ 任意两个端点的最长连续路径的长度之和 |
| 分支数量 | 骨架 | 分支的总数 |
| 分枝点数量 | 骨架 | 分枝点的数量(一个分枝点可发出多个分支) |
| 岛状结构数量 | 骨架 | 不相连的 Dlg1 阳性突触区室(或其他染色标记)的数量 |
| 活性区数量 | Brp 阳性斑点 | 基于 Brp 染色所确定的活性区数量 |
表2:通过“Drosophila NMJ Bouton Morphometrics”测量的神经肌肉接头参数。 由“Drosophila_Bouton_NMJ_Morphometrics”宏测量的神经肌肉接头参数将以列表形式出现在所获得的文本文件中,其顺序如本表所述。本表重印自Nijhof et al.17
| 分割 | 观察到的错误 | 示例 | 所需调整 | |
| NMJ 面积与周长(结果图像中以黄色轮廓表示) | 突触末梢的部分区域未被包含在黄色轮廓内,或背景部分被包含在黄色轮廓标记的突触末梢中。 | 图 5A-B | 调整“Rolling Ball Radius”值。参见第 6.1 节。 | 调整“NMJ outline threshold”。参见第 6.2 节。 |
| NMJ 长度相关参数(结果图像中以蓝色骨架线表示) | 蓝色骨架线超出突触末梢范围,或未覆盖整个突触末梢。 | 图 5C-D | 调整“Rolling Ball Radius”值。参见第 6.1 节。 | 调整“NMJ outline threshold”。参见第 6.2 节。 |
| Brp 阳性斑点(结果图像中以点状表示) | 检测到过多的活性区。 | 图 5E-E' | 降低“Find maxima noise tolerance”值。参见第 6.5 节。 | |
| Brp 阳性斑点(结果图像中以点状表示) | 分析过程中遗漏了部分活性区。 | 图 5G-G' | 提高“Find maxima noise tolerance”值。参见第 6.5 节。 | 降低“Brp-puncta lower threshold”。参见第 6.6 节。 |
| Brp 阳性斑点(结果图像中以点状表示) | 在突触末梢外检测到活性区伪影。 | 图 5F | 调整“Active Zone threshold”部分。参见第 6.2 节。 | 提高“Brp-puncta lower threshold”。参见第 6.6 节。 |
| 小颗粒 | 背景中的颗粒(如晶体或灰尘)被错误地包含在分割结果中。 | 图 5J | 勾选“Remove small particles”选项。参见第 6.3 节。 | 确定小颗粒的最大尺寸。参见第 6.3 节。 |
| 突触小结分割 | 突触小结分割错误(仅适用于果蝇 NMJ 突触小结形态测量;请勿使用果蝇 NMJ 形态测量工具进行突触小结分割)。 | 图 5H-I | 调整“NMJ outline threshold”。参见第 6.1 节。 | 确定“minimum bouton size”。参见第 6.4 节。 |
表3:宏生成图像分割中可能出现的各类错误的故障排除指南。 本表描述了宏所生成的不同类型的图像分割错误。这些错误在结果图像中可轻易识别。图4展示了每种错误类型的示例。在表格的“调整部分”中,列出了需要调整的设置项,并指引用户参考第6节中的关键子步骤,以了解如何调整这些参数。
讨论
"Drosophila NMJ 形态计量学" 和 "Drosophila NMJ 突触小体形态计量学" 是研究突触形态的科研人员所使用的强大工具。人工评估 NMJ 参数十分耗时,据估计,使用这些宏程序可使经验丰富的研究人员在每张 NMJ 图像的手动分割上节省多达 15 分钟。在每种实验条件或基因型下评估一至二十多个突触时,即使在小规模研究中,节省的时间也迅速累积至相当可观的程度。在进行大规模筛选时,与人工评估和定量相比,采用高通量分析所带来的效率提升可能极为显著。除了提高通量外,这些宏程序还能提供客观的分析结果,避免了因主观判断导致的偏差(否则需采用盲法实验),并消除了多名研究人员参与分析时可能出现的个体间差异。最后,这些宏程序能够对 NMJ 特征进行灵敏且准确的分析,有助于发现那些仅引起轻微而非显著 NMJ 缺陷的突触调控因子,而这些因子此前往往被研究人员肉眼所忽略。有关宏程序中所用算法及验证程序的详细信息,参见文献 Nijhof et al.17。
宏的功能已得到验证,可准确测量形态学特征 黑腹果蝇 4号肌肉处的神经肌肉接头。随后研究表明,这些宏工具同样适用于分析该生物其他肌肉上的突触。这些宏工具很可能也可用于测量其他物种中具有类似结构的神经肌肉接头的形态学参数,包括其他 果蝇 物种及其他昆虫。即使是进化上相距甚远的神经肌肉接头, 例如, 小鼠的神经肌肉接头(NMJs)表现出非常相似的结构构型29宏程序尚未在其他物种的神经肌肉接头制备样本上进行测试,但鼓励有需要的用户将其用于此类目的并进行验证。
用户必须尝试不同的自动阈值和算法,以确定/选择最适合图像的宏设置。使用这些设置,在将宏评估与人工评估进行比较时,准确率可达约95%。要调整宏设置以实现对100%图像的正确分割,可能是一项非常耗时甚至不可能完成的工作。因此,如果分割不正确的图像数量低于5%,建议将其排除。显然,如果图像质量较低,宏将产生更高比例的不满意分割结果。低质量图像同样会影响人工评估,因此不能将此类问题归因于宏的性能。尽管如此,这些宏具有较强的鲁棒性,因为它们是为高内涵显微镜(一种可对大量样本进行成像的自动化荧光显微镜)生成的图像而设计的17。
一个关键点是,用户需对宏生成的所有结果图像进行目视检查。这有助于发现并排除分割效果不理想的图片。在本实验方案的第6节中,用户将学习如何在运行子宏 "Analyze" 时调整参数以实现正确的图像分割。为了帮助用户快速掌握宏的使用要求以及参数调整方法,宏代码库中包含了一个名为 "Examples_adjusting macro settings" 的文件夹,地址为 https://doi.org/10.6084/m9.figshare.2077399.v1。该文件夹提供了13个子文件夹,每个子文件夹均包含在不同显微镜平台(高内涵/共聚焦/荧光显微镜)和不同免疫染色条件下获得的示例图像。同一文件夹中还包含一份名为“Examples guide”的PDF文件,其中列出了每个示例所需的设置参数,以及一份提供预期结果和结果图像的文本文件。
这些宏被设计用于处理以 .tiff 分离文件格式保存的图像,但有些用户可能将其图像保存为其他格式。以下网站 https://doi.org/10.6084/m9.figshare.2077399.v121 包含一个名为 "Drosophila NMJ" 的文件夹,其中提供了三个示例文件(示例 1 - 3),以及一份名为 "Examples Guide" 的文档,该文档详细说明了当图像未以 .tiff 分离文件格式存储时,如何将其导入宏中,该文档也位于同一文件夹中。
together, "果蝇 神经肌肉接头形态计量学" 和 "果蝇 神经肌肉接头突触小结形态测量学" macros 可量化十种不同的神经肌肉接头(NMJ)特征:NMJ 面积、NMJ 周长、突触小结数量、NMJ 突触小结面积、NMJ 长度、NMJ 最长分支长度、岛状结构数量、分支数量、分枝点数量以及活性区数量。相较于目前可用的仅能评估一种或少数几种突触特征的工具,该方法具有显著优势30,31多参数定量分析在新发现方面具有巨大潜力, 例如, 用于鉴定调控突触生物学一个或多个方面的新型调控因子。该方法还具备足够的分辨率,以确定共同调控完全相同或部分重叠的神经肌肉接头特征的基因,从而推断这些基因可能参与相同的分子通路。最后,该方法为研究在未受干扰条件下不同突触参数之间的相互关联性提供了可能17 以及哪些基因能够确保这种协调的形态测量学相关性。
综上所述,本方案展示了如何使用这两个宏 "果蝇 神经肌肉接头形态测量" 和 "果蝇 神经肌肉接头终末小体形态测量",可高通量地对十项神经肌肉接头形态学特征进行客观且灵敏的定量分析。
披露
作者声明无任何利益冲突。
致谢
我们感谢维也纳 果蝇 资源中心和布卢明顿果蝇品系中心(NIH P40OD018537)提供 果蝇 菌株。我们感谢显微成像中心的 Jack Fransen 在成像方面提供的专业支持。本研究由荷兰科学研究组织(NWO)的 VIDI 和 TOP 项目资助(项目编号:917-96-346,912-12-109),由两项 DCN/拉德堡德大学医学中心博士奖学金、德国联邦教育与研究部(BMBF)NGFN+ 计划资助的德国智力障碍研究网络以及欧盟第七框架计划大规模整合网络 Gencodys(HEALTH-241995)资助,资助对象为 AS。资助方在研究设计、数据收集与分析、发表决定或稿件撰写过程中均未发挥作用。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 免疫染色 | 稀释比例 | ||
| 小鼠抗discs large 1 | 发育研究杂交瘤库 | AFFN-DLG1-4D6 | 1/25(使用Zenon Alexa Fluor 528标记试剂盒进行偶联) |
| 兔抗辣根过氧化物酶 | Jackson IR | 323-005-021 | 1/500 |
| 兔抗Synaptotagmin | Hugo Bellen惠赠 | Jan-00 | |
| 小鼠抗Cysteine string protein | 发育研究杂交瘤库 | DCSP-1(ab49) | 1/10(使用Zenon Alexa Fluor 528标记试剂盒进行偶联) |
| 小鼠抗Bruchpilot | 发育研究杂交瘤库 | nc82 | Jan-50 |
| 山羊抗小鼠Alexa Fluor 488 | Life technologies | A11029 | 1/200 |
| 山羊抗兔Alexa Fluor 568 | Life technologies | A11011 | 1/500 |
| Zenon Alexa Fluor 568小鼠IgG1标记试剂盒 | ThermoFisher | Z25006 | |
| ProLong Gold抗荧光淬灭封片剂 | ThermoFisher | P36930 | |
| 材料 | 公司 | 货号 | 备注 |
| 设备 | |||
| 共聚焦显微镜或荧光显微镜 | Leica SP5 | ||
| 蔡司Axio imager | |||
| 计算机 | Mac或Pc | ||
| 材料 | 公司 | 货号 | 备注 |
| 软件 | |||
| FIJI |
参考文献
- Lin, Y. C., Koleske, A. J. Mechanisms of synapse and dendrite maintenance and their disruption in psychiatric and neurodegenerative disorders. Annu Rev Neurosci. 33, 349-378 (2010).
- van Bokhoven, H. Genetic and epigenetic networks in intellectual disabilities. Annu Rev Genet. 45, 81-104 (2011).
- Penzes, P., Buonanno, A., Passafaro, M., Sala, C., Sweet, R. A. Developmental vulnerability of synapses and circuits associated with neuropsychiatric disorders. J Neurochem. 126, 165-182 (2013).
- Mainen, Z. F., Sejnowski, T. J. Influence of dendritic structure on firing pattern in model neocortical neurons. Nature. 382, 363-366 (1996).
- Yuste, R., Majewska, A., Holthoff, K. From form to function: calcium compartmentalization in dendritic spines. Nat Neurosci. 3, 653-659 (2000).
- Vetter, P., Roth, A., Hausser, M. Propagation of action potentials in dendrites depends on dendritic morphology. J Neurophysiol. 85, 926-937 (2001).
- Bosch, M., Hayashi, Y. Structural plasticity of dendritic spines. Curr Opin Neurobiol. 22, 383-388 (2012).
- Mehnert, K. I., Cantera, R. Circadian rhythms in the morphology of neurons in Drosophila. Cell Tissue Res. 344, 381-389 (2011).
- Sigrist, S. J., Reiff, D. F., Thiel, P. R., Steinert, J. R., Schuster, C. M. Experience-dependent strengthening of Drosophila neuromuscular junctions. J Neurosci. 23, 6546-6556 (2003).
- Ruiz-Canada, C., Budnik, V. Introduction on the use of the Drosophila embryonic/larval neuromuscular junction as a model system to study synapse development and function, and a brief summary of pathfinding and target recognition. Int Rev Neurobiol. 75, 1-31 (2006).
- Menon, K. P., Carrillo, R. A., Zinn, K. Development and plasticity of the Drosophila larval neuromuscular junction. Wiley Interdiscip Rev Dev Biol. 2, 647-670 (2013).
- Kraut, R., Menon, K., Zinn, K. A gain-of-function screen for genes controlling motor axon guidance and synaptogenesis in Drosophila. Curr Biol. 11, 417-430 (2001).
- Parnas, D., Haghighi, A. P., Fetter, R. D., Kim, S. W., Goodman, C. S. Regulation of postsynaptic structure and protein localization by the Rho-type guanine nucleotide exchange factor dPix. Neuron. 32, 415-424 (2001).
- Eaton, B. A., Fetter, R. D., Davis, G. W. Dynactin is necessary for synapse stabilization. Neuron. 34, 729-741 (2002).
- Laviolette, M. J., Nunes, P., Peyre, J. B., Aigaki, T., Stewart, B. A. A genetic screen for suppressors of Drosophila NSF2 neuromuscular junction overgrowth. Genetics. 170, 779-792 (2005).
- Collins, C. A., Wairkar, Y. P., Johnson, S. L., DiAntonio, A. Highwire restrains synaptic growth by attenuating a MAP kinase signal. Neuron. 51, 57-69 (2006).
- Nijhof, B., et al. A New Fiji-Based Algorithm That Systematically Quantifies Nine Synaptic Parameters Provides Insights into Drosophila NMJ Morphometry. PLoS Comput Biol. 12, e1004823(2016).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 9, 676-682 (2012).
- Brent, J. R., Werner, K. M., McCabe, B. D. Drosophila larval NMJ dissection. J Vis Exp. , (2009).
- Dubos, A., et al. Conditional depletion of intellectual disability and Parkinsonism candidate gene ATP6AP2 in fly and mouse induces cognitive impairment and neurodegeneration. Hum Mol Genet. 24, 6736-6755 (2015).
- Nijhof, B., et al. Drosophila NMJ Morphometrics. , figshare https://doi.org/10.6084/m9.figshare.2077399. (2017).
- Ferreira, T., Rasband, W. ImageJ User Guide IJ 1.46. , http://rsbweb.nih.gov/ij/docs/guide/146-29.html (2014).
- Ferreira, T., Rasband, W. ImageJ User Guide IJ 1.46. , Available from: http://fiji.sc/Auto_Threshold (2014).
- Pielage, J., et al. A presynaptic giant ankyrin stabilizes the NMJ through regulation of presynaptic microtubules and transsynaptic cell adhesion. Neuron. 58, 195-209 (2008).
- Koch, I., et al. Drosophila ankyrin 2 is required for synaptic stability. Neuron. 58, 210-222 (2008).
- Iqbal, Z., et al. Homozygous and heterozygous disruptions of ANK3: at the crossroads of neurodevelopmental and psychiatric disorders. Hum Mol Genet. 22, 1960-1970 (2013).
- Prokop, A. Organization of the efferent system and structure of neuromuscular junctions in Drosophila. Int Rev Neurobiol. 75, 71-90 (2006).
- Wan, H. I., et al. Highwire regulates synaptic growth in Drosophila. Neuron. 26, 313-329 (2000).
- Shi, L., Fu, A. K., Ip, N. Y. Molecular mechanisms underlying maturation and maintenance of the vertebrate neuromuscular junction. Trends Neurosci. 35, 441-453 (2012).
- Sutcliffe, B., Forero, M. G., Zhu, B., Robinson, I. M., Hidalgo, A. Neuron-type specific functions of DNT1, DNT2 and Spz at the Drosophila neuromuscular junction. PLoS One. 8, e75902(2013).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biol. 7, R100(2006).
重印与许可
