代谢能力 体外 系统是药物和毒物生物转化与处置的关键要求。在本方案中,我们描述了应用参考代谢探针评估细胞培养中Ⅰ相代谢的方法。
本文内容
摘要
摘要
外源性物质代谢酶在药物和毒物的生物转化过程中发挥关键作用,通过添加功能基团增加其溶解度,从而促进排泄。在某些情况下,这些结构修饰可能导致生成新的有毒产物。为了减少动物实验,可利用具有代谢活性的细胞来评估化学物质的风险。然而,许多细胞中代谢酶的表达随时间推移并不稳定 体外 原代培养系统中常见,但在细胞系中往往不完全或缺失。因此,对药物、添加剂以及环境污染物代谢的研究 体外 理想情况下,应在已表征代谢活性的细胞体系中进行。本文介绍一种利用化学探针及其可被超高效液相色谱-质谱法(UPLC-MS)和发光检测法定量的代谢产物,来测定二维细胞系和原代三维培养物中一类代谢酶(人I相代谢酶)活性的方法。该方法可用于检测来源于多种组织的细胞系和原代细胞中的代谢活性。
引言
异源物代谢是通过向体内外来化学物质添加亲水基团并形成结合物,以促进其排泄的生化过程1通常,外源性物质的代谢是一个两步过程,其中第一阶段主要是氧化反应,加入一个或多个羟基基团1,2在第二阶段,羟基被用作亲水性结合物(如葡萄糖醛酸或硫酸基团)的受体1,2如果分子上已存在受体基团,则偶联反应可独立于Ⅰ相代谢进行。每种反应均由特定的酶类催化完成。 例如,细胞色素P450酶(CYPs),可催化羟基化反应(图1) 和化学底物的脱烷基化3. 结合反应由磺基转移酶和尿苷二磷酸葡萄糖醛酸转移酶(UDP-glucuronosyltransferases,图1谷胱甘肽-S-转移酶和N-乙酰转移酶4每种组织和器官都具有特定的代谢酶表达谱,其中肝脏表达的此类蛋白质最为丰富。
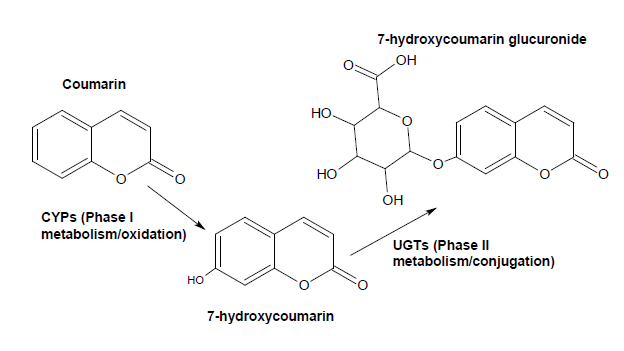
图 1:香豆素的 I 相和 II 相代谢示例。CYP2A6/CYP2A13 催化香豆素的 7-羟基化反应。7-羟基香豆素由 II 相酶 UGTs 与葡萄糖醛酸基团结合,其中 UGT1A6 和 UGT1A9 表现出最高的活性。
理解外源性物质的代谢对于药物安全性评价和化学物风险评估至关重要,原因有两点:反应动力学将决定药物或化学物在排出体外前以活性或非活性形式在体内存留的时间;此外,代谢酶可将原形化合物转化为更具反应性、不稳定且有毒性的物质。此类反应也称为“生物活化”,主要由I相CYP酶驱动,但在较少情况下也可由II相结合反应介导5。
基于此,一种的性能 体外 准确预测药物或化学物质相关风险的模型在很大程度上依赖于细胞系统的代谢能力。源自病变组织或由正常细胞转化而来的细胞系,往往部分甚至完全丧失了其原始组织所具有的代谢酶谱特征。6正常代谢酶谱的维持在原代细胞培养中表现更佳(至少在短期培养中如此),若将组织培养于可使其保持三维结构的基质中,其效果会进一步改善。1因此,表征某种代谢能力的完整性 体外 细胞系统是指导选择适当细胞模型进行化学品安全性评价的重要初步步骤。
本文介绍了一种用于分析I相CYP酶活性与表达的实验方案 体外 以肝细胞系的应用实例7 和三维原代肺细胞培养8CYP 特异性底物、其代谢产物和抑制剂对照,以及基于质谱法和发光法的定量方法均进行了描述。由于某些 CYP 具有可诱导性,而另一些则为组成型表达,因此也将给出这两种情况的示例。
方案
注意: 代谢活性检测的一般工作流程概述如下 图2该工作流程的每个步骤将在下文各段中逐一详细说明。试剂和设备的详细列表见下表。 材料表.
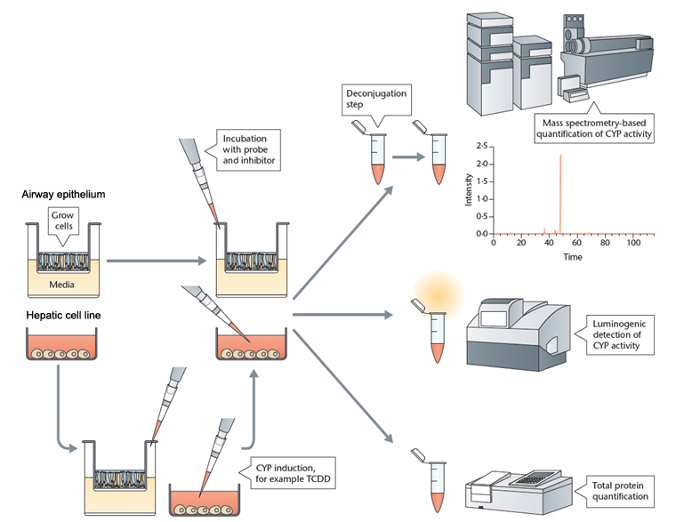
图 2:代谢探针检测的工作流程。 将细胞接种并培养至适当的密度。根据所检测的酶活性,可能需要进行 CYP 诱导步骤。向细胞培养物中加入探针底物和抑制剂。经过一段时间的孵育后,收集培养基用于分析,同时裂解细胞以进行蛋白定量。对培养基进行处理,通过质谱法或发光法分析探针底物的代谢产物。请点击此处查看该图的放大版本。
1. 细胞培养
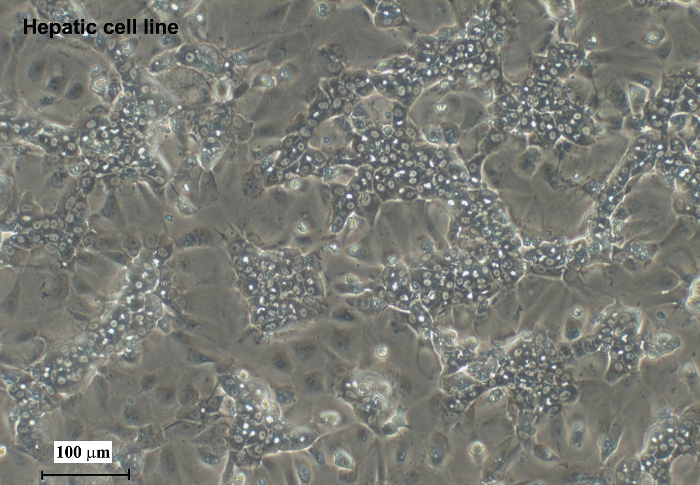
图 3:肝细胞系培养的透射光显微图像。本方案中描述的细胞系5在培养条件下通常分化为胆管细胞和肝细胞,比例约为50%(100倍放大)。比例尺 = 100 μm。请点击此处查看该图的高清版本。
- 肝细胞系培养
注意: 一种可商业获取的肝细胞系被用作具有代谢能力细胞的示例。该细胞系源自病毒感染引起的肝癌7。当达到汇合时,该细胞系可分化为胆管样细胞和肝细胞样细胞(图3)更多细节可参见 Guillouzo7在培养基中添加2% DMSO有助于该细胞系的分化及多种CYPs的表达。- 从液氮中取出装有细胞的冻存管,置于干冰上运输。将冻存管转移至预热至 37 °C 1-2 分钟,并在放入超净工作台前用 70% 乙醇擦拭瓶身外表面进行消毒。
- 在无菌条件下操作时,小心打开冻存管以释放可能存在的多余压力,并将冻存管中的内容物转移至含有9 mL预热Williams' E培养基的10 mL离心管中 37 °C.
- 在室温下以 400 × g 离心溶液 10 分钟,弃去上清液,将细胞重悬于 5 mL 预先温育的专用解冻培养基中 37 °C,添加谷氨酰胺或谷氨酰胺补充剂(终浓度为 2 mM)(Williams' E 培养基 + 谷氨酰胺补充剂 + 复苏补充剂)。
- 使用细胞计数板对活细胞进行计数 500 μL 使用细胞计数器或任何其他合适的细胞计数技术进行分装。
- 将细胞以0.6 × 10⁵个/孔的密度接种于24孔胶原蛋白包被的培养板中6 每孔0.5 mL解冻培养基中含活细胞。
- 将平板放入培养箱中,在 37 °C 含5% CO₂和95%空气的混合气体2/空气和100%相对湿度。
- 细胞接种24小时后,将培养基更换为0.5 mL预热的维持/代谢工作培养基(Williams' E + 谷氨酰胺补充剂 + 代谢补充剂(该培养基已含有DMSO))。每两天更换一次培养基。
- 培养数天后,细胞形成亚融合的小梁状结构(图3最佳代谢活性通常出现在第7至10天之间,在第4天时最低。
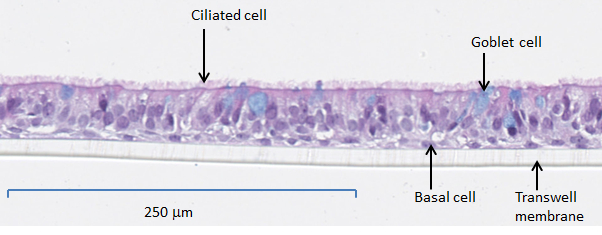
图4:气液界面培养的经阿利新蓝染色气道细胞的横切面8。
纤毛细胞、黏液分泌细胞和基底细胞清晰可见。比例尺 = 250 μm。
- 分化气道上皮细胞培养物
注意: 该方案展示了一种在插入式培养插件上于气液界面培养的、可商业获得的完全分化的原代呼吸道上皮模型8 (图4组织培养物保持纤毛黏液表型和细胞极性8细胞可来源于鼻腔或支气管,此处使用人鼻腔细胞。细胞以24孔插入式培养板的形式提供,培养于气液界面。为便于运输并防止培养基溢出,插入式培养小室的基底部分被包埋在含有培养基的琼脂糖凝胶基质中。- 细胞送达后,先用70%乙醇溶液对含有24个插入式培养小室的培养板进行灭菌处理,然后置于洁净的超净工作台中。
- 准备一个无菌的24孔板,加入预热的 700 μL 专用培养基
- 使用无菌镊子将细胞小室从琼脂糖基质中轻轻取出,并转移至预先加入培养基的新培养板中。
- 将平板放入培养箱中,在 37 °C 5% / 95% CO₂2/空气和100%相对湿度。
- 每2天将小室转移至预先装有无菌24孔板的新板中 700 μL 温热的专用气道细胞培养基。
- 使用跨上皮电阻(TEER)或配备实时视频成像系统的显微镜检测纤毛搏动频率(CBF)等方法,评估气道组织的完整性9跨上皮电阻(TEER)和纤毛搏动频率(CBF)的测量方法详见 Kuehn 的研究10.
2. 细胞培养中CYP活性的定量分析
注意:: 通常情况下,可使用 DMSO 和甲醇等溶剂来配制本文所述的各种代谢探针和抑制剂的储备液。然而,建议将培养基中的终浓度 DMSO 降至最低(1% 或更低),因为高浓度可能抑制代谢酶活性。在使用代谢探针孵育时,如条件允许,建议采用不含酚红和血清的培养基,因为酚红可能干扰细胞色素 P450 酶(CYPs)和 II 相代谢酶的活性,而血清中的成分(如白蛋白)可能降低探针的可利用性。在某些情况下,可能无法严格遵循这些指导原则。例如,气道细胞培养基为专有配方,含有酚红;而专有的肝细胞系代谢培养基7 中 DMSO 浓度已超过 1%,因为该浓度是细胞获得肝细胞样表型所必需的。
注意:此处使用了“特异性探针/抑制剂”这一术语,但该术语的使用需谨慎。事实上,代谢探针极少是某种酶的专一性底物。然而,本文所述的探针对其靶酶具有高亲和力,因此被视为可靠的活性标志物。
- 代谢探针、诱导剂和抑制剂
- 基于质谱技术的探针方法
注意: 本节所述探针和抑制剂适用于检测CYP2A酶的活性11CYP1A212,13CYP2B67,14CYP2F115,16和 CYP2E117 通过超高效液相色谱-质谱法(UPLC-质谱法)进行检测。所用探针、抑制剂及其对应的CYP酶如下所述。 表1 并附相应参考文献。 表1 还列出了通过质谱法进行定量的CYP活性的代谢产物。所有涉及组织培养及用于组织培养的溶液操作,均须在无菌的组织培养罩内进行。所有探针底物均可使用DMSO配制储备液。- 实验前准备两组细胞小室或孔板,一组用于抑制实验,另一组仅用于代谢探针检测。另准备第三组细胞作为培养基空白对照。这些组别可置于不同的板上,也可在同一板上进行,每组至少设置三个复孔。板式布局示例如下所示。 图5.
- 在实验当天,将细胞培养基更换为 450 μL 新鲜培养基
- 在无菌操作台中,使用细胞培养基配制以下溶液的10倍浓度:混合10倍浓度CYP探针、10倍浓度CYP抑制剂,以及10倍浓度CYP抑制剂加10倍浓度探针。
注意: 抑制剂和探针的母液可在100% DMSO中配制(例如,1,000 倍浓缩液)进一步用培养基稀释,配制成 10 倍浓缩液,以避免细胞培养中二甲基亚砜(DMSO)终浓度超过 1%。与细胞共孵育时目标终浓度(1x)如表所示 表1. - 用滤器过滤不同的10x探针溶液 0.2 μm 注射器滤器
- 添加 50 μL 向为抑制实验准备的细胞系列中加入含10倍浓度CYP抑制剂的培养基,并预孵育30分钟。
- 更换抑制系列中细胞的培养基 450 μL 新鲜培养基并添加 50 μL 含10倍浓度CYP抑制剂和10倍浓度探针底物的培养基
- 添加到其他细胞中 50 μL 含10倍浓度探针底物的培养基,并加入等量用培养基稀释的载液例如,DMSO)加入空白细胞对照组,如图所示 图5.
- 将细胞在细胞培养箱中孵育 0 - 5 分钟(时间 0,背景对照)和 16 小时。
注意: 该孵育时间已成功用于气道细胞和肝细胞系;然而,新鲜原代肝细胞具有较高的代谢能力,具体取决于细胞制备的质量和供体的遗传背景,因此更短的时间(例如,2-4 小时)可能是合适的。在测试不同细胞系或细胞类型时,始终建议进行时间进程实验。 - 孵育结束后,将培养基收集至预先标记的离心管中,用于检测探针的代谢产物。将收集的培养基冷冻保存,以备后续处理。
- 裂解细胞以进行蛋白质定量。
注意: 任何标准的蛋白质定量试剂盒和方案均适用于此步骤,BCA 法是一种合适的选择。如果细胞需用于其他检测,则此步骤为可选。
- 培养基处理
注意: 孵育阶段收集的培养基中含有母体探针化合物及其代谢产物。为了特异性地测定某种CYP酶的活性,应仅定量该CYP酶所催化反应的产物。I相代谢产物常与II相代谢(结合反应)同时发生,因此无法直接检测其原始形式。因此,为了最准确地定量CYP酶活性,需进行去结合步骤,以去除II相代谢所引入的修饰基团。由于I相代谢产物的结合反应通常涉及葡萄糖醛酸化或硫酸化,因此可通过葡萄糖醛酸酶和硫酸酯酶处理样本实现去结合。18葡萄糖醛酸酶和硫酸酯酶的活性具有pH依赖性,其中葡萄糖醛酸酶在pH 4.5–5.0时活性最高,而硫酸酯酶在pH 6.0–6.5时活性最高。因此,该步骤需要进行pH调节。在本方法中,出于操作便利性考虑,我们使用pH试纸测定pH值,因为大多数pH计电极无法插入1.5 mL微量离心管中。市面上可购得的pH试纸分辨率可低至0.3至0.2 pH单位。- 转移 250 μL 向1.5 mL离心管中加入孵育介质,并添加4-甲基伞形酮内标储备液,使其终浓度为100 nM。
- 通过加入 1 M HCl 将培养基的 pH 值调节至 4.5–5.0。加入 1 μL 每次加入 HCl,并通过移液确认 pH 值 2 μL 将适量培养基滴加到pH试纸上。达到pH 5.0通常不需要超过5-10 μL 1 M HCl
- 加入150单位(1.8 μL 85,000 单位/毫升储备液的 β-葡萄糖醛酸酶/芳基硫酸酯酶 Helix pomatia 并在 37 °C 下孵育 1 小时 37 °C加入终止液以终止反应 250 μL 冷甲醇(-20 °C). 将样品储存在 -20 °C 或进一步处理。
- 使用真空离心机蒸发溶剂 45 °C. 用指定溶液重悬样品 500 μL 30%乙腈:水溶液。样品现已可用于质谱分析,可储存于-20 °C 在琥珀色玻璃小瓶中。
- 基于质谱的定量分析
注意: 所有UPLC和质谱仪的设置参数均在专门的 补充表 1进行定量分析时,需要建立标准曲线。标准曲线通过测定待测化合物的一系列已知浓度稀释样本来获得。本实验中,标准曲线基于10个不同浓度点生成(表 2),其中至少有6个应在线性范围的20%以内19最低检测限确定为产生信号大于或等于平均背景信号3倍的最低浓度。最低定量限确定为产生信号大于或等于平均背景信号10倍的最低浓度样品,二者均基于至少3次独立实验,每次实验设三个复孔。- 根据组织培养基中的合成代谢物制备一系列梯度稀释液 表2,包括内标。最终体积为 250 μL 每标准稀释度是足够的。
- 按照步骤2.1.2.4所述,将标准品的系列稀释液蒸发至干,并用相当于蒸发前培养基体积的30%乙腈:水溶液重新溶解。例如, 250 μL 30% 乙腈:水,如果起始标准溶液为 250 μL (培养基的量)
- 添加 250 μL 将每个系列稀释标准品加入棕色UPLC玻璃小瓶中,用于UPLC-MS自动进样器进样。
- 加入待测样本(250 μL) 转移至琥珀色UPLC小瓶中,并置于UPLC自动进样器中。
- 将所有小瓶随机化。
注意: 我们使用的质谱仪配置为混合型三重四极杆/线性离子阱质谱仪,该仪器与超高效液相色谱联用,具体信息详见下文 补充表1其他平台可能使用不同的软件和配置,但执行定量分析的步骤类似。 - 使用详细描述的设置运行UPLC-MS 补充表 1 取决于待定量的具体探针。
- 使用质谱仪定量工具中的“定量 - 建立定量方法”工具材料表) 利用获得的合成标准品和内标物绘制校准曲线。
- 使用“定量向导”选择待定量的样本批次及样本,并执行“定量方法”。质谱仪定量软件将显示一个电子表格,其中包含各测试样本中目标化合物的定量数值。
- 基于发光原理的探针
注意: 可用于测量多种CYP活性的发光探针已商业化提供;然而,并非所有探针均适用于基于细胞的检测。本文介绍了一种用于测定CYP1A1/CYP1B1活性的实验方案。选择CYP1A1/1B1旨在示范如何检测可诱导型CYP酶的活性,并举例说明发光探针如何作为质谱法检测的替代方法。 表3 总结了我们用于气道细胞和肝细胞系的浓度及孵育时间;然而,这些参数可能需要根据其他细胞类型进行调整。其他发光探针可从商业途径获得,并可作为多种CYP酶的底物使用。- 准备足够的细胞,以包括非诱导对照组、诱导测试组以及诱导加抑制剂测试组。示例的培养板布局如下所示 图 5B.
- 为诱导CYP1A1/1B1,将细胞在培养基中与终浓度为10 nM的TCDD共同孵育72小时(较短时间为24至48小时也可能适用)。
警告:TCDD 是致癌物和致畸物。使用前请穿戴适当的防护装备,查阅供应商提供的材料安全数据表(MSDS),并进行风险评估。 - 孵育结束后,吸去培养基,用 PBS 洗涤孔板 3 次,然后加入新鲜培养基。
- 在将细胞与发光报告探针孵育之前,先将指定的诱导细胞亚群与终浓度为 10 μM 培养基中添加 CYP1A1/1B1 抑制剂 α-萘黄酮。
- 加入发光探针 LUC-CEE(Luciferin 6'-氯乙基醚),终浓度为 50 μM 非诱导组、诱导组及诱导加抑制剂组细胞。
- 在细胞培养箱中孵育 4 h。孵育结束后,收集培养基用于发光探针的定量分析。
- 转移 25 μL 将培养基加入白色不透明的96孔板中,并添加 25 μL 按照制造商提供的荧光素检测试剂说明书操作,室温孵育20分钟。立即使用化学发光仪读板。
- 用 PBS 清洗细胞,然后裂解以进行总蛋白定量。
注意: 如果需要将活细胞保留用于后续实验,此步骤为可选。但需注意,TCDD 等诱导剂具有毒性,会对细胞造成损伤。
- 基于质谱技术的探针方法
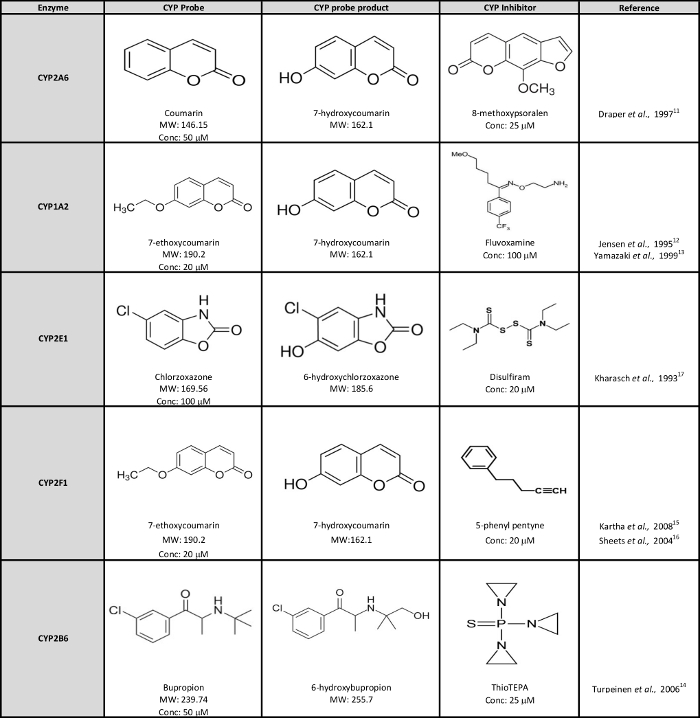
表1:代谢探针、产物及抑制剂及其对应的酶。还列出了在气道和肝细胞中使用的推荐浓度及分子量。请点击此处查看该图的放大版本
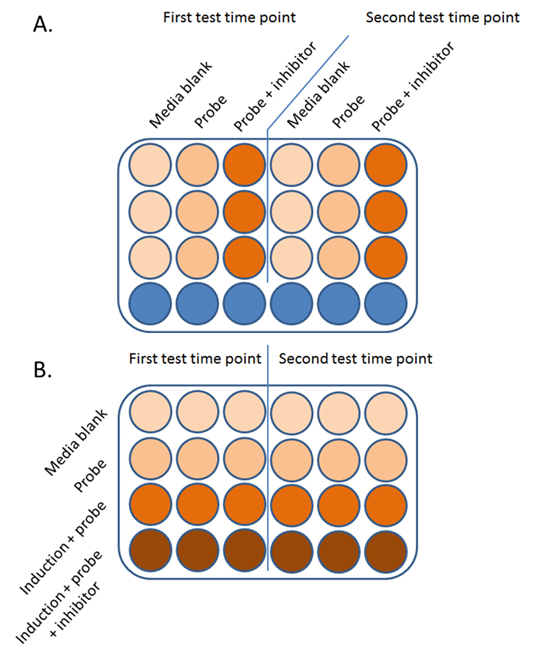
图 5:进行 CYP 检测的推荐 24 孔板布局。(A)针对组成型表达 CYP 的推荐布局,包括用于空白培养基、代谢探针以及代谢探针加抑制剂的一系列孔。该布局可根据所测试的时间点数量进行倍增。(B)针对可诱导 CYP 的示例布局,包括用于培养基空白、仅代谢探针对照、经诱导剂(e.g.,TCDD)诱导的细胞)与探针共同孵育、以及与探针和抑制剂共同孵育的一系列孔。
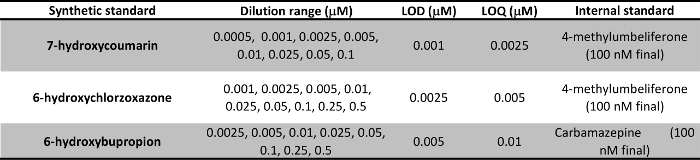
表 2:用于校准曲线的合成标准品稀释方案及相应的检测限(LOD)和定量限(LOQ)。所用稀释范围可能因质谱平台和灵敏度而异。本研究中采用超高效液相色谱串联混合型三重四极杆/线性离子阱质谱仪。请点击此处查看该图的放大版本。
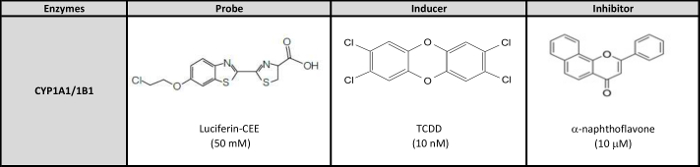
表 3:CYP1A1/1B1 检测用发光探针、诱导剂和抑制剂。请点击此处查看该图的放大版本。
结果
在三个不同供体(气道M360、M370、M417)的气道细胞培养物及肝细胞系(Hep line)中,测得两对CYP酶(CYP1A1/1B1和CYP2A6/2A13)代谢活性的示例结果如图所示 图620.
通过发光测定法测量的CYP活性
图6A展示了在气道细胞(3名供体)和肝细胞中,Luc-CEE(荧光素6'-氯乙基醚)经CYP1A1/1B1 O-去烷基化活性产生的相对发光量,检测条件包括有或无TCDD诱导。CYP1A1/1B1是高度可诱导的酶,通常在大多数组织中不以组成性方式表达。如图6A所示,在未诱导的细胞中未检测到发光信号。当两种细胞均预先与TCDD(一种强效CYP1A1/1B1诱导剂)孵育后,与对照组相比可检测到显著的发光信号(图6A)。这表明Luc-CEE探针已被代谢,从而释放出荧光素部分,后者被进一步定量检测。总体而言,经TCDD处理的肝细胞系的活性低于气道细胞,即使在总蛋白归一化后仍如此。这种情况并不罕见,因为细胞系通常比原代细胞代谢活性更低。加入α-萘黄酮后,在所有细胞类型中均对CYP1A1/1B1活性产生明显抑制作用,进一步证实了Luc-CEE代谢依赖于CYP酶。
使用超高效液相色谱-质谱法(UPLC-MS)定量CYP450代谢产物
图6B展示了在存在或不存在抑制剂8-甲氧基补骨脂素的条件下,3名供体(气道M343、M345、M347)的气道细胞和肝细胞(Hep细胞系)中CYP2A6/2A13活性的定量结果。数据已根据总蛋白量进行归一化处理。在0分钟香豆素孵育对照组中,未检测到7-羟基香豆素(图6B)。CYP2A6/2A13在某些组织中组成性表达,因此在香豆素孵育16小时后,即使未经诱导,也在所测试的不同细胞类型中检测到7-羟基香豆素的生成。当加入CYP2A抑制剂8-甲氧基补骨脂素后(图6B),7-羟基香豆素的生成显著减少。
需要注意的是,在存在CYP抑制剂的情况下,仍检测到一些残余活性是正常的,因为抑制作用很少能完全彻底,而且其他CYP酶也可能识别该底物,但催化效率要低得多。此外,使用原代细胞时,不同供体之间的代谢活性可能存在差异,气道细胞中CYP2A6的表现即是一个可见的例子(图6B)。这是预期之中的现象,因为CYP酶的活性受每个供体的基因型和多态性影响。
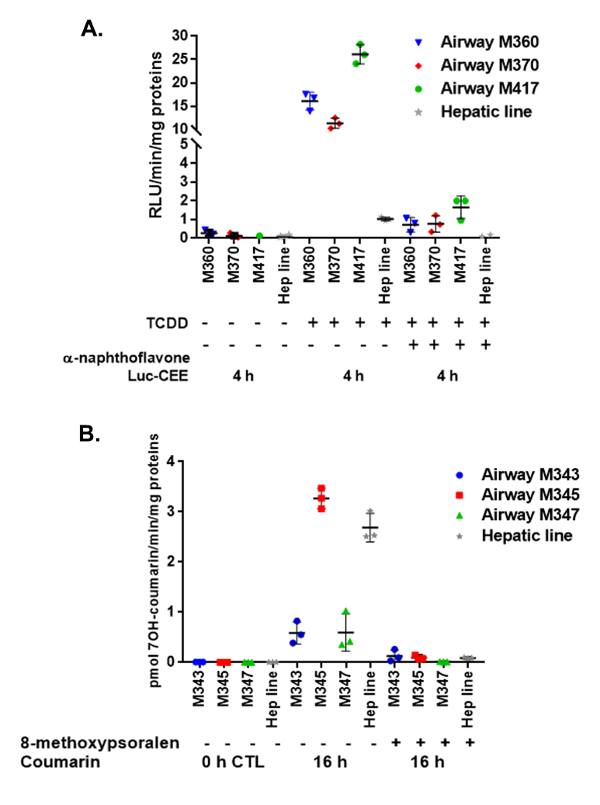
图6:肝细胞系及三位气道细胞供体(M360、M370、M417)中CYP1A1/1B1活性(A)和CYP2A6/2A13活性(B)的检测结果。(A)显示在有或无TCDD诱导CYP1A1/1B1的情况下,Luc-CEE去烷基化活性。使用α-萘黄酮作为CYP1A1/1B1抑制剂。活性以相对发光单位(RLU)表示,并根据孵育时间(分钟,min)和总蛋白量(mg)进行归一化。(B)CYP2A6/2A13无需诱导,因其为组成型表达。在不同时间点显示了有或无抑制剂8-甲氧基补骨脂素存在时,每分钟每毫克蛋白中香豆素7-羟基化活性(pmol/min/mg蛋白)。所有结果均表示为三次独立测量的平均值及其标准差。该图改编自Baxter20。
补充表1:超高效液相色谱和质谱仪设置。请点击此处下载该文件。
讨论
目前,许多标准化的毒理学测试系统使用经过基因改造的细菌、细胞系或胚胎细胞,这些细胞并不能代表正常的人类代谢1。这可能导致对化学物质或药物潜在毒性作用的预测不准确。为了更真实地模拟人体组织的正常形态和代谢活性,研究人员正在开发创新的体外(in vitro)模型,例如三维(3D)细胞培养和器官芯片技术21,22,23。代谢能力是可用于判断哪些模型最适合进行毒理学评估和药物生物转化研究的一个关键标准。
本文所述方案旨在利用活细胞测定CYP酶的活性。该方法具有灵活性,适用于二维或三维培养条件下的不同细胞体系,并可选择基于发光探针或质谱分析的方法。两种方法均具有足够灵敏度,可检测纳克级物质,仅需在多孔板中培养的少量细胞即可完成检测。此外,这些方法也可应用于球状体或在复杂基质中培养的细胞。探针底物的选择显然是本方案中的关键环节。检测的特异性依赖于探针对于CYP酶的选择性,而通过使用特异性CYP抑制剂可进一步提高检测的可靠性。本文列出的底物和抑制剂仅为部分示例,更多选择可参考相关文献。
在使用新的细胞类型时,应考虑设置多个孵育时间,因为细胞色素P450(CYP)活性呈阴性结果可能是由于该酶表达水平较低所致。建议同时加入可用作阳性对照的细胞类型,以确保阴性结果并非由技术问题引起,并有助于后续的问题排查。原代肝细胞具有代谢功能,可作为对照使用,例如悬浮状态的原代肝细胞使用简便,但其活力随时间迅速下降。肝细胞系是另一种可行的替代方案,如本实验方案所述,其操作相对简便,但在代谢活性方面,不同细胞系之间存在差异6,21。
由于该检测方法具有非破坏性,除非测定总蛋白含量,否则可以在纵向研究中持续监测CYP活性20。这一点非常重要,因为某些细胞在培养过程中CYP活性会随时间发生波动。阴性结果可能与细胞未达到融合、分化进程不足或体外去分化有关。in vitro。在这种情况下,该方法为半定量,因为数据未根据每份细胞培养物中的总蛋白量进行归一化处理。在测定CYP活性后,并不总是可以或建议重复使用组织,因为探针、抑制剂或诱导剂的暴露可能对组织产生毒性作用,TCDD即为一例。
诸如微粒体等细胞组分也可用于表征特定细胞类型的细胞色素P450(CYP)活性。然而,微粒体制备需要大量细胞材料,并需添加适当的辅因子和缓冲液,以确保酶保持活性。使用活细胞可省去复杂的微粒体制备步骤,同时避免筛选最佳缓冲液和辅因子组合的过程。
通常建议进一步表征细胞培养物中细胞色素P450(CYP)的表达谱,以验证其与酶活性相匹配。由于代谢探针并非完全特异性地针对单一CYP,因此建议进行这一额外的验证步骤,以增强所测得的代谢活性与相应酶表达水平一致性的可信度。由于CYP为膜蛋白,制备其用于Western印迹相对困难,因此定量RT-PCR一直是表征这些酶的首选方法20。
需要注意的是,本方案描述的是一种检测CYP酶活性的方法,仅代表代谢酶的一个家族,尽管这是一个重要的家族。质谱分析方法的灵活性允许针对探针底物的其他代谢转化开发相应的检测方法。然而,这些方法必须逐一开发,目前针对其他代谢酶家族的特异性探针和选择性抑制剂相对较少。这一空白亟待填补,以实现对代谢能力的全面评估 体外 细胞系统
披露
A.B. 和 E.M. 在撰写本手稿时为英美烟草公司员工。本手稿所述工作由英美烟草公司资助,本视频文章的出版费用亦由英美烟草公司支付。
致谢
作者感谢 Epithelix Sarl 和 Biopredic International 提供气道细胞和肝细胞显微图像,以及 Neil Smith 提供的实验流程示意图。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| <强>试剂 &和细胞 | |||
| 2 μm 注射器滤器 | Whatman | UN203NPEORG | |
| 24孔板 | 康宁 | 3524 | |
| 4-甲基伞形酮 | Sigma Aldrich | M1381 | |
| 5-苯基戊炔 | Sigma Aldrich | CD5001437 | |
| 6-羟基布普品 | Sigma Aldrich | H3167 | |
| 6-羟基氯唑沙宗 | Sigma Aldrich | UC148 | |
| 7-乙氧基香豆素 | Sigma Aldrich | 195642 | |
| 7-羟基香豆素 | Sigma Aldrich | H24003 | |
| 8-甲氧基补骨脂素 | Sigma Aldrich | M3501 | |
| 乙酸 | Sigma Aldrich | 695092 | |
| 乙腈 | Fisher | A/0626/17 | |
| αα-萘黄酮 | Sigma Aldrich | N5757 | |
| BCA 试剂盒 | 赛默飞世尔科技 | 23227 | |
| β-葡萄糖醛酸酶/芳基硫酸酯酶 | Sigma Aldrich | G0876 | |
| 安非他酮 | Sigma Aldrich | B102 | |
| 卡马西平 | Sigma Aldrich | C4024 | |
| 氯唑沙宗 | Sigma Aldrich | C4397 | |
| 胶原蛋白 | 细胞系统 | 5005-B | |
| 香豆素 | Sigma Aldrich | C4261 | |
| 双硫仑 | Sigma Aldrich | 86720 | |
| 氟伏沙明 | Sigma Aldrich | F2802 | |
| 谷氨酰胺补充剂(Glutamax) | Fisher | 35050061 | |
| HepaRG 代谢补充剂 | 默克 | MMAD621 | |
| HepaRG 复苏培养基添加剂 | 默克 | MMADD671 | |
| HepaRG | 默克 | MMHPR116 | |
| 荧光素-CEE | Promega | V8751 | |
| 甲醇 | Fisher | M/4056/17 | |
| MucilAir 气道细胞 | 上皮层 | EP01 | |
| MucilAir 气道细胞培养维持培养基 | 上皮层 | EP04MM | |
| Phenomenex Kinetex 2.6 μm,PFP 100A | Phenomenex | 00B-4477-AN | |
| TCDD | Sigma Aldrich | 48599 | |
| thioTEPA | Sigma Aldrich | T6069 | |
| Waters Acquity UPLC HSS T3 1.8 µ2.1 × 50 mm | 沃特斯 | 86003538 | |
| Williams’ E 培养基 | Fisher | 17704-024 | |
| <强>名称 | <强>公司 | <强>货号 | <强>评论 |
| <强>仪器设备 | |||
| 超高效液相色谱 | Waters | Acquity | |
| QTRAP 质谱仪 | Sciex | ABI Sciex 4000 | |
| QTRAP 质谱软件 | Sciex | Analyst 1.4.2 | |
| 光度计 | Molecular Devices | SpectraMax M3 | |
| 分光光度计 | Molecular Devices | SpectraMax M3 | |
| 细胞计数仪 | 贝克曼库尔特 | Vi-Cell XR | |
| 旋转蒸发仪 | Eppendorf | Eppendorf-5301 |
参考文献
- Garcia-Canton, C., Minet, E. Metabolic Characterization of Cell Systems Used in In Vitro Toxicology Testing. Encyclopedia of Drug Metabolism and Interactions. , 1-31 (2016).
- Croom, E. Metabolism of xenobiotics of human environments. Prog. Mol. Biol. Transl. Sci. 112, 31-88 (2012).
- Lewis, D. F. 57 varieties: the human cytochromes P450. Pharmacogenomics. 5, 305-318 (2004).
- Jancova, P., Anzenbacher, P., Anzenbacherova, E. Phase II drug metabolizing enzymes. Biomed. Pap. Med. Fac. Univ Palacky. 154, Olomouc. Czech. Repub. 103-116 (2010).
- Dekant, W. The role of biotransformation and bioactivation in toxicity. EXS. 99, 57-86 (2009).
- Donato, M. T., Lahoz, A., Castell, J. V., Gomez-Lechon, M. J. Cell lines: a tool for in vitro drug metabolism studies. Curr. Drug Metab. 9, 1-11 (2008).
- Guillouzo, A., et al. The human hepatoma HepaRG cells: a highly differentiated model for studies of liver metabolism and toxicity of xenobiotics. Chem. Biol. Interact. 168, 66-73 (2007).
- Huang, S., Wiszniewski, L., Constant, S., Roggen, E. Potential of in vitro reconstituted 3D human airway epithelia (MucilAir) to assess respiratory sensitizers. Toxicol. In Vitro. 27, 1151-1156 (2013).
- Sisson, J. H., Stoner, J. A., Ammons, B. A., Wyatt, T. A. All-digital image capture and whole-field analysis of ciliary beat frequency. J. Microsc. 211, 103-111 (2003).
- Kuehn, D., et al. Impact assessment of repeated exposure of organotypic 3D bronchial and nasal tissue culture models to whole cigarette smoke. J. Vis. Exp. , (2015).
- Draper, A. J., Madan, A., Parkinson, A. Inhibition of coumarin 7-hydroxylase activity in human liver microsomes. Arch. Biochem. Biophys. 341, 47-61 (1997).
- Jensen, K. G., Poulsen, H. E., Doehmer, J., Loft, S. Kinetics and inhibition by fluvoxamine of phenacetin O-deethylation in V79 cells expressing human CYP1A2. Pharmacol. Toxicol. 76, 286-288 (1995).
- Yamazaki, H., Tanaka, M., Shimada, T. Highly sensitive high-performance liquid chromatographic assay for coumarin 7-hydroxylation and 7-ethoxycoumarin O-deethylation by human liver cytochrome P450 enzymes. J. Chromatogr. B. Biomed. Sci. Appl. 721, 13-19 (1999).
- Turpeinen, M., Raunio, H., Pelkonen, O. The functional role of CYP2B6 in human drug metabolism: substrates and inhibitors in vitro, in vivo and in silico. Curr. Drug Metab. 7, 705-714 (2006).
- Kartha, J. S., Yost, G. S. Mechanism-based inactivation of lung-selective cytochrome P450 CYP2F enzymes. Drug Metab. Dispos. 36, 155-162 (2008).
- Sheets, P. L., Yost, G. S., Carlson, G. P. Benzene metabolism in human lung cell lines BEAS-2B and A549 and cells overexpressing CYP2F1. J. Biochem. Mol. Toxicol. 18, 92-99 (2004).
- Kharasch, E. D., Thummel, K. E., Mhyre, J., Lillibridge, J. H. Single-dose disulfiram inhibition of chlorzoxazone metabolism: a clinical probe for P450 2E1. Clin. Pharmacol. Ther. 53, 643-650 (1993).
- Graef, V., Furuya, E., Nishikaze, O. Hydrolysis of steroid glucuronides with beta-glucuronidase preparations from bovine liver, Helix pomatia, and E. coli. Clin. Chem. 23, 532-535 (1977).
- Guide to achieving reliable quantitative LC-MS measurements. RSC Analytical Methods Committee. , Available from: http://www.lgcgroup.com/LGCGroup/media/PDFs/Our%20science/NMI%20landing%20page/Publications%20and%20resources/Guides/AMC_LCMS_Guide.pdf (2013).
- Baxter, A., et al. Targeted omics analyses, and metabolic enzyme activity assays demonstrate maintenance of key mucociliary characteristics in long term cultures of reconstituted human airway epithelia. Toxicol. In Vitro. 29, 864-875 (2015).
- Gomez-Lechon, M. J., Tolosa, L., Conde, I., Donato, M. T. Competency of different cell models to predict human hepatotoxic drugs. Expert. Opin. Drug Metab. Toxicol. 10, 1553-1568 (2014).
- Li, Z., et al. Assessment of metabolism-dependent drug efficacy and toxicity on a multilayer organs-on-a-chip. Integr. Biol. 8, Camb. 1022-1029 (2016).
- Takahashi, Y., et al. Three-dimensional (3D) spheroid cultures improve the metabolic gene expression profiles of HepaRG cells. Biosci. Rep. , (2015).
重印与许可
