细胞间连接是乳腺在特定发育阶段发挥功能和发育所必需的结构。本文提供了一种利用小鼠乳腺组织研究蛋白质-蛋白质相互作用(PPIs)及共定位的详细实验方案。这些技术可用于探究不同发育阶段下细胞间连接结构之间物理关联的动态变化。
本文内容
摘要
摘要
细胞间相互作用在维持乳腺组织完整性和不同区室之间的屏障中起着关键作用。这些相互作用由连接蛋白介导,连接蛋白在相邻细胞之间形成连接结构。连接蛋白的错误定位及其与结合伴侣之间物理关联的减少可能导致功能丧失,进而引起器官功能障碍。因此,在正常和疾病相关组织中鉴定蛋白质定位及蛋白质-蛋白质相互作用(PPIs)对于发现导致疾病进展或发育状态改变的新证据和机制至关重要。本文介绍了一种两步法,用于评估小鼠乳腺中的蛋白质-蛋白质相互作用。在方案第1部分中,描述了使用针对目标蛋白的特异性抗体进行共免疫荧光(co-IF)检测的方法,随后使用荧光染料标记的二抗进行检测。尽管共免疫荧光可用于展示蛋白之间的空间邻近性,但无法用于研究其物理相互作用。因此,在方案第2部分中提供了共免疫共沉淀(co-IP)的详细操作流程。该方法用于确定蛋白质之间的物理相互作用,但不能确认这些相互作用是直接还是间接的。近年来,共免疫荧光和共免疫共沉淀技术已证明,细胞间连接的某些组分在乳腺发育过程中共定位并相互作用,形成依赖于发育阶段且动态变化的连接结构。
引言
乳腺的生长和发育主要发生在出生后。该器官在整个哺乳动物的生殖生命周期中持续进行自我重塑1。成年乳腺上皮由内层的腔面上皮细胞和外层主要由肌上皮细胞构成的基底细胞层组成,其外周由基底膜包绕2。关于乳腺结构与发育的综述,读者可参考Sternlicht1。通过间隙连接(GJ)、紧密连接(TJ)和黏附连接(AJ)介导的细胞间相互作用对乳腺的正常发育和功能至关重要1,3,4,5,6。这些连接结构在小鼠乳腺中的主要组分包括:Cx26、Cx30、Cx32 和 Cx43(GJ);Claudin-1、-3、-4、-7 以及 ZO-1(TJ);以及 E-cadherin、P-cadherin 和 β-catenin(AJ)7,8。这些不同连接蛋白的表达水平在乳腺发育的不同阶段呈现时序依赖性变化,提示细胞间相互作用的需求存在差异9。GJ、TJ 和 AJ 在结构和功能上相互关联,并将其他结构或调控蛋白锚定于相邻细胞的邻近位点,从而形成连接复合体(junctional nexus)10。连接复合体的组成可影响其与下方细胞骨架的连接,以及复合体的通透性和稳定性,从而进一步影响乳腺的功能8,9,10,11。近期研究利用共免疫荧光(co-IF)和共免疫共沉淀(co-IP)技术,分析了在乳腺发育不同阶段定位于连接复合体中或彼此相互作用的细胞间连接组分9。尽管其他技术可用于评估蛋白质之间的功能关联,但这些方法未在本文中介绍。
蛋白质通常通过相互作用发挥功能,因此研究蛋白质-蛋白质相互作用(PPIs),如信号转导和生物化学级联反应,对许多研究人员至关重要,并可提供有关蛋白质功能的重要信息。共免疫荧光(co-IF)与显微分析有助于评估少数共存于相同亚细胞区域的蛋白质。然而,可检测目标的数量受限于抗体来源——抗体必须来自不同动物,同时也受限于是否具备配备不同波长激光器和光谱检测器的共聚焦显微镜以实现多重检测。共免疫沉淀(co-IP)可用于确认或揭示存在于同一蛋白复合物中的两种或多种蛋白质之间的高亲和力物理相互作用。尽管已发展出一些新技术,如荧光共振能量转移(FRET)12 和邻近连接实验(PLA)13,能够同时检测蛋白质的定位与相互作用,但共免疫沉淀仍是一种研究内源性蛋白质间相互作用的合适且经济的技术。
本文所述的逐步方法将有助于研究蛋白质定位及蛋白质相互作用(PPI),并指出在研究乳腺组织中内源性蛋白质相互作用时应避免的常见问题。该方法首先介绍每种技术所需组织样本的不同保存程序。第1部分介绍如何通过三个步骤研究蛋白质共定位:i)乳腺组织切片;ii)利用共免疫荧光(co-IF)技术对不同蛋白质进行双标或三标;iii)蛋白质定位的成像分析。第2部分展示如何通过三个步骤沉淀内源性蛋白质并鉴定其相互作用蛋白:i)裂解液制备;ii)间接蛋白质免疫共沉淀;iii)通过SDS-PAGE和Western blot鉴定结合伴侣蛋白。本方案的每个步骤均针对啮齿类动物乳腺组织进行了优化,可获得高质量、特异性强且可重复的结果。该方案也可作为在其他组织或细胞系中开展蛋白质相互作用研究的起点。
方案
本研究中使用的所有动物实验方案均经加拿大拉瓦尔市国立科学研究院-阿芒·弗拉里研究所动物护理委员会批准。
1. 鉴定蛋白质共定位
- 从组织到显微镜载玻片
注意:组织和切片应在干冰上操作。- 从动物体内切除乳腺组织(有关该操作的完整描述,请参见 Plante et al.)14。
- 将切除的组织置于干冰上的冷冻/包埋介质中包埋。加入足量介质以覆盖腺体。待介质凝固后,将组织转移至 -80 °C 冰箱中保存以备后续使用9。
- 使用设定温度 ≤ -35 °C 的冷冻切片机,将组织切成 7–10 μm 厚的切片,并将其放置于显微镜载玻片上。
注意:如有可能,每张载玻片放置两个切片;左侧切片用作阴性对照,以验证抗体的特异性和组织的自发荧光,右侧切片则用于抗体标记。 - 将切片保存在 -80 °C 环境中以备后续使用。
- 共免疫荧光染色(Co-IF)
- 从冰箱中取出合适的显微镜载玻片,并立即在室温(RT)下将其浸入 4% 甲醛中固定 15 分钟。
- 随后将载玻片浸入磷酸盐缓冲液(PBS)中,室温下静置,直至进行下一步操作。
- 使用市售疏水屏障笔或防水实验笔在载玻片上每个组织切片周围画圈(参见材料表)。注意避免接触组织。立即在组织上滴加 PBS 液滴,并将载玻片置于湿盒中继续后续操作。
注意:组织切片必须保持湿润。也可使用带盖盒子,在底部放置湿润的纸巾作为替代方案。 - 每份组织切片用 100–200 µL 的 3% 牛血清白蛋白(BSA)-Tris 缓冲盐水(TBS)-0.1% 吐温 20(参见材料表)在室温下封闭 30 分钟。在样本封闭的同时,用 TBS-0.1% 吐温 20 稀释一抗和二抗溶液。
注意:抗体所需浓度由生产商提供;示例请参见材料表以及图 1 和图 2,也可参考 Dianati et al.9。尽管使用大多数荧光标记抗体时无需避光操作,但仍应避免将抗体溶液或染色后的组织暴露于强光下。 - 吸除封闭液,加入 100–200 µL 稀释后的一抗溶液,在室温下孵育 60 分钟。或者,可在 4 °C 下过夜孵育。
- 吸除一抗溶液,用 250–500 µL TBS-0.1% 吐温 20 洗涤切片 5 分钟。吸除洗涤液,重复洗涤两次。
- 吸除洗涤液,加入 100–200 µL 对应的荧光标记二抗溶液,在室温下孵育 60 分钟。
- 吸除二抗溶液,用 250–500 µL TBS-0.1% 吐温 20 洗涤切片 5 分钟。吸除洗涤液,重复洗涤两次。
- 针对后续目标蛋白,重复步骤 2.5–2.8,使用相应的抗体组合进行操作。
- 吸除洗涤液,加入 100–200 µL 含 1 mg/mL 4',6-二脒基-2-苯基吲哚(DAPI)的 TBS-0.1% 吐温 20 溶液,在室温下孵育 5 分钟以进行细胞核染色。
- 吸除 DAPI 溶液,使用水溶性、非荧光封片剂(参见材料表)和盖玻片对载玻片进行封片。每次处理一张载玻片。
注意:细胞核染色时间超过 5 分钟不会增强染色强度。也可将所有载玻片的 DAPI 溶液吸除后,将组织浸入 PBS 中,再逐个进行封片。 - 将载玻片平放于 4 °C 冰箱中至少 8 小时。随后进行荧光显微成像(参见图 1 和图 2)。
- 显微成像
- 使用配备多种激光器的共聚焦显微镜,激发不同波长的荧光染料,以观察荧光标记的二抗。
注意:为清晰观察导管和腺泡结构,建议使用数值孔径为 0.95 的 40X 物镜。图 1 提供了具体设置的示例。 - 逐个波长扫描图像,分别验证每种蛋白的定位情况。
注意:在此阶段,需仔细分析连接蛋白的定位。这些蛋白必须定位于细胞膜上,才能形成细胞连接复合体。 - 通过合并不同波长激光扫描获得的图像,确定蛋白的共定位情况。
注意:当两个或多个荧光染料在同一位置发射信号时,可通过颜色变化直观判断蛋白共定位,并可使用相应软件进行定量分析(图 1 和图 2;另见参考文献 9)。
- 使用配备多种激光器的共聚焦显微镜,激发不同波长的荧光染料,以观察荧光标记的二抗。
2. 研究蛋白质相互作用
注意:应使用腹部乳腺进行蛋白质相互作用(PPI)的研究,因为胸部乳腺与胸肌紧密相邻。切除乳腺组织(该操作的完整描述请参见 Plante et al.)14,并将其保存于 -80 °C,以备后续使用。
- 裂解液制备
- 将称量纸和2 mL 微离心管置于干冰上预冷,然后进行后续步骤。
- 从 -80 ℃ 取出乳腺组织 °C 并将其置于干冰上保存。
- 将组织置于预冷的称量纸上称重,然后转移至2 mL微量离心管中(在干冰上操作)。每份样品使用50至100 mg组织。在步骤2.1.5之前,始终保持组织处于干冰上。
- 制备所需量的含 NaF、NaVO₄ 和蛋白酶抑制剂的三重去垢剂裂解缓冲液3,以及蛋白酶/磷酸酶抑制剂,如文中所述 材料表,使用以下公式。小鼠:所需缓冲液(µL) = 小鼠组织重量(mg)× 3;大鼠:所需缓冲液(µL) = 大鼠组织重量(mg)× 5
- 向含有组织的2 mL离心管中加入所需体积的预冷裂解缓冲液(按步骤2.1.4计算)。
注意:在步骤 2.1.5–2.1.6 中,每次仅对一个试管进行操作。 - 使用组织研磨器以连续匀浆方式匀浆组织30-40秒;始终将离心管置于冰上。将组织匀浆器调至中等速度,并在管内轻轻上下移动研磨器。
- 用其余试管重复步骤 1.6 和 1.7。
- 将裂解液在冰上孵育10-30分钟。
- 在 4℃ 下以 170 × g 离心 10 分钟 °C.
- 同时,为每个样品准备6-10个微量离心管(0.6 mL),并置于冰上。
- 离心完成后,检查离心管,确保其中含有上层脂肪、澄清的黄色至粉红色裂解液(颜色取决于发育阶段)以及沉淀。
- 使用 200-µ使用L型移液器吸头吸取液相。更换吸头后收集裂解液,注意不要扰动沉淀或吸入脂质层。将裂解液分装至预先标记的预冷离心管中(步骤2.1.11),并置于-80℃保存。 °C.
- 使用等分试样,采用合适的市售试剂盒定量蛋白质浓度(参见 材料表).
- 间接免疫共沉淀
- 在冰上解冻两份先前制备的乳腺组织总裂解液。
注意:一个等分试样将用于目标蛋白的免疫沉淀,而另一个将作为阴性对照。 - 收集 500–1,000 µg 裂解液,并用 PBS 稀释至终体积为 200 µ每管1.5 mL。
注意:所用裂解液的量取决于目标蛋白的丰度以及抗体的效率(参见 图3 例如,以及 材料表)。为了针对每个靶标进行优化,需使用不同量的裂解液(即, 500、750 和 1,000 µg)和抗体(即, 5、10 和 20 µg)应使用。继续进行以下步骤(2.2.3-2.3.7.4)。 - 将针对目标抗原的抗体加入第一管裂解液中,并置于冰上。
注意:所需用量通常由各公司提供的说明书建议(参见 材料表). - 在第二个试管中,加入与步骤 2.2.3 中所用抗体相同浓度的同型 IgG 对照,以制备阴性对照。
- 在 4 ℃ 下将试管孵育过夜 °在低速管式滚轴混合器上旋转。
- 第二天,加入 50 µ将磁珠各取 L 加入新的 1.5 mL 离心管中,用于预洗涤。
- 根据抗体的相对亲和力选择 Protein A 或 Protein G 磁珠。
- 应避免使用发生聚集的磁珠;在将磁珠悬液加入离心管前,需轻轻混匀,直至均匀重悬。
- 将含有磁珠的离心管置于磁力架上,使磁珠移至磁极一侧。用200 μL移液器吸除磁珠中的保存缓冲液。 µL移液器
- 用500 μL洗涤珠子 µ加入1 L PBS-0.1% 吐温20,剧烈涡旋振荡管子10秒。
- 将试管重新放回磁力架上,使磁珠迁移至磁铁一侧。
- 用 200 微升移液器吸去多余的洗涤缓冲液 µL移液器
- 将步骤2.2.5中的反应复合物(裂解液-抗体)加入珠子中,在室温下于滚轴混合器上孵育90分钟。
- 将试管置于磁力架上,使磁珠移至磁铁一侧。使用 200 µ用L型移液器吸出并弃去裂解液,将离心管置于冰上。
- 用500 μL洗涤珠子 µL PBS,将试管置于磁力架上,用200 µL移液器。重复此洗涤步骤。洗涤过程中避免涡旋震荡,并将样品置于冰上。
- 用 PBS-0.1% 吐温 20 洗涤磁珠一次,避免涡旋振荡,使用 200 μL 移液器弃去最后一次洗涤缓冲液 µL型移液器吸头
- 洗脱时,加入 20 µ向各管中加入 0.2 M 甘氨酸酸性溶液(pH = 2.5)L,于滚轴混合器上振荡 7 分钟。
- 高速离心数秒(快速离心),收集上清液至预冷的新离心管中。
- 对每个离心管重复步骤 2.2.14 和 2.2.15。
注意:最终体积为 40 µL. - 加入10 µL 的 4x Laemmli 缓冲液加入到 40-µL 步骤 2.2.16 的洗脱样品
注意:由于酸性pH,颜色将变为黄色。 - 立即向步骤2.2.18中洗脱的样品逐滴加入1 M Tris(pH = 8),每滴加入后混匀,直至溶液颜色变为蓝色。随后对接下来的各管进行相同操作。
- 将2.2.18步骤中的样品在70-90℃煮沸 °C 下孵育 10 分钟。立即进行凝胶电泳。或者,将样品转移至 -80 °C直至上样。
- 在冰上解冻两份先前制备的乳腺组织总裂解液。
- 下游应用:凝胶电泳后行蛋白质印迹
- 按照标准操作程序制备分离胶和浓缩胶SDS-PAGE丙烯酰胺凝胶(1.5 mm厚度)15.
注意:凝胶的选择(8-15% 丙烯酰胺,梯度:见下文) 材料表应根据待沉淀蛋白及其潜在结合伴侣蛋白的分子大小来确定。这些蛋白必须能够彼此分离,以便进行准确的免疫检测。 - 将免疫沉淀(IP)洗脱样品(步骤 2.2.20)在冰上解冻。
- 从相同的样本(用于上述免疫沉淀实验的样本)中制备蛋白裂解液。使用 50 µ总裂解液中加入4X Laemmli上样缓冲液,70–90℃煮沸样品 °4℃离心5分钟,然后置于冰上直至上样。
注意:这些样品将与免疫沉淀洗脱样品并列上样,以证明总裂解液中存在被沉淀的蛋白质。 - 将步骤 2.3.3 制备的裂解液与步骤 2.2.20 沉淀的样品并排上样至丙烯酰胺凝胶中,使用电泳缓冲液(10× 电泳缓冲液:30.3 g Tris、144.1 g 甘氨酸和 10 g SDS 溶于 1 L 去离子水中)在 100 V 条件下电泳约 95 分钟,或直至迁移的蛋白质前沿到达凝胶底部。
- 将凝胶使用标准方案转移至硝酸纤维素膜或PVDF膜9,15.
- 在5%脱脂奶粉-TTBS(20 mM Tris,500 mM NaCl,0.05%吐温-20)中,于摇床上低速振荡孵育1小时以封闭膜。
- 确定沉淀是否成功。
- 使用针对沉淀蛋白的一抗,按制造商推荐的浓度,用5%脱脂奶粉-TTBS稀释,4 °C孵育过夜,对膜进行杂交检测 °在摇床上缓慢振荡。
注意:参见 材料表 如需建议。 - 次日,在摇床上用TTBS缓冲液洗涤膜3次,每次5分钟,保持高转速振荡。
- 将膜置于含辣根过氧化物酶(HRP)标记的适当二抗的TTBS溶液中,在室温下于摇床上缓慢振荡孵育1小时。
注意:如果具备检测信号的合适设备,也可使用与荧光染料偶联的二抗。 - 在摇床上以高振荡条件用 TTBS 洗涤 3 至 6 次,每次 5 分钟。通过将膜与市售的鲁米诺溶液孵育来检测二抗信号(参见 材料表)并按照制造商说明操作。使用化学发光成像系统检测信号(参见 材料表).
注:有关蛋白质印迹分析的详细方案,请参见参考文献16。
- 使用针对沉淀蛋白的一抗,按制造商推荐的浓度,用5%脱脂奶粉-TTBS稀释,4 °C孵育过夜,对膜进行杂交检测 °在摇床上缓慢振荡。
- 为鉴定相互作用的蛋白质,使用适当的抗体在同一印迹上进行步骤 2.3.7.1–2.3.7.4。
注意:如果蛋白质之间存在相互作用,则其结合伴侣将与目标蛋白共同免疫沉淀,并可通过蛋白质印迹法检测到。只要蛋白质的分子量差异足够大,能够在凝胶和膜上实现良好分离,步骤2.3.8可使用更多抗体重复进行,以确定其他蛋白质是否存在于同一蛋白质复合物中。 - 为确认所鉴定的结合蛋白并非人为假象,应进行反向免疫共沉淀实验。
注意:通过使用相同的裂解液重复步骤 2.2.1–2.2.20,但沉淀步骤 3.8 中鉴定出的一个结合伴侣,然后使用针对第一个目的蛋白的一抗重复步骤 3.1–3.8,来完成此操作。
- 按照标准操作程序制备分离胶和浓缩胶SDS-PAGE丙烯酰胺凝胶(1.5 mm厚度)15.
结果
为了确定缝隙连接(GJ)、黏附连接(AJ)和紧密连接(TJ)组分是否能够在乳腺中相互作用,首先进行了共免疫荧光(co-IF)检测。使用特异性抗体分别检测GJ蛋白Cx26和AJ蛋白β-Catenin,并用荧光素偶联的鼠抗647(绿色,伪彩色)和羊抗568(红色)抗体进行显色(图1B 和 C)。结果显示,在哺乳第7天(L7)的小鼠乳腺上皮细胞膜上,两者存在共定位现象,表现为黄色信号(图1D)。其次,使用特异性抗体分别检测TJ蛋白Claudin-7、AJ蛋白E-cadherin以及GJ蛋白Connexin26(Cx26),并分别用荧光素偶联的兔抗488(绿色)、鼠抗555(红色)和鼠抗647(珊瑚蓝,伪彩色)抗体进行显色(图2B-D)。在妊娠第18天(P18)的小鼠乳腺组织中,E-cadherin与Claudin-7的共定位呈现黄至浅橙色,而Cx26与E-cadherin及Claudin-7的共定位则表现为白色点状染色(图2E)。
为了确定哪些连接蛋白在细胞膜上混合并发生物理性连接,我们使用哺乳期小鼠(L14)的乳腺组织进行了共免疫沉淀实验。结果显示,间隙连接(GJ)组分Cx43与E-钙黏蛋白和Claudin-7相互作用,但不与Claudin-3相互作用(图3A和B)。该结果通过反向免疫沉淀得到验证:当免疫沉淀E-钙黏蛋白时,其与Cx43和Claudin-7存在相互作用(图3C)。
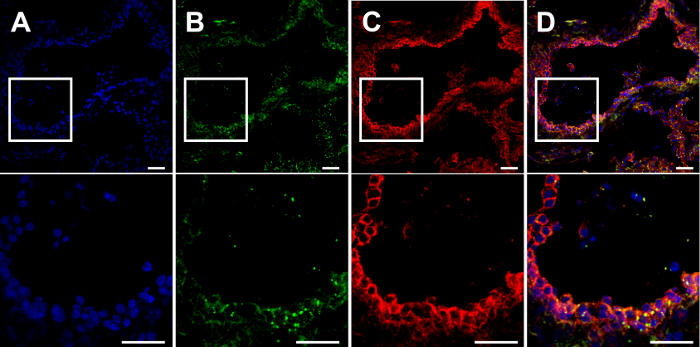
图 1: β-连环蛋白与 Cx26 在小鼠乳腺组织的细胞膜上共定位。 对乳汁分泌第7天(L7)小鼠乳腺组织的冷冻切片(7 µm)进行免疫荧光染色。(A) 细胞核用 DAPI 染色(蓝色)。(B) Cx26(绿色,伪彩色)和 (C) β-连环蛋白(红色)使用相应荧光标记的抗体进行染色显示。(D) 合并图像。图像使用配备光谱检测器的共聚焦显微镜获取。DAPI 的检测参数如下:发射波长 450.0 nm,激发波长 402.9 nm,激光功率 1.2,检测器增益 PMT HV 100,PMT 偏移 0。Cx26(647)的检测参数如下:发射波长 700.0 nm,激发波长 637.8 nm,激光功率 2.1,检测器增益 PMT HV 110,PMT 偏移 0。β-连环蛋白(568)的检测参数如下:发射波长 595.0 nm,激发波长 561.6 nm,激光功率 2.1,检测器增益 PMT HV 110,PMT 偏移 0。比例尺 = 50 µm。 请点击此处查看本图的放大版本。
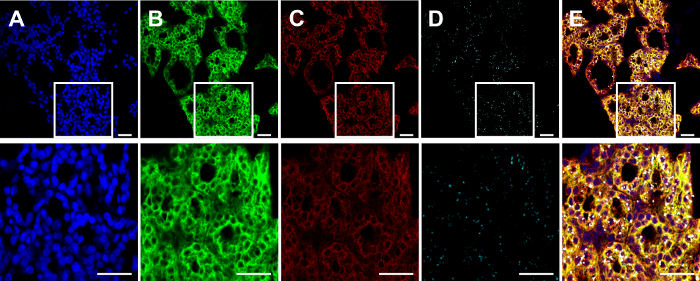
图 2:小鼠乳腺组织中连接蛋白26(Cx26)、E-钙黏蛋白和Claudin-7在细胞膜上共定位。 取妊娠第18天(P18)的小鼠乳腺组织冷冻切片(厚度7 µm),使用特异性荧光标记抗体进行免疫荧光染色,其中(B)为Claudin-7(绿色),(C)为E-钙黏蛋白(红色),(D)为Cx26(珊瑚蓝;伪彩色)。(A)细胞核使用DAPI染色(蓝色)。图像采用配备光谱检测器的共聚焦显微镜获取。DAPI的检测参数如下:发射波长450.0 nm,激发波长402.9 nm,激光功率5.4,检测器增益PMT HV 65,PMT偏移0。Claudin-7(488)的检测参数如下:发射波长525.0 nm,激发波长489.1 nm,激光功率5.0,检测器增益PMT HV 12,PMT偏移0。E-钙黏蛋白(568)的检测参数如下:发射波长595.0 nm,激发波长561.6 nm,激光功率13.5,检测器增益PMT HV 45,PMT偏移0。Cx26(647)的检测参数如下:发射波长700.0 nm,激发波长637.8 nm,激光功率5.0,检测器增益PMT HV 55,PMT偏移0。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
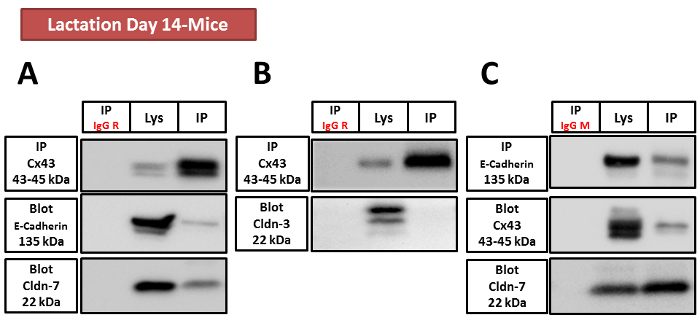
图3:Cx43、E-钙黏蛋白和Claudin-7参与形成蛋白复合物,而Claudin-3则不参与。 使用哺乳期小鼠乳腺组织的500 mg总裂解液对Cx43(A 和 B)和E-钙黏蛋白(C)进行免疫共沉淀。将免疫沉淀产物(IP)和裂解液上样至凝胶,随后转至PVDF膜。由于Claudin-7与Claudin-3分子量相同,无法在同一张膜上同时检测,因此使用相同裂解液平行进行两组Cx43的免疫共沉淀实验,并分别上样于两块凝胶后转膜(膜A和膜B)。膜A首先用Cx43抗体探针检测,以确认免疫共沉淀效率(上图),随后依次用E-钙黏蛋白和Claudin-7抗体探针检测。Western印迹分析显示,这两种蛋白均与Cx43存在相互作用。膜B同样先用Cx43抗体探针检测以确认免疫共沉淀效率(上图),然后用Claudin-3抗体探针检测。Western印迹结果显示Claudin-3未能与Cx43共沉淀,表明二者无相互作用。膜C首先用E-钙黏蛋白抗体探针检测以确认免疫共沉淀效率(上图),随后依次用Cx43和Claudin-7抗体探针检测。Western印迹分析进一步证实了这些蛋白之间的相互作用。请点击此处查看该图的放大版本。
讨论
通过连接结构实现的细胞间相互作用对于多种器官(如乳腺)的正常功能和发育至关重要。研究表明,连接蛋白可通过在细胞膜上相互锚定,调节彼此的功能与稳定性,并激活信号转导10。本论文所采用的实验方案已揭示了在正常小鼠乳腺发育过程中,连接蛋白在表达差异、定位及相互作用方面的若干重要发现9。鉴于连接蛋白的定位对其功能至关重要,且已知其可与支架蛋白及多种激酶发生相互作用3,共免疫荧光(co-IF)和共免疫沉淀(co-IP)已成为研究细胞间相互作用领域的有效技术。这些方法不仅对于阐明连接结构在乳腺发育中的必要性及其在乳腺癌中的异常调控具有重要意义,还可广泛应用于其他组织以及细胞系实验中。
乳腺由两个主要区室组成:间质和上皮4。成年上皮由两层细胞构成。在本方法中,使用共免疫荧光(co-IF)技术确定潜在结合伴侣之间的接近性,并通过共免疫共沉淀(co-IP)验证其物理相互作用。此前已有研究成功应用co-IF技术,证明蛋白质在同一组织、结构、细胞或细胞内区室中的共定位17,18。该技术的主要优势在于能够提供每种蛋白质在构成组织的不同细胞类型中的细胞或亚细胞定位的可视化信息。尽管该技术相对简单,但仍需遵循若干建议。例如,为避免组织损伤,始终使用200 µL移液器或转移移液器逐滴添加溶液,以确保组织表面充分浸润的同时不造成损伤。同样,在移除溶液时,应将巴斯德移液管置于组织旁,轻轻倾斜载玻片进行吸取。此外,对于保存液中含有甘油的抗体,需小心吸取洗涤缓冲液,以降低背景信号。另外,在哺乳期,乳汁蛋白(如酪蛋白)的存在可能通过捕获抗体而干扰检测,导致假阳性结果。因此,对所得图像进行严谨分析尤为关键,特别是在此阶段。
该共免疫荧光(co-IF)技术也存在一定的局限性或陷阱。首先,该技术需要特异性抗体。如前所述(步骤1.1),建议使用一个切片即, 右侧的切片)按照上述步骤进行染色,依次加入一抗和二抗。对于剩余的切片(即, 左侧的样本)采用相同步骤,但用含0.1%吐温20的TBS缓冲液替代一抗溶液。尽管也可通过肽段竞争实验来验证抗体结合的特异性,且该方法甚至更为理想,但用于制备商品化抗体的肽段并不总是可获得。因此,使用阳性对照和阴性对照验证抗体结合的特异性至关重要(即, 已知表达或不表达目标蛋白的组织或细胞)。此外,抗原的固定位点可能无法接近,尤其是福尔马林固定的组织,从而导致缺乏特异性信号。因此,某些组织可能需要进行抗原修复步骤。在抗原修复前,还可进行短暂的去垢剂孵育,以通透细胞膜。第二,对于多重检测,抗体必须来自不同种属的动物。例如,若在步骤1.2.6中使用了抗兔抗体,则在步骤1.2.10中可选用抗鼠抗体,而不能使用另一种兔源抗体。由于大多数商用抗体均为兔、鼠或山羊来源,因此有时可能难以甚至无法同时靶向两种蛋白,受限于合适抗体的缺乏。为克服这一限制,可选择购买 commercially available 的预标记抗体,或使用 commercially available 试剂盒将荧光染料标记至一抗上。第三,另一局限性与不同荧光染料的激发和发射特性有关。为避免两种不同抗体信号之间的重叠,每种荧光染料的激发-发射光谱必须相互分离。因此,可同时分析的目标分子数量将取决于所用显微镜的配置。最后,分析结果的质量高度依赖于所使用的显微镜类型。相较于落射荧光显微镜,共聚焦显微镜可获得更详细且精确的数据。而使用超分辨率显微镜则能进一步揭示蛋白共定位的精细结构。19.
尽管共免疫荧光(co-IF)可提供有关潜在结合伴侣之间空间邻近性的关键信息,但仍需结合其他方法以确认蛋白质之间的物理相互作用。在现有方法中,共免疫沉淀(co-IP)可能是最容易实施的方法之一,因其所需设备和材料易于获取。通过使用结合磁珠的特异性抗体,可分离出蛋白质复合物,并利用常规的Western印迹分析鉴定该复合物中的组分。与共免疫荧光类似,为获得最佳实验效果,应遵循一些操作建议。例如,建议在组织匀浆时尽量减少样品数量,以缩短步骤2.1.5与2.1.9之间的时间间隔。经验丰富的操作者可同时处理多达10个样品,而初学者每次处理不应超过4至6个样品。同样,初次进行免疫沉淀(IP)实验时,应限制使用试管的数量。建议仅设置阴性对照(即,IgG)和阳性对照(即,已知含有目标免疫沉淀蛋白的组织)。第二次实验应专注于条件优化(见步骤2.2.2)。当上述步骤获得满意结果后,方可开始处理待分析样品。请注意,实验过程中必须始终包含阴性对照。
该共免疫沉淀(co-IP)技术也存在潜在的局限性。第一,该方法要求在保持蛋白质间相互作用连接完整的条件下对组织进行匀浆处理。对于膜蛋白(如连接蛋白),使用既能维持蛋白间结合又可保证其溶解性的缓冲液尤为关键。第二,与共免疫荧光(co-IF)类似,该方法需要针对目标蛋白及其结合伴侣均具有高亲和力的抗体。此外,由于蛋白质保持其天然的三级结构,且蛋白复合物在匀浆过程中未被解离,若抗体所识别的表位靠近结合伴侣的结合域,或位于蛋白天然结构内部而被遮蔽,则可能影响免疫沉淀(IP)的效果。因此,在得出结合伴侣不存在的结论之前,必须始终通过Western blotting验证IP的效率。第三,共免疫沉淀可能产生假阳性结果,原因在于某些蛋白可能直接与磁珠结合,或在操作过程中非特异性沉淀,而非真正属于该蛋白复合物。为识别此类假象,需设置IgG对照以及进行反向免疫沉淀(reciprocal IP),如本方法所述。此外,可在步骤2.2.2与2.2.3之间增加“预清除”(pre-cleaning)步骤,以避免蛋白非特异性结合至磁珠。具体操作为:将裂解液与50 µg磁珠在4 °C下于滚混仪中孵育1小时,随后使用磁力架去除磁珠,再进入步骤2.2.3。第四,IgG的重链与轻链分子量可能与目标蛋白或其结合伴侣相近,从而掩盖目标信号。一种解决方案是如本文所述,使用甘氨酸解离IgG链。另一种方法是购买仅识别天然抗体的二抗,从而避免其与膜上变性后的轻链和重链结合(见材料表)。在某些情况下,上述两种方法可能需要联合使用。第五,共免疫沉淀仅能鉴定有限数量的结合伴侣,部分原因在于膜上可同时检测的抗体数量有限。此外,该方法要求预先通过共免疫荧光或文献调研确定潜在的结合伴侣。最后,共免疫沉淀可用于鉴定存在于同一复合物中的蛋白,但无法确认两个蛋白之间是否存在直接相互作用。
co-IP 的结果可以通过不同方式进行分析。可以仅通过使用针对不同蛋白的抗体对同一膜进行重复孵育来鉴定相互作用的蛋白伙伴,如本文所述。也可以对这种相互作用进行定量。为此,首先使用针对目标蛋白的抗体孵育膜,以确定被免疫沉淀蛋白的量,并如本文所述,利用成像软件分析信号强度。随后,用针对结合伙伴的抗体对膜进行再次孵育,并同样量化其信号强度。两个蛋白之间的相互作用可表示为结合伙伴蛋白量与被免疫沉淀蛋白量的比值。然而,为了便于比较,不同样品必须同时处理并加样于同一张膜上。生物学重复样品可采用相同方法进行处理和分析,并可进行统计学分析。
近年来,其他用于分析蛋白质相互作用(PPIs)的技术相继被开发出来。例如,荧光共振能量转移(FRET)技术可通过能量从一个标签向另一个标签转移来识别相互作用的蛋白质,但前提是这些蛋白质必须足够接近以发生相互作用。20然而,由于该技术需要对蛋白质进行标记,因此无法用于组织样本。类似地,也可利用与细菌生物素连接酶BirA融合的蛋白质来鉴定蛋白质相互作用21该连接酶会将生物素添加到邻近的蛋白质上(即, 与嵌合蛋白相互作用)。尽管该方法具有创新性和无偏倚性,但无法在组织中进行。相比之下,PLA 可用于组织样本。与共免疫荧光(co-IF)类似,该检测基于抗体亲和力。在此实验中,二抗标记有 DNA 序列,当这些序列彼此靠近时可发生相互作用(即, 在蛋白质相互作用(PPIs)发生后形成环状DNA分子22该环状DNA分子随后使用荧光标记的互补寡核苷酸进行扩增和检测。尽管该检测方法具有精巧性,但仍需要多个验证步骤,并且依赖于一抗的亲和力以及对潜在相互作用伙伴的一定了解。最后,还开发了一种无偏倚的替代传统免疫沉淀(IP)检测的方法用于鉴定蛋白质-蛋白质相互作用(PPIs)。在内源性蛋白质快速免疫沉淀-质谱分析(RIME)检测中,免疫沉淀样本通过质谱分析(IP/MS)进行检测。23 而非 Western 印迹分析。该高通量方法的主要优势在于,仅需少量材料即可获得关于所有内源性相互作用蛋白的大量信息。然而,该方法需要使用肽段测序仪器。23.
需要强调的是,经过多次初步测试,本方案的每个步骤均已针对乳腺组织进行了优化。然而,该方法在稍作修改后,也完全可以用于其他器官。对于共免疫荧光(co-IF),已测试了乳腺组织切片的最佳温度、合适的封闭与洗涤溶液以及适当的抗体浓度。对于共免疫沉淀(co-IP),也测试了多种裂解和洗脱缓冲液及提取方法,这些因素对免疫沉淀的成功具有重要影响。总之,本方案的每一步对于获得高质量、可重复的结果,同时实现尽可能低的背景信号和最高的特异性都至关重要。尽管存在其他方法,共免疫荧光结合共免疫沉淀仍是评估蛋白质-蛋白质相互作用(PPIs)的有效且简便的方法。这两种技术既可用于组织,也可用于细胞系,仅需少量验证步骤和对照。
致谢
I.P. 获得加拿大自然科学与工程研究理事会基金(NSERC #418233-2012)、魁北克卫生研究基金会(FRQS)、魁北克乳腺癌基金会职业奖以及加拿大创新基金会 Leader Founds 基金的资助。E.D. 获得了阿尔芒-弗拉皮耶大学基金会提供的奖学金。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 小鼠品系与发育阶段 | 加拿大魁北克省圣康斯坦 | C57BL/6 雌性小鼠;妊娠第18天(P18)和泌乳第14天(L14),Charles River Canada | |
| PBS 10x(储存液) | 1) 溶解 80 g NaCl(分子量:58.44)、2 g KCl(分子量:74.55)、26.8 g Na2HPO4·7H2O(F.W. 268.07)和2.4 g KH2PO4 (F.W.:136.09) 溶于 800 mL 蒸馏水中; 2) 将pH值调节至7.4; 3) 加水至终体积为 1 L。 | ||
| TBS 10倍(储存液) | 1) 将 60.5 g TRIS 和 87.6 g NaCl 溶解于 800 mL 蒸馏水中; 2)将 pH 值调节至 7.5; 3)加水至终体积 1 L。 | ||
| 第1部分:免疫荧光 | |||
| 冻存培养基 | VWR International,加拿大魁北克省蒙特皇家市 | 95067-840 | VMR冷冻切片复合物 |
| 切片机 | 加拿大安大略省密西沙加 | 956640 | Microm HM525,Thermo Fisher Scientific HM525 NX 冷冻切片机 115 V 60 Hz |
| 刀片 | C.L. Sturkey, Inc. 产品 科研人员 ESBE St-Laurent, QC, Canada | BLM1001C | 高精度镀金刀片 |
| Pap笔 | Cedarlane,Burlington,ON,加拿大 | 8899 | Super PAP笔,Thermo Fisher Scientific |
| 显微镜载玻片 | Fisher Scientific,Burlington,ON,加拿大 | 12-550-15 | Fisherbrand Superfrost Plus 显微镜载玻片 |
| 甲醛 | BioShop Canada Inc, Burlington, ON, Canada | FOR201.1 | 甲醛 |
| 牛血清白蛋白(BSA) | Santa Cruz Biotechnology, Inc, California, USA | ||
| 封闭液 | TBS 中含 3% BSA | ||
| 洗涤液 | TBS-Tween 20 0.1% | ||
| 聚山梨酯 20 | 加拿大安大略省奥克维尔 | P 9416 | Tween 20,Sigma-Aldrich |
| 封片剂 | Cedarlane,Burlington,ON | 17984-25(EM) | Fluoromount-G |
| 首先 &和二抗 | 细胞信号传导,美国马萨诸塞州贝弗利 | 请参见评论 | E-钙黏蛋白 (4A2) 小鼠单克隆抗体 (#14472s) 1/50 (Cell Signaling),使用 Cell Signaling 的抗小鼠 IgG Fab2 Alexa Fluor 555 (#4409s) |
| 首先 &和二抗 | Life technologies,美国马萨诸塞州沃尔瑟姆 && 细胞信号转导,美国马萨诸塞州贝弗利 | 参见评论 | Claudin-7 (#34-9100) 1/100 (Life Technologies),使用抗兔 IgG Fab2 Alexa Fluor 488 (#4412s) (Cell Signaling) |
| 首先 &和二抗 | 美国加利福尼亚州 Santa Cruz Biotechnology, Inc;加拿大安大略省伯灵顿 Fischer Scientific | 参见评论 | ββ-连环蛋白抗体(C-18):sc-1496(SANTA CRUZ),使用抗山羊IgG(H+L)Alexa Fluor 568(#A11057),Molecular Probes(Fisher Scientific) |
| 首先 &和二抗 | Life technologies,美国马萨诸塞州沃尔瑟姆 & Cell Signaling,美国马萨诸塞州贝弗利 | 参见评论 | 连接蛋白26 (#33-5800) 1/75(Life Technologies),使用抗小鼠IgG Fab2 Alexa Fluor 647(#4410s) |
| 细胞核染色 | Fisher Scientific,Burlington,ON,加拿大 | D1306 | DAPI(4',6-二脒基-2-苯基吲哚,盐酸盐)1/1,000 溶于 PBS |
| 荧光显微镜 | Nikon Canada,密西沙加,安大略省,加拿大 | 配备光谱检测器的尼康A1R+共聚焦激光显微镜 | |
| IF 图像分析软件 | Nikon Canada, Mississauga, On, Canada | NIS-elements 软件(版本 4) | |
| 第2部分:免疫沉淀 | |||
| 三重去垢剂裂解缓冲液(100 mL) pH=8.0 | 1) 混合50 mM TRIS(F.W.:121.14)、150 mM NaCl(分子量:58.44),0.02% 叠氮化钠,0.1% SDS,1% NONIdET P40,0.5% 脱氧胆酸钠溶于 80 mL 蒸馏 H2O. 2) 用6 M HCl将pH值调至8.0 N(约0.5 mL 3) 将体积调至 100 毫升。置于冰箱中保存。 在蛋白质提取当天,使用 1/100 的 NaVo3,按计算量加入1/100蛋白酶/磷酸酶抑制剂和1/25 NAF的Triple去垢剂裂解缓冲液: 氟化钠(储备液)溶液 1.25 M(F.W.:41.98),原钒酸钠(储存液)溶液1 M(F.W.:183.9) | ||
| 蛋白酶/磷酸酶抑制剂 | Fisher Scientific,Burlington,ON | 78441 | Halt 蛋白酶和磷酸酶抑制剂混合物,不含EDTA(100倍浓缩液) |
| 蛋白质剂量 | Thermo Scientific,美国伊利诺伊州罗克福德 | 23225 | Pierce BCA 蛋白检测试剂盒 |
| 组织研磨器 | Fisher Scientific,安大略省伯灵顿 | FTH-115 | Power 125,型号 FTH-115 |
| 磁珠与磁力架 | Millipore,加拿大安大略省密西沙加 | PureProteome Protein G 磁珠系统(LSKMAGG02) | |
| 免疫沉淀洗涤液 | PBS 或含 0.1% Tween20 的 PBS,根据步骤选择 | ||
| 用于免疫沉淀的一抗 | 细胞信号传导,美国马萨诸塞州贝弗利 | 请参见评论 | IgG 兔(兔 (DA1E) 单克隆抗体 IgG 同型对照 (#3900s) (Cell Signaling) 0.5 µL/200 µL |
| 用于免疫沉淀的一抗 | 细胞信号传导,美国马萨诸塞州贝弗利 | 参见评论 | 小鼠 IgG (G3A1) 单克隆抗体 IgG 同型对照 (#5415s) (Cell Signaling) 0.5 µL/200 µL |
| 用于免疫沉淀的一抗 | Sigma-Aldrich,加拿大安大略省奥克维尔 | 参见评论 | 连接蛋白43(#C6219)(Sigma-Aldrich)4 µL/200 µL |
| 用于免疫沉淀的一抗 | Cell Signaling,美国马萨诸塞州贝弗利 | 参见评论 | E-cadherin (4A2) 小鼠单克隆抗体 (#14472s) (Cell Signaling) 1 µL/200 µL |
| Laemmli缓冲液 | BIO-RAD,加拿大安大略省密西沙加 | 1610747 | 4x Laemmli 样品缓冲液(添加 β-巯基乙醇,按照制造商的说明) |
| 酸性甘氨酸 | Fisher Scientific,Burlington,ON | PB381-5 | 0.2 M 甘氨酸;用 HCl 调节 pH 至 2.5 |
| Tris | Fisher Scientific,Burlington,ON | BP152-1 | 1 M(pH=8) |
| SDS-PAGE 丙烯酰胺凝胶 | BIO-RAD,加拿大安大略省密西沙加 | 1610180 -5 | TGX Stain-Free FastCast 丙烯酰胺溶液(7.8%、10%、12%) |
| 运行缓冲液 10x | BIO-RAD,加拿大安大略省密西沙加 | 1704272 | Tris 30.3 g/甘氨酸 144.1 g/SDS 10 g 溶于 1 L 蒸馏水中 |
| 膜 | BIO-RAD,加拿大安大略省密西沙加 | 1704272 | PVDF膜,Trans-Blot Turbo RTA Mini PVDF 转膜试剂盒 |
| 转移方法 | BIO-RAD,加拿大安大略省密西沙加 | 1704155 | Trans-Blot Turbo 转膜系统 |
| 脱脂奶粉 | 加拿大安大略省万锦市,加拿大斯穆克食品公司 | 无脂速溶脱脂奶粉,Carnation | |
| 印迹实验用封闭液 | TBS-Tween 20 0.1% 中的 5% 脱脂奶粉 | ||
| 印迹洗涤液 | TBS-Tween 20 0.1% | ||
| 用于印迹的初级和次级抗体(10 mL | Sigma-Aldrich,安大略省奥克维尔 & Abcam,加拿大安大略省多伦多市 | 参见评论 | 连接蛋白43(#C6219,Sigma-Aldrich)1/2,500,与HRP偶联的Veriblot用于IP二抗(ab131366)1/5,000(Abcam,多伦多,ON,加拿大) |
| 用于印迹的初代和次代抗体(10 mL | 细胞信号传导,Beverly,MA,USA && Abcam,加拿大安大略省多伦多市 | 参见评论 | E-cadherin(24E10)兔单克隆抗体 1/1,000(#3195s,Cell Signaling),与HRP偶联的Veriblot for IP二抗(ab131366)1/5,000(Abcam,加拿大安大略省多伦多市) |
| 用于印迹的初级和次级抗体(10 mL | Life technologies,美国马萨诸塞州沃尔瑟姆 && Abcam,加拿大安大略省多伦多市 | 参见评论 | Claudin-7 (#34-9100) (Life technologies) 1/1,000,与 HRP 标记的 Veriblot for IP 二抗 (ab131366) 1/5,000 (Abcam, Toronto, ON, Canada) |
| 用于印迹的初级和次级抗体(10 mL | Life technologies,美国马萨诸塞州沃尔瑟姆 && Abcam,加拿大安大略省多伦多市 | 参见评论 | Claudin3(#34-1700)(Life technologies)1/1,000,与 HRP 偶联的 Veriblot for IP 二抗(ab131366)1/5,000(Abcam,多伦多,安大略省,加拿大) |
| 用于印迹信号检测的鲁米诺溶液 | BIO-RAD,加拿大安大略省密西沙加 | 1705061 | Clarity Western ECL 印迹底物 |
| 成像印迹 | BIO-RAD,加拿大安大略省密西沙加 | 1708280 | ChemiDoc MP 成像系统 |
| 分析印迹 | BIO-RAD,加拿大安大略省密西沙加 | ImageLab 5.2 软件 |
参考文献
- Sternlicht, M. D. Key stages in mammary gland development: the cues that regulate ductal branching morphogenesis. Breast Cancer Res. 8 (1), 201(2006).
- Oakes, S. R., Hilton, H. N., Ormandy, C. J. The alveolar switch: coordinating the proliferative cues and cell fate decisions that drive the formation of lobuloalveoli from ductal epithelium. Breast Cancer Res. 8 (2), 207(2006).
- Stein, T., Hilton, H. N., Ormandy, C. J. The alveolar switch: coordinating the proliferative cues and cell fate decisions that drive the formation of lobuloalveoli from ductal epithelium. Breast Cancer Res. 8 (2), 207(2006).
- El-Sabban, M. E., Abi-Mosleh, L. F., Talhouk, R. S. Developmental regulation of gap junctions and their role in mammary epithelial cell differentiation. J Mammary Gland Biol Neoplasia. 8 (4), 463-473 (2003).
- Hennighausen, L., Robinson, G. W. Information networks in the mammary gland. Nat Rev Mol Cell Biol. 6 (9), 715-725 (2005).
- Gudjonsson, T., Adriance, M. C., Sternlicht, M. D., Petersen, O. W., Bissell, M. J. Myoepithelial cells: their origin and function in breast morphogenesis and neoplasia. J Mammary Gland Biol Neoplasia. 10 (3), 261-272 (2005).
- Nguyen, D. A., Neville, M. C. Tight junction regulation in the mammary gland. J Mammary Gland Biol Neoplasia. 3 (3), 233-246 (1998).
- Stewart, M. K., Simek, J., Laird, D. W. Insights into the role of connexins in mammary gland morphogenesis and function. Reproduction. 149 (6), R279-R290 (2015).
- Dianati, E., Poiraud, J., Weber-Ouellette, A., Connexins Plante, I., E-cadherin, Claudin-7 and beta-catenin transiently form junctional nexuses during the post-natal mammary gland development. Dev Biol. 416 (1), 52-68 (2016).
- Derangeon, M., Spray, D. C., Bourmeyster, N., Sarrouilhe, D., Herve, J. C. Reciprocal influence of connexins and apical junction proteins on their expressions and functions. Biochim Biophys Acta. 1788 (4), 768-778 (2009).
- Hernandez-Blazquez, F. J., Joazeiro, P. P., Omori, Y., Yamasaki, H. Control of intracellular movement of connexins by E-cadherin in murine skin papilloma cells. Exp Cell Res. 270 (2), 235-247 (2001).
- Kiyokawa, E., Hara, S., Nakamura, T., Matsuda, M. Fluorescence (Forster) resonance energy transfer imaging of oncogene activity in living cells. Cancer Sci. 97 (1), 8-15 (2006).
- Gustafsdottir, S. M., et al. Proximity ligation assays for sensitive and specific protein analyses. Anal Biochem. 345 (1), 2-9 (2005).
- Plante, I., Stewart, M. K., Laird, D. W. Evaluation of mammary gland development and function in mouse models. J Vis Exp. (53), (2011).
- Green, M. R., Sambrook, J., Sambrook, J. Molecular cloning: a laboratory manual. , 4th ed, Cold Spring Harbor Laboratory Press. (2012).
- Taylor, S. C., Berkelman, T., Yadav, G., Hammond, M. A defined methodology for reliable quantification of Western blot data. Mol Biotechnol. 55 (3), 217-226 (2013).
- Oxford, E. M., et al. Molecular composition of the intercalated disc in a spontaneous canine animal model of arrhythmogenic right ventricular dysplasia/cardiomyopathy. Heart Rhythm. 4 (9), 1196-1205 (2007).
- Wang, X., Li, S. Protein mislocalization: mechanisms, functions and clinical applications in cancer. Biochim Biophys Acta. 1846 (1), 13-25 (2014).
- Bertocchi, C., et al. Nanoscale architecture of cadherin-based cell adhesions. Nat Cell Biol. 19 (1), 28-37 (2017).
- Bajar, B. T., Wang, E. S., Zhang, S., Lin, M. Z., Chu, J. A Guide to Fluorescent Protein FRET Pairs. Sensors (Basel). 16 (9), (2016).
- Fredriksson, K., et al. Proteomic analysis of proteins surrounding occludin and claudin-4 reveals their proximity to signaling and trafficking networks. PLoS One. 10 (3), e0117074(2015).
- Weibrecht, I., et al. Proximity ligation assays: a recent addition to the proteomics toolbox. Expert Rev Proteomics. 7 (3), 401-409 (2010).
- Malovannaya, A., et al. Streamlined analysis schema for high-throughput identification of endogenous protein complexes. Proc Natl Acad Sci U S A. 107 (6), 2431-2436 (2010).
重印与许可
