本方案描述了一种名为求偶条件化的行为学实验,用于研究黑腹果蝇(Drosophila)的学习与记忆能力。该经典实验基于雄性果蝇在被不接受交配的已交配雌蝇拒绝后,其求偶行为会减弱的自然现象。这种天然的行为可塑性可用于检测学习能力、短期记忆和长期记忆。
本文内容
摘要
摘要
在利用果蝇等模式生物进行的简单行为检测中,许多关于学习与记忆分子机制的研究已取得重要进展, 黑腹果蝇. 果蝇 有助于理解由与人类认知障碍(如智力障碍(ID)和自闭症)相关基因突变所导致的认知缺陷背后的神经生物学基础。本研究描述了一种利用经典范式检测学习与记忆的方法学 果蝇 称为求偶条件作用。雄性果蝇通过一系列易于识别的特定行为对雌性进行求偶。已交配过的雌性不再接受交配,会拒绝雄性的交配尝试。作为对这种拒绝的反应,雄性果蝇会减少其求偶行为。这种通过经验获得的求偶行为减少可通过时间进程进行测量,用以评估学习与记忆能力。该实验的基本数值输出为求偶指数(CI),定义为雄性在10分钟观察期内用于求偶行为的时间百分比。学习指数(LI)是指经已交配雌性暴露后的果蝇相较于无任何社交经历的 naïve 果蝇,其CI的相对下降程度。在对不同基因型之间的LI进行统计学比较时,采用基于自助抽样法的随机化检验。为说明该实验方法如何用于研究特定基因在学习与记忆中的作用,可进行全神经元中的基因敲低 二羟丙酮磷酸酰基转移酶 (Dhap-at)在此处进行了表征。该基因的人类同源物为 Dhap-at, 甘油磷酸O-酰基转移酶 (GNPT),与常染色体隐性遗传的点状软骨发育不良2型(rhizomelic chondrodysplasia punctata type 2)相关,该综合征以严重的智力障碍(ID)为特征。通过求偶条件化实验发现,Dhap-at 对长期记忆是必需的,但对短期记忆并非必需。该结果为进一步研究其潜在的分子机制奠定了基础。
引言
学习和记忆背后的分子机制在许多物种中是保守的。通过对黑腹果蝇(Drosophila melanogaster)突变品系进行嗅觉学习与记忆缺陷的开创性筛选,研究人员获得了关于学习和记忆过程的关键分子见解1。这些研究鉴定出最早一批参与学习和记忆的基因,例如 rutabaga2、amnesiac3 和 dunce4,揭示了环磷酸腺苷(cAMP)信号通路在其中的关键作用5。
早期针对记忆突变体的遗传筛选主要采用嗅觉条件化方法。然而,随着时间推移,多种用于检测其他类型学习与记忆能力的方法相继出现。其中应用最广泛的学习与记忆范式之一,也是本文所描述的检测方法,称为求偶条件化(courtship conditioning),该方法最早由 Siegel 和 Hall 报道。6 并随后由其他多个研究团队进一步完善7,8,9求偶条件作用依赖于一种特定信息素的存在, 顺式-乙酸反式-11-二十碳烯酯(cVA),该物质由雄性在交配过程中沉积于雌性腹部。雄性通过感知雌性腹部的cVA会自然减少求偶行为,而当雌性同时表现出拒绝行为时,cVA对抑制雄性求偶行为的作用显著增强。在此实验中,雄性果蝇的反应可通过观察其特有的求偶行为进行量化,这些行为包括朝向并追随雌性、用足轻拍、伸展并振动翅膀、舔舐以及尝试交配10 (图1A雄性果蝇学会区分可交配的处女雌蝇与不可交配的已交配雌蝇11,性拒绝后,它们对不接受交配的雌性果蝇的求偶行为会减少,持续长达9天8这种自然行为可用于阐明学习、短期记忆(STM)和长期记忆(LTM)的潜在机制8,9,12学习被定义为训练期间求偶行为的即时减少,通常称为即时回忆记忆,通过在接触交配过的雌性后0 - 30分钟内进行测量。6,8STM在训练后30分钟至1小时之间测定,而LTM通常在训练后24小时测定8 (图1B)。STM 可通过 1 小时的训练诱导产生,但仅持续 2–3 小时6,8在大多数学习范式中,长期记忆(LTM)只能通过间隔重复训练来诱导。Mcbride 等. (1999)8 结果显示,三次间隔的1小时训练即可诱导产生持续长达9天的求偶记忆,相比之下,单次1小时训练仅能诱导产生2至3小时的记忆。McBride 等.8 还表明,单次5小时的训练即可产生持续长达9天的类似长期记忆(LTM)反应。果蝇在此5小时期间并非持续不断地进行求偶行为,实际上形成了自身间隔式训练,从而在单次训练中诱导出长期记忆。这一点在实践上具有重要意义,极大提高了该检测方法用于研究长期记忆的便利性。目前的常规方案主要采用单次7小时训练来诱导长期记忆。11,12已有多个研究探讨了在求偶学习的不同方面存在特定缺陷的各种突变条件。例如,蘑菇体损毁会影响短期记忆和长期记忆,但不影响学习能力8. 该基因中的突变 失忆症 基因,最初通过嗅觉条件反射实验被确定为记忆的特异性调控因子3,影响短期记忆但不影响学习6. 翻译调控因子 orb2(oo18 RNA结合(orb)CPEB2亚家族)和蜕皮酮信号通路的破坏特异性影响长期记忆9,13因此,求偶条件化是解析学习与记忆不同阶段所依赖机制的有效范式。
本研究展示了一种优化的实验装置,可实现对求偶条件化进行相对高通量的检测。此外,本文描述了一种统计分析脚本,并讨论了该检测方法中的关键影响因素。结果表明 果蝇 基因 二羟丙酮磷酸酰基转移酶 (Dhap-at) 在神经元中对长时记忆(LTM)是必需的,但对短时记忆(STM)并非如此。该基因的人类同源基因为 甘油磷酸O-酰基转移酶 (GNPAT),在2型根形软骨发育不良性点状骨骺中发生突变14一种常染色体隐性遗传病,表现为重度智力障碍、癫痫发作及其他多种临床特征15在此背景下,求偶条件化可用于在学习和记忆中对人类疾病基因的功能作用进行验证,为机制研究提供基础。
方案
注意:以下方案描述了一次完整的收集、训练和测试的实验流程。为了检验结果的可重复性,应在不同日期平行重复进行这些步骤,并使用多组独立的果蝇(表1)。本方案基于果蝇从卵到成虫约10天的生活周期,该周期在恒定条件下(25 °C、70% 湿度、12小时光照/12小时黑暗循环)培养时属于正常情况。本方案的所有环节均假设在整个实验过程中环境条件保持恒定。时间以光照开启前(BLO)或光照开启后(ALO)的小时数表示,以便根据研究人员习惯的实验时间进行设定。仅在初次收集未经交配的雄性果蝇以及收集已交配雌蝇时使用CO2气体。本求偶条件化实验方案包含以下步骤:
- 建立已交配雌性果蝇收集培养体系
- 建立雄性实验个体收集培养体系
- 饲养模块的准备
- 建立交配小管以生产标准化的已交配雌性果蝇
- 雄性实验个体的收集
- 训练
- 测试
- 视频数据分析与统计
1. 建立已交配雌性个体采集培养体系
- 制备 powerfood16。将 0.8% (w/v) 琼脂、8% (w/v) 酵母、2% (w/v) 酵母提取物、2% (w/v) 蛋白胨、3% (w/v) 蔗糖、6% (w/v) 葡萄糖、0.05% (w/v) MgSO4 和 0.05% (w/v) CaCl2 溶于水中,煮沸 15 分钟。待溶液冷却至 70 °C 后,加入 0.05% (w/v) 对羟基苯甲酸甲酯(注意:有毒)和 0.5% (v/v) 丙酸(注意:有毒)。继续搅拌并进一步冷却至 50 °C,以获得均一溶液。
- 在培养基于室温凝固前,向每个 175 mL 塑料瓶中加入约 50 mL 的 powerfood。让培养基进一步冷却。用封口塞封闭瓶口。
注意:powerfood 是一种专门配制的饲料混合物,旨在大量繁殖果蝇,可能通过促进产卵实现。该饲料不用于培养将用于行为分析的雄性果蝇(步骤 2),因为非典型饮食和潜在的拥挤可能影响其发育。 - 在第 -11 天(表 1),在 powerfood 培养瓶中启动 5–20 个野生型果蝇群体,每瓶约 60–100 只果蝇(雌雄混合);这些果蝇将在步骤 4 中用于产生标准化的已交配雌蝇17。向每个培养瓶中添加一张滤纸,以增加幼虫化蛹的表面积;这将提高羽化果蝇的数量。
- 在整个实验过程中定期重复步骤 1.1–1.3,以获得足够数量的新羽化果蝇,作为“建立交配培养瓶以产生标准化的已交配雌蝇”""(步骤 4)的输入材料。
2. 建立用于收集雄性受试者的培养体系
- 按步骤 1.1 和 1.2 所述,制备正常食物16,其成分为 0.5% (w/v) 琼脂、2.75% (w/v) 酵母、5.2% (w/v) 玉米粉、11% (w/v) 蔗糖、0.05% (w/v) 对羟基苯甲酸甲酯和 0.5% (v/v) 丙酸,溶于水中。用果蝇管塞封闭 175 mL 塑料瓶。
- 在第 -10 天(表 1),将约 10–20 只雄蝇与约 30–75 只处女雌蝇(材料/设备表)放入每个装有正常食物的 175 mL 瓶中。加入一张滤纸以增加化蛹表面积,并提高繁殖效率。
- 每种基因型建立三至六个 175 mL 瓶,以获得所需数量的测试雄性个体。
注意:所需瓶数可能更多,具体取决于目标基因型的繁殖能力。
3. 饲养模块的制备(图2A)
- 在微波炉中融化每个饲养板约 50 mL 的 powerfood,或新鲜配制。
- 使用多通道移液器将 500 µL 的 powerfood 加入 96 孔平底板的每个孔中。
- 在室温下让食物凝固。
- 用 PCR 粘性封膜覆盖板子,并用针在每个孔上至少扎 4 个孔,以向果蝇提供新鲜空气。
- 为便于打开每个孔,使用剃刀刀片沿每行之间纵向切割粘性封膜,但保留板子一端的封膜完整。
- 板子可在 4 °C 下保存最多 2 天。
注意:使用前需将板子恢复至室温。
4. 建立交配管以生产标准化的已交配雌性果蝇
- 在第 -1 天,在成虫羽化后 2-5 小时(BLO)时,移除并丢弃预先交配的雌性收集培养管中的所有成年野生型果蝇。
- 使用移液器(图 2B)从这些试管中以 2 至 3 小时为间隔(例如,在羽化后 30 分钟、2.5 小时和 5 小时时)收集果蝇,并将其转移至新的含少量酵母糊和滤纸的 powerfood 试管中。
- 为避免过度拥挤并营造最佳交配环境,每个新试管转移的果蝇数量不应超过 150-200 只。为确保所有雌性均能交配,需提供至少 25% 的雄性。同时确保交配试管中有足够数量的雌性,以满足实验规模的需求。
注意:由于这是本实验方案中的关键步骤,务必确保仅将新羽化的果蝇转移至新的交配试管,不得混入老果蝇、幼虫或蛹。 - 将这些"交配试管"培养四天,以确保所有雌性均有足够时间完成交配。
5. 雄性受试者的采集
- 第1天(表1) 在接种后2-3小时,使用CO2 去除雄性收集管中的所有成虫(步骤2), 但在接下来的几个小时内会有更多果蝇羽化。
- 在接下来的5-6小时内,每隔20-30分钟使用CO₂麻醉收集新羽化的果蝇2 并将每只雄性个体使用移液器放入饲养板(步骤3)的单独孔中(图2B).
- 用粘性PCR封膜重新密封孔板。
注意:此步骤是实验方案中的关键环节。应频繁收集雄性果蝇。收集到的雄性果蝇应在羽化前后及时隔离于饲养区,此时它们表现为体色较浅,且在半透明的腹部可见粪便残留物。
注意:使用移液器应轻柔操作,以转移果蝇;然而,操作不当会对果蝇造成应激,从而导致实验结果出现变异(见讨论部分)。 - 每种基因型收集最多48只雄性个体。此数量略高于分析未经训练和已训练条件所需雄性个体的最大数量,以补偿后续转移步骤中可能的损耗。
6. 培训
- 使用 CO2 将果蝇从交配小瓶(步骤 4.2)中移出,并将已交配雌蝇与雄蝇分开。
- 使用吸虫器,将一只麻醉后的已交配雌蝇加入新饲养板中某一行的每个孔内。
- 使用吸虫器,在不麻醉的情况下,将步骤 5.2 中准备的饲养板内的单只未经交配的雄蝇转移至含有已交配雌蝇的孔中。雄蝇放入孔内后,立即用粘性封膜重新密封,防止雄蝇逃逸。
注意:利用雄蝇自然的"负向趋地性"行为,通过吸虫器将其转移至饲养板中(见讨论部分)。 - 重复步骤 6.2–6.3,直至建立足够数量的雌雄配对。理想情况下,每种基因型建立 24 对,即一个饲养板的两整行。将剩余的未经交配雄蝇保留在步骤 5.2 中设置的原始饲养板中。
- 在训练期间内保持雌雄配对不受干扰(表 2,图 1B)。
注意:在此期间,雄蝇会向已交配雌蝇求偶并被拒绝。对于学习和短期记忆(STM),训练时间为 1 小时;对于长期记忆(LTM),训练时间为 7–9 小时。 - 训练结束时(表 2,图 1B),使用吸虫器轻轻将雄蝇与已交配雌蝇分离,不得使用麻醉。将分离后的雄蝇放入新的饲养板中。
- 使用吸虫器,将步骤 5.2 中设置的饲养板内的所有未经交配雄蝇轻轻且不麻醉地转移至新的饲养板中。
注意:此步骤对于短期记忆和学习测试是可选的,但对于长期记忆测试非常重要,因为果蝇需要额外饲养约 24 小时以检测长期记忆。 - 对于短期记忆和长期记忆测试,分别让雄蝇休息 1 小时和约 24 小时(表 2,图 1B),然后进行测试(步骤 7)。
- 对于学习能力测试,应立即对训练过的雄蝇和未经训练的雄蝇进行测试(步骤 7)。
7. 测试
- 从交配小瓶(步骤 4.2)中收集果蝇,使用 CO₂2 将已交配的雌性与雄性分开。
- 让雌性果蝇在含有正常食物的小瓶中恢复麻醉状态至少1小时。
- 提前安装好录像设备(图2C),以便在测试开始前准备好所有设备。
- 根据学习、短期记忆(STM)和长期记忆(LTM)的不同时间线开始测试(表2, 图1B立即在训练后测试学习效果,训练后1 h测试短期记忆(STM),训练后24 h测试长期记忆(LTM)。
- 使用移液器,将一只雄性果蝇从静息饲养区或训练饲养区(若测试学习能力,参见步骤6.7为已训练组,步骤6.8为未训练组)轻柔转移至交配行为观测装置的一侧,此时隔板应处于关闭状态(图 2D;建筑平面图见文件S1。
注意:天然产物的使用 "负向重力性" 行为应足以将雄性果蝇从吸虫器转移到求偶实验区(讨论)。 - 迅速但轻柔地将入口移至下一个区域,重复步骤7.5,直到所有18个区域各包含一只雄性个体。
- 使用移液器且不使用 CO2将一只已交配的雌性个体(在步骤7.2中采集)加入其余9个实验区域的每一半中。
- 将交配行为观察室小心地放置于摄像头下方,确保孔洞开口朝下(图2C).
- 移除竞技场中的隔板,使雄性与已交配的雌性能够直接接触。
- 立即开始记录行为,至少持续10分钟。
注意:使用双相机装置时,可对两个求偶实验板进行时间重叠的平行记录,以最大化实验效率。 - 使用手持式真空吸尘器清空求偶实验区域,并在重新使用前让求偶室通风。
- 重复步骤 7.4–7.11,直至完成所有基因型和条件的检测(即, 幼稚型和训练型)已完成。
8. 视频数据分析与统计
- 计算求偶指数(CI),即在测试期的前10分钟内,每只雄性果蝇进行求偶行为所占的时间百分比。
注意:这可以通过观察典型的求偶行为手动完成(图1A或使用计算机软件对求偶行为进行自动化定量分析(讨论部分)。
注意:建议在三天内分析每组40-60只雄性个体,以获得足够的统计效力,并评估CI数据的一致性。 - 计算学习指数(LI),定义为训练雄性个体的平均CI相较于未训练雄性个体的百分比下降值(LI = (CI幼稚的 – CI经过训练的) / CI幼稚的). 评估每次测试日的刺激指数(LI),并将其与所有测试日合并计算的累积刺激指数(LI)进行比较。
- 创建一个独立的两列制表符分隔数据文件 "基因型" 和 "CI" 作为标题。
注意:这些标题区分大小写。每个条件化抑制(CI)的基因型名称必须由基因型描述后跟一个下划线及训练条件组成例如, 基因型_N 和基因型_LTM 等,其中 N 代表未受训练(naïve),LTM 代表长期记忆(long term memory);示例见补充文件 S2)。该注释至关重要,因为 analearn 函数将根据第一个下划线后出现的字符来识别已训练和未受训练的果蝇。 "基因型" 柱 - 使用 analearn R 脚本(补充文件 S3)对不同基因型的 LI 值差异进行随机化检验,以判断其统计学显著性。
- 将脚本(补充文件 S3)载入 R18,该函数定义为 "analearn"
注意:函数定义为:analearn <- 函数(nboot = 10,000, naivelevel = 'N', refmutation = NA, datname = NA, header = TRUE, seed = NA, writeoutput = TRUE) - 通过输入启动该函数 "analearn()" 在R命令行中,通过弹出窗口选择要分析的数据文件(在步骤8.3中生成)。
- 通过输入相应的编号并按回车键,选择作为对照基因型的参考突变。
注意:选择参考基因型后,脚本需要数秒时间执行 10,000 次自助重复分析。 - 观察输出表格(表3),其中包含基因型、学习条件(即, 学习、短期记忆(STM)或长期记忆(LTM)、对照组平均CI、训练组平均CI、学习指数(LI)、对照组与实验组LI的差异(LI dif)、LI dif的95%置信区间下限(LL)和上限(UL),以及 p表示无显著差异的概率的值。
注意:analearn 将在数据文件所在的目录中存储一个输出文本文件。然而,输出表格也会显示在 R-Studio 控制台中。默认文件名将根据所提供的数据文件名称自动生成。 - analearn 函数中有多个参数可用于更改函数的默认设置,以调整自举法的参数。
注意: "nboot" 定义了自举重复次数,默认值为 10,000。该值可更改为任意大于零的整数。表 5 列出了可用于修改函数默认设置的若干参数。然而,不建议使用自举重复次数较少时生成的数据。
- 将脚本(补充文件 S3)载入 R18,该函数定义为 "analearn"
结果
求偶条件化实验可用于测量学习与记忆能力 果蝇为了证明这一点,本文展示的结果分析了对照组果蝇与神经元特异性敲低 Dhap-at 的果蝇在短期记忆(STM)和长期记忆(LTM)方面的差异。对照组雄性果蝇表达一种靶向 秀丽隐杆线虫特定基因,推测的锌指蛋白 C02F5.1219。该对照菌株确保在相同遗传背景下,基因敲低组与对照组之间具有相等数量的上游激活序列(UAS)元件,且对照用的RNAi发夹结构可排除RNAi系统可能产生的非特异性效应。对照组雄性(基因型: UAS-dcr2/+;P{KK108109}VIE-260B/+;elav-Gal4/+)显示,在短期记忆(STM)方面,训练组相较于未训练组的CI显著降低图3A, p = 1.2 × 10⁻⁴,Mann-Whitney U检验)和LTM(图3B, p = 1.2 × 10⁻⁴,Mann-Whitney U检验)。该结果反映了这些果蝇正常的学习和记忆能力。 Dhap-at 基因敲低果蝇(基因型: UAS-dcr2/+;P{KK101437}VIE-260B/+;elav-Gal4/+) 在STM方面也显示出训练过的果蝇相较于幼稚果蝇的CI显著降低图3A, p = 1.2 × 10⁻⁴,Mann-Whitney U检验)。然而,他们在长期记忆训练后并未表现出CI的显著降低(图3B, p = 0.33,Mann-Whitney U 检验)。由于某些条件下 CI 数据呈非参数分布,因此采用 Mann-Whitney U 检验比较 naïve 果蝇与训练果蝇的平均 CI。图3A 和 3B)。通过CI分析观察到的差异体现在每种基因型的LI上,LI用于衡量未经训练的果蝇与经过训练的果蝇之间CI的百分比下降程度(图3C)。对于短期记忆(STM),对照组与Dhap-at基因敲低果蝇之间的学习指数(LI)无显著差异。p = 0.115,10,000 次自助法重复 图3C, 表3),而LTM的LI显著较低 Dhap-at 基因敲低果蝇(p = 0.0034,10,000 次自助法重复 图3C, 表3)。为了比较不同基因型之间的LI,采用随机化检验20 改编自 Kamyshev 首次推荐的方法 等7 被使用。由于LI是从群体数据中得出的单一数值(即, 平均CI-naïve和平均CI-trained)时,依赖实验数据分布的传统统计方法不再适用。随机化检验是一种无需分布假设的检验方法,采用重采样(bootstrap)技术即, 有放回随机抽样)以生成基于实际数据的假设数据集。analearn脚本(文件S3)为每种基因型生成一组假设的LI值,并计算对照组与待测基因型之间的差异(LIdiff)。此过程重复10,000次,所得结果用于确定LIdiff的95%置信区间(表3)。该数据用于生成一个 p-值表示两种基因型的LTM指数存在差异的概率。此处结果表明,Dhap-at 在神经元中对长时程记忆(LTM)是必需的,但对短时程记忆(STM)并非必需。
为了控制日常变异,对重复实验日之间的竞争指数(CI)和负荷指数(LI)进行了比较(表4)。尽管LI在不同天之间存在一定的波动,但总体结果具有可重复性。需要注意的是,CI数据可能因所使用的对照菌株及测试环境条件的不同而产生显著差异。此处展示的CI数据对于该对照基因型具有代表性,但其他基因型可能会表现出更高或更低的平均CI值及分布特征。
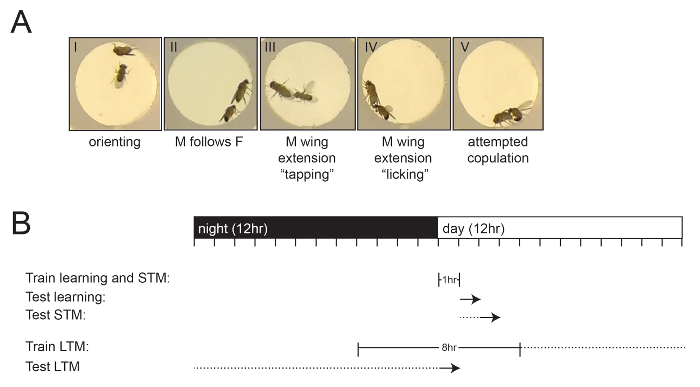
图 1:求偶指数的测定及实验概览。(A)图像显示雄性果蝇对雌性果蝇的典型求偶行为。求偶行为的不同阶段如下所示:定向(I)、跟随(II)、振翅(伸展)与拍打(III)、舔舐(IV)以及尝试交配(V)。(B)训练和测试时间相对于培养箱光周期的示意图,以小时为单位标记。训练时间用实心条表示,STM 和 LTM 的休息期用虚线表示,测试起始点用箭头表示。请注意,LTM 的测试时间在训练后的第二天。请点击此处查看该图的放大版本。
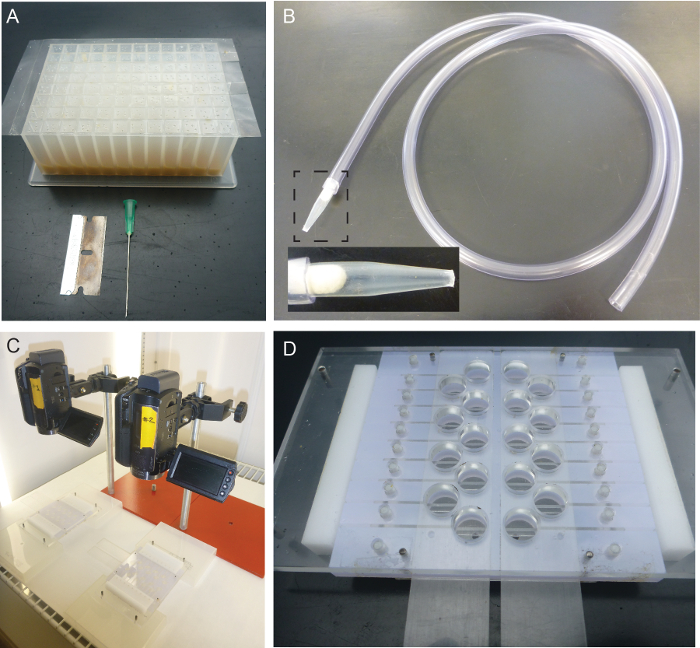
图2:Drosophila 求偶条件化实验所用设备。(A)饲养模块是一个扁平的底部模块,每孔含有500 µL的powerfood。使用qPCR粘性封膜密封,每孔至少打4个孔,孔由直径0.8 mm的注射器针头制成。使用剃刀刀片沿长度方向将各个行切割成条状,以便打开和关闭。(B)移液器用于在不使用麻醉剂的情况下轻柔转移雄性和雌性果蝇。插图显示移液器的尖端,用一小团棉花封闭,以防止果蝇逸出。(C)双摄像头系统的设置,用于同时记录两个求偶室。(D)包含18个区域的求偶室。通过滑动式进样孔将果蝇放入各个区域。白色分隔板可同时打开,以启动雄性和雌性之间的互动。请点击此处查看该图的放大版本。
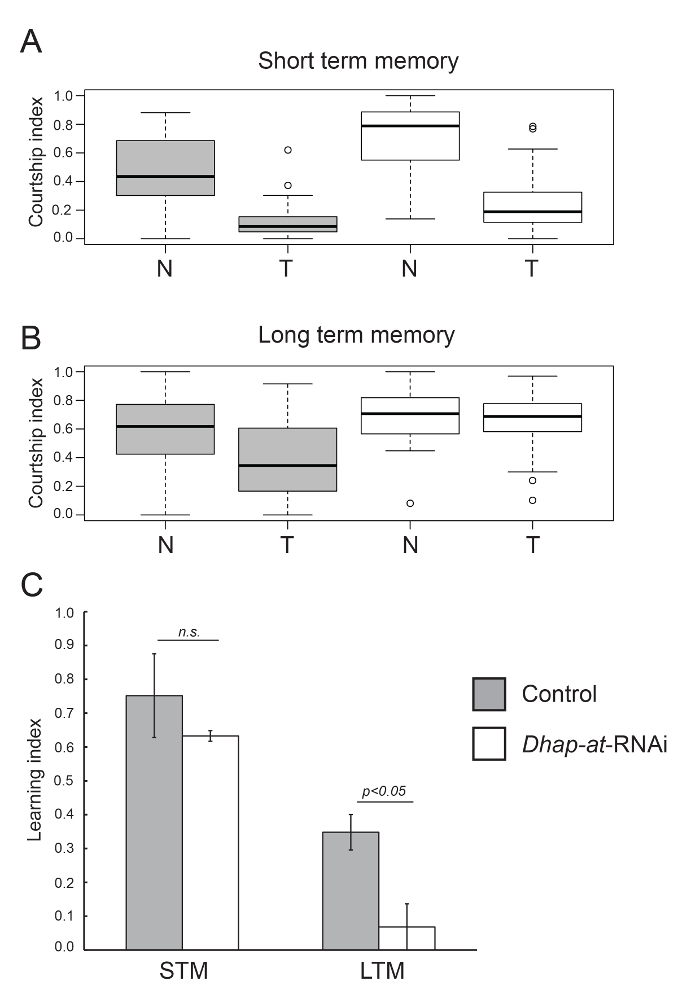
图3:对照组与Dhap-at基因敲低果蝇中短期记忆与长期记忆的分析 (A-B) 箱线图显示对照组(灰色)和实验组果蝇的 naive(N)与 trained(T)状态下 CI 值的分布情况 Dhap-at 敲低(white)基因型在短期记忆(A)和长期记忆(B)中的检测结果。C对照组和实验组的相应LI值 Dhap-at 用于测试短期记忆(STM)和长期记忆(LTM)的基因敲低果蝇。对照组与基因敲低基因型之间的学习指数(LI)差异通过随机化检验进行比较(10,000次自助重复)。误差线表示基于不同测试日计算出的LI值所得的平均值标准误。基因型如下: w+, UAS-dcr2/+; P{KK108109}VIE-260B/+;以及 elav-Gal4/+ (对照) 和 w+, UAS-dcr2/+;P{KK101437}VIE-260B/+;以及 elav-Gal4/+ (Dhap-at-RNAi 请点击此处以查看此图的放大版本。
| 常规 | 收集 | 训练 | 测试 | |
| 第 -11 天 | 开始未交配雌性收集培养(步骤 1.3) | |||
| 第 -10 天 | 开始用于收集雄性测试对象的培养(步骤 2.2) | |||
| 第 1 天 | 重复 1 | |||
| 第 2 天 | 重复 2 | |||
| 第 3 天 | 重复 3 | |||
| 第 4 天 | 重复 4 | 重复 1 | ||
| 第 5 天 | 重复 2 | 重复 1 | ||
| 第 6 天 | 重复 3 | 重复 2 | ||
| 第 7 天 | 重复 4 | 重复 3 | ||
| 第 8 天 | 重复 4 | |||
| 第 9 天 | 视频数据分析与统计(步骤 8) | |||
| rep = 重复 | ||||
表1:在三个独立日期上对长期记忆进行测试的示例时间线。
| 学习 | STM | LTM | |
| 训练时间 | 1 h. | 1 h. | 8 h. |
| 休息时间 | 0 h. | 1 h. | ~ 24 h. |
| 开始训练 | 0 h. ALO | 0 h. ALO | 4 h. BLO |
| 结束训练 | 1 h. ALO | 1 h. ALO | 4 h. ALO |
| 开始测试 | 1 h. ALO | 2 h. ALO | 0 h. ALO (次日) |
| ALO = 开灯后,BLO = 开灯前,STM = 短期记忆,LTM = 长期记忆 | |||
表2:学习、短期记忆和长期记忆的训练时长、训练次数及测试时间。
| 基因型 | 学习 条件 | CI 未训练 | CI 训练后 | LI | LI 差异 | 下限 (95% 置信区间) | 上限 (95% 置信区间) | p 值 |
| 对照组 | 短期记忆(STM) | 0.467 | 0.116 | 0.752 | NA | NA | NA | NA |
| Dhap-at-RNAi | 短期记忆(STM) | 0.699 | 0.257 | 0.633 | 0.119 | -0.030 | 0.265 | 0.116 |
| 对照组 | 长期记忆(LTM) | 0.590 | 0.384 | 0.348 | NA | NA | NA | NA |
| Dhap-at-RNAi | 长期记忆(LTM) | 0.697 | 0.650 | 0.068 | 0.280 | 0.103 | 0.446 | 0.003 |
表3:由Analearn脚本生成的统计数据。
由analearn脚本生成的统计学数据。包含基因型、学习条件的自举法R脚本输出文件即, 学习、短期记忆(STM)或长期记忆(LTM)、对照组平均置信区间(CI naïve)、训练组平均置信区间(CI trained)、学习指数(LI)、对照组与实验组学习指数的差异(LI dif)、LI dif 的95%置信区间的下限(LL)和上限(UL),以及 p表示无显著性差异的概率的值。
| 对照组 | Dhap-at-RNAi组 | ||||||
| 平均CI(未训练) | 平均CI(训练后) | LI | 平均CI(未训练) | 平均CI(训练后) | LI | ||
| 短期记忆(STM) | 第1天 | 0.300 | 0.125 | 0.584 | 0.679 | 0.239 | 0.648 |
| 第2天 | 0.634 | 0.107 | 0.831 | 0.720 | 0.276 | 0.617 | |
| 所有天数 | 0.467 | 0.116 | 0.752 | 0.699 | 0.257 | 0.633 | |
| 长期记忆(LTM) | 第1天 | 0.590 | 0.441 | 0.252 | 0.630 | 0.646 | -0.027 |
| 第2天 | 0.640 | 0.363 | 0.432 | 0.709 | 0.710 | -0.002 | |
| 第3天 | 0.547 | 0.349 | 0.363 | 0.738 | 0.598 | 0.190 | |
| 所有天数 | 0.590 | 0.384 | 0.348 | 0.697 | 0.650 | 0.068 |
表4:在不同测试日获得的CI和LI值。
| “naivelevel” 用于确定每种基因型的 naïve 值所对应的文本标识。默认值为“N”,但可更改为任意其他字母数字文本。 |
| “refmutation” 默认设置为“NA”(不适用),但可更改为对照组或某一基因型的名称,以进行统计学比较。 此设置将使脚本自动选择对照基因型。 |
| “datname” 指数据文件的名称,可通过此参数指定,而不使用默认的文件选择方式。 |
| “header” 可用于指示数据文件是否包含列标题。 默认值为“TRUE”,但当此参数更改为“FALSE”时,也可使用无标题的文件。 |
| “seed” 用于初始化随机数生成器。默认设置为“NA”,以确保每次运行脚本时生成不同的随机数。 根据设计,即使使用相同的数据文件,每次运行自举分析(bootstrap analysis)也会产生略微不同的结果。 当指定任意大于零的整数作为种子时,将获得相同的随机自举样本集。 |
| “writeoutput” 可设置为“TRUE”或“FALSE”,以决定是否生成输出文件。默认值为“TRUE”。 |
表5:在Analearn函数中用于更改函数默认设置以调整自举法参数的参数
补充文件 S1:求偶室的构建方案。该文件可使用任何支持 .stp 扩展名(CAD 文件)的应用程序打开。请点击此处下载该文件。
补充文件 S2:Analearn 脚本输入文件示例。 请点击此处下载该文件。
补充文件 S3:Analearn.R 脚本。该文件可用 R-studio18 打开。请点击此处下载该文件。
讨论
求偶条件化实验是分析黑腹果蝇(Drosophila)学习与记忆的经典范式。本文所述方案遵循先前已描述的通用方法6,7,8,9,但包含了若干独特要素,例如实用操作指南、专用设备以及用于随机化检验的数据分析脚本9,12。利用本方案,可使用96孔平底板(图2A)并行收集和训练大量雄蝇。这些孔板用PCR粘性封膜密封,可在需要时方便地接触果蝇。此外,本文所述独特的求偶室可在接近二维的空间内同时容纳18对雌雄果蝇配对,该设计非常适合视频分析。这种定制求偶室操作简便,并提供制作图纸(文件S1,图2D)。从建立用于获取测试个体的果蝇培养,到完成视频数据采集,整个流程约需20天(表1)。视频数据分析还需额外时间。根据我们的经验,短期记忆(STM)实验结果极为稳定可靠;长期记忆(LTM)实验同样具有较高可重复性,但对环境干扰因素更为敏感,因此掌握难度相对更高。
动物行为可能具有较大的变异性。因此,必须谨慎执行方案中的关键步骤,以减少这种变异。首先,应轻柔使用移液器(图2B),以避免因操作粗暴或吹气过猛而给动物带来应激。建议采用负向趋地性方法将单个果蝇从移液器中转移出来:由于果蝇倾向于向上爬行,可将移液器尖端朝上,当果蝇接近尖端时,轻轻吹气即可使其离开。此外,在将雄蝇放入求偶实验装置进行测试前,通常无需吹气即可使其进入。
另一个重要步骤是雄性实验对象的收集与准备。所有雄性个体必须在其非常年幼且无社会经验时进行收集。这可以通过在羽化高峰期频繁收集来实现(步骤5.2)。如果未能在这一严格的时间窗口内完成收集,雄性个体可能会发生早期社会互动,从而导致学习能力较差或条件化指数(CI)的变异性增高。另一个需要评估的雄性实验对象因素是遗传背景。不同的遗传背景会表现出不同程度的初始求偶行为,也可能在总体活动水平或运动能力上存在差异。在比较多种基因型时,应注意遗传背景的一致性,以避免这些可能影响学习指数(LI)评分的混杂因素。此外,应仔细评估CI数据的分布情况。CI数据可能是参数性或非参数性的,具体取决于基因型或其他环境因素。在某些情况下,如果CI分布明显偏离正态分布,则使用中位数CI而非平均值CI来计算LI可能更为合适。然而,根据我们的经验,使用中位数或平均值CI在数据的统计学解释上并无显著差异,而使用平均值CI是文献中的常规做法。
在求偶条件化实验中,训练期间已交配雌蝇对雄蝇求偶行为的有效拒绝至关重要。确保本实验所用的已交配雌蝇已完成有效交配且不再允许再次交配,这一点非常重要。这种预先交配的过程是在步骤4中准备的交配小瓶内完成的,即将雄蝇和雌蝇共同饲养4天(表1)。随后,可通过定期检查测试视频以及在训练过程中观察雌雄配对行为来监测是否发生交配。如果确实发生了交配,可在制备已交配雌蝇的过程中采取若干措施加以改进。首先,应将已交配雌蝇饲养在最佳繁殖条件下。可在小瓶中添加酵母糊和折叠的滤纸,以增加潜在的交配表面积。按照本文所述条件培养果蝇以往均能获得稳定的已交配雌蝇,但在不同实验室或使用不同遗传品系时,结果可能有所差异。因此,可能需要通过调整培养时间和培养条件来优化已交配雌蝇的制备。
求偶行为的量化是本方案中的另一个关键步骤。该步骤可通过人工方式或使用专用软件程序自动完成9。自动量化速度快,原则上无偏倚。已有多个程序被发表21,22,23;然而,这些程序使用起来并不简便,通常需要特定的视频格式和高级计算技能。人工量化操作简单且准确,但劳动强度高,并易受个体差异和主观偏倚的影响。需要强调的是,本方案未涉及自动量化交配指数(CIs)时可能所需的视频格式要求。对于人工量化,可使用任何能够生成足够质量视频的简单录像设备,以便准确观察求偶行为。对于自动量化,不同软件可能有不同的要求,若计划采用自动量化方式,用户应对此进行充分调研。
结合可用于果蝇遗传操作的丰富工具,求偶条件化实验提供了一种可靠的检测手段,可用于解析学习与记忆过程中涉及的分子机制和神经网络。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢维也纳果蝇资源中心提供 果蝇 菌株。此外,本研究还使用了来自布卢明顿果蝇资源中心(Bloomington Drosophila Stock Center,NIH P40OD018537)的品系。本研究部分得到了欧盟第七框架计划大型整合网络项目Gencodys对K.K.、H.v.B.和A.S.的资助,以及加拿大自然科学与工程研究理事会(NSERC)发现基金和加拿大健康研究院(CIHR)项目基金对J.M.K.的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| P{KK101437}VIE-260B | VDRC | 101437 | 60100遗传背景下的Dhat基因RNAi品系 |
| P{KK108109}VIE-260B | - | - | 60100遗传背景下的对照RNAi品系(K. Keleman惠赠) |
| w+, UAS-dcr2/yhh;;elav-Gal4 (III) | - | - | 全神经元表达驱动品系 |
| 植物组织培养容器 | VWR | 960177 | 175 mL塑料瓶 |
| 折叠滤纸 | Whatman | 10311643 | 用于扩大果蝇化蛹面积的滤纸 |
| 平底96孔板 | Qiagen | 19579 | 用于放置培养块 |
| MicroAmp透明粘性封膜 | Applied Biosystems | 4306311 | 作为平底96孔板的PCR封膜盖 |
| 剃须刀片 | - | - | 任何锋利刀片均可 |
| 针头 | - | - | 直径0.8 mm |
| 吸虫器 | - | - | 用剪刀将1 mL移液枪头剪成两段。将较细的一端作为果蝇入口插入约80 cm长的软管中。为防止果蝇进入软管,可在枪头与软管之间塞入普通棉絮或小片网状纱布。另一段枪头可用作软管末端的吹气口。 |
| 求偶行为观察室 | - | - | 文件S1可用指定的CAD软件打开 |
| 摄像机 | Sony | - | 摄像机规格:>400万像素,全高清。 手动定量时,任何简单的视频录制设备均可生成足够清晰的视频以准确观察求偶行为。若需进行自动定量,则具体要求可能因所用软件而异,建议用户在计划使用自动分析时进行充分调研。 |
| 名称 | 公司 | 货号 | 备注 |
| 高营养食物 | |||
| 琼脂 | Sigma | A7002 | |
| 酵母粉 | Bruggeman | - | |
| 酵母提取物 | MP biomedicals | 0210330391 | |
| 蛋白胨 | Sigma | P6838 | |
| 蔗糖 | Sigma | S9378 | |
| 葡萄糖 | Sigma | G7021 | |
| MgSO4 | Sigma | M2643 | |
| CaCl2 | Merck | 1023780500 | |
| 对羟基苯甲酸甲酯(注意) | Sigma | H5501 | |
| 丙酸(注意) | Sigma | P1386 | |
| 去矿物质水 | - | ||
| 酵母糊 | - | 酵母颗粒与水按1:1比例混合 | |
| 名称 | 公司 | 货号 | 备注 |
| 普通食物 | |||
| 琼脂 | MP biomedicals | 215017890 | |
| 酵母粉 | bruggeman | - | |
| 玉米粉 | de Molen | - | |
| 糖 | de Molen | - | |
| 对羟基苯甲酸甲酯(注意) | Sigma | H5501 | |
| 丙酸(注意) | Sigma | P1386 | |
| 去矿物质水 | - |
参考文献
- Quinn, W. G., Harris, W. A., Benzer, S. Conditioned behavior in Drosophila melanogaster. Proc. Natl. Acad. Sci. USA. 71, 708-712 (1974).
- Livingstone, M. S., Sziber, P. P., Quinn, W. G. Loss of calcium/calmodulin responsiveness in adenylate cyclase of rutabaga, a Drosophila learning mutant. Cell. 37, 205-215 (1984).
- Quinn, W. G., Sziber, P. P., Booker, R. The Drosophila memory mutant amnesiac. Nature. 277, 212-214 (1979).
- Dudai, Y., Jan, Y. N., Byers, D., Quinn, W. G., Benzer, S. dunce, a mutant of Drosophila deficient in learning. Proc. Natl. Acad. Sci. USA. 73, 1684-1688 (1976).
- Dubnau, J., Tully, T. Gene discovery in Drosophila: new insights for learning and memory. Annu. Rev. Neurosci. 21, 407-444 (1998).
- Siegel, R. W., Hall, J. C. Conditioned responses in courtship behavior of normal and mutant Drosophila. Proc. Natl. Acad. Sci. USA. 76, 3430-3434 (1979).
- Kamyshev, N. G., Iliadi, K. G., Bragina, J. V. Drosophila conditioned courtship: two ways of testing memory. Learning & memory. 6, 1-20 (1999).
- McBride, S. M., et al. Mushroom body ablation impairs short-term memory and long-term memory of courtship conditioning in Drosophila melanogaster. Neuron. 24, 967-977 (1999).
- Keleman, K., Kruttner, S., Alenius, M., Dickson, B. J. Function of the Drosophila CPEB protein Orb2 in long-term courtship memory. Nature Neurosci. 10, 1587-1593 (2007).
- Hall, J. C. The mating of a fly. Science. 264, 1702-1714 (1994).
- Keleman, K., et al. Dopamine neurons modulate pheromone responses in Drosophila courtship learning. Nature. 489, 145-149 (2012).
- Kramer, J. M., et al. Epigenetic regulation of learning and memory by Drosophila EHMT/G9a. PLoS Biol. 9. 9, e1000569(2011).
- Ishimoto, H., Sakai, T., Kitamoto, T. Ecdysone signaling regulates the formation of long-term courtship memory in adult Drosophila melanogaster. Proc. Natl. Acad. Sci. USA. 106, 6381-6386 (2009).
- Kochinke, K., et al. Systematic Phenomics Analysis Deconvolutes Genes Mutated in Intellectual Disability into Biologically Coherent Modules. Am. J. Hum. Genet. 98, 149-164 (2016).
- Buchert, R., et al. A peroxisomal disorder of severe intellectual disability, epilepsy, and cataracts due to fatty acyl-CoA reductase 1 deficiency. Am. J. Hum. Genet. 95, 602-610 (2014).
- JoVE Science Education Database. Essentials of Biology 1: yeast, Drosophila and C. elegans. Drosophila Maintenance. JoVE. , Cambridge, MA. (2017).
- JoVE Science Education Database. Essentials of Biology 1: yeast, Drosophila and C. elegans. An Introduction to Drosophila melanogaster. JoVE. , Cambridge, MA. (2017).
- R Core Team. R: A Language and Environment for Statistical Computing. R Foundation for Statistical Computing. , Vienna (Austria). (2016).
- Stepien, B. K., et al. RNA-binding profiles of Drosophila CPEB proteins Orb and Orb2). Proc. Natl. Acad. Sci. USA. 113, E7030-E7038 (2016).
- Basu, D. Randomization Analysis of Experimental Data: The Fisher Randomization Test. J Am Stat Assoc. 75, 575-582 (1980).
- Dankert, H., Wang, L., Hoopfer, E. D., Anderson, D. J., Perona, P. Automated monitoring and analysis of social behavior in Drosophila. Nat Methods. 6, 297-303 (2009).
- Reza, M. A., et al. Automated analysis of courtship suppression learning and memory in Drosophila melanogaster. Fly. 7, 105-111 (2013).
- Schneider, J., Levine, J. D. Automated identification of social interaction criteria in Drosophila melanogaster. Biol. Lett. 10, 20140749(2014).
重印与许可
