本研究介绍了一种从野生型新生小鼠中分离神经元的技术。该方法需要从新生小鼠中仔细解剖出脊髓,随后通过机械和酶解消化的方式将神经元从脊髓组织中分离出来。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
我们介绍一种分离和培养脊髓神经元的实验方案。神经元取自新生C57BL/6小鼠,于出生后第1至第3天进行分离。一次实验通常收集一窝小鼠(一般为同一对亲本繁殖产生的4-10只幼鼠),在使用异氟烷实施安乐死后,分别从每只小鼠个体中取出脊髓。首先解剖出脊柱,随后将脊髓从脊柱中分离出来。接着将脊髓组织切碎,以增加酶解蛋白酶的作用表面积,从而促使神经元及其他细胞从组织中释放。随后通过吹打(trituration)使细胞进入溶液。该溶液继而通过密度梯度离心进行分馏,以分离溶液中的各类细胞,从而获得纯化的神经元。从一窝小鼠中大约可分离出1-2.5 × 106个神经元。分离所得神经元随后接种于预先包被有黏附因子的培养孔中,以支持其正常生长与成熟。神经元在生长和培养培养基中大约需要7天时间达到成熟,之后即可用于处理与分析。
引言
理解脊髓病理需要采用多种模型,涵盖宏观和微观层面。大动物和小动物模型1,2,3被用于脊髓疾病和损伤的体内研究。尽管体内研究具有其优势,但对脊髓的分析通常局限于全脊髓匀浆或组织切片4。这在试图分离脊髓中特定神经元及其周围胶质细胞的特异性反应和靶点时,带来一定模糊性。随着基因修饰小鼠的日益可及,使得在细胞和分子水平上进行更深入的生物学研究成为可能。因此,本文采用新生小鼠模型,以在体外研究脊髓神经元的独特特性和生物学行为。
神经元的分离与培养 体外 并不特别简单。目前已有多种从成年啮齿类动物皮层组织中分离神经元的技术,这些方法似乎能够获得数量可观的分离神经元(即 百万5,6,7相比之下,从脊髓组织中获得的神经元产量较低8,9,10,部分原因是组织质量较小。此外,目前针对小鼠新生脊髓神经元的分离技术相对较少,且现有方法受限于神经元得率较低(即 数百9 或需要分离胚胎小鼠的繁琐且耗资源的技术10.
在本实验方案中,我们采用一种技术,可从新生小鼠的脊髓中高效、低成本地分离出大量神经元。与以往发表的技术类似,我们使用木瓜蛋白酶(papain)作为酶解性蛋白酶,以释放脊髓组织中的神经元5,6。此外,我们采用密度梯度法进行更精细的细胞分离,该方法此前已被证明有效6,10。尽管细胞培养所用的培养基可能有所不同,但根据我们的经验以及先前报道的结果11,添加新鲜的B27培养基添加剂对维持神经元的长期存活至关重要。这些神经元通常可存活长达10天,足以进行后续处理和实验。
访问受限。请登录或开始试用以查看此内容。
方案
本实验中动物的护理和处理均按照科罗拉多大学机构动物护理和使用委员会的指南进行。
1. 溶液的配制
- 按照 表1 所示,将所有溶液在适当的温度下配制并保存。
2. 包被孔板和载玻片
注意:神经元在塑料或玻璃表面不易贴附。
- 在分离神经元的前一天,用0.5 mL多聚-D-赖氨酸(PDL;表2)包被无菌24孔培养板的孔,并将其置于超净工作台中过夜。
注意:推荐使用24孔板,且仅包被中央孔,因为边缘孔的蒸发速度较快,容易导致结果不一致。此外,可在包被前将玻璃盖玻片放入孔内。神经元将附着于包被后的玻璃盖玻片上,后续可取出用于显微成像。 - 在分离当天,从孔中移除PDL,用无菌水洗涤数分钟,随后去除残留水分,并在室温下干燥1小时(见下文)。
- 干燥后,用层粘连蛋白(laminin;表2)对盖玻片进行二次包被。
注意:每个无菌24孔板孔使用约10 μL层粘连蛋白(10 µg/µL)即可。将其与340 μL培养基混合(总体积为350 μL),以完全覆盖整个孔。在培养罩内室温孵育2小时,然后在接种细胞前吸除溶液。
3. 脊髓的采集
注意:所有仪器均应进行高压灭菌(135 °C、30 psi,4 次循环,每次 7 分钟)以确保无菌。
- 将出生后1至3天的C57BL/6小鼠幼崽置于异氟烷安乐死舱中实施安乐死。在动物停止活动后等待30秒,并轻捏腿部以确认无反应。
- 将幼崽俯卧固定,使用剪刀分离头部与躯体。
- 将幼崽的后肢或尾部及前肢固定在操作台上,使背部朝向操作者。
- 使用弯头虹膜剪剪除皮肤。
- 从髋部上方的腰部区域切断脊髓,并沿胸腔两侧剪开,将脊柱部分与身体分离。
注意:此步骤需小心解剖脊髓,避免损伤内脏器官(图1a)。 - 将组织依次放入3个盛有5 mL经0.2 μm滤膜过滤除菌的磷酸盐缓冲液(PBS)的10 cm培养皿中,每皿洗涤10秒,以去除多余组织。
- 将装有5 mL过滤除菌PBS的22 G针头和注射器插入脊柱尾端,向头侧冲洗,使脊髓冲出并落入第四个培养皿中(图1b)。
- 将脊髓收集至含有5 mL HABG(表1)的15 mL离心管中,置于冰上。操作时注意避免压碎脊髓。
- 对同窝每只幼崽重复步骤3.1–3.8。
注意:理想情况下,每根脊髓的处理时间应少于30分钟,以确保获得健康的神经元分离效果。
4. 分离神经元
注意:以下步骤应在超净工作台中进行。操作者应熟悉基本的无菌操作技术。
- 组织剪切
- 取含有脊髓的离心管,轻轻摇晃以悬浮组织。
- 将组织从离心管倒入60 mm玻璃培养皿中,用剃须刀片将其切碎成约0.5 mm大小的细小碎片。
- 使用宽口移液管将组织转移至含有5 mL HABG的15 mL离心管中。
- 将离心管置于30 °C水浴中30分钟,使细胞在此温度下达到平衡。以轻微振荡保持细胞悬浮于液体中。
注:此步骤旨在避免细胞从冰上转移到消化液时受到温度冲击。将细胞维持在30 °C有助于减少因在37 °C时代谢增强而导致的细胞死亡。
- 制备消化液(表1)。
- 制备密度梯度(表1)。
- 按照表1所述,在4个独立的15 mL离心管中分别制备4层梯度液。
- 从每一层取1 mL加入一个新的15 mL离心管中。从底部的第1层开始,依次向上叠加至顶部的第4层。添加过程中避免扰动各层。
- 清洗步骤2.2中涂有PDL的培养板。先用无菌水清洗数分钟,然后去除残留水分,并使其干燥1小时。
- 将组织转移至消化液中。
- 从30 °C振荡水浴中取出含组织的离心管,静置数分钟使其沉淀。
- 从37 °C水浴中取出消化液离心管,并用鲁尔锁扣注射器吸取消化液。
- 吸除含组织离心管中多余的HABG。
- 使用鲁尔锁扣0.2 μm滤器连接注射器,将消化液加入含组织的离心管中。
- 将离心管置于30 °C水浴中30分钟。保持轻微振荡,使细胞悬浮于液体中。
注:必须注意不要让细胞在消化液中停留过久或温度过高,否则可能导致过度消化,使组织悬浮于胶状混合物中。
- 在此期间,按照步骤2.3进行层粘连蛋白包被。
- 进行吹打(即将细胞从组织中分离)。
- 从30 °C振荡水浴中取出离心管,静置数分钟使其沉淀。
- 吸除多余的消化液。
- 用2 mL HABG重悬组织。
- 使用窄口移液管,吹打10次,持续45秒。
注:这可能是最关键的一步,若操作不当会显著降低细胞得率。- 将组织吸入移液管后立即排回。
- 避免引入空气,否则会显著降低活细胞得率。
注:理想的移液管为9英寸玻璃移液管。移液管尖端应经火焰抛光以消除粗糙表面,随后将其置于含二氯二甲基硅烷(DMDCS)与氯仿1:20的溶液中过夜进行硅烷化处理。取出后自然晾干,再进行高压灭菌。
注意:DMDCS和氯仿高度易燃,硅烷化处理应在通风橱中进行。
- 吸出上层2 mL上清液,转移至标记为“收集”的新15 mL离心管中。
- 重复步骤4.7.3–4.7.5两次(最终细胞收集管中应有6 mL液体)。
- 缓慢将收集管中的内容物转移至步骤4.2中制备的梯度离心管中,避免破坏梯度。
- 此时,从冰箱中取出先前制备的Neurobasal培养基(表1),并在37 °C水浴中预热。
- 纯化神经元。
- 以800 × g、22 °C离心15分钟处理梯度管。
- 用移液管收集目标层(图2),转移至新的15 mL离心管中。若需最高纯度的神经元分离(即>90%),收集第3层;若追求更高得率但纯度稍低(即>70–80%),则收集第2层和第3层。
- 通过加入5 mL HABG稀释密度梯度液。
- 以200 × g、22 °C离心2分钟。
- 弃去上清液,用5 mL HABG重悬细胞,并轻弹管底使细胞重新悬浮。
- 以200 × g、22 °C离心2分钟。
- 弃去上清液,用3 mL Neurobasal培养基重悬细胞,并轻弹管底使细胞重新悬浮。
- 细胞计数。
- 取10 μL含细胞的Neurobasal培养基溶液,与10 μL台盼蓝混合。
- 取10 μL混合液加入玻璃计数板中。
- 使用标准玻璃计数板,计数四个4×4象限中的细胞数。将所有计数的细胞数(n)相加,乘以2(稀释倍数),除以4(计数的象限数),再乘以3(Neurobasal培养基体积),最后乘以104,得到每毫升的细胞浓度(细胞/mL)。
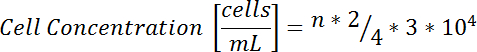
- 将细胞接种至培养板
- 将细胞悬液稀释至每1 mL Neurobasal培养基中含有300,000个细胞。
注:根据前述步骤获得的细胞浓度,加入适量Neurobasal培养基,使最终浓度为3×10⁵细胞/mL。使用公式C1V1=C2V2,其中C1为收获后获得的初始细胞浓度;V1为3 mL;C2为3×10⁵细胞/mL。求解V2,并加入相应体积的Neurobasal培养基,使溶液总体积达到V2。 - 轻轻混匀以分散细胞,每孔加入1 mL至包被好的24孔板中。
- 将细胞悬液稀释至每1 mL Neurobasal培养基中含有300,000个细胞。
访问受限。请登录或开始试用以查看此内容。
结果
利用该技术,单窝仔鼠(4-10只)可分离获得1-2.5×10⁶个细胞6 适用于接种到培养板上的神经元。通常,按照上述浓度接种4-8个孔。即 300,000 个细胞/mL 图3 展示了在此浓度下培养一周后低倍镜下的神经元形态a)和高-(b) 放大倍数的光学显微镜观察。然而,我们也成功实现了细胞培养浓度高达500,000个细胞/孔和低至100,000个细胞/孔的条件。使用较高浓度时需要添加更多培养基,并需密切监控环境条件,因为营养物质可能迅速耗尽,导致细胞处于有毒的酸性环境中。而在较低浓度下,细胞往往难以达到完全成熟状态,且支持细胞容易出现过度生长(即 观察到少突胶质细胞、小胶质细胞和星形胶质细胞。
细胞通常会在最初几个小时内开始贴附到表面
访问受限。请登录或开始试用以查看此内容。
讨论
该技术可实现脊髓神经元的可靠培养。掌握该技术后,完成整个操作大约需要3.5小时。我们曾用约4小时成功从两批独立的幼鼠(共16只小鼠)中分离出神经元。该技术可行性的关键步骤在于能否熟练地从小鼠体内提取脊髓。该方法的产量足以接种多个孔板,从而可在不同条件下对神经元进行测试。我们已能够在神经元成熟后对其进行处理,并利用Western blot分析可靠地评估蛋白表达水平。此外,在孔板内使用载玻片以促进神经元贴附,可进一步对神经元进行染色分析。
该方法的优势在于无需使用胚胎组织及其相关的高强度劳动。此外,无需使用成年脊髓即可获取足量组织以实现充分的神经元分离。这避免了年龄因素对神经元生理行为的叠加影响,而这种影响在成年小鼠中是存在的。然而,该技术也存在局限性。如前所述,使用新生小鼠会排除老年神经元,如果研究方向涉及年龄相关的行为与生物学特性,则可能构成限制。该操作技术存在学习曲线,不仅需要优化收获率,还需确保分离得到的神经元处于健康状态。脊髓提取技术需要一定时间才能掌握,尤其是针对新生小鼠的操作。我们注意到,脊髓提取过程耗时过长会导致所获得的神经元体外培养时间显著缩短。将神经元置于冰上可在一...
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Hibernate A 培养基 - 500 mL | Thermo-Fisher | A1247501 | https://www.thermofisher.com/order/catalog/product/A1247501 |
| 无钙 Hibernate A 培养基 - 500 mL | Brainbits | HA-Ca | http://www.brainbitsllc.com/hibernate-a-minus-calcium/ |
| Glutamax 100X - 100 mL | Thermo-Fisher | 35050061 | https://www.thermofisher.com/order/catalog/product/35050079 |
| B27 添加剂 50X - 10 mL | Thermo-Fisher | 17504044 | https://www.thermofisher.com/order/catalog/product/17504044 |
| 木瓜蛋白酶,冻干粉 - 100 mg | Worthington | LS003119 | http://www.worthington-biochem.com/pap/cat.html |
| Neurobasal A 培养基 - 500 mL | Thermo-Fisher | 10888022 | https://www.thermofisher.com/order/catalog/product/10888022 |
| 青霉素-链霉素(10,000 U/mL) | Thermo-Fisher | 15140122 | https://www.thermofisher.com/order/catalog/product/15140122 |
| 聚-D-赖氨酸盐酸盐(PDL)- 5 mg | Sigma-Aldrich | P6407-5MG | http://www.sigmaaldrich.com/catalog/product/sigma/p6407?lang=en®ion=US |
| 小鼠层粘连蛋白 - 1 mg | Thermo-Fisher | 23017015 | https://www.thermofisher.com/order/catalog/product/23017015 |
| 台盼蓝 - 20 mL | Sigma-Aldrich | T8154-20ML | http://www.sigmaaldrich.com/catalog/product/sigma/t8154?lang=en®ion=US |
| OptiPrep 密度梯度介质 - 250 mL | Sigma-Aldrich | D1556-250ML | http://www.sigmaaldrich.com/catalog/product/sigma/d1556?lang=en®ion=US |
| 二氯二甲基硅烷(DMDCS,Sigma Silicoat) | Sigma-Aldrich | 440272-100ML | http://www.sigmaaldrich.com/catalog/product/aldrich/440272?lang=en®ion=US |
| 氯仿 | Sigma-Aldrich | 288306-1L | http://www.sigmaaldrich.com/catalog/product/sial/288306?lang=en®ion=US |
| 玻璃移液管 - 9" | Sigma-Aldrich | 13-678-20C | http://www.sigmaaldrich.com/catalog/product/sigma/cls7095d9?lang=en®ion=US |
| 移液球 - 5 mL | Sigma-Aldrich | Z186678-3EA | http://www.sigmaaldrich.com/catalog/product/aldrich/z186678?lang=en®ion=US&cm_sp=Insite-_-prodRecCold_xviews-_-prodRecCold10-1 |
| BRAND® 培养皿,玻璃 - 60 x 15 mm | Sigma-Aldrich | BR455717-10EA | http://www.sigmaaldrich.com/catalog/product/aldrich/br455717?lang=en®ion=US |
| 无菌 24 孔细胞培养板 | Sigma-Aldrich | M8812-100EA | http://www.sigmaaldrich.com/catalog/product/sigma/m8812?lang=en®ion=US |
| Hausser 血细胞计数板(玻璃计数室) | Fischer Scientific | 02-671-6 | https://www.fishersci.com/shop/products/hausser-bright-line-phase-hemacytometer-hemacytometer/026716 |
| 玻璃载片 - 12 mm 无菌盖玻片 - 未包被 | Neuvitro | GG-12-1.5-Pre | http://www.neuvitro.com/german-coverslip-12mm-diameter.htm |
| NeuN 兔单克隆抗体 - 100 µL | Abcam | ab177487 | 经多聚甲醛(PFA)固定并用 5% BSA 封闭后,将 12 mm 盖玻片上的细胞在 4 °C 条件下与抗体(1:200 稀释)孵育 18 小时 |
| MAP-2 小鼠单克隆抗体 - 50 µL | Abcam | ab11267 | 经多聚甲醛固定并用 5% BSA 封闭后,将 12 mm 盖玻片上的细胞在 4 °C 条件下与抗体(1:500 稀释)孵育 18 小时 |
参考文献
- Qayumi, A. K., et al. Animal model for investigation of spinal cord injury caused by aortic cross-clamping. J Invest Surg. 10 (1-2), 47-52 (1997).
- Fang, B., et al. Ischemic preconditioning protects against spinal cord ischemia-reperfusion injury in rabbits by attenuating blood spinal cord barrier disruption. Int J Mol Sci. 14 (5), 10343-10354 (2013).
- Taira, Y., Marsala, M. Effect of proximal arterial perfusion pressure on function, spinal cord blood flow, and histopathologic changes after increasing intervals of aortic occlusion in the rat. Stroke. 27 (10), 1850-1858 (1996).
- Stoppini, L., Buchs, P. -A., Muller, D. A simple method for organotypic cultures of nervous tissue. J Neurosci Methods. 37 (2), 173-182 (1991).
- Ahlemeyer, B., Baumgart-Vogt, E. Optimized protocols for the simultaneous preparation of primary neuronal cultures of the neocortex, hippocampus and cerebellum from individual newborn (P0. 5) C57Bl/6J mice. J Neurosci Methods. 149 (2), 110-120 (2005).
- Brewer, G. J., Torricelli, J. R. Isolation and culture of adult neurons and neurospheres. Nat Protoc. 2 (6), 1490-1498 (2007).
- Banker, G. A., Cowan, W. M. Rat hippocampal neurons in dispersed cell culture. Brain Res. 126 (3), 397-425 (1977).
- Graber, D. J., Harris, B. T. Purification and culture of spinal motor neurons from rat embryos. Cold Spring Harb Protoc. 2013 (4), 319-326 (2013).
- Anderson, K. N., Potter, A. C., Piccenna, L. G., Quah, A. K., Davies, K. E., Cheema, S. S. Isolation and culture of motor neurons from the newborn mouse spinal cord. Brain Res Prot. 12 (3), 132-136 (2004).
- Gingras, M., Gagnon, V., Minotti, S., Durham, H. D., Berthod, F. Optimized protocols for isolation of primary motor neurons, astrocytes and microglia from embryonic mouse spinal cord. J Neurosci Methods. 163 (1), 111-118 (2007).
- Brewer, G. J., et al. Optimized survival of hippocampal neurons in B27-supplemented Neurobasal, a new serum-free medium combination. J Neurosci Res. 35 (5), 567-576 (1993).
- Fang, B., et al. Ischemic preconditioning protects against spinal cord ischemia-reperfusion injury in rabbits by attenuating blood spinal cord barrier disruption. Int J Mol Sci. 14 (5), 10343-10354 (2013).
- Su, M., Zhong, W., Ren, S. Dose-dependent protection of reseveratrol against spinal cord ischemic-reperfusion injury in rats. Trop J Pharm Res. 15 (6), 1225-1233 (2016).
- Haapanen, H., et al. Remote ischemic preconditioning protects the spinal cord against ischemic insult: An experimental study in a porcine model. J Thorac Cardiovasc Surg. 151 (3), 777-785 (2016).
- Conrad, M. F., Ye, J. Y., Chung, T. K., Davison, J. K., Cambria, R. P. Spinal cord complications after thoracic aortic surgery: long-term survival and functional status varies with deficit severity. J Vasc Surg. 48 (1), 47-53 (2008).
- Wong, D. R., et al. Delayed spinal cord deficits after thoracoabdominal aortic aneurysm repair. Ann Thorac Surg. 83 (4), 1345-1355 (2007).
- Freeman, K. A., et al. Alpha-2 agonist attenuates ischemic injury in spinal cord neurons. J Surg Res. 195 (1), 21-28 (2015).
- Freeman, K. A., et al. Spinal cord protection via alpha-2 agonist-mediated increase in glial cell-line-derived neurotrophic factor. J Thorac Cardiovasc Surg. 149 (2), 578-586 (2015).
访问受限。请登录或开始试用以查看此内容。
重印与许可
