本文介绍了两种基于抗体的蛋白质-蛋白质相互作用研究技术:免疫荧光和免疫沉淀。这些技术适用于研究蛋白质之间的物理相互作用,可用于发现细胞信号通路中的新组分,并有助于理解蛋白质的动态行为。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
蛋白质-蛋白质相互作用对于理解细胞信号级联反应、鉴定新通路组分及蛋白质动态至关重要。大多数细胞活动都需要蛋白质之间的物理相互作用。为了分析和绘制这些相互作用图谱,已开发出多种实验技术及生物信息学工具。自噬是一种细胞回收机制,使细胞能够应对多种应激因素,包括营养缺乏、化学物质和缺氧。为了更深入地理解与自噬相关的信号事件,并发现调控自噬过程中蛋白质复合物的新因子,我们开展了蛋白质-蛋白质相互作用筛选。这些筛选结果的验证需要使用免疫荧光和免疫共沉淀技术。在本研究体系中,我们所发现的特定自噬相关蛋白质-蛋白质相互作用在 Neuro2A(N2A)和 HEK293T 细胞系中进行了检测。本文可视化实验论文中详细阐述了所采用技术步骤的具体细节。
引言
大自噬(以下简称自噬)是一种细胞应激机制,其特征是将细胞质组分、蛋白质和细胞器包裹于双层膜结构的自噬小泡中。通过双层膜外膜与溶酶体融合,自噬小泡及其内容物被递送至溶酶体并降解1。所有细胞类型和生物体在基础状态下均存在低水平的自噬,发挥诸如蛋白质降解和细胞器(例如,线粒体)更新等稳态功能。在饥饿等引起细胞应激的条件下,自噬迅速上调,使细胞能够维持能量水平和基本代谢活动1,2,3。
已从酵母中克隆出约30个自噬相关基因,其编码的蛋白质被证实参与自噬过程的多个阶段,包括囊泡成核、扩增、与晚期内体/溶酶体融合以及 cargo 的降解4,5这些基因的大多数直系同源物已被鉴定,并且在多种生物中的研究证实了其细胞功能的保守性6近十年的研究表明,存在多个与自噬相关的蛋白质复合物及蛋白质-蛋白质相互作用,它们以复杂而精确的方式调控自噬通路。这些通路之间存在交叉、冗余、反馈和前馈机制,使细胞能够将自噬与其他相关过程(如囊泡分泌、溶酶体生成、内体分选与运输)协调进行7, 等等。在以自噬蛋白ATG5为诱饵的非偏向性酵母双杂交筛选中(ATG5是饥饿诱导自噬过程中介导LC3脂化反应的类E2结合系统中的关键自噬蛋白),我们鉴定出受体激活C激酶1(RACK1;GNB2L1)为一个强相互作用蛋白及一种新的自噬组分8重要的是,筛选结果显示,ATG5与RACK1的相互作用对于经典自噬诱导剂诱导自噬至关重要(即,饥饿和mTOR抑制)。
基于免疫荧光的方法常用于监测蛋白质-蛋白质相互作用。这些技术主要依赖于抗体,有助于可视化相互作用并确认蛋白质在细胞内的定位。在该技术中,通常使用与目标蛋白质特异性结合的荧光标记抗体进行特异性染色。每种蛋白质可利用偶联不同荧光染料的抗体进行标记。通过使用特异性抗体,在共聚焦显微镜下将图像合并时,若信号出现重叠,则表明蛋白质存在共定位现象。该技术适用于细胞甚至组织样本。免疫荧光技术可提供有关相互作用动态的信息,有助于鉴定蛋白质复合物的大小和分布,同时追踪不同条件下细胞形态的总体变化9。免疫共沉淀是另一种常用的基于抗体的技术,可用于分析特定蛋白质之间的相互作用10。利用该技术,可通过特异性抗体从细胞或组织提取物中分离目标蛋白质,从而沉淀与该目标蛋白质形成复合物或与其相互作用的其他蛋白质。在共免疫沉淀实验中,目标蛋白及其相互作用伙伴均可被检测,不仅能够揭示两种蛋白质之间的相互作用,还可测量其在不同条件下的相互作用强度11。
本方案详细描述了用于验证和表征ATG5-RACK1及RACK1-LC3相互作用的关键技术。重点介绍免疫荧光和免疫共沉淀技术,强调自噬研究中的关键步骤和常见陷阱,并提供相应的故障排除建议。
访问受限。请登录或开始试用以查看此内容。
方案
1. 免疫荧光
- 将 HEK293T 人胚胎肾细胞维持在 DMEM 高糖培养基中,N2A 小鼠神经母细胞瘤细胞维持在 DMEM 低糖培养基中,置于 5% CO₂ 培养箱中培养2-37 °C 恒温培养箱。在培养基中添加 10% 热灭活胎牛血清(FBS)、抗生素(50 U/mL 青霉素,50 µg/mL 链霉素)和 L-谷氨酰胺(2 mM)。
- 使用0.25%胰蛋白酶消化细胞。首先移除细胞培养基,然后用10 mL无菌磷酸盐缓冲液(PBS)洗涤细胞,并在37 °C下加入1 mL胰蛋白酶孵育5 min。加入2 mL DMEM培养基以终止胰蛋白酶消化反应。
- 用移液器充分洗涤培养板。取10 µL细胞悬液与10 µL台盼蓝混合,使用血细胞计数板计数活细胞数量。
- HEK293T 和 N2A 均为贴壁细胞系,但 HEK293T 细胞容易从培养板上脱落。因此,若使用 HEK293T 细胞系,应在接种细胞前用无菌过滤的 0.01% 多聚赖氨酸(poly-L-lysine)包被盖玻片。
- 将无菌盖玻片放入10 cm培养皿中。在每张盖玻片上加入适量的聚-L-赖氨酸溶液。将盖玻片与聚-L-赖氨酸溶液孵育10分钟。
- 移除聚-L-赖氨酸溶液。
注意:聚-L-赖氨酸可重复使用,可选择性地收集并用于后续实验。由于聚-L-赖氨酸具有毒性,需等待盖玻片上的溶液完全蒸发后,再回收聚-L-赖氨酸。 - 用无菌 PBS 清洗盖玻片。
- 向12孔板的每个孔中加入1 mL DMEM。在每个孔中放入一个盖玻片。
- 每孔接种 20,000 个细胞,边滴加边轻轻摇晃培养板,使细胞在盖玻片上均匀分布。将细胞置于 CO2 37 °C 培养箱中孵育,并加入药物,确保总孵育时间不超过 48 h, 即,对于3小时的Torin处理,在接种后45小时加入药物。
- 在研究RACK1与LC3相互作用时,使用Torin 1、雷帕霉素和营养剥夺作为自噬诱导剂。细胞分别用Torin 1处理3小时(终浓度250 nM)、用雷帕霉素处理16小时(终浓度200 nM),或在Earle's平衡盐溶液(EBSS)中孵育2小时以实现营养剥夺。
注:以含10% FBS的DMEM培养基孵育作为对照条件。
- 在研究RACK1与LC3相互作用时,使用Torin 1、雷帕霉素和营养剥夺作为自噬诱导剂。细胞分别用Torin 1处理3小时(终浓度250 nM)、用雷帕霉素处理16小时(终浓度200 nM),或在Earle's平衡盐溶液(EBSS)中孵育2小时以实现营养剥夺。
- 在总共孵育48小时后,移除盖玻片上的培养基,并用1 mL PBS洗涤。
- 为固定细胞,将细胞与1 mL预冷的无菌过滤4%多聚甲醛(PFA)溶液(溶于1×PBS,pH 7.4)在室温下孵育20分钟,期间不进行任何振荡。
由于PFA对光敏感,孵育期间需将(重要)培养板避光保存;可用铝箔包裹培养板以达到避光效果。此外,PFA具有毒性,因此在固定细胞时应在通风橱中操作。
注意:在免疫荧光实验中,固定步骤需要进行优化,因为不同的抗体可能在特定的固定剂和条件下效果最佳。 - 孵育PFA 20分钟后,首先去除盖玻片上的PFA溶液,然后用1 mL无菌过滤的PBS将每个样本洗涤3次。此步骤中(重要)需逐个洗涤各孔,避免其干燥。务必防止干燥,因为干燥会干扰细胞的后续反应,改变细胞形态,并增加非特异性信号。
- 洗涤完成后,将样品置于冰上,加入1 mL PBS保存。
- 制备封闭液:含0.1%牛血清白蛋白(BSA)和0.1%皂苷的PBS溶液。
- 用石蜡膜覆盖6孔板。确保石蜡膜覆盖后板底平整。标记6孔板。
- 使用镊子将盖玻片从12孔板转移至铺有石蜡膜的6孔板中。
- 弃去盖玻片上的 PBS,每张盖玻片加入 100 µL 封闭液以进行通透处理。将样品置于冰上孵育 30 分钟。
- 在封闭液中配制一抗。实验前,优化抗体稀释比例,以确定染色的最佳工作浓度。
注意:例如,LC3 抗体在封闭液中的使用稀释比例为 1:100。 - 30分钟孵育后,弃去封闭液,用1 mL PBS 轻柔洗涤样品一次。
- 向每张盖玻片中加入 100 µL 一抗溶液。将样品置于摇床上,室温孵育 1 小时。
注意:一抗孵育时间应进行优化。根据抗体的不同,可能更适合在 4 °C 下过夜孵育。建议在摇床上轻轻孵育(100 转/分钟),以使抗体在盖玻片上均匀分布。 - 一抗孵育后,用1 mL PBS分别清洗样品3次。
- 将二抗按1:500比例加入封闭液中配制(可能需要对二抗的稀释比例进行优化)。本实验中使用Alexa Fluor 568标记的抗兔IgG作为二抗。
- 在摇床上于室温下用 100 µL 二抗溶液孵育样品 1 小时。由于荧光染料标记的二抗对光敏感(重要),需将溶液避光保存。在二抗孵育期间及之后均应将样品置于黑暗环境中。
- 二抗孵育后,用 PBS 洗涤平板 3 次。
注意:根据经验,某些抗体具有较高的背景信号,无法通过 PBS 洗涤去除。若使用此类抗体,可在步骤 1.21 后将样品置于 4 °C 的 PBS 中孵育 6 小时,可能有助于降低背景信号。- 如有需要,可使用 DNA 结合染料(如 Hoechst)对细胞进行染色,以标记细胞核。
- 若要对多种蛋白进行染色,从步骤1.16开始对第二种蛋白应用相同的操作流程。
- 确保在使用多种抗体进行染色时,抗体之间不存在交叉反应性例如,使用小鼠和兔抗体。
注意:此处使用上述相同浓度的抗-RACK1 一抗和抗小鼠 IgG Alexa Fluor 488 二抗,将 RACK1 作为第二种蛋白进行染色。
- 确保在使用多种抗体进行染色时,抗体之间不存在交叉反应性例如,使用小鼠和兔抗体。
- 制备封片液:将50%甘油溶于1×PBS中,经22 µm滤膜过滤。
- 用无绒布蘸取乙醇擦拭载玻片,并在每张载玻片上加入10 µL封片液。使用镊子将盖玻片放置于液滴上,确保细胞所在的一面与封片液直接接触。用无绒布轻轻去除多余的封片液。
- 用透明指甲油封固盖玻片。首先,在盖玻片的四个边缘滴加指甲油以固定盖玻片,然后将其完全密封。
- 尽快在荧光显微镜或共聚焦显微镜下分析样品,因为荧光信号可能在数小时后发生淬灭。
2. 免疫沉淀
- 按照步骤 1.2 和 1.3 所述,消化并计数细胞。
- 若使用 HEK293T 细胞,每种实验条件接种 400 万个细胞至 15 cm 培养皿中;若使用 N2A 细胞,则接种 500 万个细胞至 15 cm 培养皿中。将细胞置于 37 °C 的 CO2 培养箱中孵育,直至实验结束。
- 用相应的药物或处理条件处理细胞一段特定时间,确保细胞总孵育时间不超过 48 小时。
注意:本研究中用于免疫共沉淀实验的细胞分别用 Torin 1(250 nM)处理 3 小时、用 rapamycin(200 nM)处理 16 小时、用 EBSS 处理 2 小时。对照组细胞加入含 10% FBS 的 DMEM 培养基。 - 在总孵育时间达到 48 小时后,吸除培养基并收集细胞。由于 HEK293T 细胞容易从培养皿脱落,用冰预冷的 PBS 洗涤培养皿可能足以完成细胞收集。然而,N2A 细胞更难脱落,需使用细胞刮刀辅助收集细胞。
- 将所有细胞收集至微量离心管中。
- 在 4 °C 条件下以 16,000 × g 离心 15 分钟。弃去上清液,并通过移液重悬沉淀,用 1 mL PBS 洗涤一次。
- 再次进行离心,但在 4 °C 下以最大离心速度离心 15 分钟,弃去上清液。
- 在实验开始前配制放射免疫沉淀分析(RIPA)缓冲液。
注意:RIPA 缓冲液有三种类型;根据所研究蛋白间相互作用的强度选择合适的缓冲液(见下文配方)。- 若蛋白-蛋白相互作用较强,选择常规 RIPA 缓冲液。
- 若相互作用较弱,选择温和型 RIPA 或更温和型 RIPA 缓冲液。
注意:以下步骤中列出这些缓冲液的配方。所有用于免疫共沉淀实验的缓冲液均应添加蛋白酶抑制剂。- 使用以下成分配制常规 RIPA 缓冲液:1% NP-40、150 mM NaCl、0.5% 脱氧胆酸钠、0.1% 十二烷基硫酸钠(SDS),溶于 50 mM Tris(pH 8)中。
- 使用以下成分配制温和型 RIPA 缓冲液:1% NP-40、150 mM NaCl、0.25% 脱氧胆酸钠,溶于 50 mM Tris(pH 7.5)中。
- 使用以下成分配制更温和型 RIPA 缓冲液:1% Triton-X 100、137 mM NaCl、1% 甘油、1 mM 正钒酸钠,溶于 50 mM Tris(pH 7.4)中。
- 选择合适的 RIPA 缓冲液后,加入蛋白酶抑制剂(记为 RIPA+),然后用相当于细胞沉淀体积 3 倍的 RIPA+ 缓冲液裂解细胞。
- 涡旋振荡悬液 15 秒,冰上放置 5 分钟。重复涡旋和冰浴共 5 次,然后在 4 °C 条件下以 16,000 × g 离心 15 分钟。
- 将上清液转移至洁净的微量离心管中,再次离心以去除残留的细胞碎片,再将上清液转移至新的洁净离心管中。
- 将蛋白裂解液稀释 50 倍,并在 96 孔板中设置空白孔和标准品孔,同时对样品进行稀释。
- 将样品与 Bradford 溶液按 1:20 混合,避光孵育 15 分钟。
- 测定 595 nm 波长处的光密度值,利用各样品的吸光度值计算蛋白浓度。
- 在收集细胞的前一天,将蛋白 A Plus 磁珠与针对目标蛋白的特异性抗体偶联。
- 用剪刀剪去 200 µL 吸头的尖端,每种实验条件使用 25 µL 磁珠悬液。
- 依次用 1 mL PBS、1 mL RIPA 缓冲液和 1 mL RIPA+ 各洗涤磁珠一次。每次洗涤在 3,300 × g、4 °C 条件下离心 1 分钟。
- 最后一次洗涤后,在磁珠中加入 300 µL RIPA+ 缓冲液,并加入 1.5 µg 针对目标蛋白的特异性抗体。
- 将离心管置于旋转仪上,在 4 °C 条件下孵育过夜(20 转/分钟)。
注意:本实验中使用特异性抗 ATG5 抗体进行 ATG5 蛋白的免疫沉淀。
- 磁珠与抗体过夜孵育后,按照步骤 2.12.2 所述,依次用 PBS、RIPA 和 RIPA+ 各洗涤磁珠一次。
- 每种实验条件下,向磁珠中加入 2 mg 蛋白裂解液,并用 RIPA+ 缓冲液补足总体积至 300 µL/管。将离心管置于 4 °C 旋转仪上孵育过夜。
- 孵育结束后,按前述方法(步骤 2.12.2)洗涤磁珠。
- 最后一次洗涤后,使用较小的移液吸头小心吸除所有上清液,避免触碰磁珠。
- 加入 10 µL 3× 上样缓冲液:含 6% SDS、30% 甘油、16% β-巯基乙醇和 0.1% 溴酚蓝的 1 M Tris-HCl(pH 6.8)溶液。
- 为每种实验条件准备输入对照(input control),至少使用 100 µg 蛋白裂解液。用水调整各样品体积至一致,并加入适量 3× 上样缓冲液。
- 在 95 °C 条件下煮沸样品 10 分钟。
注意:煮沸过程中,离心管盖可能因压力而自动弹开,导致样品损失。建议使用专用的管盖固定器压紧管盖以避免此问题。 - 短暂离心后,将样品上样至 SDS-PAGE 凝胶,按照标准操作流程根据蛋白分子量大小进行分离。
注意:本研究中针对 RACK1 和 ATG5 的实验,样品在 12% 聚丙烯酰胺凝胶中先以 80 V 电泳 30 分钟,再以 120 V 电泳约 90 分钟。但对于 LC3 等较小分子量的蛋白,使用 15% 聚丙烯酰胺凝胶更为合适。 - 电泳结束后,采用湿转法或半干转法将蛋白转移至硝酸纤维素膜(nitrocellulose)或 PVDF 膜。随后将膜在含 5% 脱脂奶粉和 0.05% Tween 20 的 PBS(PBST)中室温封闭 1 小时。用 PBST 洗涤膜 3 次,每次 5 分钟。
- 将膜与工作浓度的一抗在室温孵育 1 小时。一抗稀释时使用含 BSA 的红色溶液(5% BSA Cohn V 组分、0.02% 叠氮化钠溶于 PBST,pH 7.5;加入酚红作为 pH 指示剂),以便抗体可重复使用。
注意:例如,将 ATG5 抗体用上述红色溶液稀释 2,000 倍。- 孵育结束后,用 PBST 洗涤膜 3 次。
- 将膜与 HRP 标记的二抗在 5% 脱脂奶粉溶液中孵育(本实验中使用 1:10,000 稀释的抗兔 IgG 二抗),然后用 PBST 洗涤 3 次,每次 5 分钟。
- 配制 ECL 显色液:25 mM 鲁米诺、9 mM 对香豆酸、3 × 10⁻⁴ % H2O2,溶于 70 mM Tris-HCl(pH 8.8)中。每次实验均需使用新鲜的 H2O2。
注意:加入 H2O2 后反应即开始,持续约 20 分钟。- 将膜与 X 光片在 ECL 显色液中共同孵育 20 分钟,在暗室中进行显影和定影。
- 若需检测分子量相近或重叠的蛋白是否存在共免疫沉淀,可将膜在 stripping 缓冲液(25 mM Tris-HCl pH 2 和 1% SDS)中 60 °C 孵育 30 分钟,以去除膜上已结合的抗体。
- 重复步骤 2.20 至 2.23,使用不同抗体检测共免疫沉淀情况。例如,在检测 ATG5 并完成膜 stripping 后,使用抗 RACK1 一抗(1:1,000)和二抗(1:10,000)在同一张膜上检测 RACK1 蛋白。以 β-Actin 作为上样对照;免疫沉淀样品则以 IgG 信号作为上样对照。
访问受限。请登录或开始试用以查看此内容。
结果
在图1中展示了使用本方案获得的共定位结果示例。该图来自我们近期发表的论文8。在此,内源性RACK1蛋白以绿色染色,而内源性LC3以红色染色。在合并图像中观察到的黄色斑点表示绿色与红色信号的重叠区域。因此,这些黄色斑点代表了这两种蛋白的部分共定位。
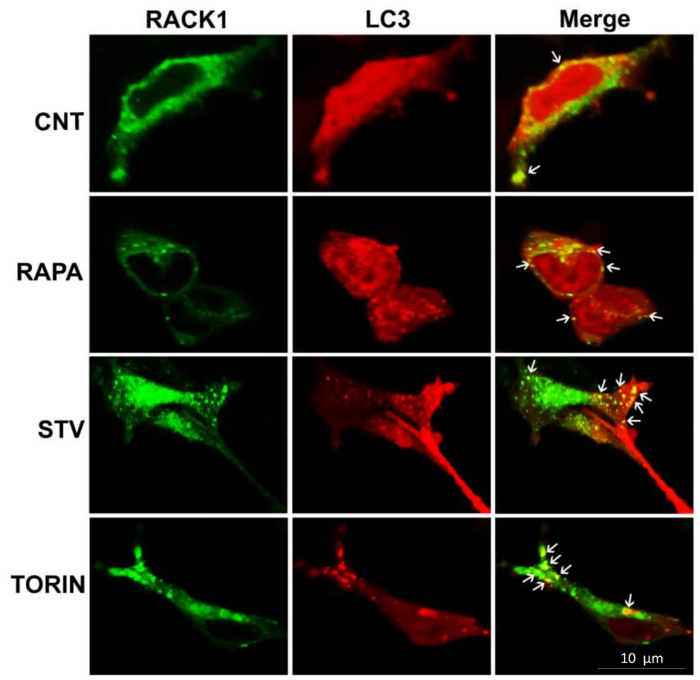
图1代表性免疫荧光结果。 HEK293T 细胞在盖玻片上培养。细胞经雷帕霉素(Rapa, 200 nM,16 h)或 Torin 1(Torin...
访问受限。请登录或开始试用以查看此内容。
讨论
免疫沉淀和免疫荧光技术对于研究蛋白质-蛋白质相互作用至关重要。尽管这两种技术常用且已成熟,但在使用这些技术时,仍需考虑若干标准以评估实验质量。
首先,这些实验中使用的初级抗体应针对目标蛋白具有特异性。为确保这一点,可利用shRNA敲低或基因敲除细胞来验证待测抗体的特异性。此外,可使用阳性对照,或用已知可诱导目标蛋白的试剂处理细胞。抗体还存在批次间的差异。而且,某些多克隆抗体或血清可能产生较高的背景信号和非特异性条带。尽管其中一些条带可能是目标蛋白的其他修饰形式,但通常这些条带是由于多克隆抗体与相关蛋白发生交叉反应所致,或为非特异性结合产物。单克隆抗体在这一方面通常具有更高的特异性,但其产生的信号可能较弱。使用带标签的蛋白及已确立的抗标签抗体来验证抗体特异性可能有所帮助,但内源性相互作用的验证仍更具价值且至关重要。
共定位或免疫共沉淀实验无法明确确定蛋白质-蛋白质相互作用是否为直接相互作用。可能存在其他伴侣分子介导了所观察到的相互作用。事实上,在 图1观察到 RACK1...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作由土耳其科学技术研究理事会(TUBITAK)1001 项目资助,项目编号 107T153,以及由萨班哲大学资助。SEB 和 NMK 获得了 TUBITAK BIDEB 2211 博士奖学金的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 胰蛋白酶EDTA溶液A | Biological Industries | BI03-050-1A | |
| 磷酸盐缓冲液(PBS) | GE Healthcare | SH-30256.01 | |
| DMEM(高糖) | Sigma | 5671 | |
| DMEM(低糖) | Sigma | 5546 | |
| 台盼蓝 | Sigma | T8154 | |
| 血细胞计数板 | Sigma | Z359629-1EA | |
| 盖玻片 | Jena Bioscience | CSL-103 | |
| 载玻片 | Isolab | I.075.02.005 | |
| 聚-L-赖氨酸 | Sigma | P8920 | |
| 雷帕霉素类似物Torin | Tocris | 4247 | |
| 二甲基亚砜(DMSO) | Sigma | VWRSAD2650 | |
| Earle's平衡盐溶液(EBSS) | Biological Industries | BI02-010-1A | |
| 多聚甲醛(PFA) | Sigma | 15812-7 | |
| 牛血清白蛋白(BSA) | Sigma | A4503 | |
| 皂苷 | Sigma | 84510 | |
| LC3抗体 | Sigma | L7543 | |
| 抗兔IgG Alexa Fluor 568 | Invitrogen | A11011 | |
| RACK1抗体 | Santa Cruz Biotechnology | sc-17754 | |
| 抗鼠IgG Alexa Fluor 488 | Invitrogen | A11001 | |
| NP-40 | Applichem | A16694.0250 | |
| 氯化钠 | Applichem | A9242.5000 | |
| 脱氧胆酸钠 | Sigma | 30970 | |
| 十二烷基硫酸钠(SDS) | Biochemika | A2572 | |
| Trizma碱 | Sigma | T1503 | |
| Triton-X | Applichem | 4975 | |
| 正钒酸钠 | Sigma | 450243 | |
| ATG5抗体 | Sigma | A0856 | |
| 甘油 | Applichem | A4453 | |
| β-巯基乙醇 | Applichem | A1108.0250 | |
| 溴酚蓝 | Applichem | A3640.0005 | |
| 脱脂奶粉 | Applichem | A0830 | |
| 吐温20 | Sigma | P5927 | |
| 叠氮化钠 | Riedel de Haen | 13412 | |
| 酚红 | Sigma | 114537-5G | |
| 抗兔IgG,HRP标记 | Jackson Immuno. | 1110305144 | |
| 鲁米诺 | Fluka | 9253 | |
| 香豆酸 | Sigma | C9008 | |
| 过氧化氢 | Merck | K35522500604 | |
| 抗鼠IgG,HRP标记 | Jackson Immuno. | 115035003 | |
| β-肌动蛋白抗体 | Sigma | A5441 | |
| 正常兔血清 | Santa Cruz Biotechnology | sc-2027 | |
| 雷帕霉素 | Sigma | R0395 | |
| 蛋白A-琼脂糖珠 | Santa Cruz Biotechnology | sc-2001 | |
| 胎牛血清 | Biowest | S1810-500 | |
| 青霉素/链霉素溶液 | Biological Industries | 03-031-1B | |
| L-谷氨酰胺 | Biological Industries | BI03-020-1B | |
| Bradford试剂 | Sigma | 6916 | |
| 硝酸纤维素膜 | GE Healthcare | A10083108 | |
| X射线胶片 | Fujifilm | 47410 19289 | |
| 蛋白酶抑制剂 | Sigma | P8340 |
参考文献
- Oral, O., Akkoc, Y., Bayraktar, O., Gozuacik, D. Physiological and pathological significance of the molecular cross-talk between autophagy and apoptosis. Histol Histopathol. 31, 479-498 (2016).
- Korkmaz, G., Tekirdag, K. A., Ozturk, D. G., Kosar, A., Sezerman, O. U., Gozuacik, D. MIR376A is a regulator of starvation-induced autophagy. PLoS One. 8, e82556(2013).
- Itah, Z., et al. Hydrodynamic cavitation kills prostate cells and ablates benign prostatic hyperplasia tissue. Exp Biol Med (Maywood). 238, 1242-1250 (2013).
- Gozuacik, D., Kimchi, A. Autophagy as a cell death and tumor suppressor mechanism). Oncogene. 23, 2891-2906 (2004).
- Erzurumlu, Y., Kose, F. A., Gozen, O., Gozuacik, D., Toth, E. A., Ballar, P. A unique IBMPFD-related P97/VCP mutation with differential binding pattern and subcellular localization. Int J Biochem Cell Biol. 45, 773-782 (2013).
- Kuzuoglu-Ozturk, D., et al. Autophagy-related gene, TdAtg8, in wild emmer wheat plays a role in drought and osmotic stress response. Planta. 236, 1081-1092 (2012).
- Longatti, A., Tooze, S. A. Vesicular trafficking and autophagosome formation. Cell Death Differ. 16, 956-965 (2009).
- Erbil, S., et al. RACK1 Is an Interaction Partner of ATG5 and a Novel Regulator of Autophagy. J Biol Chem. 291, 16753-16765 (2016).
- Gozuacik, D., Yagci-Acar, H. F., Akkoc, Y., Kosar, A., Dogan-Ekici, A. I., Ekici, S. Anticancer use of nanoparticles as nucleic acid carriers. J Biomed Nanotechnol. 10, 1751-1783 (2014).
- Phizicky, E. M., Fields, S. Protein-protein interactions: methods for detection and analysis. Microbiol Rev. 59, 94-123 (1995).
- Uetz, P., et al. A comprehensive analysis of protein-protein interactions in Saccharomyces cerevisiae. Nature. 403, 623-627 (2000).
访问受限。请登录或开始试用以查看此内容。
重印与许可
