本方案描述了在完全化学成分明确的条件下,利用非整合型附加体质粒方法将原代羊水及羊膜间充质干细胞重编程为诱导性多能干细胞的过程。详细介绍了细胞的提取、培养、重编程以及通过严格方法对所获得的诱导性多能干细胞进行表征的实验步骤。
本文内容
摘要
摘要
随着诱导性多能干细胞的出现,自体细胞治疗向现实迈进了一步。胎儿干细胞,例如羊水和羊膜间充质干细胞,是一类独特的未分化细胞,在组织工程以及重编程为诱导性多能干细胞(iPSC)方面具有广阔前景,可用于未来的儿科干预和干细胞储存。本文所述方案介绍了一种优化的流程,可在完全化学成分明确的培养条件下,利用人重组纤连蛋白和E8培养基,分离和培养原代羊水及羊膜间充质干细胞,并从这些细胞生成附加体型诱导性多能干细胞。文中还描述了通过严格方法对新建立的细胞系进行表征,包括流式细胞术、共聚焦成像、畸胎瘤形成和转录组分析。新建立的细胞系表达胚胎干细胞标志物——Oct3/4A、Nanog、Sox2、TRA-1-60、TRA-1-81、SSEA-4,而不表达SSEA-1标志物。这些干细胞系在scid-beige小鼠体内可在6至8周内形成畸胎瘤,且畸胎瘤中包含代表三个胚层的组织。通过将全基因表达微阵列数据提交至生物信息学多能性评估算法进行转录组分析,确认所有细胞系均具有多能性,因此该方法是替代动物实验的一种理想选择。新建立的iPSC细胞系可直接用于后续实验,包括分化优化和组织工程研究。
引言
诱导性多能干细胞(iPSC)技术为细胞替代治疗、疾病与发育建模以及药物和毒理学筛选带来了潜在的应用前景1,2,3。从概念上讲,替代治疗可通过细胞注射、体外分化的组织(如心肌补片)移植,或通过组织工程引导再生来实现。羊水干细胞(AFSC)和羊膜干细胞(AMSC)是实施这些干预措施的优良细胞来源,既可直接使用4,5,6,7,也可作为重编程为多能状态的起始细胞群体8,9,10,11,12。
早期的方法使用了成分未定义的培养系统或需要将构建体整合到基因组中的重编程方法9,10,11,12。最近的一项研究采用了无异源成分的培养基,尽管使用了定义程度较低的基底膜附着基质(BMM),仍成功从羊水上皮细胞中生成了诱导多能干细胞(iPSC)。然而,该研究未包含畸胎瘤形成实验,以及其他丰富的体外和分子数据。研究发现,与新生儿成纤维细胞相比,羊水上皮细胞的重编程效率大约高出8倍13。在另一项研究中,羊水来源的间充质干细胞也被发现能够以更高的效率重编程为诱导多能干细胞12。
多能干细胞可分化为代表三个胚层的所有组织,因此具有最广泛的潜能。儿科患者可能受益于产前采集、重编程及自体羊水干细胞的组织工程,以及围产期羊膜干细胞的类似应用。此外,胎儿干细胞的分化程度相对较低(低于成体干细胞14,15),理论上可能有助于解决诱导多能干细胞(iPSC)中观察到的来源于原始细胞的表观遗传偏向性问题16。
本文介绍一种在化学成分明确且无异源成分的E8培养基中,利用附加体型质粒18,在重组纤连蛋白17(VTN)包被的培养皿上将羊水及羊膜来源干细胞重编程为多能干细胞的实验方案。羊水和羊膜细胞作为重编程细胞来源的主要优势在于其围产期前后均可获取,因此该方法主要有利于儿科组织工程领域的研究。
方案
该方案遵循机构伦理委员会关于人类研究的指导原则。已获得患者书面同意,允许将其羊水用于科研。
本方案遵循南阿拉巴马大学机构动物护理和使用委员会的政策。
1. 原代羊膜间充质干细胞的分离与培养
- 羊水细胞接种
- 由医生通过羊膜穿刺术获取至少2.5 mL的羊水样本。
注意:所有活细胞和组织的操作必须在无菌的组织培养柜中进行,并使用适当的个人防护装备。操作人员需熟悉基本的细胞培养和无菌技术。 - 制备羊水及羊膜细胞(AFMC)培养基:EBM-2基础培养基,添加15%胎牛血清(FBS)、20 ng/mL bFGF、25 ng/mL EGF、10 ng/mL IGF。在培养原代羊水细胞及羊膜干细胞时,培养基中应额外添加抗生素-抗真菌溶液。
- 第0天,将2.5 mL羊水与3.5 mL羊水间充质细胞培养基混合,接种至T25培养瓶中。于37 °C、5% CO₂条件下培养。2 至少静置 48 小时后,再检查菌落的形成情况。
- 第5天时,应可见贴壁细胞形成的克隆。轻轻摇动培养瓶,使未完全贴壁的细胞及碎片悬浮,使用巴斯德吸管抽吸弃去用过的培养基/羊水混合液。更换为5 mL新鲜AFMC培养基。
- 继续培养5天,每隔一天更换一次培养基,具体操作如步骤1.1.4所述。
- 由医生通过羊膜穿刺术获取至少2.5 mL的羊水样本。
- 从人羊膜中分离原代间充质干细胞
- 出生后应尽快获取胎盘,最迟不超过24小时,以最大限度保持细胞完整性。剪取一块9 cm2 羊膜片段,去除血凝块,并用含有抗生素-抗真菌溶液的30 mL PBS在50 mL离心管中洗涤。
- 使用手术刀在无菌的10 cm组织培养皿中将膜组织切碎成细小碎片。通过组织解离系统对膜组织进行消化并提取细胞。遵循制造商的操作说明。
注意:组织切碎后的碎片越细,消化后获得的细胞数量越多。 - 使用手术刀片将切碎的膜组织转移至一个组织解离管中,并加入4.7 mL RPMI 1640培养基混匀。加入解离酶(见 材料表).
- 将试管安装到组织解离仪上并运行程序 "h_tumor_01"在37 °C下于摇床上孵育试管30分钟。
- 用35 mL RPMI 1640进一步稀释悬液,并加入置于50 mL收集离心管上的70 µm细胞筛。
- 室温下以200 × g离心5分钟,弃上清液,将沉淀重悬于5 mL RPMI 1640培养基中,用血细胞计数板计数细胞,并以10,000个细胞/cm²的密度接种2 加入新鲜配制的AFMC培养基,该培养基已添加抗生素-抗真菌剂溶液,并接种于经组织培养处理的容器中。
注意:如果消化不完全,组织中将残留少量组织块,且单细胞数量稀少。再次离心,将整个沉淀物接种至一个T75培养瓶中。
- 原代羊水干细胞与羊膜间充质干细胞的培养
- 使用巴斯德吸管通过真空抽吸弃去AFSC/AMSC的旧培养基,向培养瓶中加入2 mL细胞解离酶。于37 °C孵育5–8分钟。
- 轻敲培养瓶以帮助细胞脱落,并加入等体积的AFMC培养基重悬细胞(此后无需再添加抗生素-抗真菌剂)。在200 g条件下离心4–5分钟。使用玻璃巴斯德吸管或直接将离心管倒置,将上清液排入废液容器中弃去。
- 轻弹离心管底部,使沉淀在残留液滴中分散成单细胞悬液,并与AFMC培养基混匀后用于接种。以每平方厘米2,500至5,000个细胞的密度接种至T形培养瓶中。2.
- 每隔一天更换一次培养基。细胞系培养不应超过第6代。出于重编程目的,应尽可能使用较低代次的细胞。
- 使用冻存培养基制备羊水来源干细胞(AFSC)和羊膜间充质干细胞(AMSC)的冻存样本作为备份。采用细胞解离酶收获细胞,于4 °C、200 g离心5 min。
- 使用巴斯德吸管移除上清液,轻弹管底以使沉淀中的细胞分散成单细胞悬液。用完全冻存液重悬细胞,密度为1×10⁶/mL,分装至冻存管中。于-80 °C 冻存容器中过夜,随后转移至液氮中长期保存。
2. 重编程为多能性
- 获取重编程质粒
- 通过非营利性质粒库购买重编程质粒。需要签订材料转移协议。
- 将质粒转化至 大肠杆菌 使用感受态细胞并利用商业质粒提取试剂盒提取质粒,具体操作按照生产商说明书进行。
- 使用分光光度计测定质粒DNA的浓度。应获得较高的质粒浓度,理想浓度约为1 µg/µL,以避免转染过程中样品被稀释。
- 使用紫外分光光度计测定各质粒的浓度,并分别进行分装。
- 将3 µg、3 µg和2 µg的EN2K、ET2K和M2L质粒分别混合,即为重编程质粒溶液。该质粒溶液的量足以转染1 x 10⁶个细胞。6 细胞。准备若干份此类分装样品。
- 所有等分试样均储存于 -80 °C。
- 准备目标培养板
- 用玻连蛋白包被一个6孔板——向每孔中加入1 mL玻连蛋白稀释缓冲液,并加入40 µL VTN储存液(1 µg/cm²)混合2。室温(RT)或37 °C培养箱中孵育1小时。
- 使用巴斯德吸管抽真空除去溶液,每孔加入2 mL AFMC培养基。将细胞置于37 °C保存,直至进行接种。
注意:此步骤中使用的AFMC培养基不应含有任何抗生素或抗真菌溶液。
- 收获培养的原代羊水干细胞/羊膜间充质干细胞
注意:在培养中充分扩增羊水来源的干细胞/羊膜来源的干细胞(AFSC/AMSC),以制备低传代次数的冻存细胞株,并专门使用一个T-75培养瓶用于重编程实验。由于实验仅需低至100,000个细胞,建议收获约500,000个细胞,以弥补细胞损失,并为转染参数优化或不同培养条件的测试预留余量。- 在低代次时尽早收获羊膜间充质干细胞(AFSC/AMSC),使用步骤1.3.1至1.3.2中所述的细胞解离酶混合液进行操作。细胞经离心后,继续进行下一步。
- 将沉淀重悬于1 mL PBS中,充分混匀以洗涤血清成分。使用血细胞计数板对细胞进行计数。用PBS调节细胞密度至100,000/mL,并分装至1.5 mL微量离心管中。此步骤可确保细胞与用于转染的缓冲液之间的接触时间最短。
- 将微量离心管置于5 mL聚苯乙烯管上(作为适配器,可用于常规摆动转子离心),在室温下以200 × g离心4分钟。倒置离心管,将上清液弃入废液容器中。请勿使用固定角度转子。
- 在室温下以200 × g离心3分钟。此步骤可使管壁上残留的液体聚集至管底。使用200 µL移液器小心吸除全部液体。
- 转染重编程质粒
- 用于重编程实验的转染系统(参见 材料表) 将用于将重编程质粒导入细胞。将转染枪头、转染管、重悬缓冲液和电转缓冲液放入组织培养柜中。试剂盒中的试剂在未开封前保存于室温,开封后应储存于 4 °C。
注意:我们使用该试剂盒的10 µL规格版本。 - 将转染装置移近,使其管架可直接放入生物安全柜内。取一支转染管,加入3 mL电转缓冲液,并将该管完全推入管架的插槽中固定。
- 取出在步骤2.1.5中制备的重编程质粒溶液分装样品,从-80 °C保存条件下取出,在培养柜中室温下解冻。
- 在转染设备上选择以下转染参数:950 V、40 ms、1次脉冲。
- 将含有100,000个细胞的沉淀重悬于10 µL重悬缓冲液中。自此步骤起需快速操作,因为重悬缓冲液具有轻微毒性,延长暴露时间会导致细胞活力显著下降。
- 加入重编程质粒溶液的1/10量(该溶液分装量为总共1 × 10)6 细胞。
- 将转染枪头安装到转染移液器上。
- 小心地将细胞悬液吸入转染吸头中,避免产生气泡。如果观察到气泡,应排出悬液并重新吸入。气泡会阻碍转染。
- 将转染移液管插入转染管中并按压 "开始" 点击转染设备屏幕上的按钮。等待屏幕显示转染成功的提示信息,然后立即从试管中移开移液器。
- 将悬液转移至第2.2节中准备好的目标6孔板的1个孔中。吸取邻近孔中的培养基混合后,将悬液均分至这两个孔中(最终细胞密度为50,000/孔)。
- 对所有分别含有AFSC/AMSC的微量离心管重复转染操作。将培养板置于37 °C、5% CO₂的培养箱中培养。2.
- 用于重编程实验的转染系统(参见 材料表) 将用于将重编程质粒导入细胞。将转染枪头、转染管、重悬缓冲液和电转缓冲液放入组织培养柜中。试剂盒中的试剂在未开封前保存于室温,开封后应储存于 4 °C。
- 转染的AFSC/AMSC培养
- 将转染的细胞培养2-5天。然后在第3天更换为重编程培养基,即在E8培养基中添加100 µM丁酸钠。
注意:可进行二次传代以避免原始AFSC/AMSC过度生长。然而,如果需要准确计算重编程效率,则传代将导致无法正确评估该参数。 - 每10天更换一次重编程培养基,之后从第10天起每天更换培养基。
- 将转染的细胞培养2-5天。然后在第3天更换为重编程培养基,即在E8培养基中添加100 µM丁酸钠。
- 手动挑选完全重编程的克隆集落用于单克隆扩增
- 完全重编程的克隆大约在第14天出现。让克隆继续生长并变得更加致密紧凑,最早可在第15至16天进行人工挑选并转移至新的培养板中。
- 在挑取操作前1小时,每孔加入8 µL VTN和300 µL玻连蛋白稀释缓冲液,对24孔板进行包被(1 µg/cm²)2)在室温或 37 °C 下孵育。用不含丁酸钠的 E8 培养基替换溶液。
- 在无菌培养柜中挑选尺寸足够大的菌落(理想情况下直径超过400 µm)。可使用相差显微镜或体视显微镜。
- 用于挑选时,将在柜内使用带有液晶显示屏的成像显微镜,因其显示器无需目镜即可观察。用70%乙醇对显微镜载物台进行消毒。
- 使用常规相差细胞培养显微镜,选择、标记并记录待挑选的菌落数量。此步骤至关重要,可确保在实际挑取过程中避免浪费时间。
- 准备与待挑取菌落数量相等或更多的PCR管,每管中加入30 µL含0.5 mM乙二胺四乙酸(EDTA)的PBS溶液。菌落将被放入这些PCR管中,在铺板前进行部分解离。
- 计划使用设定为2 µL的10 µL移液器,每次从平板上挑取5个菌落。将移液器吸头以倾斜角度置于菌落边缘,小心并逐步地将整个菌落从表面刮下。立即吸入整个菌落至移液器吸头中,并转移至含有EDTA的预置PCR管中。
- 对剩余的4个菌落重复上述步骤。室温孵育4–6分钟。
- 使用较大的移液枪头轻轻吹打悬液,将菌落分散成较小的团块。避免制成单细胞悬液。
- 将悬液直接接种至第2.6.2步中准备好的24孔板的目标孔中。对剩余的菌落重复此操作。
- 如果需要挑取超过5个菌落,则重复步骤2.6.6至2.6.10,但每次不得挑取超过5个菌落。在37 °C和5% CO₂条件下培养2.
- iPSC的克隆扩增与成熟
- 让菌落生长并变得致密,3–6 天即可。每天更换培养基,根据细胞密度使用 400 µL 至 1 mL 的 E8 培养基。
- 将24孔板中集落密度足够的孔扩增至6孔板中。传代前1小时,用VTN包被6孔板(同步骤2.2.1)。随后每孔更换为2 mL E8培养基。
- 用1 mL移液枪从源孔中吸出废弃培养基,加入300 µL 0.5 mM EDTA进行洗涤。立即用同一枪头吸出液体,再次加入300 µL 0.5 mM EDTA,室温孵育5分钟。最后用1 mL移液枪吸净所有液体。
- 将1 mL移液器调至最大容量,装上1 mL宽口吸头,从目标孔中吸取E8培养基至吸头内。用该培养基的液流冲洗原iPSC培养物。
- 将悬液转移至目标孔中,用移液器上下吹打数次,使菌落分散成含有20–50个细胞的团块。通过轻轻摇动和晃动培养板,确保细胞均匀分布,并在37 °C、5% CO₂条件下培养。2.
- 每天更换培养基,每3至4天传代一次。可在相差显微镜下标记出现分化的克隆,并在超净台内用移液器吸头将其移除。该操作可实现高质量纯iPSC培养物的选择性扩增。
- 传代前1小时,按照步骤2.2.1用VTN包被6孔板的各孔,然后每孔加入2 ml E8培养基替换原有溶液。
- 常规传代与使用0.5 mM EDTA进行的初次传代相似(步骤2.7.2至2.7.5)。将6孔板中一个孔内的用过的培养基替换为1 mL EDTA溶液,洗涤后弃去。
- 加入1 mL EDTA,在室温下孵育5–7分钟,以实现部分解离。如有必要,可优化孵育时间,确保形成含有约20至50个细胞的细胞团悬液。避免解离为单细胞。
- 弃去EDTA溶液,使用1 mL移液器从目标孔中吸取1 mL E8培养基至宽口移液吸头中。
- 用E8培养基反复冲洗原iPSC培养物,直至有适量细胞从表面脱落,并转移至目标孔中。该部分代表了传代比例(例如,可将1/8的培养物转移,以实现1:8的比例。
- 每3-4天传代一次。在将iPSC细胞系用于后续实验之前,需至少连续培养15代以使其充分成熟。
3. 多能性的表征与确认
注意:有关流式细胞术和共聚焦显微镜的详细信息,请参见补充文件。
- 畸胎瘤形成实验
- 为通过畸胎瘤形成实验评估iPSC分化为三胚层代表性组织的能力,请遵循机构关于动物护理与使用的相关政策,并提前规划,预留足够时间提交相应的实验方案文件。小鼠体内的畸胎瘤形成过程通常需要6至10周。
- 每种iPSC细胞系在6孔板中培养4个孔,持续4天。注射至小鼠单侧 flank 的细胞数量约为0.5至1 × 10⁶个细胞。可选:可额外设置一个孔,使用细胞解离酶将细胞完全解离为单细胞后进行计数,以获得代表性孔内细胞数量。
- 计算E8/BMM混合液的体积,用于悬浮iPSC细胞团:每只小鼠双侧 flank 均需注射,每侧注射150 µL细胞团悬液。测试一种iPSC细胞系的畸胎瘤形成能力需使用3只小鼠。为补偿针管死体积,最终总体积中需额外增加每针150 µL。每只小鼠使用1支注射针。因此总所需体积为 3 × (150 µL × 2 + 150 µL) = 1350 µL。
- 使用EDTA对iPSC集落进行部分解离,操作方式如同传代处理,具体步骤参见2.7.8至2.7.10。关键在于将集落解离为细胞团,而非完全分散为单细胞。
- 使用宽口吸头,以675 µL E8培养基(即步骤3.3.3计算体积的一半)冲洗并收集iPSC集落。将细胞团悬液转移至5 mL聚苯乙烯管中,并置于冰上保存。
- 加入675 µL BMM,混匀。将最终悬液置于冰上,直至进行注射。
- 使用异氟烷麻醉小鼠以实现固定。该操作应由动物房专业人员执行或指导。
- 短暂涡旋5 mL聚苯乙烯管,随后用一支配备22 G针头的胰岛素注射器吸取细胞团悬液(每只小鼠450 µL),皮下注射150 µL细胞悬液。此体积中约含1 × 10⁶个细胞(见步骤3.1.2)。
- 每种iPSC细胞系注射3只小鼠。所有操作均应遵循标准的动物护理规范。
- 每日监测小鼠健康状况。
- 当畸胎瘤直径达到1.5至2 cm的终点尺寸时,实施安乐死,取出畸胎瘤,并将其置于福尔马林溶液中固定24小时。
- 将固定的畸胎瘤送至组织学核心平台进行苏木精-伊红(H&E)染色。由病理学家评估是否存在三胚层来源的组织。
核型分析备注:活体iPSC培养物应寄送至专业细胞遗传学实验室进行核型完整性检测。建议每传代5次进行一次该检测。
- 转录谱分析
- 在6孔板中培养2个孔,持续3至4天,以获得一份RNA样本。仅使用高质量的培养物;若存在少量分化细胞污染,可用移液器吸头刮除。
- 使用市售试剂盒按照制造商说明书从iPSC培养物中提取RNA。将样本寄送至专业基因组学核心平台。
- 通过微阵列(参见材料表中的推荐选项)或RNA测序,获取iPSC细胞系的全基因组转录谱。
- 通过科瑞尔研究所(Coriell Institute)的在线平台提交"*.idat"文件,进行多能性生物信息学评估。或者,通过约翰斯·霍普金斯大学(Johns Hopkins University)的在线平台提交"*.cel"文件,进行细胞类型(包括多能干细胞)的生物信息学鉴定。有关各生物信息学分析所接受的数据类型详情,请参见材料表。
结果
在采集羊水用于遗传学检测并留取少量液体用于研究之前,已从患者处获得知情书面同意。由于胎盘属于医疗废弃物,因此使用羊膜进行研究无需额外获取同意。羊水和羊膜来源的干细胞具有典型的间充质特性,形态学上表现为梭形、相位明亮的细胞。在重编程过程中,这些细胞会发生间充质-上皮转化(MET),获得类似铺路石的形态以及具有明确空间排列的克隆集落,表明其具备上皮细胞特性。该过程在导入重编程附加体质粒后48–72小时即可启动。若在重编程第5天仍未观察到此类集落,则提示实验失败。MET集落中的细胞持续增殖,导致集落在第5至14天之间逐渐变得致密。致密的MET集落由难以单独分辨的细胞组成(图1A)。大约在第14天,完全重编程的集落出现,细胞呈单层排列,具有明显且易于识别的细胞核和核仁。当集落生长至适当大小并变得致密时,即可进行机械分离和扩增(图1B)。
在整个重编程过程中,培养物中均存在完全重编程和部分重编程的克隆,但部分重编程的克隆不一定能获得完全的多能性。图2展示了完全多能性和部分多能性克隆中胚胎干细胞(ESC)标志物表达的代表性流式细胞术分析及其相应的形态学特征。完全多能性与Oct4、Nanog、Sox2、TRA抗原和SSEA-4的表达相关,而SSEA-1表达为阴性19,20,21(图2A)。然而,部分多能性细胞不表达Nanog和TRA抗原20(图2B)。ESC标志物的表达与定位应通过免疫细胞化学染色进行验证,并使用宽场或共聚焦显微镜成像(图3)。
通过将诱导多能干细胞(iPSC)系皮下注射到scid-beige小鼠体内,观察其是否形成畸胎瘤,可实现对多能性的功能验证。畸胎瘤通常需要6-8周时间达到终点大小。随后对组织进行苏木精-伊红(H&E)染色,并由病理学家检查,以确认存在代表三个胚层——内胚层、神经外胚层和中胚层的组织(图4A)。替代动物实验的方法是通过cDNA微阵列等基因组学手段分析与多能性相关的转录特征22,23。随后可通过在线生物信息学多能性评估软件,以两个分类器(多能性和新颖性)的图示形式,量化待测细胞系转录谱与一组已确立的iPSC和ESC细胞系转录谱的重叠程度(图4B)。多能性评分越高,表明该待测iPSC系与已确立的细胞系越相似。然而,即使多能性评分较高,较高的新颖性评分仍可能提示存在偏差或染色体异常(例如畸胎癌细胞系)22。按照本方案所生成的所有iPSC细胞系,均已通过流式细胞术、成像、畸胎瘤形成及转录分析等方法被确认具有多能性。
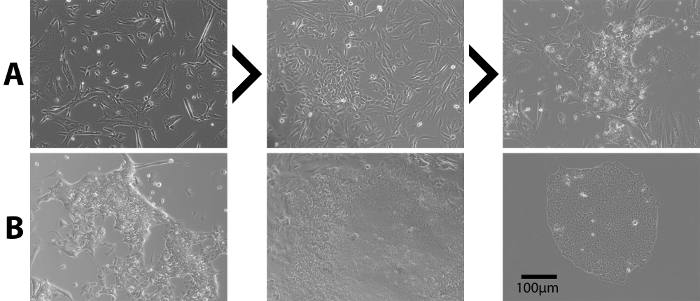
图1:重编程过程中细胞的形态学进展。 (A) 羊水和羊膜来源的干细胞作为重编程的起始细胞,表现出典型的间充质形态,细长且折光性强(左图),随后经历间充质-上皮转化(MET),获得上皮特性,并形成由铺路石样细胞组成的克隆集落(中图)。这些集落进一步增殖,形成不规则的MET细胞团块(右图)。(B) 在重编程的后期阶段(约从第14天开始),完全重编程的细胞集落开始出现——这些细胞可单独分辨,核和核仁明显,呈单层排列,边界清晰(中图),并与数量更多的MET集落共存(左图)。右图为一个完全重编程的独立成熟克隆。比例尺 = 100 µm 请点击此处查看该图的放大版本。
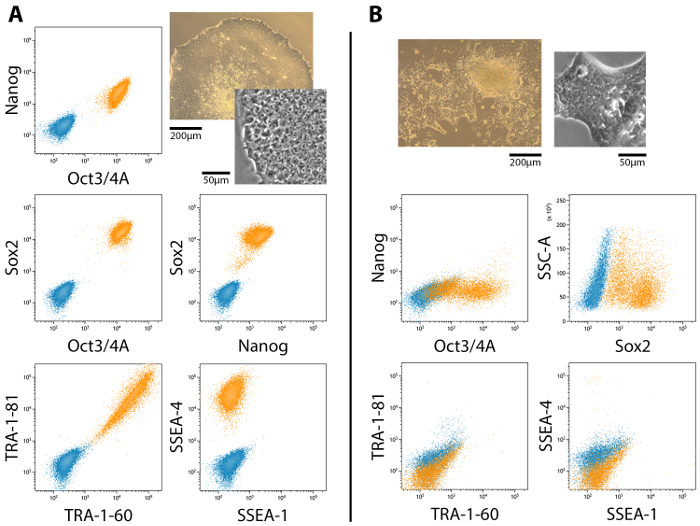
图2:完全重编程及部分重编程(MET)细胞集落中胚胎干细胞标志物表达的流式细胞术分析。 (A) 多能性表达谱显示Oct4、Nanog、Sox2、TRA-1-60、TRA-1-81和SSEA-4呈阳性,而SSEA-1呈阴性。 (B) 部分多能性细胞集落——即已完成MET但未能进一步发育至完全多能状态的细胞集落——表达Oct4和Sox2,但Nanog以及TRA和SSEA抗原均不表达。图中同时展示了相应的细胞形态,以便并列比较。比例尺 = 200 µm 和 50 µm。 请点击此处查看该图的放大版本。
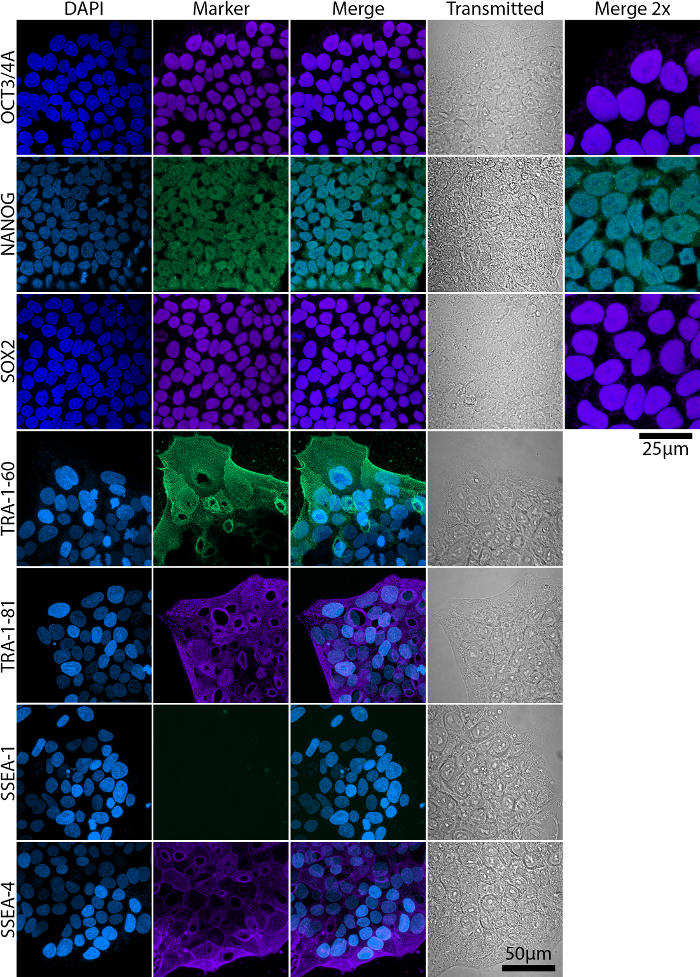
图3:成熟羊水诱导多能干细胞中胚胎干细胞标志物表达的共聚焦成像分析。 转录因子Oct3/4A、Nanog和Sox2定位于细胞核内,而TRA和SSEA抗原为定位于细胞膜上的糖蛋白。比例尺 = 50 µm。对于Oct3/4、Nanog和Sox2,额外提供了更高倍数的图像(Merge 2X),以便更清晰地观察其核内定位。比例尺 = 25 µm。透射光图像——在透射光下获取的图像。请点击此处查看该图的放大版本。
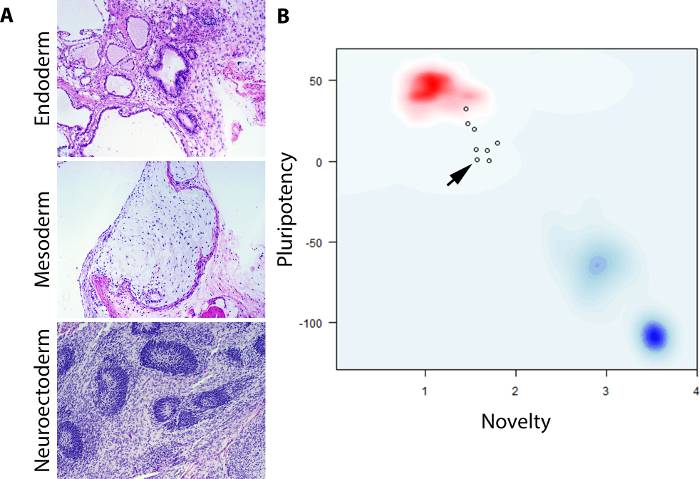
图 4:成熟羊水和羊膜来源iPSC的畸胎瘤形成及转录谱分析。 (A) 在scid-beige小鼠皮下生长的畸胎瘤包含代表三个胚层的组织(100倍放大)。(B) 将全基因组表达微阵列谱数据提交至在线多能性分析软件后,得到两个分类指标——多能性和新颖性——的分布图。高多能性评分和低新颖性评分(红色云团)表明典型的ESC/iPSC细胞系表达谱。蓝色云团代表已分化细胞的聚类区域,浅蓝色云团代表部分多能细胞的聚类区域。羊水来源(3株)和羊膜来源(4株)的iPSC在该检测中被判定为具有多能性。实验中纳入ESC系WA25作为对照,以黑色箭头标示。请点击此处查看该图的放大版本。
讨论
从胎儿干细胞生成诱导多能干细胞(iPSC)的初始阶段包括从胎儿组织中提取来源细胞,进行培养、扩增,并导入附加体型重编程质粒。此阶段之后是约14至18天的培养期,随后才能扩增出首批完全重编程的细胞集落。最后阶段为iPSC克隆的成熟。羊膜来源干细胞的初始提取采用机械法与酶消化法相结合的方式处理羊膜组织。我们发现,30分钟的孵育时间可获得最高数量且活力最佳的细胞。消化过程可能产生少量组织碎片和细胞团块。如果这些组织碎片和细胞团块相对于单个细胞的比例较高,我们建议将所有团块和单个细胞共同接种至一个培养容器中,因为二者均能促进贴壁细胞的生长。羊水来源干细胞的接种操作较为简便,仅需将细胞与培养基混合后孵育,直至贴壁细胞集落达到足够大小即可。常规经组织培养处理的塑料器皿完全适用,我们不推荐使用特殊表面处理的器皿(即使其设计旨在优化原代细胞培养),因为在使用此类器皿时,我们观察到细胞活力较低,并在传代过程中出现困难。
羊水和羊膜干细胞应进行扩增并冻存,但只要条件允许,可尽早用作重编程的细胞来源。为将附加体型质粒导入细胞,本实验采用的转染系统在设定为950 V、40 ms、1次脉冲的参数条件下表现良好,所有尝试的细胞系均成功实现了重编程(超过10个细胞系)。相比之下,基于类似原理的另一种主要递送系统在我们实验中未能成功实现重编程。
转染后的细胞在AFMC培养基中接种于包被了玻璃粘连蛋白(vitronectin)的培养皿上,培养前3-5天,随后更换为添加了100 µM丁酸钠的E8培养基。这显著提高了完全多能性获得的速率。形态学转变的最早迹象可在48-72小时时观察到。来源细胞经历上皮-间质转化逆过程(MET),出现具有上皮样形态的细胞克隆。这些克隆逐渐增殖并变得致密。其中一部分克隆将获得完全多能干细胞的形态特征——细胞界限清晰可辨,细胞核和核仁明显,形成边界清晰的扁平克隆,与部分多能性的MET克隆所呈现的模糊边界形成对比。当细胞获得完全多能性的时刻,致密的MET细胞克隆将出现明显的细胞核,单个细胞变得可分辨,并形成独特的形态模式。对于有经验的研究者而言,这种形态模式是重编程成功的明确标志。然而,对于缺乏多能干细胞(PSC)培养经验的研究人员来说,准确识别已成功进展至完全多能性的克隆需要仔细评估,因为MET克隆与诱导多能干细胞(iPSC)克隆可能被误认。图1和图2提供了两者的示例。如果错误挑选了MET克隆,通过详尽的流式细胞术分析将揭示这一错误,特别是TRA-1-60和TRA-1-81抗原很可能缺失,如图2所示。事实上,TRA抗原此前已被证实为严格的多能性标志物。然而,部分多能性的MET细胞在癌症研究中可能具有特定的研究价值25。
这种培养条件对于原始的AFSC/AMSC而言并非最适条件,最终其增殖速度将减慢,并逐渐呈现扁平、成纤维细胞样的形态。原始细胞形成的组织可能在重编程后期从培养表面脱落,但这一现象并不会对重编程过程产生负面影响。相反,该过程有时有助于释放空间,促进重编程后多能性集落的生长,同时清除未重编程的非目标细胞成分。脱落的组织可通过无菌移液器吸头轻松去除,留下部分及完全重编程的多能性集落,从而极大简化后续的手动筛选步骤。
对于完全重编程克隆的手动挑选,我们使用一种可放置于安全柜内的LCD成像系统,该系统无任何突出部件,不会干扰气流。除该成像系统外,无需其他特殊设备,因为挑选操作本身可使用常规移液器完成。挑取的克隆在接种至目标孔中培养为单克隆前,需在EDTA/PBS溶液中进行部分解离。根据细胞系和克隆的不同,在连续传代过程中,培养物可能受到自发分化细胞的污染。通常通过人工操作和连续传代可消除此问题。对于分化严重的克隆应予以弃用,但珍贵的克隆可通过反复手动挑选多能性克隆(而非仅清除分化细胞)在不同程度上挽救。研究表明,附加体型质粒大约需要15次传代才能完全从iPSC中丢失26。因此,建议在将克隆用于后续实验和分析之前,至少培养至该传代次数,仅常规监测TRA抗原表达和核型分析除外。TRA抗原表达可通过本方案所述的流式细胞术轻松检测,因为该检测仅需约200,000个细胞,研究人员在怀疑培养的克隆是否维持正常多能性时可随时进行。然而,胚胎干细胞标志物表达的流式细胞术分析被认为不足以确认候选细胞系的多能性19。
畸胎瘤形成实验是标准的、决定性的多能性检测方法27。在化学成分明确且无异源成分条件下培养的多能干细胞(PSC)特别容易因解离而发生死亡,因此,以细胞团块形式皮下注射对于其成功植入至关重要8,28。注射后,通常4至6周即可观察到异源移植物的生长,且在第8周前可全部收获,进行苏木精-伊红(H&E)染色并分析。由于该实验涉及动物福利、成本较高以及需要较长的测试周期,因此推动了替代方法的开发。基因组分析结合先进的、基于机器学习的生物信息学方法,可对全局表达谱进行准确评估。获取此类数据的成本与畸胎瘤形成实验相当,但基因组学方法显著更快,且无需使用动物。其中一种检测方法是生物信息学多能性评估软件22,其以在线界面形式实现(材料表)。随着RNA测序技术日益普及且成本急剧下降,该方法的应用将持续发展。约翰斯·霍普金斯大学提供了一种类似的多能性分析软件23(cellnet.hms.harvard.edu),其基于相似的方法,能够接收微阵列数据以分析人类样本的转录组。该软件的优势在于不仅能识别多能干细胞,还能识别已分化的细胞;并且由于其经过审编的数据集来源于原代组织,因此可确定体外(in-vitro)培养的细胞/组织与体内(in-vivo)组织之间的相似程度,从而为分化方案的开发或组织工程提供优良的质量控制。该检测可将查询样本分类为20种不同的细胞或组织类型。目前该软件需使用微阵列数据,但作者正在努力扩展平台功能,以支持RNA测序数据。
通过遵循本方案,研究人员能够在完全化学成分明确且无异源成分的培养基中,利用非整合性重编程方法,从羊水和羊膜干细胞高效地生成诱导多能干细胞系。这些细胞系可用于基础研究,以优化分化方案,并最终应用于疾病建模、药物筛选或儿科组织工程研究。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作得到了苏黎世大学医学研究基金会、苏黎世大学研究信贷、SCIEX NMSCh(资助编号 10.216 和 12.176)、瑞士心脏病学会、瑞士国家科学基金会(资助编号 [320030-122273] 和 [310030-143992])、第七框架计划 Life Valve、欧洲委员会(资助编号 [242008])、Olga Mayenfisch 基金会、EMDO 基金会、苏黎世大学医院 2012 年启动资助以及 Mitchell 癌症研究所内部资金的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 人肿瘤解离试剂盒 | Miltenyi Biotec | 130-095-929 | 组织解离系统,试剂盒,包含组织解离管和组织解离酶 |
| gentleMACS 解离仪 | Miltenyi Biotec | 130-093-235 | 组织解离系统,解离装置 |
| Thermo Scientific™ Shandon™ 一次性手术刀 No. 10,无菌,独立包装,5.75 (14.6cm) | Thermo-Fisher | 3120032 | |
| 70 µm 细胞滤筛 | Corning | 10054-456 | |
| RPMI 1640 培养基 | Thermo-Fisher | 32404014 | |
| 摇床平台 | VWR | 40000-300 | |
| 50 ml 离心管 | Thermo-Fisher | 339652 | |
| 15 ml 离心管 | Thermo-Fisher | 339650 | |
| EBM-2 基础培养基 | Lonza | CC-3156 | AFMC 培养基的基础培养基 |
| 人 FGF 2(在大肠杆菌中表达,非糖基化) | Prospec Bio | CYT-218 | bFGF,AFMC 培养基的添加剂 |
| 人 EGF,Pichia 表达 | Prospec Bio | CYT-332 | EGF,AFMC 培养基的添加剂 |
| LR3 胰岛素样生长因子-1 人重组蛋白 | Prospec Bio | CYT-022 | IGF,AFMC 培养基的添加剂 |
| 胎牛血清,胚胎干细胞级别 | Thermo-Fisher | 10439024 | FBS |
| 抗生素-抗真菌剂(100X) | Thermo-Fisher | 15240062 | 用于原代 AFSC/AMSC,常规 AFSC/AMSC 培养中无需添加,转染细胞培养中禁用! |
| Accutase 细胞解离液 | StemCell Technologies | 07920 | 细胞解离酶 |
| CryoStor™ CS10 | StemCell Technologies | 07930 | 完整冻存培养基 |
| PBS,pH 7.4 | Thermo-Fisher Scientific | 10010023 | |
| EndoFree 质粒大提试剂盒(10) | Qiagen | 12362 | 用于质粒提取 |
| pEP4 E02S EN2K | Addgene | 20925 | EN2K,重编程因子 Oct4+Sox2,Nanog+Klf4 |
| pEP4 E02S ET2K | Addgene | 20927 | ET2K,重编程因子 Oct4+Sox2,SV40LT+Klf4 |
| pCEP4-M2L | Addgene | 20926 | M2L,重编程因子 c-Myc+LIN28 |
| NanoDrop 2000c 紫外-可见分光光度计 | Thermo-Fisher | ND-2000C | 分光光度计 |
| Neon® 转染系统 | Thermo-Fisher | MPK5000 | 转染系统,组件: Neon 移液器 - 转染移液器 Neon 设备 - 转染设备 |
| Neon® 转染系统 10 µL 套装 | Thermo-Fisher | MPK1025 | Neon 转染系统的耗材套装,包含: Neon 尖端 - 转染尖端 Neon 管 - 转染管 缓冲液 R - 重悬缓冲液 缓冲液 E - 电解缓冲液 |
| Stemolecule™ 丁酸钠 | StemGent | 04-0005 | 重编程增强小分子 |
| TeSR-E8 | StemCell Technologies | 05940 | E8 培养基 |
| Vitronectin XF™ | StemCell Technologies | 07180 | VTN,储存浓度 250 µg/ml,使用时以 Vitronectin 稀释缓冲液(CellAdhere)稀释至 1 µg/cm2 |
| CellAdhere™ 稀释缓冲液 | StemCell Technologies | 07183 | vitronectin 稀释缓冲液 |
| UltraPure™ 0.5M EDTA,pH 8.0 | Thermo-Fisher | 15575020 | 使用前用 PBS 稀释至 0.5 mM |
| EVOS® FL 成像系统 | Thermo-Fisher Scientific | AMF4300 | LCD 成像显微镜系统 |
| CKX53 倒置显微镜 | Olympus | 相差细胞培养显微镜 | |
| Pierce™ 16% 甲醛(w/v),无甲醇 | Thermo-Fisher | 28908 | 使用前用 PBS 稀释至 4%,稀释后可在 2-8 °C 保存 1 周 |
| Perm Buffer III | BD Biosciences | 558050 | 通透化缓冲液,使用前冷却至 -20 °C |
| 小鼠 IgG1,κ 同型对照,Alexa Fluor® 488 | BD Biosciences | 557782 | Oct3/4A、Nanog 的同型对照 |
| 小鼠 IgG1,κ 同型对照,Alexa Fluor® 647 | BD Biosciences | 557783 | Sox2 的同型对照 |
| 小鼠抗人 Oct3/4(人亚型 A),Alexa Fluor® 488 | BD Biosciences | 561628 | |
| 小鼠抗人 Nanog,Alexa Fluor® 488 | BD Biosciences | 560791 | |
| 小鼠抗人 Sox-2,Alexa Fluor® 647 | BD Biosciences | 562139 | |
| 小鼠 IgGM,κ 同型对照,Alexa Fluor® 488 | BD Biosciences | 401617 | TRA-1-60 的同型对照 |
| 小鼠 IgGM,κ 同型对照,Alexa Fluor® 647 | BD Biosciences | 401618 | TRA-1-81 的同型对照 |
| 小鼠抗人 TRA-1-60,Alexa Fluor® 488 | BD Biosciences | 330613 | |
| 小鼠抗人 TRA-1-81,Alexa Fluor® 647 | BD Biosciences | 330705 | |
| 小鼠 IgG1,κ 同型对照,Alexa Fluor® 488 | BD Biosciences | 400129 | SSEA-1 的同型对照 |
| 小鼠 IgG3,κ 同型对照,Alexa Fluor® 647 | BD Biosciences | 401321 | SSEA-4 的同型对照 |
| 小鼠抗人 SSEA-1,Alexa Fluor® 488 | BD Biosciences | 323010 | |
| 小鼠抗人 SSEA-4,Alexa Fluor® 647 | BD Biosciences | 330407 | |
| Affinipure F(ab')2 片段山羊抗小鼠 IgG+IgM,Alexa Fluor® 488 | Jackson Immunoresearch | 115-606-068 | 使用稀释度为 1:600 或进一步优化 |
| Affinipure F(ab')2 片段山羊抗小鼠 IgG+IgM,Alexa Fluor® 647 | Jackson Immunoresearch | 115-546-068 | 使用稀释度为 1:600 或进一步优化 |
| DAPI | Thermo-Fisher Scientific | D21490 | 储存液 10 mM,工作液进一步稀释至 1:12,000 |
| Corning® Matrigel® 生长因子减少型,无酚红 | Corning | 356231 | 基底膜基质(BMM) |
| scid-beige 小鼠,雌性 | Taconic | CBSCBG-F | |
| RNeasy Plus Mini 试剂盒(50) | Qiagen | 74134 | RNA 提取试剂盒 |
| T-25 培养瓶,组织培养处理 | Thermo-Fisher | 156367 | |
| T-75 培养瓶,组织培养处理 | Thermo-Fisher | 156499 | |
| Nunc™ 组织培养皿 | Thermo-Fisher | 12-567-650 | 10 cm 组织培养皿 |
| 6 孔板,组织培养处理 | Thermo-Fisher | 140675 | |
| Neubauer 计数室(血细胞计数板) | VWR | 15170-173 | |
| Mr. Frosty™ 冻存容器 | Thermo-Fisher | 5100-0001 | 冻存容器 |
| FACS 管,圆底聚苯乙烯试管,5 ml | Corning | 352058 | 5 ml 聚苯乙烯管 |
| Eppendorf 管,1.5 ml | Thermo-Fisher | 05-402-96 | 1.5 ml 微量离心管 |
| PCR 管,200 µl | Thermo-Fisher | 14-222-262 | |
| 移液器吸头,100 至 1250 µl | Thermo-Fisher | 02-707-407 | 窄口 1 mL 吸头 |
| 移液器吸头,5 至 300 µl | Thermo-Fisher | 02-707-410 | |
| 移液器吸头,0.1 至 10 µl | Thermo-Fisher | 02-707-437 | |
| 宽口移液器吸头,1000 µl | VWR | 89049-166 | 宽口 1 mL 吸头 |
| 玻璃巴斯德吸管 | Thermo-Fisher | 13-678-20A | |
| 乙醇,200 证明 | Thermo-Fisher | 04-355-451 | |
| 涡旋混合器 | VWR | 10153-842 | |
| 腔室盖玻片,8 孔,1.5 mm 硼硅酸盐玻璃 | Thermo-Fisher | 155409 | 玻璃底共聚焦级培养器皿 |
| 22G 针头 | VWR | 82002-366 | |
| 胰岛素注射器 | Thermo-Fisher | 22-253-260 | |
| 中性缓冲福尔马林溶液,10% | Sigma-Aldrich | HT501128-4L | 移植瘤的固定 |
| Illumina HT-12 v4 表达微阵列芯片 | Illumina | BD-103-0204 | 表达微阵列,由 PluriTest 支持,制造商已停产 |
| PrimeView 人类基因组 U219 微阵列板 | Thermo-Fisher | 901605 | 表达微阵列(原 Affymetrix 品牌),即将由 PluriTest 支持 |
| GeneChip™ 人类基因组 U133 Plus 2.0 微阵列 | Thermo-Fisher | 902482 | 表达微阵列(原 Affymetrix 品牌),由 CellNet 支持,即将由 PluriTest 支持 |
| PluriTest® | Coriell 研究所 | www.pluritest.org,用于多能性生物信息学评估的免费服务,接受微阵列数据 - HT-12 v4 平台的 *.idat 文件,即将支持 U133、U219 微阵列和 RNA 测序数据 | |
| CellNet | 约翰·霍普金斯大学 | cellnet.hms.harvard.edu,用于细胞类型生物信息学鉴定的免费服务,包括多能干细胞,基于 U133 微阵列数据 - *.cel 文件,即将支持 RNA 测序数据 |
参考文献
- Takahashi, K., Yamanaka, S. Induction of pluripotent stem cells from mouse embryonic and adult fibroblast cultures by defined factors. Cell. 126 (4), 663-676 (2006).
- Yu, J., et al. Induced Pluripotent Stem Cell Lines Derived from Human Somatic Cells. Science. 318 (5858), 1917-1920 (2007).
- Trounson, A., DeWitt, N. D. Pluripotent stem cells progressing to the clinic. Nat. Rev. Mol. Cell Biol. 17 (3), 194-200 (2016).
- Schmidt, D., et al. Prenatally fabricated autologous human living heart valves based on amniotic fluid derived progenitor cells as single cell source. Circulation. 116 (11 Suppl), I64-I70 (2007).
- Weber, B., Zeisberger, S. M., Hoerstrup, S. P. Prenatally harvested cells for cardiovascular tissue engineering: Fabrication of autologous implants prior to birth. Placenta. 32, S316-S319 (2011).
- Weber, B., et al. Prenatally engineered autologous amniotic fluid stem cell-based heart valves in the fetal circulation. Biomaterials. 33 (16), 4031-4043 (2012).
- Kehl, D., Weber, B., Hoerstrup, S. P. Bioengineered living cardiac and venous valve replacements: current status and future prospects. Cardiovasc. Pathol. 25 (4), 300-305 (2016).
- Slamecka, J., et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 15 (2), 234-249 (2016).
- Jiang, G., et al. Human Transgene-Free Amniotic-Fluid-Derived Induced Pluripotent Stem Cells for Autologous Cell Therapy. Stem Cells Dev. 23 (21), 2613-2625 (2014).
- Pipino, C., et al. Trisomy 21 mid-trimester amniotic fluid induced pluripotent stem cells maintain genetic signatures during reprogramming: implications for disease modeling and cryobanking. Cell. Reprogram. 16 (5), 331-344 (2014).
- Cai, J., et al. Generation of human induced pluripotent stem cells from umbilical cord matrix and amniotic membrane mesenchymal cells. J Biol. Chem. 285 (15), 11227-11234 (2010).
- Ge, X., et al. Human Amniotic Mesenchymal Stem Cell-Derived Induced Pluripotent Stem Cells May Generate a Universal Source of Cardiac Cells. Stem Cells Dev. 21 (15), 2798-2808 (2012).
- Drozd, A. M., Walczak, M. P., Piaskowski, S., Stoczynska-Fidelus, E., Rieske, P., Grzela, D. P. Generation of human iPSCs from cells of fibroblastic and epithelial origin by means of the oriP/EBNA-1 episomal reprogramming system. Stem Cell Res. Ther. 6 (1), (2015).
- Kang, N. -H., et al. Potential antitumor therapeutic strategies of human amniotic membrane and amniotic fluid-derived stem cells. Cancer Gene Ther. 19 (8), 517-522 (2012).
- Moschidou, D., et al. Valproic Acid Confers Functional Pluripotency to Human Amniotic Fluid Stem Cells in a Transgene-free Approach. Mol. Ther. 20 (10), 1953-1967 (2012).
- Kim, K., et al. Epigenetic memory in induced pluripotent stem cells. Nature. 467 (7313), 285-290 (2010).
- Chen, G., et al. Chemically defined conditions for human iPSC derivation and culture. Nature Methods. 8 (5), 424-429 (2011).
- Yu, J., et al. Human Induced Pluripotent Stem Cells Free of Vector and Transgene Sequences. Science. 324 (5928), 797-801 (2009).
- Martí, M., et al. Characterization of pluripotent stem cells. Nat. Protoc. 8 (2), 223-253 (2013).
- Chan, E. M., et al. Live cell imaging distinguishes bona fide human iPS cells from partially reprogrammed cells. Nat. Biotechnol. 27 (11), 1033-1037 (2009).
- Adewumi, O., et al. Characterization of human embryonic stem cell lines by the International Stem Cell Initiative. Nat. Biotechnol. 25 (7), 803-816 (2007).
- Müller, F. -J., et al. A bioinformatic assay for pluripotency in human cells. Nature Methods. 8 (4), 315-317 (2011).
- Cahan, P., Li, H., Morris, S. A., Lummertz da Rocha, E., Daley, G. Q., Collins, J. J. CellNet: Network Biology Applied to Stem Cell Engineering. Cell. 158 (4), 903-915 (2014).
- Schopperle, W. M., DeWolf, W. C. The TRA-1-60 and TRA-1-81 Human Pluripotent Stem Cell Markers Are Expressed on Podocalyxin in Embryonal Carcinoma. STEM CELLS. 25 (3), 723-730 (2007).
- Ohnishi, K., et al. Premature Termination of Reprogramming In Vivo Leads to Cancer Development through Altered Epigenetic Regulation. Cell. 156 (4), 663-677 (2014).
- Schlaeger, T. M., et al. A comparison of non-integrating reprogramming methods. Nature Biotechnology. 33 (1), 58-63 (2014).
- Müller, F. -J., Goldmann, J., Löser, P., Loring, J. F. A call to standardize teratoma assays used to define human pluripotent cell lines. Cell Stem Cell. 6 (5), 412-414 (2010).
- Beers, J., et al. Passaging and colony expansion of human pluripotent stem cells by enzyme-free dissociation in chemically defined culture conditions. Nat. Protoc. 7 (11), 2029-2040 (2012).
重印与许可
