在搅拌式生物反应器中,可通过旋转过程中作用在搅拌轴上的扭矩来测量输入功率。本文描述了如何使用空气轴承有效减少机械密封中观察到的摩擦损失,并提高小规模反应器中输入功率测量的准确性。
本文内容
摘要
摘要
在搅拌式生物反应器中,输入功率是一个重要的放大参数,可通过搅拌轴旋转时所受的扭矩来测量。然而,由于小型反应器中常用的轴套、轴承和/或轴封内部存在相对较高的摩擦损失,以及商用扭矩仪的测量精度限制,小型反应器中输入功率的实验测定仍然具有挑战性。因此,文献中关于小型生物反应器(特别是一次性使用系统)的输入功率数据十分有限,这使得不同类型的一次性使用系统及其传统对应系统之间的比较变得困难。
本文提供了一种在台式生物反应器中测量功率输入的实验方案,适用于由无量纲雷诺数(Re)描述的广泛湍流条件。通过使用空气轴承,可有效降低上述摩擦损失。本文详细描述了基于扭矩的功率输入测量的设置、实施和评估方法,特别关注细胞培养中典型的低至中等湍流搅拌条件(100 < Re < 2·104)。多种可重复使用和一次性生物反应器的功率输入以无量纲功率数(也称为牛顿数,P0)表示,在不同生物反应器的最大雷诺数条件下,测得的功率数范围为 P0 ≈ 0.3 至 P0 ≈ 4.5。
引言
功率输入是生物反应器表征和放大过程中的一个关键工程参数,因为它与许多单元操作相关,例如均质化1,2,3、气液分散2,4,5、传热6以及固体悬浮7。功率输入还与剪切应力相关,尤其可能影响剪切敏感细胞培养体系中的细胞生长和产物形成8,9,10,11。
在搅拌式生物反应器中测量输入功率的最常用技术基于电机功率消耗12,13,14、量热法12,15(即稳态热平衡或通过搅拌实现的动态加热)或作用于搅拌轴的扭矩。其中,扭矩可通过测力计、扭矩传感器或应变片实验测定,这些方法已应用于多种搅拌器,包括单级或多级Rushton涡轮搅拌器1,16,17,18,19,20,21,22,23,24,25、斜叶桨式搅拌器19,20,23,26,27、InterMig搅拌器19,21以及Scaba搅拌器28,29。Ascanio 等人(2004)对此进行了详细综述30。
根据扭矩(T),可通过公式 1 估算输入功率(P),其中 N 为搅拌器的转速。
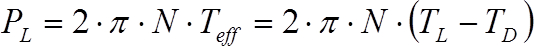 (1)
为了补偿搅拌过程中在轴承、密封件和电机本身产生的能量损失,有效转矩(Teff)应确定为在空容器中测得的转矩(TD)与在液体中测得的转矩(TL)之间的差值。最后,可使用无量纲功率数(P0,也称为牛顿数)来比较不同的搅拌器,其定义见公式2,其中ρL表示液体密度,d表示搅拌桨直径。
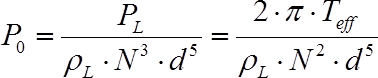 (2)
众所周知,功率数是雷诺数(即湍流程度)的函数,在完全湍流条件下趋于恒定。搅拌桨的雷诺数由公式3定义,其中ηL为液体黏度。
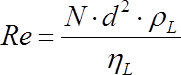 (3)
然而,由于搅拌轴机械轴承内部的摩擦损失相对较高,以及大多数商用扭矩计的精度有限,小型生物反应器中的功率输入测量仍然具有挑战性。因此,关于台式规模生物反应器功率输入测量的报道较少17,18,22,24,31,32。此外,关于一次性生物反应器的功率输入数据也较为缺乏,这类反应器由制造商预先组装、灭菌并以即用形式提供33,34。与可重复使用的反应器不同,大多数一次性生物反应器采用特殊设计的搅拌桨进行搅拌,导致难以进行直接比较。
为了弥补这一差距,近期开发出一种可靠的功率输入测量方法,特别针对实验室规模的搅拌器35。通过使用空气轴承,有效降低了空容器中因摩擦损失引起的扭矩值。因此,可在低至中等湍流条件(100 < Re < 2·104)下进行广泛的操作条件研究,并获得了多种可重复使用和一次性生物反应器的功率输入数据。
本研究提供了先前开发方法的详细测量方案,并阐述了如何在实验室规模的生物反应器中建立、实施和评估基于扭矩的功率输入测量。重点针对市售的可重复使用和一次性使用系统。采用自动测量程序以减少实验工作量。
方案
1. 蔗糖溶液的配制
注意:蔗糖溶液用作廉价的牛顿流体模型介质,具有较高的黏度和密度,可减少湍流条件(见表1)。
- 用不同浓度(20 - 60 %w/w)的蔗糖和水填充一个Duran玻璃瓶。
- 使用磁力搅拌器搅拌内容物,直至蔗糖完全溶解。
- 对于浓度超过40 %w/w的蔗糖溶液,需间歇性加入蔗糖,并轻微加热玻璃瓶(约50 °C)。使用前让蔗糖溶液冷却至室温。
2. 测量方案的准备与数据记录
- 启动软件后,从下拉菜单中选择正确的串行 COM 端口,然后点击 连接 按钮,以启动与控制单元的通信。
注意:当与控制单元的通信建立后,连接 按钮将变为绿色,且下拉菜单下方的 LED 指示灯会亮起。 - 在生物反应器控制单元软件中设置数据文件路径,以便将数据存储在操作员计算机上。
- 打开 设置 选项卡,点击 数据文件位置 文本框旁边的文件夹图标。
- 在文件对话框中,浏览至目标文件夹,在 文件名 文本框中输入文件名,然后点击 确定 按钮。
注意:定义有效文件路径后,数据日志文件的路径和名称将显示在文本框中,且 DAQ 启动 按钮将被激活。
- 在生物反应器控制单元软件的配方管理器中设置一个程序,以实现测量过程的自动化。
- 打开 配方 选项卡,将所需输入值(包括配方阶段的持续时间(分钟)和相应的搅拌桨转速(rpm))填入文本框中。该程序将自动显示在图表中。
注意:例如,搅拌速度以 20 rpm 为步长,从 100 rpm 逐步增加至 300 rpm,每个转速维持 4 分钟,以确保获得稳定的扭矩信号(见下文讨论)。最小和最大转速以及增速幅度可根据不同的搅拌器和反应容器进行调整。
注意:应根据扭矩传感器的分辨率、额定扭矩以及漩涡形成情况谨慎选择转速范围。后者常出现在无挡板生物反应器中,当搅拌速度较高时容易产生漩涡,可能导致扭矩计损坏。 - 点击 保存 按钮,浏览至目标文件路径并在文本框中输入文件名,然后点击 确定 按钮保存文件。
- 打开 配方 选项卡,将所需输入值(包括配方阶段的持续时间(分钟)和相应的搅拌桨转速(rpm))填入文本框中。该程序将自动显示在图表中。
3. 扭矩传感器的安装
注意:实验装置示意图如图1所示。
- 使用螺丝将扭矩传感器安装到一种特制的支架中,该支架集成了空气轴承(见图1),以固定传感器位置。本研究中使用的空气轴承具有多孔碳套筒材料,内径为13 mm。
- 将无刷伺服搅拌电机安装在支架顶部。使用四个螺丝将扭矩传感器固定在垂直支架的安装位置上。
- 使用金属波纹管联轴器将电机轴与扭矩传感器的驱动轴连接,该联轴器可补偿轴间微小的轴向偏差,并用螺丝紧固联轴器。使用另一个金属波纹管联轴器将搅拌轴与扭矩传感器的测量轴连接。
注意:本研究中使用了特制的叶轮轴,其直径为13 mm(公差:-0.0076 mm),长度在270 mm至520 mm之间,适用于所研究的不同容器。
- 将传感器支架安装到生物反应器顶板上,并将叶轮以所需的离底间隙安装在搅拌轴上。根据需要,在生物反应器内部安装挡板及其他附加装置(如取样和收获管路、电化学传感器等)。
- 如需使用(生物反应器#1、#3至#10),将选定的生物反应器安装到容器支架中;或(生物反应器#2)将顶板放置在生物反应器罐体上,并用螺丝紧固顶板。
- 对于玻璃生物反应器的研究,将玻璃反应器容器放入支架中。
- 对于一次性生物反应器的研究,使用适当的切割工具将顶部安装的管路接口和叶轮轴外壳从塑料顶板上拆下。将塑料容器放入支架中。
- 将温度传感器放入生物反应器内部,并连接至控制单元。将加压空气管路连接至空气轴承的气体入口,并由压缩机提供约5.5 bar的压力。将扭矩传感器连接至A/D转换器,并开启发射器电源。
4. 数据采集软件中的配置
- 打开扭矩传感器信号数据采集软件,并配置测量参数。
- 确保在DAQ通道窗口中,前两个通道已初始化并处于激活状态。本研究中,扭矩信号设置在通道0,转速信号设置在通道1。
- 点击实时更新按钮,以显示当前测量值。
- 若在无旋转状态下扭矩信号的绝对值大于0.1 mN·m,可通过在通道列表中右键单击对应通道项并选择清零平衡选项,将扭矩通道信号归零。
- 进入DAQ任务选项卡,从下拉菜单中设置数据采集速率为2 Hz。使用下拉列表中的任务开始时立即启动和持续时间选项,分别设置数据采集的开始和停止条件。
- 为采样持续时间设置一个长于完成测量所需时间的时间跨度(例如,若第二步中定义的实验程序为一小时,可设置为1 h 0 m 30 s)。
- 进入数据存储设置页面,从下拉列表中选择ASCII + 通道信息选项,以设定数据保存文件的文件格式。在PC硬盘上设置测量数据的输出文件路径。
- 确保在DAQ通道窗口中,前两个通道已初始化并处于激活状态。本研究中,扭矩信号设置在通道0,转速信号设置在通道1。
5. 进行扭矩测量
- 在扭矩仪的控制与数据采集软件中,点击 DAQ 任务 菜单页面上的 启动 按钮,开始扭矩信号的数据采集。
- 在生物反应器控制单元软件中,点击 设置 选项卡页面上的 DAQ 启动 按钮,开始搅拌转速和温度的数据采集。
- 在控制单元软件中,通过手动设定值或预定义的程序方案启动搅拌器控制。
- 若进行单次测量,请使用生物反应器控制软件 主 选项卡页面中的控制框输入项。将所需的设定值输入文本框,然后点击“启动搅拌器控制”选项。
- 若按照程序方案进行多次测量,请切换至 阶段 选项卡页面并点击 启动 按钮。
注意:在程序运行期间,软件将自动禁用所有手动输入框,并会自动弹出窗口以确认过程结束。
- 在数据采集软件中,当达到预设的测量持续时间后,系统将自动弹出窗口。点击 立即保存数据 按钮,将每次测量的数据保存至操作员计算机,建议保存至硬盘。
- 在生物反应器容器内无液体和有液体条件下,针对每个目标搅拌转速重复进行测量。
- 通过漏斗将水(或蔗糖溶液)倒入生物反应器中。
注意:确保液体完全浸没搅拌桨叶,因为暴露(部分暴露)的桨叶可能产生不期望的轴向力,从而损坏扭矩传感器。
- 通过漏斗将水(或蔗糖溶液)倒入生物反应器中。
6. 数据评估
注意:在空容器中测得的扭矩值(空载扭矩)对应于轴承的残余摩擦损失,必须从液体中测得的数值中减去,以获得有效扭矩值(见公式1)。
- 在达到准稳态信号后,对每个搅拌速度下的扭矩值取平均值(见下文讨论)。理想情况下,每种条件下应至少计算2分钟时间内的平均值,对应于以2 Hz的测量频率采集的240个数据点。
- 通过在软件命令行中运行代码,使用Matlab程序进行数据处理。
注意:该代码可在本文稿件的补充资料部分下载。此脚本导入数据记录中的原始数据文件,计算各相的相平均转速、雷诺数(基于用户输入,按公式3计算)以及扭矩值,可视化输出结果,并将结果存储于第二个文本文件中,以便进一步处理数据。 - 从液体中测得的扭矩值中减去空罐条件下获得的扭矩值,以得到有效扭矩值。
- 根据时间平均扭矩值,按照公式1和公式2计算输入功率和无量纲功率数。
结果
测定了工作体积在 1 L 至 10 L 范围内的多种可重复使用和一次性生物反应器的功率输入。几何参数详见表 2。对于一次性反应器容器,需从顶板上移除顶部安装的管路接口和搅拌桨轴外壳,以便将容器安装到容器支架中。此外,将内置的塑料轴连接至与空气轴承配合使用的不锈钢轴,但无需其他修改。
在无挡板容器中,测量了搅拌桨转速为100 rpm至300 rpm时的扭矩;在有挡板容器中,测量了转速为100 rpm至700 rpm时的扭矩,分别对应的最大叶尖速度为1.13 m·s-1和1.54 m·s-1(见公式4)。
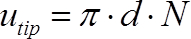 (4)
较低转速范围内的搅拌转速受到扭矩传感器测量精度以及重复性的相对标准偏差的限制,分别为±0.2%和<0.05%的额定扭矩(由制造商指定36)。此外,最大搅拌转速受限于额定扭矩(0.2 Nm),特别是对于所研究的10 L反应罐,以及无挡板容器中产生的漩涡现象。为防止传感器损坏,测量过程中的最大扭矩设定为额定扭矩的60%(0.12 Nm),并通过目视观察将漩涡深度限制在约20 mm以内。
通过逐步提高旋转搅拌器的转速,典型的扭矩曲线如图2所示。扭矩信号随转速每一步的增加而上升,这与公式1的预期一致。每次调整叶轮转速后,扭矩信号均出现峰值,这可归因于液体的初始加速以及搅拌器转速的PID控制。大约1分钟后获得准稳态测量结果,具体时间取决于转速和所用叶轮。在所研究的大多数叶轮和搅拌速度下,各阶段时间平均扭矩值周围的残余波动通常约为平均值的5%。
为进一步评估,采用了相位平均扭矩值,而每次速度调整后的峰值扭矩则被忽略。根据2 Hz的测量频率,所测得的扭矩(TL)至少基于240个数据点的平均值,从而提供了足够高的统计置信度;对于大多数测量点,这些平均值的相对标准偏差低于3%,表明测量信号稳定。有趣的是,标准偏差通常随搅拌速度的增加而减小,这表明前述波动的相对重要性随搅拌强度的提高而降低。
如先前研究所示35,死区扭矩(即反应器内无液体时测得的扭矩)可能由轴承、密封件和电机驱动中的摩擦损失,或搅拌桨轴的微小弯曲或不平衡(特别是在一次性塑料轴中)引起,而使用空气轴承可显著降低该扭矩。通常情况下,不锈钢搅拌器的死区扭矩值低于塑料搅拌器,这归因于钢制轴具有更高的刚性,从而在旋转过程中产生更小的振荡。对于大多数所用搅拌器,采用空气轴承后的残余死区扭矩低至0.5 mN·m,因此等于或接近所用扭矩传感器的分辨率(0.4 mN·m)。最高的残余死区扭矩出现在生物反应器#6中,该反应器在容器底部设有搅拌桨轴固定装置。在旋转过程中,搅拌轴与该固定装置发生碰撞,这一现象在培养实验中也可观察到,从而导致额外的摩擦。
从图3可以看出,在根据有效转矩(基于公式1)计算功率输入,并将其作为雷诺数(公式3)的函数进行绘图后,每种测试的模型介质均得到了独立的曲线。在这些曲线中,功率输入随雷诺数的增加而增加,其斜率接近于 PL  Re3 的关系。当假设功率准数和搅拌桨直径为常数时,可通过公式2和公式3推导出该相关性。所有测试的搅拌器均表现出这一规律,R2 > 0.99。
根据所获得的实验扭矩数据,最终基于公式2计算了所有研究搅拌器的功率特性(见图4、图5、图6)。标准Rushton涡轮桨作为参照,其功率数在文献中已有充分记载1,16,17,18,19,20,21,22,23,24,25。如图4a所示,在较小的2 L反应器(生物反应器#1)中,当雷诺数较低时(100 < Re < ≈500),功率数从P0 = 6.3下降至P0 ≈ 3.3,随后在Re ≈ 2000以上时再次上升。在完全湍流条件下(Re > 104),测得几乎恒定的功率数P0 = 4.17±0.14。在工作体积为10 L的较大反应器(生物反应器#2)中测得的功率数为P0 = 4.34±0.22,与前者相当,但在过渡区(600 < Re < 104)两者之间存在一些偏差(见图4a)。尽管如此,两个规模下的定性趋势均与文献数据1,19完全一致,其中分别报道了在20 L1和40 L19工作体积下单个Rushton涡轮桨的功率输入。需注意的是,湍流区的功率数比参考数据P0 ≈ 4.719和P0 ≈ 5.51低达25%。然而,由于采用的测量技术不同,以及几何参数(包括直径比d/D、离底距离zM/D、罐底和挡板结构)存在差异,直接比较往往较为困难。其他研究人员在带挡板容器中测得Rushton涡轮桨的功率数范围为3.6至5.9,具体数值取决于搅拌器和容器的几何结构17,18,21,24,27,29,37,38。因此,可以认为本研究结果是令人满意的。
在图4b中,对工作体积分别为1 L和2 L的生物反应器#3与#4在广泛雷诺数范围内的功率数进行了比较。两种几何相似的搅拌器的P0值在过渡区持续下降,并在完全发展的湍流条件下趋于恒定(生物反应器#3:P0 = 3.67±0.06;生物反应器#4:P0 = 4.46±0.05),此时雷诺数Re > 104,该准则此前已在Rushton涡轮及其他搅拌器中被证实38。有趣的是,观察到两个尺度之间存在几乎恒定的偏移量,这可归因于反应器与搅拌桨几何结构的差异。尽管两个反应器中的搅拌装置配置相似,但无法保持所有几何参数一致。例如,1 L反应器仅配备两个内置挡板,而2 L反应器则配备了三个挡板。众所周知,随着挡板数量的增加,功率数也随之增加,直至达到某一临界强化状态38。此外,为便于加工制造,较小反应器中搅拌桨圆盘的形状也进行了调整,这可能影响输入功率。还应注意的是,较小反应器中测得的扭矩值仅在4.2 mN·m至12.8 mN·m之间,相当于所用扭矩仪额定扭矩的6%。在此范围内,测量信号的微小偏差可能对结果产生显著影响。由于缺乏参考测量的对比数据,难以对本研究中所用最小尺度下的测量可靠性得出最终结论,尚需进一步研究。
图5展示了所研究的三种市售一次性生物反应器的功率特性。与带挡板的反应器不同,一次性搅拌装置的功率数在整个雷诺数范围(100 < Re < 3·104)内持续下降,且由于无挡板容器在高搅拌速率下逐渐形成漩涡,未能获得恒定的功率数。其中,生物反应器#5的功率数最高,介于P0 ≈ 6和P0 ≈ 1.8之间,该反应器采用径向泵送叶片搅拌器和带有45°倾斜叶片的轴向泵送分段叶片搅拌器进行搅拌。
正如预期,对于由两个带有30°倾斜叶片的段状叶轮搅拌、从而产生主要为轴向流的生物反应器#7,测得的功率数较低,P0 ≈ 5.1 至 P0 ≈ 1.1之间。众所周知,由于倾斜叶片的流动阻力较低,轴向流叶轮的功率数小于径向流叶轮38。需要注意的是,先前报道的生物反应器#7中输入功率的实验数据略高(例如,当Re = 1.4·104时,P0 = 1.9)32。然而,先前发表的数据显示出与本研究相同的关系,即P0 Re-0.336。不同的测量技术可能导致了绝对数值的差异。
在所研究的一次性生物反应器中,由靠近底部的船用桨叶进行混合的生物反应器#6具有最低的功率数,范围为 P0 ≈ 0.8 和 P0 ≈ 0.3(见图5)。尽管计算流体动力学(CFD)分析显示桨叶周围存在较显著的径向流动分量39,但该较低的功率输入仍可归因于桨叶较小的螺距。当前结果与已发表的CFD模型39及实验数据32具有良好的一致性。
最后,利用该测量装置研究了搅拌桨直径和叶片角度对7号生物反应器的影响。如图6所示,所有功率曲线在整个雷诺数范围内均持续下降,符合预期。两种叶片角度(30°和45°)之间存在显著差异,无论湍流程度(即雷诺数)如何,较大叶片角度对应的功率输入更高(30°时:1.13 < P0 < 4.25;45°时:1.65 < P0 < 4.46)。这一现象在传统的斜叶搅拌桨中也已知存在40,可再次归因于叶片倾角增大导致其周围流体阻力升高。有趣的是,两种搅拌桨直径之间的功率数未检测到显著差异。这一现象在斜叶搅拌桨中同样被观察到,而径向流叶片搅拌桨的功率数通常随着d/D比值的增加而减小40。
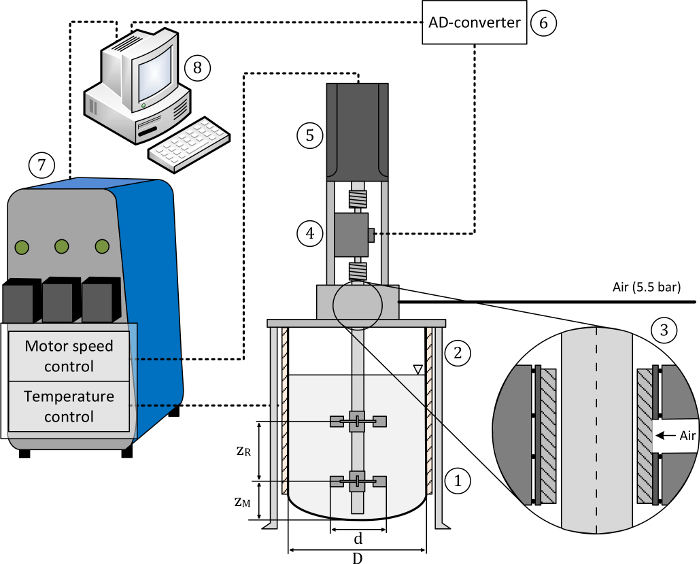
图1:实验装置示意图。 该装置包括(1)混合罐、(2)容器支架、(3)带气浮衬套的轴承座、(4)扭矩计、(5)电机驱动、(6)A/D转换器、(7)控制单元、(8)用于数据采集与控制的PC。根据制造商建议,向气浮衬套提供压缩空气(5.5 bar)。图中还标示了混合罐和搅拌器的主要几何尺寸。本图改编自35。请点击此处查看此图的放大版本。
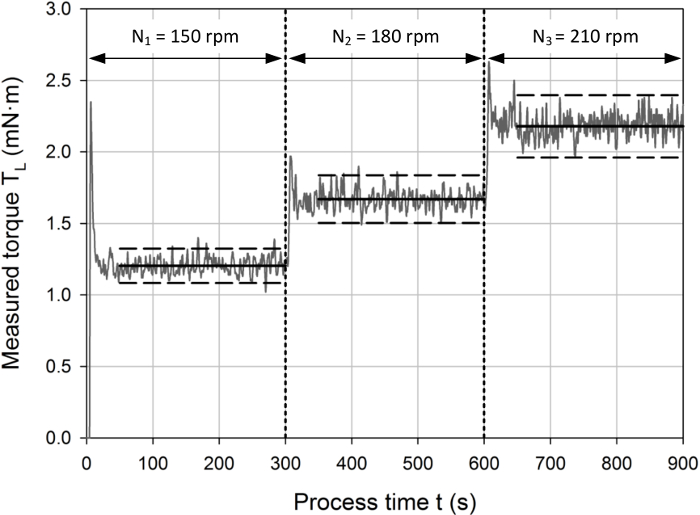
图 2:以5分钟为间隔逐步提高搅拌器转速(即 N1 < N2 < N3)时的典型测量曲线,垂直虚线标示了各阶段的切换时间。 水平虚线表示对应阶段时间平均扭矩值上下5%的置信区间(由水平实线标示)。每个阶段最初一分钟内可观察到峰值,这可归因于罐内液体的初始加速过程以及基于PID的搅拌器转速控制。在后续分析中,仅采用准稳态阶段的扭矩信号,此时测量信号在5%置信区间内围绕平均值波动。请点击此处查看该图的放大版本。
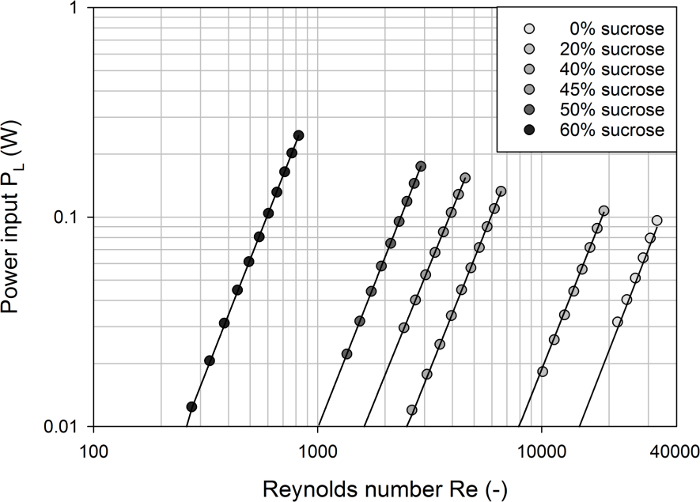
图3:不同模型培养基中生物反应器#1的功率输入随雷诺数的变化关系。 每种测试的模型培养基均获得独立的曲线。实线表示模型预测结果,假设 P Re3,实验数据与模型具有极好的一致性(R2 > 0.99)。请点击此处查看此图的放大版本。

图4:带挡板罐中功率数随雷诺数的变化关系。 (a) Rushton搅拌桨在小罐和大罐(工作体积分别为2 L和10 L)中的数据比较表明,在完全湍流条件下,两个尺度的无量纲功率数相等。在Re < 104的过渡区范围内观察到微小偏差,此时随着雷诺数增加,功率数也有所上升。(b) 3号和4号生物反应器的数据比较显示,随着雷诺数增加,功率数均呈相似的下降趋势,直至在完全湍流条件下达到稳定值。1 L生物反应器的功率数波动较2 L反应器更大。当使用与2 L反应器相同的模型介质时,未能获得1 L容器在雷诺数550 < Re < 950范围内的数据。不同尺度之间的定量差异可归因于容器和搅拌器几何结构的差异,或传感器灵敏度的影响,尚需进一步研究。实线表示多项式回归模型。请点击此处查看该图的放大版本。
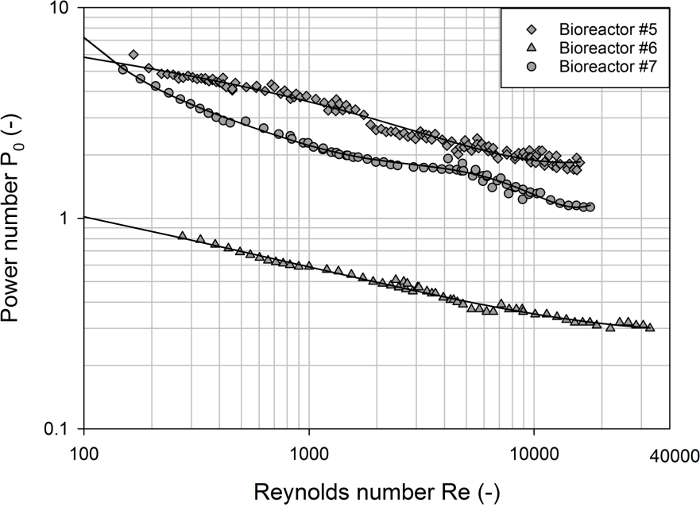
图 5:不同一次性生物反应器的功率数随雷诺数的变化关系。 各容器的功率数均随雷诺数的增加而降低。与带挡板的容器相比,无挡板容器在高搅拌速率下因逐渐形成漩涡,未能获得稳定的功率数。实线表示多项式回归模型。请点击此处查看该图的放大版本。

图 6:不同改造版本的生物反应器 #7 的功率数随雷诺数的变化关系。 两种不同叶片角度(30° 和 45°)呈现出明显不同的曲线特征,但在两种搅拌桨直径比(d/D = 0.43 和 d/D = 0.57)之间未观察到显著差异。由于在无挡板反应器中高搅拌速率下逐渐形成涡流,所有配置的功率数在整个雷诺数研究范围内均持续下降。实线表示多项式回归模型。请点击此处查看该图的放大版本。
| 最终蔗糖浓度 | 液体密度 ρL | 液体黏度 ηL | 雷诺数 Re |
| (%w/w) | (kg·m-3) | (mPa·s) | (-) |
| 0 | 998.2 | 1 | 11954 |
| 20 | 1081 | 2 | 6486 |
| 30 | 1127 | 3.2 | 4226 |
| 40 | 1176.4 | 6.2 | 2277 |
| 50 | 1231.7 | 15.5 | 954 |
| 55 | 1259.8 | 28.3 | 534 |
| 60 | 1288.7 | 58.9 | 263 |
表1:20 °C下选定蔗糖溶液的液体密度与黏度汇总,以及对应直径为60 mm、转速为200 rpm的搅拌桨所产生的无量纲雷诺数。 雷诺数通过公式3计算得出。
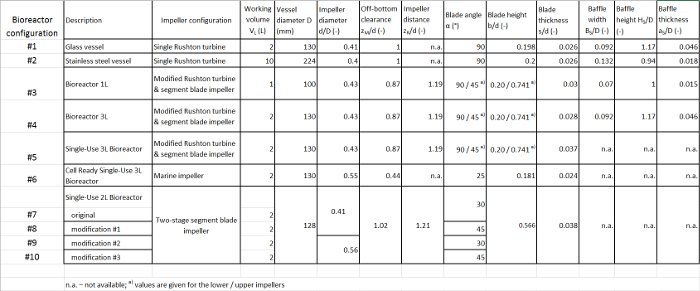
表 2:所研究生物反应器几何参数的汇总。 请点击此处下载该文件。
讨论
尽管特定功率输入对于生物反应器的工程表征及放大/缩小具有重要意义,但文献中关于台式规模生物反应器(尤其是一次性系统在个位数升容积范围内)的实验研究报道却极为有限。造成此类数据缺乏的原因之一,在于此类小规模下准确测量输入功率存在困难。为克服其中部分难题,本研究提供了一种基于扭矩的功率输入测量详细方案,并采用空气轴承以最大限度减少轴承中的摩擦损失。该方法的适用性已在三种市售的一次性生物反应器以及工作体积为1 L至10 L的多用型生物反应器上得到验证。
根据我们在基于扭矩测量方面的经验,需要解决的最关键因素有两点:1)通过尽量减少轴承和密封件内部的摩擦损失,特别是实验室规模生物反应器中的摩擦损失,来降低静摩擦扭矩;2)为所需的生物反应器尺寸和搅拌条件选择合适的扭矩测量仪。如先前研究所示35,使用空气轴承可显著降低静摩擦扭矩。在本研究中,采用了一种由多孔碳材料制成的低成本空气轴套。在空罐测试中,残余扭矩通常低于0.5 mN·m,搅拌速率最高达900 rpm,对应叶轮叶尖速度最高达3 m·s-1。相比之下,生物反应器#6采用内置机械轴轴承时,其静摩擦扭矩例如在9.4 mN·m至20 mN·m之间,而生物反应器#7的类似值也报道约为3 mN·m32。这比本研究所提出的实验装置所获得的数值高出约一个数量级。
除了空气轴承外,所使用的扭矩计是最关键的组件。本研究选用了一款 commercially available 的扭矩计,该扭矩计专为测量静态与动态扭矩、转速及旋转角度而设计。考虑到目标生物反应器的最大工作体积为 10 L 及其相应的搅拌装置,选择了额定扭矩为 0.2 N·m 的扭矩计。结果发现,重复测量具有高重复性,其相对标准偏差 < 5% 且可靠的测量可在低至 2 mN·m 的有效扭矩下实现,相当于额定扭矩的仅 1%。因此,本研究中所用传感器的测量范围显著宽于基于德国 GVC-VDI 混合技术工作组成员间实验室间研究已发表的结果41.
然而,搅拌器转速范围的选择必须结合转矩传感器的分辨率、额定转矩以及漩涡形成情况进行仔细权衡。后者通常出现在未加挡板的生物反应器中,当以较高转速搅拌时容易发生,并可能导致转矩测量仪损坏。本研究中所述方法的可行最小和最大搅拌转速均可能受到上述因素的限制。除我们之前的工作35外,本研究还引入了生物反应器#3,即制造商提供的玻璃生物反应器系列中体积最小的一款,其采用直径为42 mm的双层叶轮进行搅拌。在当前实验装置下,获得了与几何结构相似的生物反应器#4相当的功率特性。这一点尤为重要,因为在给定液体密度、叶轮几何形状(即功率数)和转速的情况下(见公式1和公式2),转矩与M d5成正比。因此,例如,叶轮直径减小10%,其产生的转矩将相应降低约40%。然而,在1 L规模下运行时,为了利用现有转矩仪准确检测所产生的转矩,所需转速高于2 L规模下的转速。由于生物反应器#3内置挡板,实验过程中未观察到漩涡形成现象,但在无挡板容器中该问题可能显现。需要强调的是,两个规模之间功率数出现的恒定偏差,可能源于传感器分辨率有限所导致的测量误差(此外还包括几何结构差异的影响)。尚需进一步研究,以确定本研究所提出装置仍具可行性的最小规模。
然而,在本实验室中,该相同方案已用于不同厂家生产的、工作体积在1 L至10 L之间的各种玻璃容器的功率输入测量。这凸显了所用方法在表征不同生物反应器系统方面的可转移性。通过控制系统软件提供的自动化系统中的配方管理实现自动测量,并结合基于通用Matlab语言的自动化数据处理,可显著减少实验工作量。
此外,需要注意的是,使用含蔗糖的廉价牛顿流体模型培养基时,根据搅拌器类型和规模的不同,可覆盖较宽范围的雷诺数(100 < Re < 6·104)。还应强调,对于使用类水培养基的动物细胞培养而言,即使采用极低的搅拌桨转速,湍流范围的下限通常也无实际影响。然而,已有研究报道,在基于真菌和植物细胞的培养体系中,培养液黏度显著升高会导致湍流衰减,甚至表现出非牛顿流体行为。例如,植物细胞培养中表观黏度可达水的400倍42,从而导致雷诺数大幅降低。
最后,以生物反应器 #7 作为首个案例研究,已证明所提出的实验装置可用于在实验室规模下研究设计修改对输入功率的影响。结合快速原型技术,这将成为搅拌器设计研究的有力工具,并构成未来工作的部分内容。
披露
作者声明不存在利益冲突。
致谢
作者感谢 Dieter Häussler 和 Beat Gautschi 在实验设置过程中提供的帮助。我们还感谢 Caroline Hyde 对英文稿件的校对。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| T20WN 扭矩计 | HBM Hottinger Baldwin Messtechnik GmbH | 额定扭矩 0.2 Nm | |
| Spider-8 | HBM Hottinger Baldwin Messtechnik GmbH | HBM Spider8 已不再销售。推荐使用 QuantumX 数据采集系统(特别是 QuantumX 模块 MX840A 和 MX440A)。 | |
| Catman easy 软件 | HBM Hottinger Baldwin Messtechnik GmbH | 版本 4.2.2 | |
| 空气轴承 | IBS 精密工程公司 | 13 mm 气浮轴套 | |
| 不锈钢叶轮轴 | Bioengineering AG | 轴公差 -0.0076 mm | |
| 无刷电机 AKM2 | Kollmorgen | ||
| 金属波纹管联轴器 | Uiker AG | ||
| Finesse RDPDmini 控制单元 | Finesse,隶属于赛默飞世尔科技公司 | 已不再提供支持(可使用替代产品 G3Lab 通用控制器) | |
| 蔗糖 | Migros Schweiz AG | 食品级 | |
| Matlab 软件 | Mathworks | 版本 R2017a | |
| Finesse μTruBio PC 软件 | Finesse,隶属于赛默飞世尔科技公司 | 版本 3.1(已不再提供支持) | |
| SmartGlass 1L | Finesse,隶属于赛默飞世尔科技公司 | 在表 2 中称为 1L 生物反应器 | |
| SmartGlass 3L | Finesse,隶属于赛默飞世尔科技公司 | 在表 2 中称为 3L 生物反应器 | |
| SmartVessel 3L | Finesse,隶属于赛默飞世尔科技公司 | 在表 2 中称为一次性使用 3L 生物反应器 | |
| Mobius CellReady 3L | 默克密理博 | 在表 2 中称为 Cell Ready 一次性使用 3L 生物反应器 | |
| UniVessel SU 2L | Sartorius Stedim Biotech | 在表 2 中称为一次性使用 2L 生物反应器 |
参考文献
- Shiue, S. J., Wong, C. W. Studies on homogenization efficiency of various agitators in liquid blending. Can. J. Chem. Eng. 62, 602-609 (1984).
- Zlokarnik, M. Rührtechnik -- Theorie und Praxis. , Springer-Verlag. Berlin, Heidelberg, New York. (1999).
- Ghotli, A. R., Raman, A. A. A., Ibrahim, S., Baroutian, S. Liquid-liquid mixing in stirred vessels: a review. Chem. Eng. Commun. 200, 595-627 (2013).
- Arjunwadkar, S. J., Sarvanan, K., Kulkarni, P. R., Pandit, A. B. Gas-liquid mass transfer in dual impeller bioreactor. Biochem. Eng. J. 1, 99-106 (1999).
- Hari-Prajitno, D., Mishra, V. P., Takenaka, K., Bujalski, W., Nienow, A. W., McKemmie, J. Gas-liquid mixing studies with multiple up- and down-pumping hydrofoil impellers: power characteristics and mixing time. Can. J. Chemical Eng. 76, 1056-1068 (1998).
- Wichterle, K. Heat transfer in agitated vessels. Chem. Eng. Sci. 49, 1480-1483 (1994).
- Angst, R., Kraume, M. Experimental investigations of stirred solid/liquid systems in three different scales: particle distribution and power consumption. Chem. Eng. Sci. 61, 2864-2870 (2006).
- Cherry, R., Papoutsakis, E. T. Hydrodynamic effects on cells in agitated tissue culture reactors. Bioprocess Eng. 1, 29-41 (1986).
- Chalmers, J. J. Shear sensitivity of insect cells. Cytotechnology. 20, 163-171 (1996).
- Ma, N., Mollet, M., Chalmers, J. J. Aeration, mixing and hydrodynamics in bioreactors. Cell Culture Technology for Pharmaceutical and Cell-Based Therapies. Ozturk, S. S., Hu, W. -S. , Taylor & Francis. New York (NY). 225-248 (2006).
- Chisti, Y. Shear Sensitivity. Encyclopedia of Bioprocess Technology. Flickinger, M. C., Drew, S. W. , John Wiley & Sons. Hoboken, NJ, USA. 1719-1762 (2002).
- Oosterhuis, N. M. G., Kossen, N. W. F. Power input measurements in a production scale bioreactor. Biotechnol. Lett. 3, 645-650 (1981).
- King, R. L., Hiller, R. A., Tatterson, G. B. Power consumption in a mixer. AIChE J. 34, 506-509 (1988).
- Brown, D. E. The measurement of fermenter power input. Ind. Chem. 16, 684-688 (1997).
- Bourne, J. R., Buerli, M., Regenass, W. Heat transfer and power measurements in stirred tanks using heat flow calorimetry. Chem. Eng. Sci. 36, 347-354 (1981).
- Böhme, G., Stenger, M. Consistent scale-up procedure for the power consumption in agitated non-newtonian fluids. Chem. Eng. Technol. 11, 199-205 (1988).
- Reséndiz, R., Martínez, A., Ascanio, G., Galindo, E. A new pneumatic bearing dynamometer for power input measurement in stirred tanks. Chem. Eng. Technol. 14, 105-108 (1991).
- Distelhoff, M. F. W., Laker, J., Marquis, A. J., Nouri, J. M. The application of a strain gauge technique to the measurement of the power characteristics of five impellers. Exp. Fluids. 20, 56-58 (1995).
- Ibrahim, S., Nienow, A. W. Power curves and flow patterns for a range of Impellers in Newtonian fluids: 40 < Re < 5x10^5. Chem. Eng. Res. Des. 73, 485-491 (1995).
- Karcz, J., Major, M. An effect of a baffle length on the power consumption in an agitated vessel. Chem. Eng. Process. Process Intensif. 37, 249-256 (1998).
- Houcine, I., Plasari, E., David, R. Effects of the stirred tank's design on power consumption and mixing time in liquid phase. Chem. Eng. Technol. 23, 605-613 (2000).
- Chen, Z. D., Chen, J. J. J. A study of agitated gas-liquid reactors with concave blade impellers. Gupta, B., Ibrahim, S. , Kluwer Academic Publishers. 43-56 (2000).
- Chapple, D., Kresta, S. M., Wall, A., Afacan, A. The effect of impeller and tank geometry on power number for a pitched blade turbine. Chem. Eng. Res. Des. 80, 364-372 (2002).
- Gill, N. K., Appleton, M., Baganz, F., Lye, G. J. Quantification of power consumption and oxygen transfer characteristics of a stirred miniature bioreactor for predictive fermentation scale-up. Biotechnol. Bioeng. 100, 1144-1155 (2008).
- Cudak, M. Hydrodynamic characteristics of mechanically agitated air - aqueous sucrose solutions. Chem. Process Eng. 35, 97-107 (2014).
- Kuboi, R., Nienow, A. W., Allsford, K. A multipurpose stirred tank facility for flow visualisation and dual impeller power measurement. Chem. Eng. Commun. 22, 29-39 (1983).
- Wu, J., Zhu, Y., Pullum, L. Impeller geometry effect on velocity and solids suspension. Chem. Eng. Res. Des. 79, 989-997 (2001).
- Amanullah, A., Serrano-Carreon, L., Castro, B., Galindo, E., Nienow, A. W. The influence of impeller type in pilot scale xanthan fermentations. Biotechnol. Bioeng. 57, 95-108 (1998).
- Saito, F., Nienow, A. W., Chatwin, S., Moore, I. P. T. Power, gas dispersion and homogenisation Characteristics of SCABA SRGT and Rushton turbine impellers. J. Chem. Eng. Japan. 25, 281-287 (1992).
- Ascanio, G., Castro, B., Galindo, E. Measurement of power consumption in stirred vessels - a review. Chem. Eng. Res. Des. 82, 1282-1290 (2004).
- Vilaça, P. R., Badino, A. C., Facciotti, M. C. R., Schmidell, W. Determination of power consumption and volumetric oxygen transfer coefficient in bioreactors. Bioprocess Eng. 22, 261-265 (2000).
- van Eikenhorst, G., Thomassen, Y. E., van der Pol, L. A., Bakker, W. M. Assessment of mass transfer and mixing in rigid lab-scale disposable bioreactors at low power input levels. Biotechnol. Prog. 30, 1269-1276 (2014).
- Eibl, D., Peuker, T., Eibl, R. Single-use equipment in biopharmaceutical manufacture: A brief introduction. Single-Use Technology in Biopharmaceutical Manufacture. Eibl, R., Eibl, D. , John Wiley & Sons. Hoboken, NJ, USA. 3-11 (2010).
- Eibl, R., Kaiser, S., Lombriser, R., Eibl, D. Disposable bioreactors: the current state-of-the-art and recommended applications in biotechnology. Appl. Microbiol. Biotechnol. 86, 41-49 (2010).
- Kaiser, S. C., Werner, S., Jossen, V., Kraume, M., Eibl, D. Development of a method for reliable power input measurements in conventional and single-use stirred bioreactors at laboratory scale. Eng. Life Sci. 17 (5), 500-511 (2016).
- Hottinger Baldwin Messtechnik GmbH. Drehmoment-Messwelle T20WN product description. , Available from: http://www.hbm.com/en/0264/torq (2016).
- Nienow, A. W., Miles, D. Impeller power numbers in closed vessels. Ind. Eng. Chem. Process Des. Dev. 10, 41-43 (1971).
- Liepe, F., Sperling, R., Jembere, S. Rührwerke - Theoretische Grundlagen, Auslegung und Bewertung. , Eigenverlag FH. Anhalt, Köthen, Germany. (1998).
- Kaiser, S. C., Werner, S., Eibl, D. CFD as tool to characterize single-use bioreactors. Single-Use Technology in Biopharmaceutical Manufacture. Eibl, R., Eibl, D. , John Wiley & Sons. Hoboken, NJ, USA. 264-279 (2010).
- Liepe, F. Verfahrenstechnische Berechnungsmethoden Teil 4: Stoffvereinigen in fluiden Phasen - Ausrüstungen und ihre Berechnung. VEB Deutscher Verlag für Grundstoffindustrie. , Leipzig, Germany. (1988).
- Kraume, M., Zehner, P. Experience with experimental standards for measurements of various parameters in stirred tanks: a comparative test. Chem. Eng. Res. Des. 79, 811-818 (2001).
- Werner, S., Greulich, J., Geipel, K., Steingroewer, J., Bley, T., Eibl, D. Mass propagation of Helianthus annuus suspension cells in orbitally shaken bioreactors: Improved growth rate in single-use bag bioreactors. Eng. Life Sci. 14, 676-684 (2014).
重印与许可
标签
