本方案介绍了一种从斑马鱼胚胎、幼体或分选细胞中进行全转录组分析的方法。我们包括了RNA的分离、RNA测序数据的通路分析,以及基于qRT-PCR的基因表达变化验证。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
斑马鱼RNA测序基因表达数据的样本制备与分析
* These authors contributed equally
本文内容
摘要
摘要
全局基因表达变化的分析是识别与特定表型相关的新型通路的有力工具。由于可从大量个体中便捷地分离RNA,斑马鱼成为快速评估整体转录组(来自完整动物或特定细胞群体)的理想模型。本文介绍了一种利用RNA测序(RNASeq)技术对斑马鱼胚胎进行全局基因表达分析的实验方案。我们描述了从完整胚胎或通过转基因动物中细胞分选获得的特定细胞群体中提取RNA的方法。同时,本文还介绍了一种分析RNASeq数据的策略,用于识别全局基因表达数据集中富集的通路及基因本体(GO)术语。最后,我们提供了一种利用定量反转录PCR(qRT-PCR)验证基因表达变化的实验流程。这些方案可用于对照组与实验组斑马鱼之间的比较分析,以发现新的基因表达变化,并为感兴趣表型提供分子层面的解释。
引言
全局基因表达的比较分析是识别参与特定表型形成的新基因的有力工具。此类分析通常依赖于对实验组与对照组样本之间转录本丰度的定量评估。针对特定基因的方法,如定量逆转录PCR(qRT-PCR),在单个基因表达变化的研究中具有较快的速度和较高的准确性。而RNA测序(RNASeq)则提供了一种广泛且无需预先假设的方法,可用于识别样本间基因表达的显著差异,现已成为各类实验体系中此类研究的标准方法。
斑马鱼已成为多种疾病研究领域的重要模型。最初因其在发育生物学研究中的实用性而被开发,由于其繁殖力高且维持成本相对较低,斑马鱼的实验应用已扩展至涵盖从胚胎到成体阶段的广泛表型,以及多种分子检测方法。1,2,3事实上,这些优势使得分子机制研究变得快速且经济高效,因为可以轻松获得大量实验材料,同时在生命各个阶段均易于进行遗传和环境操控。此外,斑马鱼胚胎和幼鱼具有透明特性,非常适用于构建细胞和组织特异性的转基因报告品系,从而实现 体内 离散细胞群体的可视化4利用此类细胞系可基于报告基因的表达,对特定分离细胞类型进行全基因表达分析。
本文介绍了一种利用RNA测序(RNASeq)对斑马鱼胚胎进行全基因表达分析的综合实验方案。关于基因操作实验方法,包括基于吗啉环寡核苷酸(MO)的瞬时基因敲低或CRISPR介导的基因组编辑,已在其他文献中有所报道5,6,7。因此,本文重点介绍从整胚或经分选的转基因报告基因表达细胞中提取RNA的详细操作流程,并结合通路分析工具和基因本体(GO)术语对RNASeq结果进行简单的计算分析。最后,本文还提供了通过定量逆转录酶PCR(qRT-PCR)验证基因表达变化的策略。这些实验方案适用于经历多种实验处理的斑马鱼胚胎,包括遗传突变体或不同环境条件之间的比较。
访问受限。请登录或开始试用以查看此内容。
方案
以下所述的所有动物实验方案均符合马里兰大学机构动物护理与使用委员会(IACUC)的规定,并已获得其批准。
1. 胚胎制备
- 通过自然交配产生胚胎
- 将胚胎培养至3月龄,达到性成熟5,8。
- 在收集胚胎的前一晚,将所需品系的成年雄鱼和雌鱼分开放入分隔式交配缸中,每缸放入2尾雄鱼和3尾雌鱼。
注:使用转基因insulin2a:mCherry荧光报告品系可实现对胰腺β细胞的分析。 - 次日清晨开灯后,将鱼转移至含有新鲜系统水的交配缸中,并立即移除分隔板。
- 让鱼自然交配,直至在缸底观察到胚胎。每30分钟收集一次胚胎,直至获得所需数量。将每次收集的胚胎按时间点分别置于不同的培养皿中,使用胚胎培养基在28.5 °C下保存。
- 如需进行遗传物质显微注射或转入实验性培养基6,可在此时操作,并将胚胎置于10 cm培养皿中的新鲜Hank's胚胎培养基8中,于28.5 °C下继续培养。
注:对于注射吗啉代(MO)或突变体动物的基因表达分析,需注意每种操作可能对基因表达产生非特异性影响。突变体在转录水平可能发生遗传补偿,而基于MO的基因靶向则通常不出现此类现象9。
- 胚胎分期
- 将胚胎以每10 cm培养皿50–75枚胚胎的密度分组培养,以保证所有胚胎发育时序一致。
- 在卵裂期、外包期和体节期使用解剖显微镜监测胚胎形态发育,确保正常发育进程10。
注:及时移除死亡或畸形胚胎,以防止对同皿其他胚胎造成发育延迟。 - 根据胚胎的发育年龄进行分离。在原肠胚形成后(受精后10.33小时,hpf)至约24 hpf期间,通过体节数量测定胚胎年龄;24 hpf之后,依据总体长对胚胎和幼鱼进行分期。
注:体节是位于胚胎背部的V形中胚层组织。 - 将分选后的胚胎置于28.5 °C培养箱中,继续发育至目标阶段。
2. 单细胞解离:完整胚胎和分选细胞群体
- 整个胚胎解离
- 将斑马鱼胚胎置于冰上5-15分钟,直至观察不到任何运动,以在所需阶段处死胚胎。
- 将20枚胚胎转移至一个已标记的1.5 mL微量离心管中。移除微量离心管中多余的胚胎培养液。
- 添加 200 µL 裂解试剂(参见 材料清单) 加入含有胚胎的离心管中。使用研杵在裂解试剂中进行机械匀浆以裂解胚胎。添加 800 µL 裂解试剂,使总体积达到1 mL。储存于-80 °C 直至 RNA 提取。
- 流式分选细胞分离11
- 将胚胎从培养皿转移至1.5 mL微量离心管中,并尽可能吸除胚胎培养液。
注意:根据胚胎的发育时期,此步骤可能还需要进行机械解离。对于胚胎 > 48 hpf时,建议使用研杵破坏胚胎完整性后再进行后续操作。 - 将胚胎与1 mL解离缓冲液1孵育(参见 材料清单在1.5 mL微量离心管中。室温孵育15–30分钟。孵育期间每3–4分钟用P1000枪头轻轻吹打溶液上下混匀。切勿涡旋。
- 通过离心收集胚胎,300 × g 离心 3 分钟,弃去上清液。将胚胎重悬于 1 mL 解离缓冲液 2 中(见 材料清单)。在室温下孵育15–30分钟,期间定期用移液器吹打混匀。
- 通过稀释1-评估消化情况2 µL 在显微镜下,用荧光激活细胞分选(FACS)缓冲液重悬细胞。
注意:当检测的等分试样显示为单个细胞且极少细胞团及胚胎组织碎片时,表明消化完全。 - 以 300 × g 离心 5 分钟收集细胞。移除上清液。将细胞重悬于 1 mL FACS 缓冲液中,并通过重力过滤装置过滤 40 µm 使用细胞滤筛去除样品中未消化的组织。
- 使用血细胞计数板对细胞进行计数,并用FACS缓冲液稀释至约1x10⁶个/mL6 细胞/mL,置于FACS管中。
注意:对于每胚胎中数量相对较少的细胞类型(占总数不到5%),例如胰腺β细胞,应使用至少1,000个发育阶段匹配的胚胎。 - 向FACS分选设施提供含有1 mL细胞悬液样本的FACS管,以及仅含裂解试剂或FACS缓冲液的FACS管。设置FACS流式分选仪的分选门,仅收集表达荧光报告蛋白的单个细胞。
- 进行FACS流式分选,直至收集到所需数量的细胞。
注意:进行RNA测序需要一定最低量的总RNA。我们发现,3,000–5,000个细胞足以分离出高质量、高浓度的RNA。 - 将收集的细胞置于冰上保存,并立即进行RNA制备。
- 将胚胎从培养皿转移至1.5 mL微量离心管中,并尽可能吸除胚胎培养液。
3. RNA 制备
- 提取 RNA
- 将收集的样品(来自步骤 2)与裂解试剂在室温下孵育 5 分钟。
- 每使用 1.0 mL 裂解试剂,加入 0.2 mL 氯仿,用手倒置混匀试管 15 秒。在室温下孵育 2–3 分钟。在 4 °C 条件下以 12,000 ×g 离心 15 分钟。
- 将分离后的水相转移至新离心管中,每使用 1.0 mL 裂解试剂加入 0.5 mL 异丙醇。在室温下孵育 10 分钟。在 4 °C 条件下以 12,000 ×g 离心 10 分钟。
- 用 75% 乙醇洗涤,在 4 °C 条件下以 7,500 ×g 离心 5 分钟。彻底去除上清液,并在室温下晾干。用 15–30 µL 经焦碳酸二乙酯(DEPC)处理的水重悬 RNA。
- 纯化高质量 RNA
- 将 RNA 悬液与 1/10 体积的 3M 醋酸钠(pH 5.5)和 1 体积的异丙醇混合。在室温下孵育 20 分钟,在 4 °C 条件下以 12,500 ×g 离心 10 分钟。
- 用冰预冷的 70% 乙醇(DEPC 处理水配制)洗涤沉淀,在 4 °C 条件下以 10,000 ×g 离心 5 分钟。重复洗涤一次。
- 去除上清液,在室温下晾干。用 DEPC 处理水重悬 RNA。
- 使用吸收光谱仪测定提取 RNA 的浓度(ng/µL)和纯度(260/230 比值)。在进行 RNA 测序前,确保 260/230 比值约为 2.0。储存于 -80 °C 直至使用(最长 6 个月)。
- 将 RNA 样品送至供应商或核心实验室进行 RNA 测序及基于测序读数定量的基因表达变化分析。供应商返回的结果通常以在样品间转录本读数发生显著倍数变化的基因列表形式提供。
注:若上述方法获得的 RNA 质量较差,可使用层析柱进行纯化。RNA 样品的用量、浓度和 RNA 完整性数(RIN)应与供应商或核心实验室确认。供应商或核心实验室通常也会评估 RIN。
4. 通路与 GO 术语分析
注意:有关核心机构或供应商提供的 RNASeq 基因表达分析的代表性结果,请参见图 1。
- 筛选差异表达基因
- 比较单一实验条件与对照组
- 在电子表格管理软件中打开数据(结果)(参见 材料表)。
- 在包含实验组与对照组之间差异表达基因的电子表格中,点击“排序”按钮旁边的下拉箭头,并选择“自定义排序”。
- 在弹出窗口的“列”下方选择框,并选择按“LFC”列进行排序。确保“排序依据”列中选择的是“数值”,在“次序”列中选择“从大到小”,然后点击“确定”。
注意:此操作将对差异表达基因进行排序,使表达上调(正LFC)的基因位于列表顶部,表达下调(负LFC)的基因位于列表底部。
- 按以下步骤将多个实验条件与单一对照组进行比较。
- 在“实验1 vs 对照”工作表的空白列中选择第一个单元格,以确定在两个实验条件下均出现的差异表达基因。在该单元格中输入以下公式:
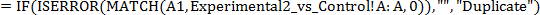
注意:该公式结合了IF、ISERROR和MATCH函数。(i)MATCH函数MATCH(A1,Experimental2_vs_Control!A:A,0)将在名为Experimental2_vs_Control的工作表的A列(A:A)中查找A1单元格中的值(ENSEMBL ID)。“0”表示查找完全匹配项,若找到完全匹配项,则函数返回值“1”;若未找到匹配项,则返回错误“N/A”。(ii)MATCH函数的结果将作为输入传递给ISERROR函数ISERROR(MATCH(A1,Experimental2_vs_Control!A:A,0)),若输入为“1”(表示找到匹配项),则返回“FALSE”;若输入为“N/A”(表示未找到匹配项),则返回“TRUE”。(iii)“TRUE”或“FALSE”结果再输入到IF函数IF(ISERROR(MATCH(A1,Experimental2_vs_Control!A:A,0)),"","Duplicate")中,若输入为“TRUE”(表示未找到匹配项),则返回第一对引号之间的值(即空值),因此该单元格为空;若输入为“FALSE”(表示找到匹配项),则返回第二对引号之间的值(即“Duplicate”),该单元格将显示“Duplicate”。 - 按“Enter”或“Return”运行公式。选中包含公式的单元格,点击该单元格右下角的小方框,按住鼠标并向下拖动至最后一个“Feature ID”,以将公式复制到该列的每个单元格中。
- 再次选择“自定义排序”,通过点击左下角的“+”图标添加第二级排序。在第一级“排序依据”中,“列”选择“Duplicate”,“排序依据”选择“数值”,“次序”选择“Z到A”;在第二级“然后依据”中,“列”选择“LFC”,“排序依据”选择“数值”,“次序”选择“从大到小”,然后点击“确定”。
注意:此操作将基因列表根据表达变化的方向性分为四组。检查在两个实验条件下均出现的基因非常重要,以确认其表达变化方向是相同还是相反。 - 在继续操作前,从基因符号列中删除所有括号。选中包含基因符号的整列,选择“编辑”菜单中的“替换”功能。在“查找内容:”栏中输入“(*)”,“替换为:”栏留空,点击“全部替换”以删除所有括号实例。
注意:“*”代表任意数量的字符,将此字符置于两个括号之间可提示程序查找高亮区域中所有括号实例,并将其替换为空,从而实现删除。
- 在“实验1 vs 对照”工作表的空白列中选择第一个单元格,以确定在两个实验条件下均出现的差异表达基因。在该单元格中输入以下公式:
- 比较单一实验条件与对照组
- 确定富集通路
- 将希望确定富集通路的基因集合的基因符号复制到剪贴板。访问ConsensusPathDB12,在网页左侧边栏选择“Gene set analysis”,随后选择“Over-representation analysis”。
- 在“Paste a list of gene/protein identifiers”框中粘贴基因列表。在“Gene/protein identifier type”框中选择“gene symbol”,然后点击“Proceed”。在“Pathway-based sets”部分下,勾选“Pathways as defined by pathway databases”旁边的复选框。
注意:将出现多个分析选项,包括可供搜索的数据库列表。我们建议仅保留KEGG和Reactome数据库,取消选择其他所有数据库,因为这两个数据库最为成熟且全面。最小重叠基因数和p值截断设置也可根据需要调整。我们建议将这些设置保留为默认值:最小重叠基因数为2,p值截断为0.01。 - 点击“Find enriched sets”以获取包含输入基因列表中基因的通路列表。
注意:输出结果将以表格形式呈现,包括每条通路的名称、“Set size”(表示通路中总基因数)、“Candidates contained”(表示输入列表中属于该通路的基因数)、p值和q值(FDR),以及识别该通路的数据库。
- 通路网络的构建
- 按照上述方法确定富集通路。
- 通过勾选各通路名称旁的复选框,或点击选择框列标题上方“Select”下的“All”,选择所有希望在通路网络中可视化的富集通路,然后点击“Visualize selected sets”。
注意:如果通路数量少于30条,建议可视化所有通路;如果超过30条,建议选择富集程度最高的前30条通路(即包含输入列表中基因数最多的通路)。 - 通过点击页面顶部中央的“relative overlap”或“shared candidates”筛选框,并输入所需的相对重叠百分比或共享候选基因数,以提高筛选严格性,使通路网络中的关键重叠关系更加清晰,然后点击“apply”。
注意:我们建议最小相对重叠值设为0.2,即两条通路之间需有20%的基因重叠才能连接,且共享候选基因至少为2个。可通过点击页面左上角的图例查看图形说明。
- 富集GO术语的确定
- 将希望确定富集基因本体(GO)术语的基因组的基因符号复制到剪贴板。访问基因本体联盟(Gene Ontology Consortium)的“GO富集分析工具”13。在页面左侧“Your gene IDs here…”框中粘贴基因符号列表。
- 在基因ID框下方选择要使用的GO术语集合:生物过程(biological process)、分子功能(molecular function)或细胞组分(cellular component)。建议选择“生物过程”。在GO术语框下方选择'Danio rerio',然后点击“Submit”。
注意:我们建议使用默认的p值截断值0.05。
5. 通过qRT-PCR验证
注意:在RNA测序中发现具有显著基因表达变化的单个基因,应通过靶向qRT-PCR在重复实验中进行验证。
- cDNA合成
- 使用第3.1节“RNA提取”中所述的方法从胚胎中提取RNA。
- 转化 1 µg 使用cDNA转化试剂盒将RNA转为cDNA(参见 材料清单). 将RNA、dNTPs和逆转录酶混合。根据制造商说明书进行PCR仪反应。
- 将cDNA用经DEPC处理的水按1:3比例稀释。储存于 4 °C 长达 1-2 个月。
- qRT-PCR 验证
- 从RNA测序结果中选择用于qRT-PCR验证的基因。筛选表达倍数变化较高的基因,并确定其中哪些基因同时具有较高的读段数,因为这表明其表达丰度较高。
- 从高倍数变化、高读数的基因列表中选取10-12个目标基因。设计引物以扩增至少跨越1个内含子-外显子边界的靶基因。
- 输入基因或基因的靶向区域至qPCR引物设计网站14. 选择“设计 2 对 qPCR 引物”,并提示网站生成引物组合。
注意:务必包含内参引物,例如 β-actin,以标准化样本间的比较。β-actin 引物为 F: 5'-TCGAGCTGTCTTCCCATCCA-3' 和 R: 5'-TCACCAACGTAGCTGTCTTTCTG-3'。 - 将 cDNA、上游引物、下游引物和聚合酶混合。进行 qRT-PCR 扩增以测定基因的相对表达水平15.
- 通过相对定量分析目标基因的相对mRNA表达水平15.
- 将qRT-PCR结果与RNA测序结果进行比较,以确保差异表达的方向性一致。
访问受限。请登录或开始试用以查看此内容。
结果
差异表达基因的筛选:
为了鉴定Alström综合征和Bardet-Biedl综合征(BBS)斑马鱼模型幼虫阶段差异表达的基因,我们通过向野生型斑马鱼胚胎中注射先前已验证的剪接阻断型吗啉代寡核苷酸(MO),靶向alms1或bbs1转录本16,17。受精后5天(dpf),按照上文第3节所述方法,从每种实验条件下分别提取两份RNA样本,同时提取对照MO注射胚胎的RNA。每个样本的RNA测序深度约为1.2亿条reads,其中约1.07亿条reads比对至斑马鱼基因组。比对上的reads中有85–90%定位到基因组的外显子区域。
Alström 模型中总共有 1,348 个基因的表达发生显著变化,...
访问受限。请登录或开始试用以查看此内容。
讨论
本方案所述方法为全动物或特定分选细胞群体的转录组水平分析提供了一种相对快速且经济有效的策略。斑马鱼是此类研究的理想模型,因其易于快速获得大量起始材料,易于实施遗传或环境实验条件,并且拥有大量转基因报告品系,可用于分离特定细胞类型和特定组织的细胞群体。
尽管此处未详细说明,该方法也可轻松适用于从幼年或成年鱼类中采集的组织切片,作为流式细胞分选和收集的替代方案。我们还开发了一种基本的后续分析策略,仅依赖于基础的电子表格命令以及现有的通路和GO数据库。该方法的主要优势在于易于获取和使用,无需具备高水平的计算机编程或数据库管理专业知识。因此,该策略适用于各种背景的研究人员对大规模基因表达数据集进行信息丰富的分析。
我们的方法结合了基础的斑马鱼胚胎和幼体培养技术,以及标准的RNA提取技术,随后进行RNA测序(RNASeq)。RNA测序需要大量高质量的起始材料;部分供应商要求至少2 µg的总RNA。因此,稀有或罕见细胞类型,以及单个胚胎的分析目前尚难以实现。然而,过去五年已在低产量样本分析、小样本量数据生成及低RNA投入量方面取得了显著进...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作由 R01DK102001(N.A.Z.)、P30DK072488(N.A.Z.)和 T32DK098107(T.L.H. 和 J.E.N.)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 商用试剂 | |||
| TriZol | Thermo Scientific | 15596026 | 裂解试剂 |
| TrypLE | Gibco | 12604013 | 解离缓冲液 1 |
| FACSMax | Genlantis | T200100 | 解离缓冲液 2 |
| DEPC 处理水 | Sigma | 95284 | |
| FirstStrand cDNA 合成 | Thermo Scientific | K1621 | cDNA 合成试剂盒 |
| 2X SYBR Green Master Mix | Roche | 4707516001 | qRT-PCR Master Mix |
| FACS 缓冲液 | Fisher Scientific | 50-105-9042 | |
| 氯仿 | Sigma Aldrich | 288306 | |
| 乙酸钠 | Sigma Aldrich | S2889 | |
| 名称 | 公司 | 目录编号 | 备注 |
| 斑马鱼品系 | |||
| Tuebingen | ZIRC | ZL57 | |
| ins2a:mCherry | ZIRC | ZL1483 | |
| 名称 | 公司 | 目录编号 | 备注 |
| 设备 | |||
| 40 微米细胞筛 | Sigma | CLS431750 | |
| FACS 管 | BD Falcon | 352063 | |
| 血细胞计数板 | Sigma | Z359629 | |
| 解剖显微镜 | Zeiss | ||
| 倒置显微镜 | Zeiss | ||
| Nanodrop | Thermo Scientific | ||
| Illumina HiSeq | Illumina | ||
| LightCycler 480 | Roche | ||
| 交配罐 1.0L 交配罐套装 | Aquaneering | ZHCT100 | |
| FACS 管 5 mL 聚丙烯管 | BD Falcon | 352063 | |
| 名称 | 公司 | 目录编号 | 备注 |
| 软件 | |||
| Excel | Microsoft | ||
| Consensus Path DB | http://cpdb.molgen.mpg.de/ | ||
| GO 富集分析 | http://geneontology.org/page/go-enrichment-analysis |
参考文献
- Nusslein-Volhard, C., Dahm, R. Zebrafish. , Oxford University Press. (2002).
- Detrich, H. W., Zon, L., Westerfield, M. The Zebrafish: Disease Models and Chemical Screens. , 4th ed, Academic Press. (2017).
- Detrich, H. W., Zon, L. I., Westerfield, M. The Zebrafish: Genetics, Genomics, and Transcriptomics. , 4th ed, Academic Press. (2016).
- Detrich, H. W. The Zebrafish: Genetics, Genomics and Informatics. , 3rd ed, Academic Press. (2011).
- Avdesh, A., et al. Regular care and maintenance of a zebrafish (Danio rerio) laboratory: an introduction. J Vis Exp. (69), e4196(2012).
- Rosen, J. N., Sweeney, M. F., Mably, J. D. Microinjection of zebrafish embryos to analyze gene function. J Vis Exp. (25), (2009).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Westerfield, M. The zebrafish book. A guide for the laboratory use of zebrafish (Danio rerio). , 4th ed, Univ. of Oregon Press. Eugene. (2000).
- Rossi, A., et al. Genetic compensation induced by deleterious mutations but not gene knockdowns. Nature. 524 (7564), 230-233 (2015).
- Kimmel, C. B., Ballard, W. W., Kimmel, S. R., Ullmann, B., Schilling, T. F. Stages of embryonic development of the zebrafish. Dev Dyn. 203 (3), 253-310 (1995).
- Samsa, L. A., Fleming, N., Magness, S., Qian, L., Liu, J. Isolation and Characterization of Single Cells from Zebrafish Embryos. J Vis Exp. (109), (2016).
- MPIMG. ConsenusPathDB. , Available from: http://cpdb.molgen.mpg.de/ (2017).
- Consortium, G. O. Enrichment analysis Tool. , Available from: http://www.geneontology.org/ (2017).
- IDT. IDT Primerquest Tool. , Available from: https://www.idtdna.com/Primerquest/Home/Index (2017).
- Heid, C. A., Stevens, J., Livak, K. J., Williams, P. M. Real time quantitative PCR. Genome Res. 6 (10), 986-994 (1996).
- Leitch, C. C., Lodh, S., Prieto-Echague, V., Badano, J. L., Zaghloul, N. A. Basal body proteins regulate Notch signaling through endosomal trafficking. J Cell Sci. 127 (Pt 11), 2407-2419 (2014).
- Lodh, S., Hostelley, T. L., Leitch, C. C., O'Hare, E. A., Zaghloul, N. A. Differential effects on beta-cell mass by disruption of Bardet-Biedl syndrome or Alstrom syndrome genes. Hum Mol Genet. 25 (1), 57-68 (2016).
- Hostelley, T. L., Lodh, S., Zaghloul, N. A. Whole organism transcriptome analysis of zebrafish models of Bardet-Biedl Syndrome and Alstrom Syndrome provides mechanistic insight into shared and divergent phenotypes. BMC Genomics. 17, 318(2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
