本文介绍了一种研究 crayfish 光感受器脱敏及敏感性恢复随昼夜节律时间变化的实验方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
本文介绍了一种研究螯虾感光细胞脱敏与恢复的方法。我们采用不连续单电极切换式电压钳技术,对离体眼柄中的感光细胞进行细胞内电记录。首先,使用剃刀刀片在背部角膜上切开一个小口,以暴露视网膜。随后,将玻璃微电极经切口插入并穿入细胞,当记录到负电位时即表明穿膜成功。将细胞膜电位钳制在感光细胞的静息电位,并施加光脉冲以激活离子电流。最后,采用双闪光刺激方案来测量电流的脱敏与恢复过程。第一个光闪光在经过一段潜伏期后引发转导离子电流,该电流在达到峰值后逐渐衰减,进入脱敏状态;第二个光闪光在不同时间间隔施加,用于评估光激活电导的状态。为表征光诱发的电流,测量了三个参数:1)潜伏期(从光闪光施加至电流达到其最大值的10%所需的时间);2)峰值电流;3)脱敏时间常数(电流衰减相的指数时间常数)。所有这些参数均受首次光脉冲的影响。
为了量化脱敏后的恢复程度,采用两次光脉冲间隔时间对应的 p2/p1 比值进行分析。其中,p1 表示第一次光脉冲诱发的峰值电流,p2 表示第二次脉冲诱发的峰值电流。这些数据被拟合为多个指数函数的和。最后,这些测量在不同昼夜节律时间下进行。
引言
要被感知为视觉刺激,到达眼睛的光必须被转化为电信号。因此,在所有具有视觉的生物中,光会触发一种转导性离子电流,进而引起感光细胞膜电位的变化,即所谓的感受器电位。正因如此,眼睛的光敏感性主要取决于光激活电导的状态,该电导可能处于可被激活的状态,也可能处于脱敏状态。
在螯虾的光感受器中,光会引发一种缓慢且短暂的离子电流1。光照开始后,转导电流会出现一段延迟或潜伏期,随后才达到峰值;之后随着转导通道进入失敏状态而逐渐衰减,在该状态下通道对进一步的光刺激不再响应2。也就是说,光除了激活产生视觉的转导电流外,还会引起光感受器细胞敏感性的短暂下降。这种失敏可能代表了一种普遍的保护机制,用以防止对有效刺激的过度暴露。当转导电导从失敏状态恢复后,眼睛对光的敏感性也随之恢复。
细胞内记录是一种用于测量可兴奋细胞电活动的有用技术3,4,5,6,7,8。尽管随着膜片钳技术的出现,细胞内记录的使用已逐渐减少9,但在细胞难以分离,或其几何形态不利于形成膜片钳高阻封接(i.e.,膜片电极与细胞膜之间电阻约为109欧姆的封接或紧密接触)的情况下,该方法仍是一种便捷的选择。后者的例子包括精子细胞10以及本文所研究的感光细胞。根据我们的经验,Procambarus clarkii 的感光细胞难以分离并维持在原代培养中;此外,它们呈细长杆状,使得高阻封接的形成尤为困难。在细胞内记录中,尖锐电极被推进至细胞内,而细胞则由周围组织固定位置。电极信号通过放大器的高速切换电路进行斩波,从而在电压脉冲之间对电流进行采样。这种模式被称为不连续单电极电压钳制(dSEVC模式)11。由于电极具有高电阻(尖端开口小),限制了细胞与移液管溶液之间的扩散交换,因而对细胞内环境的干扰极小3。该技术的一个潜在缺点是电极插入可能引起非选择性漏电流;因此,必须谨慎避免对漏电流大小可能干扰目标测量的细胞进行记录4,12。
本文中,我们利用分离的小龙虾眼柄,在电压钳制条件下对感光细胞进行细胞内电生理记录,以评估光激活离子电导的脱敏及恢复过程。
访问受限。请登录或开始试用以查看此内容。
方案
注意:本实验遵守墨西哥动物保护法。
1. 实验设置
- 通用连接
- 通过模数转换器将放大器连接至合适的计算机,并使用示波器监测实验过程(图1)。
- 将光刺激器连接至模数转换器。
- 记录室
- 将记录室置于防震台上,并将其放置于法拉第笼内。
注:此举可防止可能影响记录结果的机械振动和电噪声。我们的法拉第笼由深色金属网制成。使用自制的2 mL丙烯酸材质记录室(图2)。 - 配制灌流液以维持组织活性13:205 mM NaCl;5 mM KCl;2 mM MgSO4;13 mM CaCl2;5 mM Hepes-NaOH,pH 7.3。
注:该溶液不含葡萄糖,也不用95% O2 和5% CO2 混合气体进行通气,因为实验过程较短,足以避免电记录过程中产生损伤(完整性请参见步骤4.2.3)。
- 将记录室置于防震台上,并将其放置于法拉第笼内。
- 电极
- 使用镀氯化银的银丝电极作为参考电极
注:必须对银丝进行氯化银镀层处理,以实现电极反应:AgCl(s) + e−↔ Ag(s) + Cl-。 - 用细粒度砂纸打磨银丝(直径约1 mm,长度约10 cm),以清洁其表面。
- 用蒸馏水冲洗银丝。
- 将清洁后的银丝浸入4–6%的次氯酸钠溶液(NaClO)中,直至其表面变暗(约20分钟)。
- 使用充满电解质溶液(2.7 M KCl)的细玻璃微电极作为细胞内记录电极。
- 使用微电极拉制仪将玻璃毛细管(内径≈1 mm)拉制成尖端细小、开口极小(0.01–0.1 µm)的微电极14。
- 用2.7 M KCl溶液填充已拉制好的玻璃毛细管。首先通过毛细作用填充(将微电极尖端浸入2.7 M KCl溶液中),然后用细注射针填充微电极上半部分。如有必要,轻敲电极以排除气泡。
- 将电极连接至电极夹持器,并将夹持器连接至放大器的前置放大头段。使用稳定的三维微操纵器固定电极-夹持器-头段组件。将电极缓慢下放,直至其尖端被灌流液完全浸没。
注:电极必须保持垂直方向
- 使用镀氯化银的银丝电极作为参考电极
- 在放大器的模式(Mode)区域按下“Bridge”按钮,选择电桥平衡模式,并测量电极电阻。确保电阻值约为50 MΩ11。
注:该尺寸电极可在对细胞损伤有限的前提下实现高质量的电生理记录。 - 使用放大器电压钳(Voltage Clamp)区域的“Holding Position”按钮,以及微电极1(Microelectrode 1)区域的“Capacitance Neutralization”按钮,调零偏移电流并补偿电容瞬变。
- 灌流系统
- 将灌流液(步骤1.2.2)倒入合适的容器(如250 mL血清瓶)中,并通过内径为3.2 mm的灌流管路连接至记录室。采用重力驱动的持续灌流系统。调节流速至约0.5 mL/s。
- 将记录室连接至抽吸装置。调节抽吸系统,使记录室内液体总体积保持恒定。使用真空泵进行抽吸。
注:保持记录室内体积恒定对于在整个实验过程中维持杂散电容稳定至关重要。
2. 生物材料
注意:使用成年克氏原螯虾 P. clarkii(体长 7-10 cm),处于间蜕皮期且性别不明显的个体。
- 昼夜节律时间
- 在实验开始前一个月,将100只小龙虾维持在12小时光照/12小时黑暗的循环条件下15(白光,2.4 kW/m2)。
注:一个月的时间足以同步小龙虾种群的节律。 - 通过检测五只随机选取的动物的视网膜电图振幅,确定小龙虾种群的昼夜节律时间15。
注:0小时昼夜节律时间(CT 0)表示主观日的开始,i.e.,生物体通常处于活跃状态的时间段16,17,18,19(图3)。小龙虾为夜行性动物,因此在12小时光照/12小时黑暗循环中,其活跃期处于黑暗阶段。
- 在实验开始前一个月,将100只小龙虾维持在12小时光照/12小时黑暗的循环条件下15(白光,2.4 kW/m2)。
- 眼柄分离操作
- 在目标昼夜节律时间,将选定的小龙虾浸入0–4 °C的自来水中,麻醉15分钟。
- 使用精细剪刀从基部切下眼柄。
- 使用剃刀刀片在背侧角膜上切开一个约1 mm2的开口,以进入视网膜。
- 将眼柄置于记录室中央(孔洞以硅胶覆盖),使通向视网膜的开口朝上。
- 将眼柄置于持续黑暗条件下20分钟。
注:20分钟足以使感光细胞完全适应黑暗。
3. 光感受器刺入
- 将微电极与眼柄的纵轴平行放置,使微电极居中对准视网膜位置。使用体视显微镜(10倍)将装置调整至正确配置。
- 通过选择放大器的“桥接模式”11,监测参考电极与记录电极之间的电压差。
- 将电极缓慢下降至灌流液中,随后将其准确置于视网膜正上方。
- 移开显微镜,并将光刺激灯与眼柄的纵轴平行放置。
注意:灯与灌流室之间的距离约为15 cm。 - 缓慢降低微电极,直至检测到电压突然下降。
注意:约−50 mV的电压下降表明已成功刺入一个健康的感光细胞。 - 给予一次测试性闪光刺激(白光,7.2 kW/m2,持续10 µs),以记录感光细胞的感受器电位。
注意:感光细胞的感受器电位为去极化电位,幅度为10–15 mV,持续时间为300 ms(图4)。
4. 电生理记录
- 确保感光细胞完全适应暗环境(参见步骤 2.3)。
- 每 2 分钟给予一次测试光闪光。通过在数据采集软件中选择合适的“episode 间时间”值(120 秒)来自动控制闪光间隔。
注意:2 分钟是感光细胞电反应所依赖的电流完全恢复所需的必要时间。 - 监测静息膜电位,以及感受器电位的幅度和持续时间。当膜电位、感受器电位的幅度和持续时间保持不变时,即可认为感光细胞已完全适应。先前在持续黑暗条件下保存 20 分钟的眼柄(步骤 2.3)通常在约 5 分钟内完成适应。
- 在记录光诱导电流前 2 分钟停止对细胞的刺激。
- 每 2 分钟给予一次测试光闪光。通过在数据采集软件中选择合适的“episode 间时间”值(120 秒)来自动控制闪光间隔。
- 电流记录
- 在数据采集软件中(模拟输出通道部分的 Waveform 设置下),选择“Holding amplitude”并将钳制电压设定为细胞测得的静息膜电位值。
- 选择放大器的 dSEVC 模式。在放大器的 Mode 部分,选择 SEVC 按钮,并将杠杆切换至 Discont SEVC 位置。
- 根据电极响应速度,使用放大器的 Rate Adjust 按钮将切换速率设置为 500–1,000 Hz11。
- 给予一次光闪光,并观察诱发的离子内流。
注意:此即光诱导或转导电流(图 5)。 - 将放大器切换回 Bridge 模式,并通过给予一次光闪光记录感受器电位(参见第 3 节)。确保感光细胞已完全适应暗环境。测量感受器电位的特征(幅度和持续时间),并与初始测量值进行比较。若特征一致,则可认为穿刺的感光细胞为健康细胞。
注意:眼柄切除后,生物样本在接下来的 2 小时内保持活性。
- 双脉冲实验方案:采用双光闪光协议测量脱敏后的恢复过程。
注意:双光闪光协议类似于用于测量电压门控通道失活后恢复的标准双脉冲电压协议20。第一次光闪光引起感光细胞敏感性的暂时改变,第二次闪光用于评估光激活电导的状态。- 给予一对光脉冲。在设定的时间间隔后(从 300 毫秒到 2 分钟)施加第二次闪光。
- 使用数据采集软件以 10 kHz 的采样率对电流进行数字化,并将数据保存以供离线分析11。
注意:软件配置参数表作为补充材料提供。
5. 数据分析
- 光诱导电流的动力学
- 测量三个电流参数:激活潜伏期 L,即从给予光脉冲到电流达到其最大幅度的 10% 所经过的时间(图 5);峰值或最大电流幅度 Ip;以及失敏时间常数 T。通过将电流衰减相拟合至以下公式来测量失敏时间常数(Τ):

其中,A = -I(t=0) 为一正值常数(图 5)。
- 测量三个电流参数:激活潜伏期 L,即从给予光脉冲到电流达到其最大幅度的 10% 所经过的时间(图 5);峰值或最大电流幅度 Ip;以及失敏时间常数 T。通过将电流衰减相拟合至以下公式来测量失敏时间常数(Τ):
- 失敏与恢复
注意:从失敏中恢复的程度通过比值 p2/p1 来评估,其中 p1 为对照电流的相关参数(L、Ip 或 T 之一),p2 为第二次测试电流的对应参数。- 将 p2/p1(L、Ip 或 T 之一)作为脉冲间隔时间的函数作图。
- 根据所选参数,将每张图中的数据点拟合至:
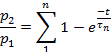
或拟合至:
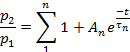
- 使用适当的统计检验方法,确定拟合实验数据所需的指数项数量。
访问受限。请登录或开始试用以查看此内容。
结果
首先,获得螯虾感光细胞典型的受体电位(图4)。随后,施加测试光闪以诱发光传导电流(图5)。阳离子传导电流1在延迟后激活,达到峰值,之后缓慢下降进入一种吸收性失敏状态,并从此状态中缓慢恢复。
可以合理推测,光诱导电流的长潜伏期 L(数十毫秒)取决于光触发的生化事件,这些事件涉及G蛋白通路。峰值电流幅度 Ip 取决于可被打开的通道所占的比例,以及电流激活与失活的相对速率。后者通过衰减时间常数 T 来评估。
另一方面,L的恢复应与生化光转导级联反应的恢复速率相关;Ip 恢复既依赖于负责离子传导的蛋白质自身的构象变化,也依赖于生化光...
访问受限。请登录或开始试用以查看此内容。
讨论
小龙虾因其能够在非自然条件下存活而被证明是一种极佳的模型生物。易于获取 体内 和 体外 电生理学分析。此外,甲壳动物是比较时间生物学领域神经生物学研究的理想类群21.
本文展示了利用细胞内记录技术研究小龙虾感光细胞光激活传导电流的脱敏与恢复过程。然而,我们认为只要能够接触到感光细胞,该技术同样可适用于其他无脊椎动物视觉系统的研究。
为了获得可靠的实验结果,需要注意方案中的一些关键步骤,包括通过将所有设备接地来消除电噪声,制作具有足够细尖端的电极,以及在双脉冲方案开始前确保感光细胞已完全暗适应。
尽管细胞内记录存在诸如损伤细胞膜等局限性,但仍有可能进一步获得关于小龙虾(或其他动物)感光细胞电信号背后生物物理机制的详细信息。与其他无脊椎动物感光细胞类似,小龙虾感光细胞中,光刺激会引发由阳离子电导激活所产生的分级去极化,即感受器电位。光激活的电导在经历一段延迟或潜伏期后开始出现,达到最大幅度后,...
访问受限。请登录或开始试用以查看此内容。
披露
我们没有需要披露的内容。
致谢
本工作由 DGAPA-UNAM IN224616-RN224616 基金资助。作者谨此感谢墨西哥国立自治大学医学院研究部科学论文翻译部负责人Josefina Bolado女士,对本文英文稿进行语言编辑。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Axoclamp2A | Axon Instruments Inc | 放大器 | |
| Digidata 1200 接口 | Axon Instruments Inc | 数字转换器 | |
| 示波器 TDS430A | Tektronix | 模拟示波器 | |
| 光刺激器 PS33 Plus | Grass | 光源灯 | |
| 拉制仪 PC-100 | Narishige | 微电极拉制仪 | |
| 拉制仪 P-97 | Sutter Instruments | 微电极拉制仪 | |
| 玻璃毛细管 Kimax-51 | Kimble Products | 34502 | 0.8, 1.10, 100 mm |
| HS-2 前置放大头stage | Axon Instruments Inc | 前置放大头stage | |
| 显微操作器 MX-4 | Narishige | 机械式显微操作器 | |
| 体视显微镜 | Zeiss | 显微镜 | |
| pClamp | Axon Instruments Inc | 用于 Digidata 1200 接口的数据采集软件 | |
| Clampfit | Axon Instruments, Inc | 与 pClamp 关联的分析软件 | |
| Origin | OriginLab Corp. | 数据分析与绘图软件 | |
| 氯化钠 | Sigma | S7653 | >99.5% |
| 氯化钾 | Sigma | P-9333 | 最低纯度 99% |
| 硫酸镁 | Sigma | M7506 | 最低纯度 99.5% |
| 氯化钙 | Sigma | C5080 | 最低纯度 99.0% |
| HEPES | Sigma | H7523 | >99.5% |
| 氢氧化钠 | Sigma | S8045 | 98.00% |
| 次氯酸钠溶液 | Sigma | 425044 | 有效氯含量 10-15% |
参考文献
- Barriga-Montoya, C., Gómez-Lagunas, F., Fuentes-Pardo, B. Effect of pigment dispersing hormone on the electrical activity of crayfish visual photoreceptors during the 24-h cycle. Comp. Biochem. Physiol. A Comp. Physiol. 157 (4), 338-345 (2010).
- Barriga-Montoya, C., de la O-Martínez, A., Fuentes-Pardo, B., Gómez-Lagunas, F. Desensitization and recovery of crayfish photoreceptors. Dependency on circadian time, and pigment-dispersing hormone. Comp. Biochem. Physiol. A Comp. Physiol. 203, 297-303 (2017).
- Wickenden, A. D. Overview of electrophysiological techniques. Curr. protoc. pharmacol. 11, 1-17 (2014).
- Brette, R., Destexhe, A. Intracellular recording. Handbook of Neural Activity Measurement. , 44-91 (2012).
- Cummins, D., Goldsmith, T. H. Cellular identification of the violet receptor in the crayfish eye. J. Comp. Physiol. 142 (2), 199-202 (1981).
- Eguchi, E. Rhabdom structure and receptor potentials in single crayfish retinular cells. J. Cell and Comp. Physiol. 66, 411-430 (1965).
- Nosaki, H. Electrophysiological study of color encoding in the compound eye of crayfish, Procambarus clarkii. Z. vergl. Physiologie. 64 (3), 318-323 (1969).
- Miller, C. S., Glantz, R. M. Visual adaptation modulates a potassium conductance in retinular cells of the crayfish. Vis Neurosci. 17 (3), 353-368 (2000).
- Hamill, O. P., Marty, A., Neher, E., Sakmann, B., Sigworth, F. J. Improved patch-clamp techniques for high-resolution current recording from cells and cell-free membrane patches. Pflugers Arch. 391 (2), 85-100 (1981).
- Lishko, P., Clapham, D. E., Navarro, B., Kirichok, Y. Sperm patch-clamp. Methods Enzymol. 525, 59-79 (2013).
- Finkel, A. Axoclamp-2A microelectrode clamp theory and operation. Axon Instruments, Inc. , (1990).
- Single-channel recording. Sakmann, B. , Springer Science & Business Media. (2013).
- Van Harreveld, A. A physiological solution for freshwater crustacea. Proc. Soc. Exp. Biol. Med. 34 (4), 428-432 (1936).
- Oesterle, A. pipette cookbook. , Sutter Instruments. Novato, CA. 97(2008).
- Fuentes-Pardo, B., Ramos-Carvajal, J. The phase response curve of electroretinographic circadian rhythm of crayfish. Comp. Biochem. Physiol. A Comp. Physiol. 74 (3), 711-714 (1983).
- Pace-Schott, E. F., Hobson, J. A. The neurobiology of sleep: genetics, cellular physiology and subcortical networks. Nat. Rev. Neurosci. 3 (8), 591-605 (2002).
- Pittendrigh, C. S. On the mechanism of the entrainment of a circadian rhythm by light cycles. Circadian Clocks. Aschoff, J. , North Holland, Amsterdam. 277-297 (1965).
- Pittendrigh, C. S. Circadian systems: entrainment. Handbook Behavioral Neurobiology Biological Rhythms. Aschoff, J. , Plenum, New York. 94-124 (1981).
- Vitaterna, M. H., Takahashi, J. S., Turek, F. W. Overview of circadian rhythms. Alcohol Res. Health. 25 (2), 85-93 (2001).
- Hille, B. Ion channels of excitable membranes. 507, Sinauer. Sunderland, MA. (2001).
- Dircksen, H., Strauss, J. Circadian clocks in crustaceans: identified neuronal and cellular systems. Front Biosci. 15, 1040-1074 (2010).
- Terakita, A., Hariyama, T., Tsukahara, Y., Katsukura, Y., Tashiro, H. Interaction of GTP-binding protein Gq with photoactivated rhodopsin in the photoreceptor membranes of crayfish. FEBS Lett. 330, 197-200 (1993).
- Terakita, A., Takahama, H., Hariyama, T., Suzuki, T., Tsukahara, Y. Light regulated localization of the beta-subunit of Gq-type G-protein in the crayfish photoreceptors. J Comp Physiol A. 183 (4), 411-417 (1998).
- Terakita, A., Takahama, H., Tamotsu, S., Suzuki, T., Hariyama, T., Tsukahara, Y. Light-modulated subcellular localization of the alpha-subunit of GTP-binding protein Gq in crayfish photoreceptors. Vis Neurosci. 13 (3), 539-547 (1996).
访问受限。请登录或开始试用以查看此内容。
重印与许可
