本文介绍了一个将大范围饮食限制与基因表达及寿命关联起来的研究框架。我们描述了实施大范围饮食限制的实验方案,以及在此条件下对基因表达进行定量成像的技术流程。此外,我们还概述了用于揭示参与食物感知的遗传回路中潜在信息处理特征的计算分析方法。
方法文章
在 C. elegans 中通过基因表达水平编码的信息量化:广泛范围饮食限制下寿命调控过程中的研究
* These authors contributed equally
本文内容
摘要
摘要
感觉系统使动物能够检测、处理并响应其环境。食物丰度是一种环境线索,对动物的生理和行为具有深远影响。最近,我们发现秀丽隐杆线虫(Caenorhabditis elegans)的寿命受食物丰度调控的机制比以往所认知的更为复杂。寿命对食物水平变化的响应性由特定基因决定,这些基因通过调控神经回路内的信息处理发挥作用。我们的研究框架结合了遗传学分析、高通量定量成像和信息论方法。本文描述了如何利用这些技术来表征任何在广谱饮食限制中具有生理相关性的基因。具体而言,该工作流程旨在揭示目标基因如何在广谱饮食限制条件下调控寿命;继而确定该基因的表达如何随食物水平变化;最后,对基因表达所传递的关于环境中食物丰度的信息量进行无偏量化。当在神经回路背景下同时检测多个基因时,该工作流程可揭示该回路所采用的信息编码策略。
引言
所有生物都必须能够感知并响应环境变化,以确保其生存。在动物中,神经系统是感知和转导环境信息的主要系统,并协调生理反应以应对可能影响生物体生存的任何变化1。食物丰度是一种在多种情境下被广泛研究的环境信号,它不仅调控与进食相关的行为(如觅食行为)2,还影响动物的寿命。食物丰度变化对寿命的调节现象被称为饮食限制(dietary restriction, DR),该现象在进化上具有广泛的保守性3。
线虫 秀丽隐杆线虫 是研究基本生物学问题的有力模型系统。已开发出大量技术用于操控线虫基因组,例如RNAi和 体内 基因编辑技术。线虫体型微小且具有光学透明性,也使其适用于 体内 转录和翻译荧光报告基因的成像,以及微流控等高通量技术的应用4这些工具可联合用于研究神经回路如何调控动物行为。
C. elegans 是一种以细菌为食的生物,已有多种方法被发表,可通过调控细菌浓度来精确控制食物丰度5,6,7,8。在 C. elegans 研究领域中,限制饮食(DR)已在两种不同背景下被研究。第一种可称为“经典限制饮食”,因其模拟了其他生物在食物水平降低时所表现出的反应变化。在此背景下,将食物丰度从自由摄食(ad libitum)水平逐步降低,可使寿命逐渐延长,直至达到最佳值;超过该点后,进一步减少食物将导致寿命缩短6,7,9。第二种研究 C. elegans 限制饮食的背景是饮食剥夺,即通过完全去除任何细菌性食物来源来延长线虫的寿命10,11。在 Entchev 等(2015)12 的研究中,我们表明,由这两种不同范式所导致的限制饮食复杂性,可在我们称之为“宽范围限制饮食”(broad-range DR)的背景下同时进行研究。通过采用下述实验方案,我们鉴定出一类新的与限制饮食相关的基因,这类基因可双向调节生物体对食物丰度的寿命响应,并参与感知食物的神经回路12(图 1)。
动物对环境变化的响应整合了一系列生物学过程,将感觉系统与复杂的调控相互作用联系起来,从而将环境信息传递给生理系统。尽管这种"信息流"的具体机制细节常常未知,但可以利用遗传学工具深入了解这种复杂计算是如何在不同生物组分之间组织的。在我们近期的研究中,我们发现daf-7和tph-1通过一个感知食物的神经回路参与传递有关食物丰度的环境信息,从而调控秀丽隐杆线虫(C. elegans)的寿命12,13。通过应用信息论的数学框架14,我们能够量化在不同食物条件下,特定神经元中daf-7和tph-1基因表达变化所表征的环境信息量(以比特为单位)。由此,我们进一步揭示了该神经回路所采用的信息编码策略及其遗传调控机制(图2)。
在以下实验方案中,我们概述了研究在特定神经元中表达的目的基因的功能及其如何参与将环境中的食物信息传递至寿命调控过程的步骤。总体而言,我们的研究框架分为两个实验方案和一个计算分析流程。在实验方面,关键是要获得目的基因的突变体,以便在宽范围饮食限制(DR)条件下进行检测。同时还需要可靠的转录报告系统,以量化目的基因在不同食物水平下的表达量。为了能够实施本方法中讨论的计算分析,数据集必须具有足够的规模,以提供对表达分布的有意义估计。尽管我们提供了分析所用的模板源代码,使用者仍需熟悉信息论的相关术语,这些术语在我们的计算框架中被广泛使用。源代码采用 R 和 C++ 编写,因此应用这些代码还需具备一定的编程能力。
方案
1. 一般线虫培养用细菌培养物和培养板的制备
- 在250 mL玻璃瓶中配制100 mL LB(Luria-Bertani)培养基,并通过高压灭菌法进行灭菌。
- 用单个大肠杆菌(Escherichia coli)OP50菌株菌落接种该瓶培养基,在37 °C条件下过夜培养,随后将菌种培养物保存于4 °C直至使用。
- 配制5 L无菌线虫生长培养基(NGM)琼脂15,并将12 mL分装至无菌的6 cm塑料培养皿中。
- 让琼脂过夜凝固,随后保存于4 °C直至使用。
- 至少在使用前3天,用225 μL冷藏的OP50菌液接种NGM平板。将平板保存于20 °C直至使用。
2. 实验用细菌培养物及稀释液的制备
- 在2 L锥形瓶中制备两份500 mL LB培养基,通过高压灭菌进行灭菌。
- 在每个锥形瓶中接种一株OP50菌落,并在 37 °C 以 200 rpm 振荡约 14 小时。
- 在培养物中加入抗生素链霉素,使其终浓度达到 50 μg/mL继续振荡30分钟,温度保持在 37 °C 然后将烧瓶置于冰上15分钟。
- 将每种培养物各450 mL转移至单独的无菌离心管中(理想情况下使用500 mL容量的离心管,以避免分割培养物)。将剩余的培养物保留在冰上,用于后续测定细菌浓度。
- 以 4500 x g 在设定为4°C的冷藏离心机中 4 °C 孵育25分钟。弃去上清液,将瓶子置于冰上保存。
- 稀释 100 μL 每个烧瓶中剩余培养物的 900 μL 无菌LB培养基。取1 mL无菌LB培养基用于校准分光光度计零点,然后测定OD600 每种培养物十倍稀释液的OD600 若过夜培养物10倍稀释液的OD值为0.28,则该培养物的实际OD值600 2.8。
- 使用浓度为 1.12 x 10 的细菌工作液10 OP50 细胞/mL,相当于 OD600 56。因此,以示例OD600 从450 mL培养液中收集的沉淀物,用20 mL重悬,重悬液来自上方的2.8th 原始体积,此处为22.50 mL。用添加链霉素的无菌S基础溶液重悬细菌 50 μg/mL (SB + 链霉素)
- 将沉淀重悬于适当体积的无菌SB + strep中。
- 根据表1中列出的稀释倍数,使用SB + strep对工作液进行系列稀释,制备实验中后续使用的所有浓度。
3. 寿命实验的设置
注意:寿命测定实验在6 cm的组织培养皿中进行,培养皿中加入12 mL含有链霉素和羧苄青霉素的NGM琼脂(NSC),两种抗生素的终浓度均为 50 μg/mL这些组织培养板非常适合在无菌或极低细菌浓度条件下进行寿命测定实验,因为线虫不易粘附在培养板壁上,也减少了干燥的风险。使用两种不同的抗生素可以防止OP50菌株产生耐药性,这对于控制培养板上的细菌浓度至关重要。此外,通过抗生素灭活细菌,我们最大限度地减少了病原体感染对线虫寿命造成的影响。16这使得我们能够仅考虑这些实验中与食物相关的细菌浓度组分。许多 秀丽隐杆线虫 衰老研究中,常在NGM平板中添加化学物质氟脱氧尿苷(FUdR)以使成虫不育。然而,使用FUdR可能存在一定问题,因其可能在寿命测定实验中引发多种干扰因素17,18,19,20,21. 恩切夫等人(2015)12 通过将L4幼虫暴露于RNAi处理,规避了这一问题 egg-522,23,通过抑制受精卵卵壳的形成来阻断卵细胞向胚胎的转变 秀丽隐杆线虫 卵母细胞,导致其死亡。
- 培养 秀丽隐杆线虫 将在接种的NGM平板上检测的菌株 20 °C让平板饥饿一段时间,以确保所有动物均以一致的方式生长,并可能消除发育条件的跨代效应。
- 将饥饿的L1幼虫通过“切块”法转移到新的接种NGM平板上:使用无菌解剖刀从饥饿平板上切取一小块琼脂(5 mm × 5 mm),并将其放置于新平板上。该操作在本领域中称为“chunking” 秀丽隐杆线虫 科研界15将线虫培养至L4阶段。随后将每种品系的五只L4幼虫分别转移至已接种的NGM平板上,并置于 20 °C这些动物代表P0代。
- 使用P0代的L4子代建立F1代。将野生型N2品系的F1代L4幼虫分别接种到30个已铺有食物的NGM平板上。
注意:对于突变菌株,所需培养皿的数量取决于其生长速率。例如, daf-7(ok3125) 动物在发育过程中会经历一个短暂的dauer期停滞 20 °C因此,该品系产生的L4幼虫数量少于N2野生型线虫的培养皿。 - 为了补偿这种差异,设置 daf-7(ok3125) 比N2平板提前一天接种,并且接种数量更多,一个合适的工作比例是3:1。
- 将F1代亲本同步化的L4期子代转移至添加了1 mM IPTG的NGM平板上 50 µg/mL 羧苄青霉素(RNAi 平板),已接种 225 µL 表达靶向 dsRNA 的 HT115 细菌 egg-5 基因并保存于 20 °C 孵育24小时。每次实验每种品系至少需要360条线虫,每块培养板饲养密度为15只动物。
- 之后 egg-5 RNAi 处理,将线虫转移至铺有 NSC 的 RNAi 平板 225 µL 浓度为 2 x 10 的链霉素处理的 OP509 细胞/毫升(表1)再继续培养 24 小时 20 °C为避免在此步骤及后续所有转移过程中对线虫造成物理损伤,应使用非常细且轻微弯曲的线虫挑取工具,从线虫下方轻轻将其挑起。将挑取工具浸入液体中,使线虫漂浮脱离工具 10 µL 将一滴含有SB和链霉素的液体置于新培养皿表面。
- 第二天,将线虫重新分配到代表表1中所列各食物浓度的NSC平板,以及一组不含细菌的NSC平板。所有NSC平板均接种 225 µL 相应浓度的细菌,并将无菌的NSC平板接种细菌 225 µL SB + 链霉素。以每板15只线虫的密度培养,每种菌株每种食物条件至少准备四块平板。将平板转移至目标实验温度下培养。
- 将线虫转移至新鲜的NSC平板,平板需接种适当浓度的食物,具体操作按照下述时间表进行 表2.
- 使用金属探针轻柔触碰动物以评估其运动能力,无反应者记为死亡。在每次传代时点评估动物死亡情况,最后一次传代后每日进行死亡评估。
4. 设置成像实验
注意:本节所述步骤足以针对特定温度下的一个实验食物条件,为每种品系产生足够的线虫用于成像。该方案可根据每天需要成像的条件数量进行相应放大或缩小。然而,在实验设计时应注意确保时间框架合理,并且在成像当天,不同品系间的动物年龄差异不超过12小时。强烈建议所成像的转录报告基因品系为单拷贝转基因品系,因为这更能真实反映基因的天然调控状态。下文所述并由表3总结的方案,还提供了一种高效的方法,用于获得大量同步且年龄匹配的品系群体,这些群体可应用于其他实验流程。
- 在成像实验中,将动物培养于10 cm的经处理的组织培养板上,以获得比寿命测定更高的线虫密度(每板约100只动物)。
- 在10 cm培养板中加入30 mL NGM琼脂,并以十字形排列方式接种5份各225 µL的冷藏OP50菌液。
5. 报告基因菌株的初始培养
- 在20 °C下,将用于检测的C. elegans菌株培养于接种NGM平板上。让平板培养至食物耗尽,以确保所有线虫均在一致的条件下生长,并可能消除发育条件带来的跨代效应。
- 将饥饿的L1幼虫转移至接种NGM平板,培养至其发育至L4阶段。将每种菌株的三个L4幼虫转移至两个接种NGM平板,于20 °C培养。这些个体代表P0代。
- 利用P0代的L4子代建立F1代。将野生型报告菌株的F1代L4幼虫接种至4个接种NGM平板上。对于突变菌株,所需平板数量取决于其生长速率。以daf-7(ok3125)为例,该遗传背景下的报告菌株需要三倍数量的平板,并且需比野生型报告菌株提前两天设置,以校正生长速率的差异。
6. 报告基因品系的卵收集与同步化
注意:某些感兴趣的基因在 秀丽隐杆线虫 衰老研究领域的许多基因突变会导致动物出现生长和产卵缺陷,这使得获得大量不同基因型的同步化动物群体变得更加困难。例如, daf-7(ok3125) 突变体相较于野生型N2品系表现出严重的产卵缺陷。因此,为了获得足量且同步的L4期幼虫用于定量成像实验,需要采用比手工挑取线虫更为可靠的方法。为此,对转录报告基因品系的成年 gravid 个体采用次氯酸钠(NaClO)/氢氧化钠(NaOH)溶液处理,以裂解虫体并释放其内部的卵,该过程在研究中通常称为“漂白”(bleaching) 秀丽隐杆线虫 科研界15.
- 考虑不同菌株之间的生长速率差异,计算每种菌株平板的收获和漂白时间。有关野生型和daf-7(ok3125)报告菌株漂白时间的示例,请参见表3。
- 在适当的时间,使用15 mL SB缓冲液将特定菌株的线虫从平板上依次冲洗下来,并收集至无菌的15 mL离心管中。让线虫自然沉降后,将液体体积调整为7 mL。
- 向含有成年雌雄同体线虫的离心管中加入2 mL 5% NaClO和1 mL 5 M NaOH。在室温下轻轻摇动混合物,时间不超过3分钟。NaClO会杀死细菌和线虫,而NaOH则使线虫裂解,释放其中包含的受精卵。只要处理时间较短,胚胎周围的甲壳素卵壳可保护胚胎免受试剂影响。3分钟孵育后,将离心管涡旋振荡约30秒,以进一步促进线虫残体的破碎。
- 3分钟孵育结束后,在1,000 × g条件下离心1分钟,使卵沉淀。使用连接真空泵的无菌玻璃移液管吸除大部分上清液,每管保留约0.5 mL,以免扰动沉淀中的卵。
- 用9.5 mL SB缓冲液重悬沉淀,然后重复离心和重悬步骤两次,使卵总共经过三次SB缓冲液洗涤。
- 最后一次洗涤后,通过离心收集卵,弃去上清液至每管仅剩0.5 mL。将卵重悬于剩余的0.5 mL SB缓冲液中,然后分别取100 µL接种到三个已接种细菌的10 cm NGM平板上。将每份100 µL液体均匀分布于每个平板的五个细菌菌斑区域。对于野生型菌株,每个平板上的卵接种密度不应超过200个。
- 将平板置于20 °C培养48小时,以获得高度均一的L4期幼虫群体。对于生长延迟表型的菌株,建议尽可能多地接种卵,并延长孵育时间。例如,将含有daf-7(ok3125)的报告菌株在20 °C下培养约64小时,以使卵孵化并发育至L4期。
7. 使用 egg-5 RNAi 处理报告基因菌株
- 使用 15 mL SB 液体依次冲洗三个培养皿上的线虫,并将液体收集至无菌的 15 ml 离心管中。让 L4 幼虫自然沉降,然后吸除除约 0.5 mL 外的所有上清液。在野生型报告基因品系中,此步骤可去除所有小于 L4 阶段的幼虫。在突变体背景下,此步骤有助于去除停滞发育的幼虫,例如 daf-7(ok3125) 突变体中的持存幼虫(dauer)。
- 用 9 mL SB 重悬线虫。再次观察 L4 幼虫的沉降速度,待大部分 L4 幼虫沉淀后,吸除除约 0.5 mL 外的所有上清液。重复此过程一次。当大多数 L4 幼虫沉降后,再次吸除除约 0.5 mL 外的所有液体。
- 向含有 L4 幼虫的液体中加入 10 µL 添加了 0.1% Pluronic F-127 的无菌 S 基础培养液(SB + Plu)。该成分作为表面活性剂,防止幼虫粘附在塑料移液吸头的内壁上。
- 使用 P200 低吸附移液吸头轻轻重悬幼虫,然后将 150 µL 悬液分装至三个 10 cm 的 RNAi 培养皿中,每个培养皿预先接种了 5 × 225 µL 的 egg-5 RNAi 细菌。确保线虫均匀分布在全部五个细菌菌斑上。
- 待液体完全渗入琼脂后,手动挑除洗涤步骤未能去除的非 L4 阶段幼虫。随后将培养皿置于 20 °C 培养 24 小时。
8. 广谱DR的启动
注意:经过 24 小时 egg-5 RNAi 处理后,最初接种到培养板上的 L4 幼虫将发育为 1 日龄成虫。
- 在此阶段,挑除之前人工去除步骤中遗漏的任何幼虫,仅在平板上保留1日龄成虫。
- 对于每个品系,用15 mL无菌SB + strep将三个平板上的1日龄成虫洗入一个15 mL离心管中。让线虫自然沉降,然后吸除上清液,仅保留0.5 mL。加入9.5 mL SB + strep重悬线虫,并重复沉降和洗涤步骤。
- 最后一次洗涤后,让线虫自然沉降,吸除上清液,仅保留0.5 mL。加入10 µL SB + Plu,使用P200移液器枪头轻轻重悬幼虫,然后将100 µL分装至已接种5 × 225 µL细菌(浓度为2 × 10⁹ 个细胞/mL)的NSC平板上。
- 将100 µL液体均匀分布于全部五个细菌菌苔上。在显微镜下估算平板上存在的动物数量:目标为平板上含有100–150条线虫。
- 确定达到此范围内线虫密度所需的液体体积,然后将相应体积分装至另外两个平板上。调整第一个平板上的线虫数量,使其也处于该范围内,随后将所有平板在20 °C条件下储存24小时。
- 次日,收集2日龄成虫,并使用第2步和第3步所述方法将其分配至新制的NSC平板上,平板已接种所需实验浓度的食物(表1)。待液体完全渗入琼脂后,将平板转移至目标实验温度下培养24小时。
- 次日,收集3日龄成虫,并使用第8.3和8.4步所述方法将其分配至新鲜NSC平板上,平板接种相同实验浓度的食物。待液体完全渗入琼脂后,将平板重新放回实验温度下培养48小时。
- 收集5日龄成虫,并使用第8.3和8.4步所述方法将其分配至新鲜NSC平板上,平板接种相同实验浓度的食物。待液体完全渗入琼脂后,将平板重新放回实验温度下培养24小时。
9. 报告基因菌株的微流控成像
- 成年第6天,使用定制的微流控平台对动物进行成像24,25。从三个培养皿中物理挑取动物,并悬浮于含有4.5 mL SB + strep的5 mL冻存管中。
- 待线虫沉降后,吸除上清液至仅剩约0.5 mL,再将动物重悬于4 mL SB + strep中。此洗涤步骤可去除可能干扰成像的过量细菌。通过压力驱动流动将线虫引入定制的微流控装置24,25。在装置内,单个线虫被引导进入成像通道,并由片上压力驱动阀门26控制的门控结构捕获,整个过程由定制软件调控。
- 当线虫以头部朝前的方式被捕获在成像通道中后,使用配备40X油镜(1.3 NA)和相机的标准落射荧光显微镜,采集包含50个层面、每层间隔2 µm的荧光z轴序列图像。利用发射光 splitter 同时采集各转录报告基因的红色和绿色荧光图像,并存储用于后续分析。图像采集过程由定制软件自动完成。
- 使用定制的MATLAB脚本27(可访问 https://github.com/meizhan/SVMelegans 获取)自动处理图像。将z轴序列图像导入MATLAB,分析以识别神经元对及其在成像平面中的位置。随后计算最大投影图像,并采用阈值分割算法定位各个荧光标记的细胞。基于细胞在虫体头部的相对距离和位置关系进一步确认细胞身份。
- 为定量报告基因的荧光强度,从z轴序列图像中提取每个细胞位置周围的三维体积区域。对其中亮度最高的固定数量像素的荧光强度进行积分,确保涵盖所有情况下的完整细胞区域。
- 为消除每只动物因实验条件特异性或品系特异性引起的肠道自发荧光干扰,通过估算靠近肠道的神经元对(ADF和ASI)周围体积内荧光强度分布的众数,计算其背景荧光强度。将该背景值从积分荧光强度中扣除,得到最终定量结果。
10. 数据组装
注意:图像处理软件分析的所有神经元的荧光强度将合并到过滤后的表达数据文件(FED)中,用于估计基因表达的分布谱型(模板 R 和 C++ 脚本可在 https://github.com/giovannidiana/templates 获取)。
- 手动检查每张处理后的图像,以确认所有细胞的识别是否正确。对于细胞识别错误的图像,必须记录在排除文件中。在 Diana 等(2017)13 的研究中,排除文件是一个二进制表格,其中“0”表示识别正确,“1”表示识别错误。该表格的行数等于成像线虫的数量,每一列对应一个被成像的细胞(例如 ASI、ADF 和 NSM)。
- 生成 FED 文件:
- 运行 Bash 脚本“gen_data+time”,以生成细胞特异性文件,将来自每条成像线虫的表达值进行整合,并利用排除文件进行筛选。对于图像处理软件生成的每个文件夹,该 Bash 脚本会读取注释文件 _EXP.txt 以提取实验条件,并读取排除文件 _X.csv 以仅选择正确识别的神经元。表达值从文件 _data_.csv 中读取。
- 将所有文件合并为“FED_split.dat”,并按实验批次代码、线虫标签和细胞身份进行排序。
- 运行“sort”程序(C++ 程序,用法:./sort FED_split.dat FED_merged.dat),筛选出每个细胞中荧光值非零的条目,并将其合并为 FED_merged.dat 中的单一行。
11. 编码信息的估计
注意:以下步骤描述了如何量化由一组基因表达所编码的特定环境条件的信息。在 Diana et al. (2017)13 的研究中,分析了环境中食物丰度所编码的信息,但该方法本身适用于任意离散数量的环境状态。量化信息熵或冗余度等信息论变量的关键在于获得在特定环境刺激下神经响应的联合概率分布。为实现此类估计,必须对线虫群体中的响应进行充分采样。高斯分布可由相对较小的样本估计得出;然而,为量化可靠密度估计所需的适当样本量,了解基因表达分布的预期形状至关重要。由于不同实验重复之间不可避免地存在变异性,必须验证同一实验多次重复所得分布的中心值未发生系统性偏移,且表达分布的任何统计特征在各次实验间均未发生显著改变。若实验间变异性与单次实验内部变异性相当,则必须平衡实验重复次数与每次实验中线虫的数量,以平均化影响实验间变异性的环境或生物学因素。对这些因素采样不足可能严重偏倚信息论分析结果。
- 由于R脚本“code3D.R”提供了基于文件“FED_merged.dat”生成三维密度图的模板,需根据具体的FED文件头格式修改该模板。“HeaderNames”列表表示FED文件中各字段的名称,而“RONames”是读出值的列表。该脚本使用R软件包“ks”28,29在超立方体网格中估计多变量分布,每个维度使用 GS 个区间(bins),将每种读数的数据集最小值与最大值之间的范围进行分割。当内部变量“group”设为 0 时,所有数据均用于密度估计。当“group”标签取值为 1 至 5 时,数据集被划分为 5 个互不相交的子集,并通过排除其中 1 个子集后剩余的 80% 数据来估计表达密度。该功能后续用于估计不确定性。
注意:code3D.R 的使用方法:Rscript code3D.R <食物> <输出文件夹> <标签> <组> <分馏> 其中GT表示基因型,food表示环境条件,outfolder为用于存储分布结果的预先存在的文件夹,label为文件名前缀,frac为所用数据集的比例。 - 针对每种环境条件,使用不同的网格大小 GS 生成多变量分布例如 20、30、40 个区间)。为了降低计算负荷,在更高分辨率不会显著改变信息估计结果的情况下,应优先选择较小的 GS 值。基因表达分布数据将写入文件夹中 <输出文件夹> 运行 code3D.R 时指定为单列文本文件,文件名结构 <标签>__<食物>_GS组<组>.dat
注意:上述步骤提供了条件概率分布的估计值 其中 g 表示所有读出值的向量,f 表示环境条件。然而,为了计算基因表达与环境之间的互信息30,31.

我们需要输入的分布 同时也决定了(输入)平均基因表达水平
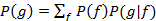 当输入分布不可直接获得时,可用于表征编码特性的有意义的量是信道容量,其可通过在所有可能的输入分布上最大化互信息而得到。
- 利用基因表达分布,应用Arimoto-Blahut算法32 用于估计系统信道容量及最大化信息的环境输入分布的算法。该算法的一个实现示例见C++程序“Ccap3D.cpp”,该程序用于分析Diana等(2017)中研究的三维基因表达编码。13例如:若从80%的数据(第3组)中获取基因型GT123的分布,网格大小为30,并以前缀标签“PDF”存储在目录“./pdf/”中,则计算GT123背景所编码信息的命令为:./Ccap3D GT123 pdf PDF 30 3
注意:系统所编码信息的估计值受多种不确定性来源的影响,包括密度估计算法的选择和样本量偏差。应使用不同的密度估计方法重复步骤11.1–11.2,以评估每种算法引入的系统性偏差的大小。 - 为评估样本量带来的不确定性,使用1到5之间的分组重新计算步骤11.1–11.2中的信息。这五次对80%数据的独立抽样结果的变异性将反映样本量对信息估计的影响。
- 使用逐步增加的数据比例(如步骤5所示),按照步骤11.1–11.2计算信息量,以校正样本量偏差(Jack-knife法)33.
12. 冗余度、噪声与信号相关性的计算
- 利用从最大信息估计中获得的最优输入分布,计算每个神经元 N 的输入与基因表达响应之间的互信息
 。C++ 源文件 "GetMI1D.c" 是一个从联合概率分布中获取边缘互信息的示例程序。
- 通过将上述得到的每个神经元的互信息相加,再减去信道容量,计算冗余度。
- 计算“打乱”信息项
 13,34。模板 C++ 源文件可在 "GetShuffle.c" 中找到。
- 利用“打乱”项计算信号相关性和噪声相关性。对于信号相关性,有
 ;对于噪声相关性,有
 。
- 通过多次对 80% 数据进行采样并计算标准差,获得冗余度、噪声相关性和信号相关性的不确定性,方法同前一节中总信息的处理(第 11.3 步)。
结果
通过将目标基因的突变体与野生型 N2 品系进行寿命实验对比,可以确定这些基因是否在宽范围饮食限制(DR)的食物响应中发挥作用。野生型的响应应与图1A中所示的响应相似。若突变体对该响应产生改变,且在不同食物条件下表现出非均一效应,则表明这些基因影响了线虫正确响应食物丰度变化的能力,此时有必要进一步研究这些基因在宽范围饮食限制下的表达响应。然而,如果突变体的寿命响应与野生型相比无显著差异,则说明这些基因在平均寿命水平上不参与介导宽范围饮食限制的作用。若突变导致整个寿命响应发生均匀偏移,则表明这些基因对寿命具有食物非依赖性的影响。这并不排除目标基因的表达本身可能受食物调控的可能性;在此情况下,这些基因所携带的信息并未传递至寿命表型。
该实验方案的下一步是确定在宽范围饮食限制(DR)条件下,目的基因的表达水平如何发生变化。在图1B中,我们通过daf-7转录报告基因在ASI感觉神经元中对食物水平变化的响应来说明这一点。daf-7(-)突变体中,该转录报告基因的表达响应发生改变。如果目的基因确实在寿命层面上对食物有响应,则可以预期其表达水平也会随食物变化而改变。相应地,在突变体背景下,转录报告基因应对宽范围饮食限制表现出改变的表达模式。然而,也有可能在野生型背景下,目的基因的转录报告基因在表达上未显示出任何食物响应性变化。在这种情况下,这可能提示存在转录后调控效应,超出了本实验方案的范围。
在 Diana 等人(2017)的研究中13,我们提取了表达值以 daf-7 在 ASI 和 tph-1 在 ADF 和 NSM 中。 图2A我们展示了在给定食物水平下 ASI 和 ADF 中表达分布的估计方法。通过对单个线虫图像获取多个读数,我们不仅能够分析每个神经元独立编码的信息量,还能分析整个神经回路的组合信息图2B-2C)。结合这两种信息论度量方法,可从神经元传递食物相关信息所采用的编码策略角度对系统进行表征。通过计算每个神经元的互信息之和,并减去考虑回路组合读数时获得的联合互信息(即信道容量),即可得到该回路中的冗余量。若该差值为正值,则表明编码策略具有冗余性,因为各部分的累积信息大于整个回路实际编码的信息;反之,若差值为负值,则反映编码策略具有协同性,因为整体编码的真实信息大于其各组成部分之和。图2B)。可通过比较不同基因型之间的信息与冗余,探究基因调控可能存在的高阶作用,例如在 Diana 等 (2017)13 其影响 daf-7 突变将编码策略从冗余转变为协同(图2C-2D).

图 1:在宽范围饮食限制下寿命和基因表达的响应。(A)野生型 N2 品系的平均寿命(黑线)对宽范围饮食限制表现出复杂的响应模式。daf-7 基因缺失突变体(红线)中的这种响应幅度显著减弱。误差条表示均值的标准误,数据来自 Entchev et al.(2015)12 的合并结果。(B)在野生型背景下,daf-7 基因转录报告系统的平均表达水平(黑线)也对宽范围饮食限制表现出复杂的非单调响应。而在 daf-7(-) 遗传背景下,该转录报告系统的表达显著降低,且对食物水平变化的响应极小。误差条表示均值的标准误,数据来自 Entchev et al.(2015)12 的单次实验结果。请点击此处查看该图的放大版本。

图 2: 计算方法。(A)使用 R 软件包“ks”在 30 × 30 网格维度下获得的 ADF 中 tph-1 表达和 ASI 中 daf-7 表达的二维密度估计示意图。(B)ADF、ASI 和 NSM 神经元中 tph-1 与 daf-7 联合表达(整体)以及各自单独表达(部分之和)所编码信息的可视化。冗余性和协同性编码特征通过右侧堆叠柱状图高度与完整回路所编码信息之间的差异表示。(C)野生型动物与 daf-7(-) 突变体所编码的食物信息比较。(D)突变体中观察到的互信息减少伴随着向协同编码模式的转变。图 B–D 改编自 Diana et al.(2017)13。 请点击此处查看该图的放大版本。
| 细菌浓度(细胞/毫升) | 光密度(600纳米) | 稀释倍数(相对于前一次) |
| 1.12E+10 | 56.000 | 0.00 |
| 2.00E+09 | 10.000 | 5.60 |
| 6.32E+08 | 3.160 | 3.16 |
| 6.32E+07 | 0.316 | 10.00 |
| 2.00E+07 | 0.100 | 3.16 |
| 0 (S 基础培养基) | 0.000 | NA |
表1:宽范围剂量反应试验中使用的食物浓度及稀释倍数。 宽范围剂量反应(DR)实验方案中使用的大肠杆菌浓度(细胞数/mL),及其对应的OD600测定值,以及从上一浓度稀释至该浓度所需的稀释倍数。
| 寿命实验温度 | |||||||
| 天数 | 12.5°C | 15°C | 17.5°C | 20°C | 22.5°C | 25°C | 27.5°C |
| -12 | 将所有菌株转移至新鲜的NGM平板,并在20°C下培养 | ||||||
| -11 | |||||||
| -10 | 设置daf-7(-)菌株的P0代,并在20°C下培养(每板1只L4幼虫,共5板) | ||||||
| -9 | 设置野生型菌株的P0代,并在20°C下培养(每板1只L4幼虫,共5板) | ||||||
| -8 | |||||||
| -7 | |||||||
| -6 | |||||||
| -5 | 设置daf-7(-)菌株的F1代,并在20°C下培养(每板1只L4幼虫,共90板) | ||||||
| -4 | 设置野生型菌株的F1代,并在20°C下培养(每板1只L4幼虫,共30板) | ||||||
| -3 | |||||||
| -2 | |||||||
| -1 | |||||||
| 0 | 挑选F2代L4幼虫至>egg-5 RNAi平板,并在20°C下培养(每板15只L4幼虫,共24板) | ||||||
| 1 | 将1日龄成虫转移至接种了2.0E+9 cells/ml食物浓度的NSC平板,并在20°C下培养 | ||||||
| 2 | 将2日龄成虫转移至接种了实验食物条件的NSC平板,并置于实验温度下培养 | ||||||
| 3 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 |
| 4 | |||||||
| 5 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 |
| 6 | |||||||
| 7 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 |
| 8 | |||||||
| 9 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 |
| 10 | |||||||
| 11 | 转移 | 转移 | 转移 | 转移 | 转移 | 转移 | |
| 12 | |||||||
| 13 | |||||||
| 14 | 转移 | 转移 | 转移 | 转移 | |||
| 15 | |||||||
| 16 | |||||||
| 17 | |||||||
| 18 | 转移 | 转移 | |||||
| 19 | |||||||
| 20 | |||||||
| 21 | |||||||
| 22 | 转移 | ||||||
表2:在不同温度下进行寿命实验的时间安排。 以 daf-7(-) 和野生型菌株为例,概述在不同温度下建立宽范围饮食限制(DR)寿命实验所需的步骤。随着温度升高,每个实验食物水平转移到新鲜培养板的次数减少。这是为了考虑到较高温度下的线虫衰老速度更快,因此每次转移时更易受到物理损伤。
| 天数 | 成像流程 |
| -14 | 将报告基因品系在 daf(-) 背景下进行划线培养。在 20 °C 下维持培养。 |
| -13 | 将报告基因品系在野生型背景下进行划线培养。在 20 °C 下维持培养。 |
| -12 | 建立 daf-7(-) 报告基因品系的 P0 代。每块 10 cm NGM 培养基平板接种 3 只 L4 期幼虫。使用 2 块平板,并在 20 °C 下维持培养。 |
| -11 | |
| -10 | 建立野生型报告基因品系的 P0 代。每块 10 cm NGM 培养基平板接种 3 只 L4 期幼虫。使用 2 块平板,并在 20 °C 下维持培养。 |
| -9 | |
| -8 | 建立 daf-7(-) 报告基因品系的 F1 代。每块 10 cm NGM 培养基平板接种 3 只 L4 期幼虫。使用 12 块平板,并在 20 °C 下维持培养。 |
| -7 | |
| -6 | 建立野生型报告基因品系的 F1 代。每块 10 cm NGM 培养基平板接种 3 只 L4 期幼虫。使用 4 块平板,并在 20 °C 下维持培养。 |
| -5 | |
| -4 | |
| -3 | 下午(约 17:00)对 daf-7(-) 报告基因品系进行漂白处理,并将卵接种至 3 块 10 cm NGM 培养基平板上,在 20 °C 下维持培养。 |
| -2 | 上午(约 10:00)对野生型报告基因品系进行漂白处理,并将卵接种至 3 块 10 cm NGM 培养基平板上,在 20 °C 下维持培养。 |
| -1 | |
| 0 | 将 L4 期幼虫转移至 10 cm egg-5 RNAi 培养基平板。每种品系使用 3 块平板,并在 20 °C 下维持培养。 |
| 1 | 将培养 1 天的成虫转移至接种了浓度为 2.0E+9 cells/ml 食物的 NSC 平板。每种品系使用 3 块平板,并在 20 °C 下维持培养。 |
| 2 | 将培养 2 天的成虫转移至接种了实验浓度食物的 NSC 平板。每种品系使用 3 块平板,并转移至实验温度条件下培养。 |
| 3 | 转移至新鲜的 NSC 平板。每种品系使用 3 块平板,并在实验温度下维持培养。 |
| 4 | |
| 5 | 转移至新鲜的 NSC 平板。每种品系使用 3 块平板,并在实验温度下维持培养。 |
| 6 | 从平板上挑取动物个体,准备进行成像。 |
表3:成像流程时间安排。 以在不同温度下使用 daf-7(-) 和野生型背景的荧光转录报告菌株建立广谱DR成像实验为例,概述所需步骤的示意图。
讨论
本文介绍了一种新的饮食限制方法,该方法涵盖的食物浓度范围远比以往发表的方案更为广泛。该方法将秀丽隐杆线虫(C. elegans)饮食限制研究中曾被分别看待的两种现象——细菌剥夺和经典饮食限制——联系起来,使得在同一实验方案下可同时研究这两种饮食效应。利用这种广谱饮食限制范式,我们提出了一种通用框架,用于检测单个细胞在特定环境刺激下的基因表达变化,并解析该细胞如何编码信息。本框架包含两个实验方案,分别说明如何在广谱饮食限制条件下进行寿命测定和定量成像。通过这些实验方案获得的数据,可结合本框架提供的计算分析方法,量化在不同食物条件下基因表达水平或寿命变化所编码的信息。
使用广谱饮食限制(DR)范式进行的寿命实验涉及六个不同的食物水平(表1)。这比在较少的食物水平(如饮食剥夺)下研究寿命需要更耗费人力的方法10,11 或使用 eat-2 遗传背景35然而,在单一条件下观察寿命可能会限制对基因在限制饮食(DR)中作用的解释。例如,我们最近的研究表明 daf-7 与野生型动物相比,突变体对食物浓度的反应呈现双向减弱12 (图1A)。在没有食物的情况下, daf-7 突变体的寿命相较于野生型动物有所缩短。如果我们仅考虑饮食限制,我们可能会得出这样的解释 daf-7 基因仅对寿命延长是必需的, 事实上 daf-7 因此,本部分实验方案的关键结果是确定目标基因是否参与调控生物体对食物丰度变化所引起的寿命整体反应。
与其它方法相比,本方案的一个主要优势在于采用了一种新颖的方法,在进行寿命分析的动物中消除其子代的产生。大多数研究使用药物FuDR来抑制成虫生殖系的增殖,使其不育。然而,近期研究表明,FuDR处理可能对寿命产生条件依赖性和基因特异性的效应17,18,19,20,21,因而对其普遍适用性提出了质疑。在本方案中,通过使用靶向egg-5基因的RNAi对动物进行24小时处理,从而阻断子代的产生。该处理可抑制受精的C. elegans卵母细胞几丁质卵壳的形成,导致其死亡22,23。该方法的优势在于其作用时间较晚,因此不会干扰生殖系——而生殖系是C. elegans寿命的重要调控因素。
广谱DR方案的一个潜在局限在于其依赖抗生素来控制细菌增殖,以确保对细菌浓度的严格调控。已知线虫肠道内细菌的过度增殖是导致C. elegans16死亡的主要原因之一。因此,在NGM琼脂中使用抑菌性抗生素(如羧苄西林)可抑制细菌增殖,并延长线虫寿命,相较于不含抗生素的对照组具有更长的寿命16。某些类型的抗生素,例如利福平36以及四环素类家族成员37,38,已被证明可在不依赖其对细菌增殖影响的情况下独立延长C. elegans的寿命。然而,目前文献中尚无证据表明羧苄西林或链霉素能够在不依赖其对细菌增殖作用的前提下独立延长寿命。
寿命可被视为一种复杂计算的结果,其中通过神经网络中的基因表达传递的环境信息被传导至生理过程。本方案提供了一种方法,用于理解特定基因如何影响这一环境信息流。为回答这一问题,我们需要可靠的图像处理技术,以确定基因表达响应在单细胞水平上的分布情况。不仅能够估计基因表达对食物丰度变化的平均响应,还能从大规模细胞群体中获得其完整的统计分布,这是我们方法得以应用的重要前提。对基因表达响应食物丰度的精确描述,使得信息论可用于量化特定神经元所编码的信息,以及神经回路所采用的编码策略。
本方案中所述方法的成像与计算方面可适用于更广泛的生物学背景。在我们的研究中,重点关注了一个参与食物感知的小型神经网络,但对信息处理特征的分析并不局限于特定细胞类型或特定环境信号。未来,这些方法有望扩展到更多种类的输入变量,从而影响任何生理输出。这些方法将有助于更深入地理解基因调控网络如何编码、处理和传递信息。
披露
作者无任何利益冲突需要披露。
致谢
感谢 Bargmann 实验室和 Horvitz 实验室提供试剂。部分菌株由 CGC 提供,CGC 由美国国立卫生研究院研究基础设施项目(P40 OD010440)资助。我们还感谢 M. Lipovsek 对手稿提出的修改意见。本研究得到了惠康信托基金(项目资助号 087146,授予 Q.C.)、英国生物技术和生物科学研究生院(BB/H020500/1 和 BB/M00757X/1,授予 Q.C.)、欧洲研究理事会(NeuroAge 242666,授予 Q.C.)、美国国立卫生研究院(R01AG035317 和 R01GM088333,授予 H.L.)以及美国国家科学基金会(0954578,授予 H.L.;0946809 GRFP,授予 M.Z.)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 羧苄西林二钠盐 | Sigma-Aldrich | C1389-5G | 抗生素 |
| 硫酸链霉素盐 | Sigma-Aldrich | S6501-50G | 抗生素 |
| 异丙基 β-D-1-硫代半乳糖吡喃糖苷(IPTG) | Sigma-Aldrich | I6758-10G | RNAi 平板诱导剂 |
| 氯化钠(NaCl) | Sigma-Aldrich | 71380-1KG-M | 用于S基础培养基和NGM琼脂 |
| 二水合磷酸氢二钾(K2HPO4) | Sigma-Aldrich | 1.05104.1000 | 用于S基础培养基和NGM琼脂 |
| 磷酸二氢钾(KH₂PO₄)2PO4) | Sigma-Aldrich | P9791-1KG | 用于S基础培养基和NGM琼脂 |
| 硫酸镁(MgSO₄)4) | Sigma-Aldrich | M2643-1KG | 用于 NGM 琼脂 |
| 氯化钙(CaCl2) | Sigma-Aldrich | C5670-500G | 用于 NGM 琼脂 |
| 氢氧化钠(NaOH) | Sigma-Aldrich | 71687-500G | 用于漂白 |
| Pluronic-F127 | Sigma-Aldrich | P2443-1KG | 用于成像 |
| 次氯酸钠(NaClO) | Sigma-Aldrich | 1.05614.2500 | 用于漂白 |
| LB肉汤 | Invitrogen | 12780052 | 用于培养细菌 |
| Adavanced TC 6 cm 组织培养板 | Greiner Bio-One | 628960 | 寿命测定平板 |
| CellStar 10 cm 组织培养板 | Greiner Bio-One | 664160 | 用于成像的培养板 |
| 低吸附 P200 吸头 | 布兰特 | 732832 | 液体中线虫操作的技巧 |
| 琼脂 | BD | 214510 | NGM、RNAi 和 NSC 平板用琼脂 |
| Bacto-peptone | BD | 211820 | NGM、RNAi 和 NSC 平板用蛋白胨 |
参考文献
- Gendron, C. M., Chung, B. Y., Pletcher, S. D. The sensory system: More than just a window to the external world. Commun Integr Biol. 8 (2), 1017159(2015).
- Calhoun, A. J., et al. Neural Mechanisms for Evaluating Environmental Variability in Caenorhabditis elegans. Neuron. 86 (2), 428-441 (2015).
- Fontana, L., Partridge, L., Longo, V. D. Extending healthy life span--from yeast to humans. Science. 328 (5976), 321-326 (2010).
- Cho, Y., Zhao, C. L., Lu, H. Trends in high-throughput and functional neuroimaging in Caenorhabditis elegans. Wiley Interdiscip Rev Syst Biol Med. 5, 01376(2017).
- Ching, T. -T., Hsu, A. -L. Solid plate-based dietary restriction in Caenorhabditis elegans. Journal of visualized experiments : JoVE. (51), e2701(2011).
- Greer, E. L., Brunet, A. Different dietary restriction regimens extend lifespan by both independent and overlapping genetic pathways in C. elegans. Aging Cell. 8 (2), 113-127 (2009).
- Mair, W., Panowski, S. H., Shaw, R. J., Dillin, A. Optimizing dietary restriction for genetic epistasis analysis and gene discovery in C. elegans. PLoS ONE. 4 (2), 4535(2009).
- Sutphin, G. L., Kaeberlein, M. Measuring Caenorhabditis elegans. life span on solid media. Journal of visualized experiments : JoVE. (27), e1152(2009).
- Ching, T. -T., Paal, A. B., Mehta, A., Zhong, L., Hsu, A. -Ldrr-2 encodes an eIF4H that acts downstream of TOR in diet-restriction-induced longevity of C. elegans. Aging Cell. 9 (4), 545-557 (2010).
- Kaeberlein, T. L., et al. Lifespan extension in Caenorhabditis elegans. by complete removal of food. Aging Cell. 5 (6), 487-494 (2006).
- Lee, G. D., et al. Dietary deprivation extends lifespan in Caenorhabditis elegans. Aging Cell. 5 (6), 515-524 (2006).
- Entchev, E. V., et al. A gene-expression-based neural code for food abundance that modulates lifespan. elife. 4, 06259(2015).
- Diana, G., et al. Genetic control of encoding strategy in a food-sensing neural circuit. elife. 6, (2017).
- Shannon, C. E. A Mathematical Theory of Communication. Bell System Technical Journal. 27 (3), 379-423 (1948).
- Stiernagle, T. Maintenance of C. elegans. WormBook : the online review of C elegans biology. , 1-11 (2006).
- Garigan, D., et al. Genetic analysis of tissue aging in Caenorhabditis elegans.: a role for heat-shock factor and bacterial proliferation. Genetics. 161 (3), 1101-1112 (2002).
- Aitlhadj, L., Stürzenbaum, S. R. The use of FUdR can cause prolonged longevity in mutant nematodes. Mech Ageing Dev. 131 (5), 364-365 (2010).
- Anderson, E. N., et al. C. elegans.lifespan extension by osmotic stress requires FUdR, base excision repair, FOXO, and sirtuins. Mech Ageing Dev. 154, 30-42 (2016).
- Angeli, S., et al. A DNA synthesis inhibitor is protective against proteotoxic stressors via modulation of fertility pathways in Caenorhabditis elegans. Aging. 5 (10), Albany NY. 759-769 (2013).
- Rooney, J. P., et al. Effects of 5'-fluoro-2-deoxyuridine on mitochondrial biology in Caenorhabditis elegans). Exp Gerontol. 56, 69-76 (2014).
- van Raamsdonk, J. M., Hekimi, S. FUdR causes a twofold increase in the lifespan of the mitochondrial mutant gas-1. Mech Ageing Dev. 132 (10), 519-521 (2011).
- Cheng, K. C. -C., Klancer, R., Singson, A., Seydoux, G. Regulation of MBK-2/DYRK by CDK-1 and the pseudophosphatases EGG-4 and EGG-5 during the oocyte-to-embryo transition. Cell. 139 (3), 560-572 (2009).
- Parry, J. M., et al. EGG-4 and EGG-5 Link Events of the Oocyte-to-Embryo Transition with Meiotic Progression in C. elegans. Curr Biol. 19 (20), 1752-1757 (2009).
- Chung, K., Crane, M. M., Lu, H. Automated on-chip rapid microscopy, phenotyping and sorting of C. elegans. Nat Methods. 5 (7), 637-643 (2008).
- Crane, M. M., et al. Autonomous screening of C. elegans.identifies genes implicated in synaptogenesis. Nat Methods. 9 (10), 977-980 (2012).
- Unger, M. A., Chou, H. P., Thorsen, T., Scherer, A., Quake, S. R. Monolithic microfabricated valves and pumps by multilayer soft lithography. Science. 288 (5463), 113-116 (2000).
- Zhan, M., et al. Automated Processing of Imaging Data through Multi-tiered Classification of Biological Structures Illustrated Using Caenorhabditis elegans. PLoS Comput Biol. 11 (4), 1004194(2015).
- Duong, T. Kernel density estimation and kernel discriminant analysis for multivariate data in R. Journal of Statistical Software. 21 (7), URL http://www.jstatsoft.org/v21/i07 21(2007).
- R Development Core Team. R: A language and environment for statistical computing. , R Foundation for Statistical Computing. Vienna, Austria. ISBN 3-900051-07-0, URL http://www.R-project.org (2008).
- Cover, T. M., Thomas, J. A. Elements of information theory. , Wiley. (2006).
- Tkacik, G., Walczak, A. M. Information transmission in genetic regulatory networks: a review. J Phys Condens Matter. 23 (15), 153102(2011).
- Arimoto, S. An Algorithm for Computing the Capacity of Arbitrary Discrete Memoryless Channels. IEEE Transactions on Information Theory. 18 (1), 14-20 (1972).
- Cheong, R., Rhee, A., Wang, C. J., Nemenman, I., Levchenko, A. Information transduction capacity of noisy biochemical signaling networks. Science. 334 (6054), 354-358 (2011).
- Schneidman, E., Bialek, W., Berry, M. J. Synergy, redundancy, and independence in population codes. J Neurosci. 23 (37), 11539-11553 (2003).
- Lakowski, B., Hekimi, S. The genetics of caloric restriction in Caenorhabditis elegans. Proc Natl Acad Sci USA. 95 (22), 13091-13096 (1998).
- Golegaonkar, S., et al. Rifampicin reduces advanced glycation end products and activates DAF-16 to increase lifespan in Caenorhabditis elegans. Aging Cell. 14 (3), 463-473 (2015).
- Houtkooper, R. H., et al. Mitonuclear protein imbalance as a conserved longevity mechanism. Nature. 497 (7450), 451-457 (2013).
- Ye, X., Linton, J. M., Schork, N. J., Buck, L. B., Petrascheck, M. A pharmacological network for lifespan extension in Caenorhabditis elegans. Aging Cell. 13 (2), 206-215 (2014).
重印与许可
