流感中和抗体与预防流感感染的保护作用相关。微量中和试验用于检测人血清中的中和抗体,常用于流感的人体血清学研究。本文描述了一种使用MDCK-SIAT1细胞的微量中和试验,用于检测流感疫苗接种或感染后针对当前流行的3C.2a和3C.3a A(H3N2)病毒的中和抗体滴度。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
针对流感病毒血凝素(HA)的中和抗体被认为是与预防流感感染相关的最主要免疫机制。微量中和(MN)试验常用于检测流感疫苗接种或感染后人血清中的中和抗体反应。Madin-Darby 犬肾(MDCK)细胞是MN试验中常用的细胞基质。然而,目前流行的3C.2a和3C.3a亚型A(H3N2)流感病毒已获得改变的受体结合特异性。表面具有更多α-2,6唾液酸半乳糖基团的MDCK-SIAT1细胞系已被证明可为这些当代A(H3N2)病毒提供更高的感染效率和更真实的复制效果,优于传统的MDCK细胞。本文介绍了一种使用MDCK-SIAT1细胞的MN试验方法,已优化用于定量检测针对这些当代A(H3N2)病毒的中和抗体滴度。在本方案中,首先将含有中和抗体的热灭活血清进行系列稀释,然后与每孔100 TCID50的A(H3N2)流感病毒孵育,使血清中的抗体与病毒结合。随后将MDCK-SIAT1细胞加入病毒-抗体混合物中,在37 °C、5% CO2条件下孵育18–20小时,使A(H3N2)病毒感染MDCK-SIAT1细胞。过夜孵育后,对培养板进行固定,并使用抗流感A核蛋白(NP)单克隆抗体通过酶联免疫吸附试验(ELISA)定量各孔中的病毒量。中和抗体滴度定义为能够提供≥50%病毒感染抑制率的最高血清稀释倍数的倒数。
引言
流感病毒每年仍在人类中引起发病和死亡。血凝素(HA)是流感病毒的主要表面糖蛋白。靶向HA的中和抗体是与预防流感感染相关的最主要免疫机制1,2。血凝抑制(HI)试验和中和试验(MN试验)是两种广泛用于检测流感感染或疫苗接种后人血清中抗体反应的方法3。HI试验通过检测抗体对病毒凝集红细胞能力的抑制作用进行评估,被视为一种替代性检测方法。与HI试验不同,MN试验可直接测定人血清中在细胞培养中中和流感病毒感染的抗体水平。MDCK细胞常用于流感病毒的分离及MN试验4。
流感病毒持续发生抗原漂移和抗原转变,其血凝素(HA)蛋白上获得的突变可能改变病毒的受体结合特异性。自2014年以来,新型A(H3N2)病毒簇出现并持续流行至今。根据HA蛋白的系统发育分析,这些病毒大多属于基因型3C.2a和3C.3a。许多流行的3C.2a病毒株对红细胞的血凝能力降低,因此无法通过血凝抑制(HI)试验进行表征。5中和试验必须用于检测针对这些不具有血凝活性病毒的抗体反应6此外,研究表明,与早期的A(H3N2)病毒相比,这些当代A(H3N2)病毒的受体结合特性发生了改变,并且在传代过程中倾向于积累适应培养的突变和多态性 体外 细胞培养7,8,9与传统的MDCK细胞相比,MDCK-SIAT1是由Matrosovich开发的一种细胞系 等 通过将人源α2,6-唾液酸转移酶(SIAT1)的cDNA稳定转染至MDCK细胞中获得。该细胞系表达的α2,6-唾液酸半乳糖基团较亲代MDCK细胞增多,而α2,3-唾液酸基团含量减少10MDCK-SIAT1 细胞相较于 MDCK 细胞可提高 A(H3N2) 病毒的分离率11。最近,Lin 等 有研究报道,对于新出现的3C.2a和3C.3a人A(H3N2)流感病毒,在MDCK-SIAT1细胞系中培养相比在MDCK细胞中培养,可实现更忠实的病毒复制和更高的病毒感染性。7因此,MDCK-SIAT1细胞在微量中和试验(MN assays)中更适用于表征针对近期A(H3N2)病毒变异株的抗体反应。
在此,我们描述了一种利用MDCK-SIAT1细胞进行的微中和(MN)检测方法,用于测定人血清中针对当前流行的3C.2a和3C.3a亚型A(H3N2)病毒的抗体应答。病毒可在鸡胚或细胞中培养。 可用于本实验。含有中和抗体的热灭活血清首先进行系列稀释,然后与100 TCID50将流感A(H3N2)病毒加入孔中,使血清中的抗体与病毒结合。随后将MDCK-SIAT1细胞加入病毒-抗体混合物中,在37 °C、5% CO₂条件下孵育18–20小时。2 以使A(H3N2)病毒感染MDCK-SIAT1细胞并进行复制。经过过夜孵育后,固定培养板,并使用抗流感病毒A型核蛋白(NP)单克隆抗体通过ELISA定量每孔中的病毒量。NP的检出表明存在病毒感染且无中和抗体存在。中和抗体滴度定义为能够提供≥50%病毒感染抑制率的最高血清稀释度的倒数。
访问受限。请登录或开始试用以查看此内容。
方案
所有流感病毒的操作均应根据《微生物和生物医学实验室生物安全手册》(BMBL)中规定的相应生物安全等级要求(BSL-2 或更高)进行12.
1. 试剂与起始材料的准备
- 准备MDCK-SIAT1细胞 无菌细胞培养基
- 制备 MDCK-SIAT1 细胞培养基 使用500 mL含高糖的杜贝科改良伊格尔培养基(DMEM),10% v/v 热灭活胎牛血清(FBS),2 mM L-谷氨酰胺,1 mM 丙酮酸钠,1 mg/mL G418硫酸盐(例如,遗传霉素)以及100 U/ml青霉素与 100 µg/mL 链霉素(可选)。通过滤膜过滤除菌 0.2 µM 孔径膜。添加G418硫酸盐以确保质粒在MDCK-SIAT1细胞中的稳定性。
- 制备 MDCK-SIAT1 细胞系。在162 cm²培养瓶中2- 含有30 mL无菌细胞培养基的组织培养瓶,以每瓶2 - 2.5 × 10⁶个细胞的密度接种培养瓶6 MDCK-SIAT1 细胞并在 37 °C 在5% CO₂中2 2天;该样本将用于组织培养感染剂量(TCID)测定和中和试验(MN assays)。
注意:MDCK-SIAT1 细胞由德国马尔堡的 M. Matrosovich 博士惠赠10该细胞系也可从商业渠道获得(参见 材料表).
- 制备 无菌病毒增殖培养基 使用500 mL DMEM高糖培养基、0.3%牛血清白蛋白(BSA)V组分、100 U/mL青霉素 100 µg/mL 链霉素和 20 mM HEPES。通过过滤除菌 0.2 µM 孔径膜
- 制备 0.75% (v/v) 豚鼠红细胞(gpRBCs) 在含有 0.01 M PBS、pH 为 7.2 的磷酸盐缓冲液(PBS)中。
- 制备 无菌病毒稀释液 使用DMEM高糖培养基、1%牛血清白蛋白第五组分(BSA)、100 U/mL青霉素 100 µg/mL 链霉素和 20 mM HEPES。通过滤膜过滤除菌 0.2 µm 孔径膜,并为每次检测新鲜配制。
- 制备 冷细胞固定剂 PBS(0.01 M PBS,pH 7.2)中的80%冷丙酮
- 制备 洗涤缓冲液 使用 PBS(0.01 M PBS,pH 7.2)和 0.3%(v/v)Tween-20。
- 制备 抗体稀释液 使用 PBS(0.01 M PBS,pH 7.2)、0.3%(v/v)Tween-20 和 5% 脱脂奶粉。
- 使用抗流感病毒A型NP小鼠单克隆抗体克隆A1和A3混合物作为 一抗用滴定确定的最佳浓度,在抗体稀释液中进行稀释。
- 使用与辣根过氧化物酶(HRP)偶联的山羊抗小鼠IgG作为 二抗用滴定确定的最佳浓度,在抗体稀释液中进行稀释。
- 制备 过氧化物酶底物 使用 o邻苯二胺二盐酸盐(OPD)溶于 pH 5 的 0.05 M 磷酸柠檬酸缓冲液中。通过将 1 粒胶囊溶于 100 mL 去离子水制备 0.05 M 磷酸柠檬酸缓冲液2O. 使用前立即用20 mL磷酸柠檬酸缓冲液溶解1片OPD片(10 mg)。
- 使用 0.5 M 的硫酸作为 OPD终止液. 将28 mL 18 M浓硫酸加入972 mL去离子H2在化学通风橱中进行。
- 人和动物血清的处理
- 热灭活 人血清 在水浴中用于微核试验 56 °C 在检测前于冰上孵育30分钟。应立即使用,若需保存,将解冻后的血清置于 4 °C 不超过24小时;若需更长时间保存,请将血清于-80℃冷冻储存20 °C 或更低温度。
- 处理 动物血清 在进行微量中和试验(MN试验)前,需使用受体破坏酶(RDE)处理并加热灭活,具体步骤如下。
- 在37℃下解冻血清 ˚C水浴中孵育,然后置于冰上。将1体积的动物血清样本与3体积的RDE混合,在37℃孵育 ˚C,18 - 20 小时。
- 56℃下热灭活经RDE处理的血清 ˚C 反应 30 分钟。向每个样本中加入 6 倍体积的 PBS(pH 7.2),使最终预稀释比例为 1:10。如需保存,将解冻后的血清 在 4 °C 不超过24小时;若需更长时间保存,请将血清于-80℃冷冻储存20 °C 或更低温度。
注意:动物血清中可能含有多种唾液酸糖链,这些糖链可与流感病毒的血凝素(HA)结合,从而抑制流感特异性抗-HA抗体与HA的结合。因此,在进行中和试验(MN试验)前,必须使用RDE处理所有动物血清,以去除血清样本中这些非特异性的病毒HA结合物。
2. MDCK-SIAT1 细胞培养的传代
注意:所有细胞培养操作必须在生物安全柜中进行,以防止污染。
- 从 162 cm2 培养瓶中的细胞单层中倾去培养基。用胰蛋白酶-EDTA 溶液冲洗细胞单层以进行消化。每瓶加入 5 mL 胰蛋白酶-EDTA 溶液覆盖细胞单层,于 37 °C、5% CO2 条件下孵育至细胞单层脱落(5–10 分钟)。向每瓶含消化后细胞的培养瓶中加入 15 mL MDCK-SIAT1 细胞培养基,吹打混匀以分散细胞。
- 使用血细胞计数板和台盼蓝染色法测定细胞数量和活率。将细胞以每瓶 2–2.5 × 10⁶ 个细胞接种至含 30 mL 细胞培养基的新 162 cm2 组织培养瓶中,于 37 °C、5% CO2 条件下培养 2 天,用于 TCID 和 MN 检测。为用于病毒扩增,将细胞以每瓶 4–5 × 10⁶ 个细胞的密度接种,于 37 °C、5% CO2 条件下培养 2 天。
注意:若需缩短或延长培养时间,可调整接种密度。用于病毒扩增时,细胞应达到超过 100% 的汇合度;用于组织培养感染剂量(TCID)和中和试验(MN 检测)时,细胞汇合度应为 75–95%(图 1)。
3. 在 MDCK-SIAT1 细胞中扩增 A(H3N2) 病毒
注意:A(H3N2) 病毒可通过标准方案在 10 至 11 日龄的受精鸡胚中增殖3,也可在 MDCK-SIAT1 细胞培养物中增殖。用于接种病毒时,MDCK-SIAT1 细胞应达到超过 100% 的汇合度。病毒种子储备液可使用不同稀释度的接种物进行接种。收获后血凝活性(HA)和感染性最佳的接种物稀释度可用于后续的微量中和(MN)试验。
- 从162 cm2培养瓶中已形成单层(>100%融合度)的细胞中移除细胞培养基。用15 mL无菌0.01 M PBS(pH 7.2)洗涤单层细胞两次,倾去液体。
- 将1个培养瓶标记为对照组,加入20 mL病毒增殖培养基。将该培养瓶置于37 °C、5% CO2条件下孵育。此瓶不进行任何处理,用于病毒增殖第1天后的对照比较。
- 向培养瓶中加入10 mL无菌病毒增殖培养基,并将所有培养瓶置于37 °C、5% CO2条件下孵育。将一管流感病毒储备液在室温下解冻后置于冰上。用病毒增殖培养基稀释至目标稀释度。
注意:目标稀释度可根据病毒储备液的血凝(HA)滴度进行调整。制备1:1000稀释的接种液时,将100 µL病毒加入9.9 mL无菌病毒增殖培养基中,轻轻颠倒混匀;取1 mL该1:100稀释液加入9 mL无菌病毒增殖培养基中,再次轻轻颠倒混匀,得到1:1000稀释的接种液。置于冰上备用。 - 将除对照组外的所有培养瓶从孵育箱中取出。移除MDCK-SIAT1细胞培养瓶中的病毒增殖培养基,每瓶接种10 mL稀释后的病毒液。将培养瓶置于37 °C、5% CO2条件下孵育1小时,每隔15分钟轻轻旋转一次培养瓶。
- 从培养瓶中移除5 mL接种液,替换为含1 µg/mL TPCK-胰蛋白酶的15 mL病毒增殖培养基。将培养瓶置于37 °C、5% CO2条件下孵育16–18小时。
- 过夜孵育后,在100倍显微镜下观察培养瓶,检查细胞是否存在细胞病变效应(CPE)。从培养瓶中移除15–17 mL病毒上清液,替换为15–17 mL新鲜配制的含2 µg/mL TPCK-胰蛋白酶的病毒增殖培养基。
- 将培养瓶置于37 °C、5% CO2条件下继续孵育。通过与细胞对照瓶比较,监测单层细胞的CPE,并使用0.75%鸡红细胞(gpRBC)定期(每4小时)检测血凝活性(HA),直至收获病毒。
- 准备一块96孔HA微量滴定板。在A2–A12和B2 –B12孔(设重复)以及H1–H12孔中各加入50 µL无菌0.01 M PBS(pH 7.2)作为对照。
- 在A1和A2孔中各加入100 µL病毒上清液,从A1和B1孔开始进行2倍系列稀释至A12和B12孔。在A12和B12孔混匀后弃去50 µL。向A、B和H行各孔中加入50 µL 0.75% gpRBC悬液。
- 轻敲微孔板,室温孵育1小时。
- 将96孔微量滴定板倾斜至45°至60°角,观察病毒上清液的血凝活性(HA)。
- 读取血凝结果:能够引起完全血凝的最高病毒稀释度即为该病毒的HA滴定终点。记录产生完全血凝的最高病毒稀释度的倒数作为病毒的HA滴度。
注意:H行(对照)中沉降的红细胞应因重力作用开始“流动”,形成小泪滴状。待对照孔中红细胞完全流动后,再读取病毒滴定孔中的红细胞纽扣状沉淀。若某孔出现红细胞纽扣并发生“流动”,则表明未发生血凝。确定完全抑制血凝的最高病毒稀释度,作为病毒的终点HA滴度。
- 当病毒培养物的HA值达到平台期或达到目标HA值(例如>16 HAU)时,且在细胞单层尚未出现明显CPE前,收获病毒。
- 将病毒培养上清液在4 °C条件下以300 × g离心10分钟,沉淀细胞碎片。将澄清的上清液(含收获的病毒)转移至洁净离心管中。将含病毒的上清液分装至一次性无菌冻存管中,立即在-70 °C或更低温度下冷冻保存。
注意:用于中和试验(MN assay)的病毒储备液应具有高感染性滴度且缺陷颗粒最少。用于MN试验的病毒储备液最低稀释度应为1:100,以达到每50 µL含100 TCID50。
注意:用于MN试验的病毒储备液不得反复冻融。
- 将病毒培养上清液在4 °C条件下以300 × g离心10分钟,沉淀细胞碎片。将澄清的上清液(含收获的病毒)转移至洁净离心管中。将含病毒的上清液分装至一次性无菌冻存管中,立即在-70 °C或更低温度下冷冻保存。
4. 病毒TCID50的测定
- 第1天:病毒滴定
- 室温下解冻一管病毒,立即置于冰上。
- 在两种不同的起始稀释度下检测病毒:10-2 和 10-3添加 100 µL 将病毒加入9.9 mL病毒稀释液中,稀释10倍-2 稀释。加入1 mL的10-2 稀释至9.0 mL病毒稀释液,用于10倍稀释-3 稀释
- 使用两块微量滴定板(1号板用于10-2 稀释并取2号平板,稀释倍数为10-3 稀释),加入 100 µL 向除第1列外的所有孔中加入病毒稀释液。
- 执行 ½对数10 稀释(10-2, 10-2.5, 10-3, 等等。)。加入 146 µL 从病毒起始稀释液开始,向第1列所有孔中加入并转移 46 µL 从第1列到第11列依次图2)。每次更换孔时需更换移液器吸头。混合第11列后,将吸头连同残留液体一并丢弃 46 µL 稀释
- 将第12列用作细胞对照(CC),其中仅含有病毒稀释液。在37℃下孵育1小时。 37 °C,5% CO₂2.
- 第1天:MDCK-SIAT1细胞的制备
注意:MDCK-SIAT1 细胞单层在进行 TCID 和 MN 检测时应达到 75 - 95% 的汇合度。一个 162 cm² 培养瓶2 95% 汇合度的培养瓶应能提供足够的细胞,用于接种约 4 - 5 块微孔板。- 用 20 mL PBS 洗涤 75–95% 汇合度的单层细胞,以去除培养基中的 FBS。按如下方法进行细胞消化。
- 用无菌 PBS 洗涤单层细胞,加入 7 mL 胰蛋白酶-EDTA 溶液以覆盖细胞单层。将培养瓶放平,于 37 °C 孵育 37 °C,5% CO₂2 直至单层细胞脱落(约5 - 10分钟)。向每瓶含有胰蛋白酶消化细胞的培养瓶中加入7 mL病毒稀释液。
- 用病毒稀释液洗涤细胞,以去除胎牛血清(FBS)。
- 轻轻吹打混匀以分离细胞。将细胞转移至50 mL锥形管中,用病毒稀释液充满该管。
- 在 485 × g 下离心 5 分钟。弃去病毒稀释液,加入 50 mL 新鲜病毒稀释液,再次在 485 × g 下离心 5 分钟。弃去病毒稀释液,每瓶加入 10 mL 新鲜病毒稀释液重悬沉淀。
- 使用血细胞计数板和台盼蓝染色法测定细胞数量和活力。用病毒稀释液将细胞浓度调整至 1.5 x 10⁵ cells/mL
- 添加 100 µL 将稀释的MDCK-SIAT1细胞加入微孔板的每个孔中(1.5 x 10⁵)4 细胞/孔),盖好培养板。于 37 °C,5% CO₂2 18 - 20 小时。
- 用 20 mL PBS 洗涤 75–95% 汇合度的单层细胞,以去除培养基中的 FBS。按如下方法进行细胞消化。
- 第2天:ELISA
- 细胞固定
- 从微量滴定板中移除培养基。用洗涤液洗涤每个孔 200 µL PBS。加入 300 µL 每孔加入冷的80%丙酮,室温孵育10分钟。移除固定液,将培养板置于空气中自然干燥。
- 酶联免疫吸附测定
- 一抗孵育
注意:在ELISA中,应使用过量的抗流感病毒A型NP单克隆抗体作为一抗。通过在MN中进行抗体滴定,确定每批一抗的最佳稀释度。选择信号与背景比最佳且处于过量状态的一抗浓度。- 将抗流感病毒A型NP单克隆抗体(一抗)用抗体稀释液稀释至目标浓度(例如 添加 30 µL 将一抗按1:1000的目标稀释比例加入30 mL抗体稀释液中。
- 用 PBS 洗涤平板 3 次 300 µL 洗涤缓冲液。加入 100 µL 将一抗稀释液加入各孔中,室温孵育1小时。
- 二抗孵育
注意: 辣根过氧化物酶(HRP)标记的山羊抗小鼠IgG应作为ELISA中的二抗过量使用。通过抗体滴定实验确定每批二抗的最佳稀释度,选择信号与背景比最优且过量的二抗浓度。- 将辣根过氧化物酶(HRP)标记的山羊抗小鼠 IgG 抗体(二抗)用抗体稀释液稀释至目标浓度(例如 添加 7.5 µL 将二抗按目标稀释比例1:4000加入30 mL抗体稀释液中。
- 用 PBS 洗涤平板 3 次 300 µL 洗涤缓冲液。加入 100 µL 向每孔加入稀释的二抗,室温孵育1小时。
- 底物添加与酶标板读数
- 用洗涤液洗板5次 300 µL 洗涤缓冲液并用无绒布轻轻擦拭。
- 添加 100 µL 向每孔加入新鲜配制的底物,并在室温下孵育,直至显色达到饱和,且细胞对照孔的光密度(OD)值稳定 <0.2.
- 添加 100 µL 向所有孔中加入终止液。使用酶标仪在490 nm处读取各孔的吸光度(OD值)。
- 一抗孵育
- 细胞固定
- 半数组织培养感染剂量 50 计算
- 计算中位数OD490 细胞对照(第12列)。
- 将任何测试孔的吸光度(OD)视为490 大于中位数OD的两倍490 CC孔的 "阳性";否则,视为 "阴性".
- 计算 TCID50 使用Reed-Muench法测定病毒滴度13.
- 确定每个稀释度下的阳性数和阴性数。
- 计算 "累积阳性", "累积负值", "比率",以及 "阳性百分比" 如图所示 表1.
- 计算 "比例距离" 稀释度之间显示 >50% 阳性及显示稀释度 <50% 阳性,使用以下方法:
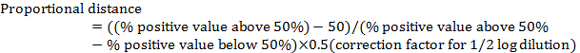
注意:校正因子用于 ½ log 稀释倍数为 0.5。例如,在 表1(80 − 50)/(80 − 20) × 0.5 = 0.25 - 计算病毒 TCID50 通过将成比例的距离加到显示稀释度的位置 > 50% 阳性。
注意:例如,在 表 2,半数组织培养感染剂量(TCID)50 是10-5+(-0.25) = 10-5.25。注意,这是TCID50 每单位病毒量 100 µL (或 10-5.25/100 µL).
- 计算病毒稀释度。对于中和试验(MN试验),将病毒稀释至200 TCID50/100 µL (相当于 100 TCID)50/50 µL 每孔
注意:在以下示例中 表1,1 TCID50 是10-5.25 在 100 µL,以及为达到200 TCID的稀释倍数50/100 µL 根据以下计算:200 × 10,结果为 1:891-5.25 = 10-2.95 = 1/102.95 = 1/891
5. 使用 MDCK-SIAT1 细胞进行微核试验
- 第1天:测试与对照血清的制备及板式设计
- 在 37 °C 水浴并解冻后立即取出。分装需要检测的血清量,至少 10 µL 一份原始血清可用于单次单病毒检测。若条件允许,测试血清应设复孔。
- 将人血清在56 °C下加热灭活30分钟 56 °C 水浴条件同步骤1.12.1。热灭活后将血清置于冰上,加入病毒稀释液使血清达到1:10的预稀释比例。
- RDE 处理与预稀释 动物血清 1:10,用于对照,参见1.12.2
注意:解冻并处理后的人和动物血清可保存于 4 °C 不超过24小时。血清应于-80℃冷冻保存。20 °C 如需在检测前长期保存,则应置于更低温度保存。 - 使用一种病毒进行检测时,加入 100 µL 1:10 稀释的血清加入至 A1 到 A10 列(图4)。加入 50 µL 将病毒稀释液加入第B至H行,第11和12列除外(图4)。从 A 行到 H 行进行 2 倍倍比稀释,并弃去最后一孔的液体 50 µL 在 H 行(图4).
注意:当需要检测多种病毒时,血清可在滴定管中进行稀释。用于测定血清滴度时,A孔血清稀释比例为1:10,B孔为1:20,C孔为1:40,D孔为1:80,E孔为1:160,F孔为1:320,G孔为1:640,H孔为1:1,280(图4). - 对于病毒对照,添加 50 µL 向 A12、B12、C12 和 D12 孔(无血清)加入病毒稀释液。对于细胞对照,添加 100 µL 加入病毒稀释液至孔 E12、F12、G12 和 H12(无病毒,无血清)。
- 对于对照血清(例如,雪貂血清对照),添加 100 µL 将稀释的对照血清加入A列第11孔 50 µL 向 B11 - H11 孔中加入病毒稀释液。进行系列稀释。
- 盖上培养板,于指定条件下孵育 37 °C,5% CO2 直到准备加入病毒时为止。
- 第1天:添加病毒
- 将病毒稀释至 100 TCID50/50 µL 用病毒稀释液。
- 添加 50 µL 除回滴定(BT)板的第11列以及所有板上的细胞对照孔E12、F12、G12和H12外,向其余所有孔加入稀释后的病毒图4对于在第11列加入对照血清的板,需向第11列加入病毒。
- 返滴定(BT)
- 在一组重复培养板的第11列加入BT(例如,培养板1A和1B)。添加 50 µL 向第11列所有孔中加入病毒稀释液。添加 50 µL 病毒的100 TCID50/50 µL 加入第一孔(A11)中,用移液器吹打混匀。
- 混合并转移 50 µL 依次加入各孔,进行2倍系列稀释。每更换一孔需更换移液器吸头,以避免病毒交叉污染。弃去 50 µL 来自 H11 孔。
- 添加 50 µL 加入病毒稀释液至第11列,使最终体积达到 100 µL轻敲培养板以混匀。
- 将培养板置于培养箱中孵育 37 °C,5% CO₂2 1小时。
- 第1天进行MDCK-SIAT1细胞接种,第2天进行ELISA,具体步骤如4.2和4.3所述(亦见5.3和5.4)。
- 第1天:MDCK-SIAT1细胞接种
- 按照步骤4.2所述方法准备MDCK-SIAT1细胞。加入 100 µL MDCK-SIAT1 细胞以 1.5 × 10⁵ cells/mL 加至每孔(1.5 × 10⁴ 细胞/孔)。将培养板置于 37 °C,5% CO₂2 18 - 20 小时。
- 第2天:ELISA
- 在过夜孵育后的第二天,按照步骤4.3所述,用80%冷丙酮固定细胞。
- 一抗孵育
- 用 PBS 洗涤平板 3 次 300 µL 洗涤缓冲液。将抗流感病毒A型核蛋白单克隆抗体(一抗)用抗体稀释液稀释至通过滴定确定的最佳浓度例如 添加 30 µL 将一抗用抗体稀释液稀释至30 mL,目标稀释比例为1:1000。
注意: 100 µL 每孔需要一抗的量。每块板大约需要10 mL。 - 添加 100 µL 将一抗稀释后加入各孔,室温孵育1小时。
- 用 PBS 洗涤平板 3 次 300 µL 洗涤缓冲液。将抗流感病毒A型核蛋白单克隆抗体(一抗)用抗体稀释液稀释至通过滴定确定的最佳浓度例如 添加 30 µL 将一抗用抗体稀释液稀释至30 mL,目标稀释比例为1:1000。
- 二抗孵育
- 用 PBS 洗涤平板 3 次 300 µL 洗脱缓冲液。将辣根过氧化物酶(HRP)标记的山羊抗小鼠IgG抗体(二抗)用抗体稀释液稀释至目标浓度(例如 添加 7.5 µL 将二抗按1:4000的目标比例稀释于30 mL抗体稀释液中。
注意: 100 µL 每96孔需加入二抗,每块板约需10 mL。 - 添加 100 µL 每孔加入稀释的二抗,室温孵育1小时。
- 用 PBS 洗涤平板 3 次 300 µL 洗脱缓冲液。将辣根过氧化物酶(HRP)标记的山羊抗小鼠IgG抗体(二抗)用抗体稀释液稀释至目标浓度(例如 添加 7.5 µL 将二抗按1:4000的目标比例稀释于30 mL抗体稀释液中。
- 底物添加与酶标仪读数
- 用 PBS 洗涤平板 5 次 300 µL 洗涤缓冲液并用无绒布擦拭。
- 添加 100 µL 向每孔加入新鲜配制的底物,并在室温下孵育,直至病毒对照孔的OD值达到预期水平490 = 0.8 - 3,细胞对照组的背景光密度较低490 <0.2.
- 添加 100 µL 向所有孔中加入终止液。使用酶标仪在490 nm处读取各孔的吸光度(OD值)。
- 数据分析
注意:每个培养板的微核(MN)计算均单独进行。- 测定每份血清样本的中和抗体滴度。
- 计算 OD490 使用以下公式计算每块板的50%病毒中和率截断值:
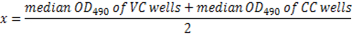
注意:此处 x 为中和截断值的 50%。对应于 OD 值最高的稀释度的血清稀释倍数的倒数490 低于临界值(≥50%抑制率)的情况被视为该血清样本的中和抗体滴度(图5).
- 计算 OD490 使用以下公式计算每块板的50%病毒中和率截断值:
- 检查细胞对照孔的OD值490 <0.2,且病毒对照孔的OD值490 = 0.8 - 3.
- 在每次检测中验证病毒的感染性(100倍TCID)50通过病毒BT进行检测。BT的可接受范围为50、100或200 TCID。若采用与步骤4.4.2中定义相同的阈值,则BT列中OD值高于阈值的最高病毒稀释度应位于E11、F11、G11孔。
注意:血清阳性对照的滴度应与之前检测获得的数值在2倍范围内。OD490 阴性血清对照的结果应与病毒对照组观察到的结果相似。
- 测定每份血清样本的中和抗体滴度。
访问受限。请登录或开始试用以查看此内容。
结果
测定病毒储备液的感染性是中和试验(MN试验)的第一步。图2展示了用于确定病毒储备液TCID50的板式布局。对于感染性未知的病毒储备液,可从多个预稀释度(例如10-2和10-3)开始进行滴定,以获得最佳滴定曲线来计算病毒的感染性。MN试验中使用的病毒量应标准化为每孔100 TCID50(50 µL)。为达到每孔100 TCID50,病毒储备液的最低稀释度为1:100。
图3 描述了使用MDCK-SIAT1细胞进行微中和试验的关键步骤。将热灭活血清在96孔板中进行系列稀释,如图所示。 图4. 100 TCID50/50 µL ...
访问受限。请登录或开始试用以查看此内容。
讨论
微量中和(MN)试验是用于流感血清学的主要试验之一,用于检测流感感染或疫苗接种后的抗体反应。许多流感血清流行病学研究常将MN试验测得的滴度作为主要结局指标。MN试验还广泛用于血清学诊断以及疫苗免疫原性的评估。已有国际多中心实验室研究对在不同实验室中进行的MN试验进行了比较14。
与血凝抑制试验(HI)不同,微量中和试验(MN)旨在直接测定能够在细胞培养中中和病毒感染的功能性抗体。目前全球各地的实验室使用多种形式的微量中和试验。该试验的读出结果(即,中和抗体存在时病毒感染性的降低可通过ELISA定量病毒NP抗体、HA定量病毒,或在抗体存在下感染病毒并在细胞培养中孵育后,对每个孔中的病毒蚀斑进行免疫染色来评估14,15基于荧光的各种形式蚀斑减少中和试验(例如,焦点减少试验和ViroSpot试验常用于大量流感病毒野外分离株的抗原特性分析,部分原因是这些试验所需的病毒量较少
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。本文的调查结果和结论仅代表作者观点,不一定代表疾病控制与预防中心和资助机构的立场。
致谢
我们感谢美国疾病控制与预防中心流感部门的卢秀华博士、刘峰博士以及阿什利·伯勒斯女士对本文准备工作的审阅与帮助 本手稿。我们感谢流感部门的Adrian Reber博士 美国疾病控制与预防中心(CDC)提供的协助,感谢其在准备图示方面给予的支持 图3最后,我们感谢德国马尔堡的 M. Matrosovich 博士提供 MDCK-SIAT1 细胞。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 杜尔贝科’含高糖的达尔伯克改良伊格尔培养基(DMEM) | 生命科学 | 11965 | 无菌细胞培养、病毒扩增与病毒稀释培养基的关键组分 |
| 胎牛血清(FBS) | Hyclone | SH30070.03 | |
| 牛血清白蛋白(BSA)第五组分,无蛋白酶 | Sigma-Aldrich | 3117332001 | |
| L-谷氨酰胺 | 生命科学 | 25030-081 | |
| 丙酮酸钠 | 生命科学 | 11360-070 | |
| 遗传霉素G-418二硫酸盐 | Sigma-Aldrich | A1720-5G | |
| HEPES | 生命科学 | 15630-080 | |
| 青霉素/链霉素 | 生命科学 | 15140-122 | |
| 丙酮 | VWR | 67-64-1 | 以80%的浓度使用 |
| 含过硼酸钠的磷酸盐-柠檬酸盐缓冲液 | Sigma-Aldrich | SLBF2806V | |
| 邻苯二胺二盐酸盐片 | Sigma-Aldrich | SLBQ1086V | 每100 ml细胞培养级水中加入1片 |
| 硫酸 | Fisher Scientific | A510-P500 | 使用终浓度为 0.5 M |
| 变性乙醇,4L | VWR | EM-AX0422-3 | 使用浓度为70% |
| 胰蛋白酶-EDTA | 生命科学 | 1748048 | |
| RDE II "Seiken" | Denka Seiken | 370013 | |
| Tween 20 | Sigma-Aldrich | P1379-500ml | |
| 抗NP小鼠单克隆抗体 | Millipore 混合液 | MAB 8257 MAB 8258 | |
| 抗小鼠 IgG HRP | KPL | 074-1802 | |
| 96孔平底板 | 赛默飞世尔科技 | 3455 | |
| 酶标仪 | 分子装置 | Spectromax 384 plus | |
| 细胞培养瓶 162 cm²/带通气盖 | Corning/VWR | 3151 |
参考文献
- Reber, A., Katz, J. Immunological assessment of influenza vaccines and immune correlates of protection. Expert Rev of Vaccines. 12, 519-536 (2013).
- Li, C. K., Rappuoli, R., Xu, X. N. Correlates of protection against influenza infection in humans--on the path to a universal vaccine? Curr Opin in Immunol. 25, 470-476 (2013).
- WHO Global Influenza Surveillance Network. Manual for the labratory diagnosis and virological surveillence of influenza. , http://whqlibdoc.who.int/publications/2011/9789241548090_eng.pdf (2011).
- Govorkova, E. A., Kodihalli, S., Alymova, I. V., Fanget, B., Webster, R. G. Growth and immunogenicity of influenza viruses cultivated in Vero or MDCK cells and in embryonated chicken eggs. Dev Biological Stand. 98, discussion 73-34 39-51 (1999).
- WHO. Recommended composition of influenza virus vaccines for use in the northern hemisphere influenza season. , http://www.who.int/influenza/vaccines/virus/recommendations/201703_recommendation.pdf?ua=1 2017-2018 (2017).
- Levine, M. Z., et al. Neutralizing Antibody Responses to Antigenically Drifted Influenza A(H3N2) Viruses among Children and Adolescents following 2014-2015 Inactivated and Live Attenuated Influenza Vaccination. Clin Vaccine Immunol : CVI. 23, 831-839 (2016).
- Lin, Y., et al. The characteristics and antigenic properties of recently emerged subclade 3C.3a and 3C.2a human influenza A(H3N2) viruses passaged in MDCK cells. Influenza Other Respir Viruses. , (2017).
- Lin, Y. P., et al. Neuraminidase receptor binding variants of human influenza A(H3N2) viruses resulting from substitution of aspartic acid 151 in the catalytic site: a role in virus attachment? J of Virol. 84, 6769-6781 (2010).
- Skowronski, D. M., et al. Mutations acquired during cell culture isolation may affect antigenic characterisation of influenza A(H3N2) clade 3C.2a viruses. Euro Surveillance. 21, 30112(2016).
- Matrosovich, M., Matrosovich, T., Carr, J., Roberts, N. A., Klenk, H. D. Overexpression of the alpha-2,6-sialyltransferase in MDCK cells increases influenza virus sensitivity to neuraminidase inhibitors. J of Virol. 77, 8418-8425 (2003).
- Oh, D. Y., Barr, I. G., Mosse, J. A., Laurie, K. L. MDCK-SIAT1 cells show improved isolation rates for recent human influenza viruses compared to conventional MDCK cells. J Clin Microbiol. 46, 2189-2194 (2008).
- US Department of Health and Human Services. Biosafety in Microbiological and Biomedical Laboratories. , (2009).
- Reed, H. M. A simple method of estimating fifty percent endpoints. The American Journal of Hygiene. 27, (1938).
- Laurie, K. L., et al. International Laboratory Comparison of Influenza Microneutralization Assays for A(H1N1)pdm09, A(H3N2), and A(H5N1) Influenza Viruses by CONSISE. Clinical Vaccine Immunol : CVI. 22, 957-964 (2015).
- Lin, Y., Gu, Y., McCauley, J. W. Optimization of a Quantitative Micro-neutralization Assay. J Vis Exp : JoVE. , (2016).
- van Baalen, C. A., et al. ViroSpot microneutralization assay for antigenic characterization of human influenza viruses. Vaccine. 35, 46-52 (2017).
- WHO. Recommended composition of infleunza virus vaccines for use in the 2015-2016 northern heamisphere infleunza season. , http://www.who.int/influenza/vaccines/virus/recommendations/2015_16_north/en 2015-2016 (2015).
- WHO. Recommended composition of influenza virus vaccines for use in the 2016-2017 northern hemisphere influenza season. , http://www.who.int/influenza/vaccines/virus/recommendations/201602_recommendation.pdf?ua=1 2016-2017 (2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
