我们介绍一种利用旋转立体视频摄像系统来计数鱼类,并估算相对丰度(MaxN)和鱼类密度的新方法。同时,我们还演示了如何利用摄像机距离(Z距离)来估算物种特异性的可检测性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
视频摄像系统在鱼类生态学研究中的应用正日益普及,成为一种可行的非侵入性方法,用于测量鱼类体长并估算鱼类丰度。我们研发并实施了一种可旋转的立体视频摄像装置,能够实现360度全方位采样,相较于固定式摄像设备,显著提高了采样效率。已有多种研究详细阐述了静态立体摄像系统在获取高精度鱼类测量数据方面的有效性;而本研究的重点在于发展利用旋转摄像系统量化鱼类密度的方法学。第一种方法是对指标MaxN进行改进,传统上MaxN指在单次摄像调查中观察到的鱼类最小数量的保守统计值。我们将其重新定义为摄像系统在任意一次完整旋转过程中所观察到的鱼类最大数量。在采取措施避免重复计数的前提下,该MaxN计算方法相较于固定摄像机所得结果,可能更准确地反映真实的鱼类丰度。第二种方法基于立体视频技术可将鱼类定位在三维空间中的特性,从而为每条鱼提供精确的摄像机距离估算。通过采用观测距离摄像机距离的95%分位数来确定各物种特异性的调查面积,我们能够在避免使用物种最大观测距离稀释密度估计值的同时,校正不同物种间可检测性的差异。考虑这一可检测性范围对于准确估算鱼类丰度至关重要。本方法学将有助于推动旋转式立体视频工具在应用科学研究与管理实践中的整合应用。
引言
在美国太平洋沿岸,许多对商业和休闲底栖鱼类渔业重要的物种(例如,石斑鱼复合体(Sebastes 物种)和狗鱼(Lingcod)Ophiodon elongatus)与高起伏的硬质基底生境密切相关1,2,3,4,5立体视频落放式相机由于操作相对简便,是用于岩石栖息地的一种理想的非侵入性工具。多种立体视频相机系统已在南半球浅水生态系统中被研发并投入使用6,7,8,9,10,最近,视频落水摄像机作为管理太平洋沿岸深水岩礁环境的一种工具,已逐渐得到应用11,12,13我们试图通过使用立体视频相机系统(下文简称 "兰德")以更高效地表征中太平洋海岸带高起伏海底地形中的鱼类种群(参见 材料表)。所使用的着陆器与现有的视频系统不同,因为其摄像头安装在一根中央旋转杆上,可在投放位置对海底进行360°全方位覆盖拍摄14着陆器每分钟完成一次完整旋转,使我们能够快速表征某一区域的生物丰度和群落组成,并以较少的着陆器布放次数达到相同的统计功效。(参见 Starr (2016))14 有关兰德配置的具体细节,请参见相关文献)。在本研究系统中进行的初步测试表明,调查过程中相机旋转八圈足以表征物种丰度和丰富度。该结论基于在更长时间下放过程中观察到的物种丰度和鱼类密度的边际效益递减现象。我们建议,在任何新系统中应开展包含更长浸泡时间的预试验,以确定特定生态系统或目标物种的最优浸泡时间。
通过使用配对的立体相机,可以计算每次视频调查的总调查面积和鱼类绝对密度;然而,旋转相机的使用 necessitated 对传统鱼类计数指标的修改。固定式视频系统最常使用"MaxN"作为单次布放中鱼类数量的保守估计值6,10。传统的MaxN定义为在单个视频帧中同时观察到的某一鱼类物种的最大数量,以避免对离开后又返回画面的个体进行重复计数。因此,MaxN是对已知存在个体数的最小估计值,可能低估真实的鱼类丰度6,10。本研究将MaxN指标重新定义为在相机每完成一次完整旋转过程中所观察到的鱼类最大数量。
对以往立体视频方法的第二项改进是考虑到不同大小、颜色和形状的物种具有不同的可靠识别最大距离。例如,体型较大的物种,如 O. elongatus 具有明显的细长体型,与方斑刺尾鱼(Squarespot Rockfish)等体型较小且隐蔽的物种相比,能够在远得多的距离上被可靠地识别Sebastes hopkinsi)。这些不同的最大可检测范围会改变着陆器对每个物种的有效采样面积。由于立体相机能够以较高的精度将每条鱼定位在三维空间中,因此可以确定每条鱼被测量时与相机之间的距离(即,该 "Z 距离",以……命名 "z轴" 垂直于相机之间连线的方向)。对于每个物种,观测到95%个体所处的距离范围(以下简称 "95% Z 距离") 被视为调查区域的半径,并用于计算调查的总面积。除了物种特异性特征外,可识别性还会受到水体浊度等环境条件的影响。由于这些因素在时间和空间上可能发生变化,因此重要的是仅将95% Z统计量用于汇总数据。尽管该统计量在大样本情况下具有很高的准确性,但单次调查的覆盖面积仍可能存在差异。
以下详述的方案提供了创建和使用这些指标的指导。尽管本研究的重点是表征太平洋沿岸的深水岩礁生境,但所描述的改进型MaxN计数方法可轻松应用于任何旋转式投放摄像系统。用于表征鱼类种群所需的摄像机旋转次数将取决于当地生态系统的动态特征,但改进型MaxN的概念保持不变。同样,尽管我们使用了三维摄影测量软件来分析立体视频,但本文所述技术可轻易推广至不同软件平台,只要能够精确定位鱼类在三维空间中的位置即可。此外,在未来使用立体摄像机的研究中,可考虑采用95% Z轴距离值的方法,以反映物种特异性的可检测范围,并更准确地计算鱼类丰度。
访问受限。请登录或开始试用以查看此内容。
方案
注意:软件操作步骤的截图作为补充文件提供。请注意,下述软件操作步骤仅适用于所选用的软件(参见材料表)。该整体方法可推广至任何立体成像软件平台。
1. 准备用于分析的立体相机影像
注意:建议使用校准立方体进行校准。校准立方体是一种三维铝制框架,其表面精确分布有反射点。当与校准软件配合使用时,校准立方体相比棋盘格方法可实现更高的精确度和准确性9。
- 使用立体校准软件对Lander相机进行校准(图1 和 图2;参见 材料列表 (如需软件推荐)
注意:在野外使用前,可通过测量不同距离处已知尺寸的目标来验证校准效果(参见 补充视频 150厘米目标物在3米(或更短)距离下的平均测量误差应控制在已知目标长度的2%以内。还需注意,校准结果仅在相机相对位置保持不变的情况下有效。在完成所有采样前,必须小心操作,避免相机受到意外扰动。 - 使用校准后的Lander采集野外数据图1, 补充视频 2).
- 野外研究完成后,创建一个包含视频文件和校准文件的新项目文件夹。
注意:每个项目文件夹中必须至少包含五个文件:左侧和右侧的“.Cam”校准文件、左侧和右侧的视频文件(仅限.MP4或.AVI格式)以及物种列表文件(.txt格式)。 - 在立体测量软件中,新建一个测量项目,并加载相应的视频和校准文件。
注意:所有软件操作步骤的截图均可在以下内容中找到 补充文件.- 导航至“Measurement” > 新建测量文件
- 通过导航至“Picture”来设置图片目录 > 设置图片目录,并选择包含所有项目文件的文件夹。
- 通过导航至“Stereo”加载左相机的“.Cam”文件 > 相机 > 左侧 > 加载相机文件并选择相应的文件。
- 重复步骤 1.4.3 以加载右侧相机的“.Cam”文件
注意:这些文件包含每台相机的校准测量数据例如像素大小、宽高比、径向畸变、离心畸变 等等。)并将用于测量鱼类并计算其与相机的距离(即,Z 距离。 - 通过导航至“Picture”来定义左侧视频文件的电影序列 > 定义电影序列并选择左相机视频文件。
- 通过选择“图片”将左侧视频文件载入测量软件 > 加载图片
注意:加载视频文件前,请确保取消勾选“锁定”选项框。这将允许两个视频同时加载。 - 定义电影序列,并使用“Stereo”菜单为右侧视频加载视频文件 > 图片 > 定义电影序列 和 立体成像 > 图片 > 加载图片
- 通过导航至“Measurement”加载物种列表 > 属性 > 编辑/加载物种文件
- 在“信息字段”下输入调查 ID 信息 > 编辑字段值并保存文件以创建.EMObs项目。
- 使用光闪、拍手、协调世界时(UTC)时间戳或在两段视频中均发生的任何特定时间事件来同步视频。
- 若使用UTC时间戳,则在左侧视频中逐帧前进,直至时间戳进入下一秒。否则逐帧前进,直至出现光闪或拍手信号。
- 将右侧视频逐帧向前推进,直至时间戳与左侧视频完全一致。否则,逐帧向前推进,直至闪光或拍手的精确时刻与左侧视频完全匹配。
注意:视频必须同步到同一帧。应定期使用视频时间戳检查视频同步情况,以避免在分析过程中出现相机帧漂移。也可在视频开始和结束时拍摄一次击掌,以检验左右视频是否已同步到同一帧。
- 单击“锁定”按钮,以确保视频同步播放并保持同步。
2. 生成点计数并计算 MaxN
注意:每条鱼最初都需标记为二维点,并尽可能精确到最低分类等级。对于鉴定不确定的鱼,应进行标记以便后续复查。
- 等待摄像机完成一整圈旋转后再开始计数鱼类,以确保使用完整的360度范围。同时,需等待沉积物沉降清晰后(通常 <接触底部后1至2分钟
- 一旦着陆器开始首次旋转,立即右键单击以定义新的采样周期:“周期定义” > 添加新起始周期。将第一个周期名称输入为“01”,然后点击“OK”。
- 当Lander旋转时,仅使用左相机对进入画面的每条鱼标记一个二维点。
- 右键单击以添加二维点,选择“添加点”,并选择正确的物种名称。尽可能标注到最低分类阶元,未知物种请选择“spp.”,然后点击“OK”。
- 继续按照步骤 2.2.1 标记每一条新鱼,直至轮转结束。
- 对每次额外的 Lander 旋转重复步骤 2.1 - 2.2,确保在每次相机旋转开始时定义一个新的周期。
注意:本研究采用物种累积曲线确定,平均进行八次相机旋转足以表征鱼类丰度。研究人员应考虑在更长的浸泡时间内进行额外相机旋转的预试验,以确定特定生态系统内相机旋转的最佳次数。 - 计算每次相机轮换中观测到的各物种个体数量。
- 在完成所有旋转的枚举后,通过导航至“Measurement”导出二维点 > 测量摘要 > “点测量”并将二维点保存为 .txt 文件。
- 打开保存的 2D.txt 点文件作为电子表格,创建物种与旋转次数的透视表以汇总计数(表1) 通过导航至“插入” > “数据透视表”。将“属和种”选为“行标签”,将“时期”选为“列标签”。
- 根据每种物种选择个体数量最多的相机旋转角度,以确定该物种的 MaxN。表1).
- 对于仅鉴定到属的鱼类,根据该属中鉴定到种的个体数量最多的轮次,选择一个属水平的 MaxN。
注意:此步骤有助于避免对仅能鉴定到较高级分类单元的个体鱼类重复计数例如,仅限于属或科)。例如,在 表1,“旋转1”包含10个未识别的 Sebastes 种和33个属的成员 Sebastes 鉴定到种,而“第3轮旋转”仅包含两个未鉴定的 Sebastes spp. 和 43 个属的成员 Sebastes 鉴定到种。因此,“rotation 3”将用于未知样本的最大MaxN计数 Sebastes spp. 通过这种方式,保守地假设8个未鉴定的 Sebastes 在“轮作8”中鉴定出“轮作1”中的spp. - 若多个旋转角度在特定物种中具有相同的最大点数(MaxN),则选择其中第一个达到最大点数的旋转角度用于三维点测量。
- 针对每个物种,对出现最大鼻尖距离(MaxN)时的鱼类旋转状态进行三维测量。
- 使用在步骤 2.1 - 2.3 中保存的二维点,精确定位到同一条鱼以进行三维测量。
- 至少放大4倍,以便更好地识别鱼吻部尖端和尾鳍边缘(图3).
注意:可能需要前后调整帧位置,以找到适合进行三维测量的鱼体最佳朝向。“最佳”朝向是指在两个相机视野中均能清晰看到鱼的吻部和尾鳍边缘的位置。 - 手动点击左摄像头视频中吻部尖端,然后点击尾部边缘;接着在右侧视频中以相同顺序重复上述选择。
- 从下拉菜单中选择正确的物种鉴定,操作方法同2.2.1节。
- 若无法进行三维长度测量(例如,鱼类的头部和尾部未在双摄像头中同时可见),则需通过分别在左右视频中左键点击鱼体的同一位置来标记一个三维点。如前所述填写信息字段,并备注“排除于长度测量之外”。
注意:不同物种的 MaxN 可能出现在相机的不同旋转角度下;但对于任一特定物种,测量应仅在一种旋转角度下进行(表1).
- 完成所有鱼类的三维测量后,将数据导出为 .txt 文件以供进一步分析。
- 导航至“Measurement” > 测量摘要 > 3D 点和长度测量,并将结果保存为 .txt 文件以导出。
3. 物种特异性调查区域的95% Z距离法
注意:95% Z 距离用于估算在特定研究中能够可靠识别某一物种的平均距离,同时排除水体透明度或光照条件异常的情况。该计算考虑了特定研究区域的平均海洋学条件,且需针对每项新研究重新计算。
- 使用简单的自助法(bootstrapping)来确定样本量是否足以表征每种物种可靠检测距离的特征。
- 对于每个样本尺寸类别(例如,以5条鱼为样本量区间),从样本总体中进行1,000次有放回的随机抽样,每次抽样量为选定的样本量,计算这1,000次抽样的距离的平均95%分位数,并绘制所得的渐近曲线。参见提供的代码 补充文件 1 & 2.
- 通过将实际样本量与随样本量增加而趋近的95% Z值距离渐近线进行比较,验证是否获得了足够的样本。
- 将物种在所有调查中测得的相机距离的第95百分位数计算为95% Z距离值。
- 使用95% Z值计算每种物种的调查有效面积。
注意:对于旋转式着陆器,95% Z值表示测量条带的外半径,内半径则由仪器的物理结构以及相机能够观测到距离基座多近的位置决定。随着着陆器旋转,形成一个环形(类比为“甜甜圈”形状)的测量区域(图4).- 计算调查面积,公式如下:
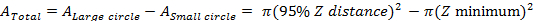
注意:例如,像黄眼岩鱼(Yelloweye Rockfish)这样体型相对较大的物种Sebastes ruberrimus) 的95% Z距离为3.3 m,有效调查面积为30.9 m2 每次投放Lander:34.3 米2 (外圈)- 3.4 米2 (内圈)= 30.9 米2 (总调查面积)
- 计算调查面积,公式如下:
- 根据计算出的调查面积(步骤 3.3.1),利用以下公式将每次视觉调查中各物种的个体数量(MaxN)转换为密度估计值:
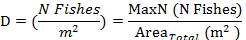
注意:可采用类似方法计算体积密度而非面密度;但该过程不在本文描述范围内。
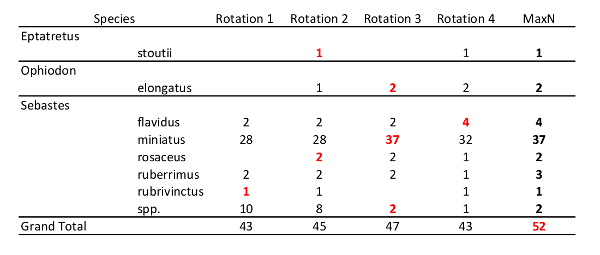
表 1:MaxN 汇总表示例。每种物种的 MaxN 选择以红色加粗文本标出。请注意,对于未鉴定到种的Sebastes spp.,其保守的 MaxN 是根据鉴定到种的Sebastes数量最多的轮转(轮转 3)确定的。此外,尽管本研究使用了八次相机轮转,为简化起见,表 1 中仅展示了四次轮转。无论轮转次数多少,MaxN 的选择过程均相同。
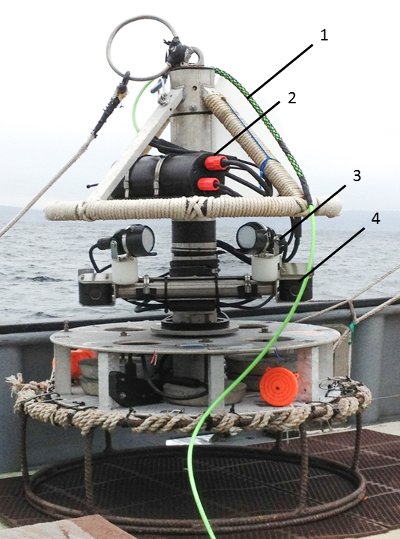
图1:立体视频着陆器。关键硬件编号如下:(1) 300米脐带缆,(2) 两个内置可拆卸32GB存储卡的数字视频录像机(DVR),置于防水舱内,(3) 两个LED灯,色温为5,000 K,输出光通量为3,000流明,以及(4) 两台分辨率为620电视线(TVL)的摄像机。请点击此处查看此图的放大版本。
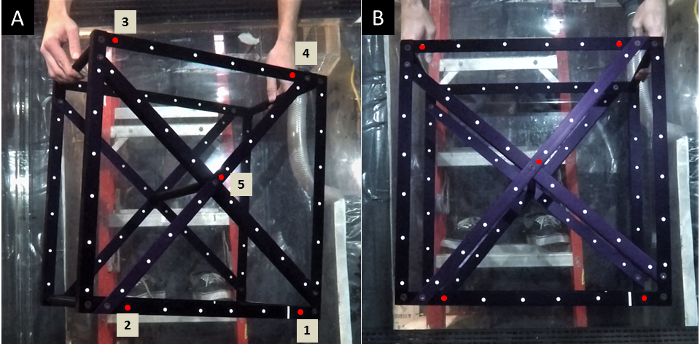
图2:校准立方体(500 mm × 500 mm × 300 mm)。使用“校准立方体”进行校准的示例,显示两种不同取向:(A) 立方体的右侧向外推,朝向相机;(B) 立方体的面与相机的面平行。红点表示该特定校准方法中使用的参考点,必须始终按编号顺序识别。请点击此处查看该图的放大版本。
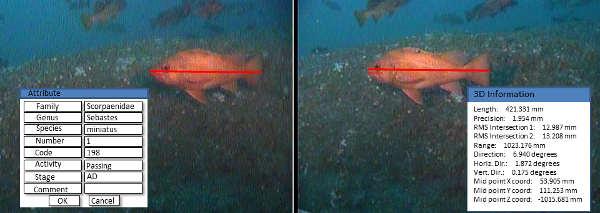
图3:在Sebastes miniatus上进行的三维测量。在每个相机帧中识别出吻端和尾端,以实现立体测量。请点击此处查看此图的放大版本。
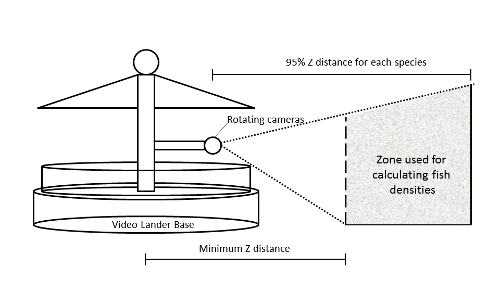
图 4:Lander 工具调查的区域。Lander 工具的有效调查区域由每种物种的最小 Z 距离和 95% Z 距离界定。请注意,该区域在 Lander 周围形成了一个“环形”(类似圆环)的调查体积。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
2013年至2014年间,我们在中国台湾加利福尼亚州中部沿海地区使用旋转立体视频着陆器(图1)进行了816次调查,收集了20多个物种的最大观测数量(MaxN)和95% Z距离(图4)数据。观测到的物种有效可检测范围呈现出明显的规律,这可能与物种的体型、形状和体色特征相互作用有关(图5)。例如,条纹平鲉(Sebastes rubrivinctus)体侧具有明显的条纹,使其在较远距离上仍能被准确识别,识别距离超过其他体型相近的物种。类似地, Canary Rockfish(Sebastes pinniger)体型相对较大,但其体色与其他物种相似,因此在远距离时更难准确识别(图5)。
我...
访问受限。请登录或开始试用以查看此内容。
讨论
传统的 MaxN 指标基于在调查期间统计一定数量个体的最低保证值这一概念。如果在单个视频帧中同时观察到一定数量的鱼类,则实际存在的个体数不可能更少;但由于鱼类具有移动性且呈异质分布,在单个视频帧中同时看到所有个体的可能性较低。因此,传统的 MaxN 很可能低估了鱼类的真实丰度16,17。此外,已有研究表明,随着鱼类丰度的增加,传统的 MaxN 可能表现出非线性的负偏差关系16,18。这可能与“渔具饱和”现象有关,即相对丰度指数无法检测到真实丰度的增加19,20。相反,当鱼类真实丰度下降时,指数却表现出明显的稳定性,这种现象被称为“超稳定性”,最终可能导致鱼类种群崩溃21,22
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露
致谢
本工作由大自然保护协会(The Nature Conservancy)和私人捐赠者、资源遗产基金基金会(Resources Legacy Fund Foundation)、戈登和贝蒂·摩尔基金会(Gordon and Betty Moore Foundation)、环境防御基金(Environmental Defense Fund)、加利福尼亚海拨项目(California Sea Grant Program)、美国国家海洋渔业局国家合作研究计划(NMFS National Cooperative Research Program)以及美国国家海洋和大气管理局萨尔顿斯托尔-肯尼迪资助项目(NOAA Saltonstall-Kennedy Grant #13-SWR-008)资助。Marine Applied Research and Exploration(Dirk Rosen、Rick Botman、Andy Lauerman 和 David Jefferies)负责视频着陆器工具的开发、建造与维护。我们感谢 Jim Seager 和 SeaGIS™ 软件提供的技术支持。船长兼商业渔民 Tim Maricich 及其在渔船 Donna Kathleen 上的船员在2012年至2015年期间协助完成了着陆器的布放工作。感谢所有参与视频数据采集或分析的人员(Anne Tagini、Donna Kline、Amber Payne 中尉、Bryon Downey、Marisa Ponte、Rebecca Miller、Matt Merrifield、Walter Heady、Steve Rienecke、EJ Dick 和 John Field)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 校准立方体 | SeaGIS | http://www.seagis.com.au/hardware.html | 首选尺寸为1000x1000x500 mm。也可采用其他校准方法。 |
| CAL 校准软件 | SeaGIS | http://www.seagis.com.au/bundle.html | |
| EventMeasure 立体测量软件 | SeaGIS | http://www.seagis.com.au/event.html | |
| 统计软件 | R Core Team 2017(版本 3.4.0) | 自举代码可在此处获取:https://github.com/rfields2017/JoVE-Bootstrap-Function | |
| 电子表格软件 | Microsoft Excel | ||
| 2 防水相机 | 深海能源与照明 | 推荐使用高清质量 | |
| 2 个深度防水灯 | 深海电源与照明:3000流明LED,色温5000K | ||
| DVR 录像机 | Stack LTD 数字视频记录仪 | ||
| 标准PC | 首选操作系统:Windows 10 | ||
| 旋转着陆平台 | 海洋应用研究与工程(MARE) |
参考文献
- Love, M. S., Yoklavich, M. M., Thorsteinson, L. K. The Rockfishes of the Northeast Pacific. , University of California Press. Berkley. (2002).
- Laidig, T. E., Watters, D. L., Yoklavich, M. M. Demersal fish and habitat associations from visual surveys on the central California shelf. Estuar. Coast. Shelf Sci. 83 (4), 629-637 (2009).
- Anderson, T. J., Yoklavich, M. M. Multiscale habitat associations of deepwater demersal fishes off central California. Fish. Bull. 105 (2), 168-179 (2007).
- Yoklavich, M. M., Cailliet, G. M., Sullivan, D. E., Lea, R. N., Love, M. S. Habitat associations deep-water rockfishes a submarine canyon an example of a natural refuge. Fish. Bull. 98 (3), 625-641 (2000).
- Status of the Pacific Coast Groundfish Fishery, Stock Assessment and Fishery Evaluation. , Pacific Fishery Management Council. Portland, OR. (2016).
- Cappo, M., Harvey, E., Malcolm, H., Speare, P. Potential of video techniques to monitor diversity, abundance and size of fish in studies of marine protected areas. Aquatic protected areas- What works best and how do we know. Beumer, J. P., Grant, A., Smith, D. C. , Proc. World Congr. on Aquat Protected Areas. Australian Soc. for Fish Bio. North Beach, Western Australia. 455-464 (2003).
- McLean, D. L., Green, M., Harvey, E. S., Williams, A., Daley, R., Graham, K. J. Comparison of baited longlines and baited underwater cameras for assessing the composition of continental slope deepwater fish assemblages off southeast Australia. Deep-Sea Research Part I: Oceanographic Research Papers. 98, 10-20 (2015).
- Parker, D., Winker, H., et al. Insights from baited video sampling of temperate reef fishes: How biased are angling surveys. Fish. Res. 179, 191-201 (2016).
- Boutros, N., Shortis, M. R., Harvey, E. S. A comparison of calibration methods and system configurations of underwater stereo-video systems for applications in marine ecology. Limnol. Oceanogr. Methodss. 13 (5), 224-236 (2015).
- Harvey, E. S., Cappo, M., Butler, J. J., Hall, N., Kendrick, G. A. Bait attraction affects the performance of remote underwater video stations in assessment of demersal fish community structure. Mar. Ecol. Prog. Ser. 350, 245-254 (2007).
- Watson, J. L., Huntington, B. E. Assessing the performance of a cost-effective video lander for estimating relative abundance and diversity of nearshore fish assemblages. J. Exp. Mar. Bio. Ecol. 483, 104-111 (2016).
- Easton, R. R., Heppell, S. S., Hannah, R. W. Quantification of Habitat and Community Relationships among Nearshore Temperate Fishes Through Analysis of Drop Camera Video. Mar. Coast. Fish. 7 (1), 87-102 (2015).
- Hannah, R. W., Blume, M. T. O. Tests of an experimental unbaited video lander as a marine fish survey tool for high-relief deepwater rocky reefs. J. Exp. Mar. Bio. Ecol. 430, 1-9 (2012).
- Starr, R. M., Gleason, M. G., et al. Targeting Abundant Fish Stocks while Avoiding Overfished Species: Video and Fishing Surveys to Inform Management after Long-Term Fishery Closures. Plos One. 11 (12), 0168645(2016).
- Love, M. S. Certainly more than you want to know about the fishes of the Pacific Coast: a postmodern experience. , Really Big Press. Santa Barbara, CA. (2011).
- Campbell, M. D., Pollack, A. G., Gledhill, C. T., Switzer, T. S., DeVries, D. A. Comparison of relative abundance indices calculated from two methods of generating video count data. Fish. Res. 170, 125-133 (2015).
- Cappo, M., Speare, P., De'ath, G. Comparison of baited remote underwater video stations (BRUVS) and prawn (shrimp) trawls for assessments of fish biodiversity in inter-reefal areas of the Great Barrier Reef Marine Park. J. Exp. Mar. Bio. Ecol. 302 (2), 123-152 (2004).
- Schobernd, Z. H., Bacheler, N. M., Conn, P. B., Trenkel, V. Examining the utility of alternative video monitoring metrics for indexing reef fish abundance. Can. Jour. Fish. Aquat. Sci. 71 (3), 464-471 (2014).
- Hansen, M. J., Schorfhaar, R. G., Selgeby, J. H. Gill-Net Saturation by Lake Trout in Michigan Waters of Lake Superior. North Am. J. Fish. Manag. 18 (4), 847-853 (1998).
- Dauk, P. C., Schwarz, C. J. Catch estimation in the presence of declining catch rate due to gear saturation. Biometrics. 57 (1), 287-293 (2001).
- Hilborn, R., Walters, C. J. Quantitative Fisheries Stock Assessment Choice, Dynamics and uncertainty. , Springer. Dordrecht. (1992).
- Erisman, B. E., Allen, L. G., Claisse, J. T., Pondella, D. J., Miller, E. F., Murray, J. H. The illusion of plenty: hyperstability masks collapses in two recreational fisheries that target fish spawning aggregations. Can. Jour. Fish. Aquat. Sci. 68, 1705-1716 (2011).
- Buckland, S. T., Anderson, D. R., Burnham, K. P., Laake, J. L. Distance Sampling: Estimating abundance of biological populations. , Chapman and Hill. London. (1993).
- Ronconi, R. A., Burger, A. E. Estimating seabird densities from vessel transects: Distance sampling and implications for strip transects. Aquat. Bio. 4 (3), 297-309 (2008).
- Caselle, J. E., Rassweiler, A., Hamilton, S. L., Warner, R. R. Recovery trajectories of kelp forest animals are rapid yet spatially variable across a network of temperate marine protected areas Recovery trajectories of kelp forest animals are rapid yet spatially variable across a network of temperate marine protected. Nat. Publ. Gr. , 1-14 (2015).
- Starr, R. M., Wendt, D. E., et al. Variation in Responses of Fishes across Multiple Reserves within a Network of Marine Protected Areas in Temperate Waters. Plos One. 10 (3), 0118502(2015).
- Lester, S., Halpern, B., et al. Biological effects within no-take marine reserves: a global synthesis. Mar. Ecol. Prog. Ser. 384, 33-46 (2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
