本论文描述了在活细胞成像中应用基因编码的荧光生成报告系统,用于检测外源性物质诱导的氧化应激。该实验方法具有无与伦比的空间-时间分辨率、灵敏度和特异性,同时避免了传统毒理学氧化应激检测方法的诸多局限性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
尽管氧化应激是一种常见的毒理学机制,但研究该过程的传统方法存在诸多缺陷,包括样品破坏、可能引入人为假象,以及对所涉及活性物质缺乏特异性。因此,毒理学领域迫切需要一种非破坏性、高灵敏度且特异性的方法,用于观察和量化细胞内氧化还原状态的扰动,即通常所说的氧化应激。本文介绍了一种利用两种基因编码的荧光探针 roGFP2 和 HyPer 进行活细胞成像,以观察外源性物质诱导的氧化应激反应的方法。roGFP2 可与谷胱甘肽氧化还原电位(EGSH)达到平衡,而 HyPer 则可直接检测过氧化氢(H2O2)。这两种探针均可通过转染或转导的方式在多种细胞类型中表达,并可靶向至特定的亚细胞区域。最重要的是,利用这些探针进行活细胞显微成像可实现传统方法无法达到的高空间和时间分辨率。在依次使用 404 nm 和 488 nm 激发光激发后,于 510 nm 处监测到的荧光强度变化即为这两种基因编码荧光探针的检测信号。这一特性使两种探针均具有比率型检测能力,可消除常见的显微成像假象,并校正细胞间探针表达水平的差异。该方法适用于所有能够在指定波长下进行激发和发射光采集的荧光检测平台,因此可与共聚焦成像系统、常规宽场显微镜以及微孔板检测仪联合使用。这两种基因编码的荧光探针已在多种细胞类型和毒理学研究中被广泛应用,用于实时监测细胞内 EGSH 和 H2O2 的生成。本文概述了一种标准化的方法,该方法在不同细胞类型和荧光检测平台上均具有广泛的适用性,可用于基于 roGFP2 和 HyPer 的活细胞氧化应激毒理学评估。
引言
“"氧化应激"”这一术语在毒理学中常被引用为一种机制,但该术语的具体定义却很少被明确阐述。氧化应激可指代多种细胞内过程,包括活性氧的生成、自由基造成的损伤、抗氧化分子的氧化,甚至特定信号通路的激活。已有文献记录表明,多种环境污染物1,2和药物制剂3,4均可通过外源性化合物本身的直接作用5,6,或通过细胞反应过程中继发性产生活性氧化物7,8,9,10,从而诱导氧化应激。因此,在毒理学中,准确观察和表征导致不良结局的氧化过程具有重要意义。传统测量氧化应激的方法包括检测被氧化的生物分子11,12,13,14,15或抗氧化剂16,17,18,19,20,或直接测定活性物质本身21,22,23,24。然而,这些方法通常需要破坏细胞,往往消耗样品,丧失空间分辨率,并可能引入人为假象25。因此,开发更灵敏且特异的检测氧化物种类及氧化应激标志物的方法,对于研究外源性物质暴露所导致的不良效应具有广泛的应用价值。
利用新一代基因编码的荧光探针进行活细胞显微成像,已成为监测活细胞内氧化还原状态的有力工具。这些探针通常通过转染或转导方法,借助病毒启动子控制的载体进行表达。由于表达荧光探针的细胞可通过视觉轻松识别,因此并不需要很高的表达效率。在毒理学评估中,可在荧光显微镜下实时观察表达这些探针的细胞在接触外源性化合物时的反应。这种实验设计允许对同一细胞进行多次测量,使每个细胞自身的基线水平作为其内部对照。活细胞成像所提供的高时间分辨率非常适合检测氧化事件,尤其是那些幅度较小或短暂发生的事件。除了对目标分子具有高灵敏度和特异性外,部分此类探针的荧光还可被两种不同波长的光激发。这一特性使得荧光发射信号可以以比值形式表示,从而能够区分由探针真实响应引起的信号变化与由表达水平差异、细胞厚度、光源强度波动、光漂白或荧光检测器灵敏度等伪影所导致的信号变化26。使用荧光探针的另一优势在于,它们可被靶向定位至特定的亚细胞区域,从而实现传统方法无法比拟的空间分辨率25,26,27。
目前已开发并表征了一大类基于绿色荧光蛋白(GFP)的遗传编码传感器,用于检测多种生理指标,包括pH值、温度、钙离子浓度以及ATP/ADP比值25,28,29,30,31。其中包含用于检测谷胱甘肽氧化还原电位(EGSH)和过氧化氢(H2O2)的传感器。尽管这些传感器最初是为氧化还原生物学与生理学研究而设计,但也已被改造用于研究外源物质诱导的氧化应激。具体而言,本文所述方案描述了EGSH传感器roGFP2和H2O2传感器HyPer的使用方法。
roGFP2 通过涉及谷胱甘肽过氧化物酶(GPx)、谷氧还蛋白(Grx)和谷胱甘肽还原酶(GR)的氧化还原中继系统,报告细胞内还原型与氧化型谷胱甘肽(GSH/GSSG)的氧化还原电位(图1)25,32,33。谷胱甘肽是细胞内主要的抗氧化分子,在胞质溶胶中主要以还原形式(GSH)存在,浓度达毫摩尔级别25,34。尽管EGSH尚未与任何特定功能结果直接关联,但它被公认为是细胞内氧化状态的重要指标34。GSSG浓度的轻微升高即可引起EGSH的上升,该变化可被roGFP2检测到。同样重要的是,在外源物质暴露过程中利用roGFP2监测EGSH,可能揭示氧化还原中继系统及相关通路(如磷酸戊糖旁路)中多个环节的作用机制(图1)35。本文讨论的第二种传感器HyPer,是一种源自将黄色荧光蛋白(YFP)插入细菌过氧化氢敏感性转录因子OxyR1调控域而构建的细胞内H2O2探针36。尽管H2O2过去曾被视为一种有害的活性氧中间体,但越来越多的研究表明,在生理条件下H2O2也是一种重要的细胞内信号分子37,38,提示H2O2在毒理学中可能还存在尚未被认识的作用。例如,外源物质暴露诱导产生的过量H2O2可能成为细胞信号传导失调或生物能量状态改变的前兆。
两种基因编码的荧光发生传感器已在多种 established 细胞系中表达,包括人表皮样癌细胞系 A431 和人支气管上皮细胞系 BEAS-2B,以观察 E 的变化GSH 和 H2O2 以应对多种毒理学暴露,包括气态污染物(臭氧35),可溶性颗粒物组分(1,2-萘醌39,40 和锌41),以及镍纳米颗粒(未发表数据)。这些研究仅展示了这两种传感器可能应用范围的一小部分。理论上,任何能够通过常规分子生物学技术接收并表达这些传感器DNA的细胞类型,均可用于评估疑似改变细胞氧化状态的外源性物质的作用。迄今为止,这些传感器中的一种或多种已在多种原核生物和真核生物中得到表达,包括多种哺乳动物、植物、细菌和酵母细胞类型。25,26,36,42. 两种E的读数GSH 和 H2O2 传感器的变化表现为在488 nm和404 nm光激发下,于510 nm处发射的荧光强度发生改变。该方法可广泛适用于多种荧光检测平台,包括各类显微镜(共聚焦和宽场)及酶标仪。本文所述方法可实现对细胞内E的灵敏且特异的观测GSH 和 H2O2 在 体外 毒理学系统。
访问受限。请登录或开始试用以查看此内容。
方案
1. 细胞的制备
注意:本实验步骤描述了使用慢病毒转导永生化细胞系(BEAS-2B;ATCC,Manassas,VA)以表达目标报告蛋白(roGFP2 或 HyPer)的方法。也可使用其他细胞系/类型和/或基因转导方法(包括转染),只要其能够实现足够的报告蛋白表达水平,从而在每个视野中观察到足够数量的传感器表达细胞(通常为 5 - 10 个细胞)。若采用转染方法,应在最终用于分析的培养皿中直接进行操作(例如,在将用于显微镜观察的同一培养皿中转染细胞)。下述步骤详细说明了在 6 孔细胞培养板中进行细胞转导的准备工作。若该培养格式不适用于目标应用,可替换为其他规格的培养容器。
- 将细胞在正常生长培养基中培养至约 40 - 60% 汇合度。
注意:本研究使用人支气管上皮细胞系 BEAS-2B,培养于角质形成细胞生长培养基(KGM)中。 - 转导前,将细胞上的生长培养基更换为 500 µL 含适当病毒量的无血清培养基,病毒量按以下公式计算:
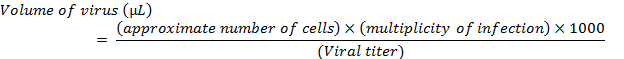
- 对于 BEAS-2B 细胞的转导,在病毒感染孵育期间,使用无血清的角质形成细胞基础培养基(KBM)替换 KGM 生长培养基。
注意:上述计算适用于 6 孔板中单孔细胞的一次转导。如需对多个孔进行转导,可通过将公式乘以待转导孔数进行调整。进行慢病毒转导时,使用 5 至 20 的感染复数(MOI);进行腺病毒转导时,使用 100 至 500 的 MOI。
- 对于 BEAS-2B 细胞的转导,在病毒感染孵育期间,使用无血清的角质形成细胞基础培养基(KBM)替换 KGM 生长培养基。
- 将细胞与病毒混合物在 37 °C 下孵育 4 小时,每隔 30 至 60 分钟轻轻摇动或旋转培养皿,以重新分布病毒颗粒。
- 向培养皿中加入 1 mL 完全生长培养基,并在 37 °C 下继续孵育 4 - 16 小时。
- 移除所有培养基,并更换为新鲜的完全生长培养基。
- 继续培养和传代细胞,根据需要进行扩增。
注意:细胞通常在 12 - 48 小时内开始明显表达传感器。若使用慢病毒载体进行转导,目标传感器的稳定表达将在后续传代中持续存在。 - 对于基于显微镜的检测,将细胞接种至玻璃底培养皿中,并在成像前培养至所需汇合度(≥70 - 80%)。
注意:接种密度取决于培养皿尺寸、所用细胞系的生长速率以及接种后检测的时间点。例如,将 300,000 个 BEAS-2B 细胞接种至 35 mm 培养皿中,经过 1 天培养后可达到约 70 - 80% 汇合度。
2. 显微镜设置
注意:以下所述方案使用配备404 nm和488 nm激光线的共聚焦显微镜进行。采用其他方法在本方案所述传感器规定的激发/发射波长下进行荧光检测,也应可获得有效的数据。重要的是,仪器设置可能因所用仪器的类型、使用年限和状态不同而存在显著差异;因此,文中提及的任何仪器参数值可能不适用于其他实验室所用的设备。
- 使用环境控制系统进行所有成像分析,以在整个实验过程中维持适宜的温度(例如 37 °C)、湿度(通常 >95% 相对湿度)和/或气体浓度(例如,5% CO2),确保细胞处于合适环境。
- 若使用高相对湿度,应将可能接触加湿气氛的任何表面(例如,显微镜物镜)保持在等于或略高于湿度生成温度的水平,以防止冷凝。可通过使用物镜加热器和/或加热带以及适当的加热控制器实现此目的。
- 开启所有显微镜组件,并设置所需设备,以实现 488 nm 和 404 nm 的顺序激发及 510 nm 的发射。确保光学配置的所有组件均正确设置,以支持实时图像采集。
- 设置台面式环境培养箱,以维持 37 °C 恒温、5% CO2 气氛和 >95% 湿度。在开始图像采集前,完成所有环境控制设置后,需使环境培养箱平衡至少 10 分钟。
NOTE: 环境条件可根据实验时长、细胞类型及所用曝光条件进行省略或调整。 - 将细胞培养皿(步骤 1.7)放置于环境培养箱内的载物台上。
- 使用目标物镜,通过目镜和白光找到细胞的焦平面,并确认细胞形态正常。
NOTE: 通常使用 1.4 NA 60X 紫外校正油浸物镜,该物镜可在最大化共聚焦系统光学分辨率的同时,识别细胞内区室。 - 检查视野中细胞的荧光表达情况。在使用适当滤光片组(如异硫氰酸荧光素(FITC))进行宽场荧光照明下观察细胞时完成此步骤。此时,通过目镜使用宽场照明更为方便,因为更容易移动培养皿以选择待研究的细胞区域。通常应选择包含至少 5 至 10 个表达传感器的细胞视野,这些细胞可通过绿色荧光识别。
- 或者,可使用与所表达传感器最匹配的激光波长(通常 488 nm 效果最佳)进行共聚焦评估。
NOTE: 由于其固有的荧光特性,使用 FITC 或 488 nm 激发时,表达 HyPer 的细胞比表达 roGFP2 的细胞更难观察。然而,仍应能够看到微弱的荧光信号。
- 或者,可使用与所表达传感器最匹配的激光波长(通常 488 nm 效果最佳)进行共聚焦评估。
- 确定理想视野后,关闭环境培养箱。
NOTE: 使用高级显微镜载物台常配备的焦点维持功能,有助于在整个研究过程中保持稳定的焦平面。 - 设置采集参数,以确保在目标曝光期间对目标传感器进行最佳评估。以下是传感器响应共聚焦成像的建议和方法:
- 调节 488 nm 激发和 510 nm 发射的激光功率。选择可清晰显示细胞的激光功率水平,并在不同样本或重复培养皿之间保持该功率恒定。
NOTE: 本研究中,488 nm 和 404 nm 激光线分别使用 12% 和 1.5% 的激光功率。 - 使用采集软件的共聚焦控制功能,在调整 z 平面的同时以 488 nm 扫描,优化所选焦平面,使细胞中心(z 轴)的荧光发射强度达到最大。在搜索导致细胞过度曝光的 z 平面时,使用高增益设置可使该过程更简便。找到合适的焦平面后,将增益调回至最适合所用报告分子荧光水平且不使观测像素过饱和的最佳设置。
NOTE: 实验过程中用于寻找和观察细胞的激光功率和增益设置完全取决于所使用的共聚焦系统。通常,在视野中找到细胞后,建议使用尽可能低的激光功率(通常 ≤20%),因为高功率激光的过度扫描可能诱导传感器可检测到的氧化变化。 - 使用增益精细调节基线荧光。对于 roGFP2,应将基线设定在仪器允许的上限附近(≈ 90% 相对强度),但避免过饱和,因为当 EGSH 升高时,这些细胞在 488 nm 激发下诱导的 510 nm 荧光会减弱。相反,表达 HyPer 的细胞在基线状态下 488 nm 激发的荧光强度应较低(≈ 10% 相对强度),因为当检测到 H2O2 时,其 510 nm 荧光强度会增强。
- 对 404 nm 激发和 510 nm 发射重复步骤 2.9.2 和 2.9.3。404 nm 激发波长的增益设置与各传感器在 488 nm 激发时相反(即 roGFP2 在 404 nm 的基线荧光较低(≈ 10% 相对强度),而 H2O2 传感器的基线荧光较高(≈ 90% 相对强度))。
NOTE: 通常情况下,表达 roGFP2 和 HyPer 的细胞在 404 nm 激发下的荧光(510 nm 发射)明显低于 488 nm 激发下的荧光,因为 404 nm 峰值对这两种传感器而言均为较弱的激发最大值。
- 调节 488 nm 激发和 510 nm 发射的激光功率。选择可清晰显示细胞的激光功率水平,并在不同样本或重复培养皿之间保持该功率恒定。
3. 数据采集
- 设置采集软件,依次激发两个激发波长(先 488 nm,后 404 nm),并在整个实验所需时长内以预设的时间间隔同步收集两者在 510 nm 的发射信号(例如,每 60 秒采集一次图像,持续 60 分钟)。
- 或者,在E变化的大致时间点之前和之后手动采集曝光前后的图像GSH 或 H2O2 已知会影响被测外源性物质的代谢。然而,这可能导致时间分辨率的降低。
- 为实时评估实验参数,应在视野中选择至少5至10个表达传感器的细胞,并将其设定为感兴趣区域(“ROIs”),以监测其在实验过程中的荧光变化。
注意:此步骤为可选操作,若不希望进行实时直接观察,或因软件限制无法实现连续监测,可在实验结束后执行。根据细胞群体的不同,将表达传感器的细胞选为感兴趣区域(ROIs)时,可能代表细胞间传感器表达水平的差异范围。- 对于这些研究,加入环境毒物9,10-菲醌(9,10-PQ)或过氧化氢(H₂O₂)2O25 分钟基线期后。
- 配制本实验方案中后续使用的所有试剂。将9,10-PQ溶于二甲基亚砜(DMSO)中,配制成15 mM的储存液,再用基础细胞培养基稀释至所需浓度 250 µM 工作溶液。此外,配制一份过氧化氢的水工作溶液,使其注入后终浓度为1 mM。
- 在确定实验参数后,开始时间过程采集。在启动外源性物质暴露前,建立至少5分钟(或5个数据点)的基线期。
- 使用常规方法将细胞暴露于待研究的毒物中 体外 给药。将可溶性化合物溶于水或其他合适的溶剂中,直接注入培养基。
- 如果需要使用有机溶剂(例如二甲基亚砜或乙醇),应使最终溶剂浓度保持在0.1%或以下。需验证溶剂对E无影响GSH 或 H2O2 在另一培养皿的细胞中使用溶剂对照进行处理。
- 对于溶解度较低的化合物,在注射完成后,向方案中添加使用微量移液器混匀的步骤。使用适当的载气混合物,将气体暴露物直接泵入环境舱内。
- 在暴露期间监测荧光变化。根据需要进行后续注射。注射时务必避免移动培养皿,以确保在整个时间过程中始终观察相同的细胞,并在同一焦平面上成像。
- 实验结束时,将细胞暴露于适当的对照处理中。对于两种基因编码的荧光传感器,分别加入已知可氧化和还原这些传感器的特定浓度化合物,以明确展示其比率响应特性。2O2 和二硫苏糖醇(DTT)可作为适当的对照,用于氧化和还原这两种传感器。通常,终浓度为 100 - 1,000 µM H2O2,随后加入1-5 mM二硫苏糖醇(DTT),可使用户完全氧化和还原这些传感器。
- 对于这些研究,使用 1 mM H2O2 随后加入 5 mM DTT 以确定传感器的最大响应。
- 等待至少5分钟,使传感器充分响应,然后加入还原剂(如DTT)以还原传感器,使其荧光水平恢复至与其既定基线相同或接近的水平。
注意:此步骤中对照组的使用对于归一化至关重要,应在每次实验结束时进行,以确定每个细胞中传感器的动态范围。对于 roGFP2,实验结束时也可加入阿的硫醇(aldrithiol)。阿的硫醇可绕过 roGFP2 的氧化还原中继系统,直接氧化传感器,有助于评估外源性物质暴露后传感器的功能状态。
4. 数据分析
- 如果尚未建立,需在待分析的细胞周围绘制感兴趣区域(ROI)。使用适当的软件测量每个ROI在各个时间点、不同波长下的荧光强度。确保在实验过程中细胞未发生移动或培养板未发生位移。
注意:建立ROI最简便的方法是根据每个细胞的荧光表达模式绘制封闭区域。为进一步辅助此过程,可将已设定视野内的细胞透射光(或明场)图像叠加到荧光图像上,以帮助界定细胞边界。然而,使用透射光图像需要用户在整个实验过程中额外采集一个通道(一组图像)。或者,某些仪器制造商在其成像软件中集成了算法,可通过设定特定参数(如强度阈值)以更定量、更少主观性的方式自动建立ROI。 - 将数据导出至所需的分析软件(例如电子表格软件)。
- 使用以下公式计算每个ROI在每个时间点的比率型传感器响应:
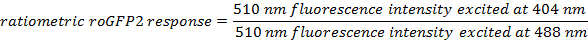
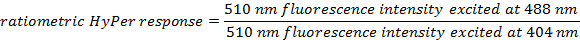
- 对每个时间点,计算所有ROI的比率型响应值的平均值。
- 通过取加入外源性物质前获得的比率型响应值(步骤4.4)的平均值,计算基线值,用于后续数据归一化(例如,前五个时间点)。
- 将步骤4.4中得到的比率型响应值除以步骤4.5中计算出的基线值,进行归一化处理。归一化后的比值在基线状态下将围绕1分布;而在注射后若EGSH或H2O2水平升高,则比值将上升。诱导氧化应激变化的外源性物质通常会使比值达到基线值的3至6倍。
- 为了便于在单次实验内及不同实验间比较响应情况,可将归一化数据表示为最大传感器响应的百分比,即将对照氧化剂(例如1 mM H2O2)引起的响应定义为100%。
注意:若将数据表示为最大传感器响应的百分比,则必须确保在所有实验中始终使用相同浓度的对照氧化剂。所有源自活细胞成像分析的数据均可根据研究者的判断,采用常规的成对或组间统计分析方法进行处理。
访问受限。请登录或开始试用以查看此内容。
结果
使用 roGFP2 和 HyPer 检测 EGSH 和细胞内 H2O2 变化的应用此前已有充分描述25,36,42,43,本文亦对此进行了展示。在基础状态以及添加 H2O2 和 DTT 后表达 roGFP2 的细胞的共聚焦图像如图2所示。实验过程中采集的图像数据随后被导出,并按照方案第4节所述进行分析。如图所示,以外源性 H2O2 作为阳性对照,可产生可重复的响应;当数据归一化至各自的基础值后,通过添加已知的外源性氧化剂/还原剂(即 H2O2 和 DTT)可建立明确...
访问受限。请登录或开始试用以查看此内容。
讨论
在先前的生理学和毒理学研究中,已对使用 roGFP2 和 HyPer 分别检测细胞内 EGSH 和 H2O2 变化的应用进行了充分描述25,35,36,39,40,41,42,43。本文所述方案报告了一种有效的方法,可在针对性的毒理学研究中应用这些基因编码的氧化还原传感器,以评估外源性物质诱导的细胞内氧化还原稳态扰动。最重要的是,正确使用这些传感器可将所观察到的任何变化与特定的氧化还原对或活性氧(EGSH 或 H...
访问受限。请登录或开始试用以查看此内容。
披露
本文所描述的研究已通过美国环境保护局国家健康与环境效应研究实验室的审查,并已批准发表。本文内容不应被解释为代表机构政策,提及商品名或商业产品也不构成对使用该产品的认可或推荐。
致谢
作者谨此感谢 Katelyn Lavrich 在实验设计和文稿修改方面提供的帮助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| roGFP2 质粒 | 俄勒冈大学 | N/A | 由 S.J. Remington 惠赠 |
| HyPer 质粒 | Evrogen | FP941 | |
| 过氧化氢 | Sigma Aldrich | H1009 | |
| 二硫苏糖醇 | Sigma Aldrich | 10708984001 | |
| 9,10-菲醌 | Sigma Aldrich | 156507 | |
| 黑色壁玻璃底培养皿 | Ted Pella | 14029-20 | |
| BEAS-2B 细胞系 | 美国模式培养物集存库 | CRL-9609 | |
| 角质形成细胞基础培养基 | Lonza | 192151 | |
| 角质形成细胞生长培养基 BulletKit | Lonza | 192060 | |
| Excel | Microsoft Office 套件 | N/A | |
| NIS-Elements AR 成像软件 | 尼康 | N/A | |
| 尼康 C1si 共聚焦成像系统 | 尼康 | N/A |
参考文献
- Cross, C. E., et al. Environmental oxidant pollutant effects on biologic systems: a focus on micronutrient antioxidant-oxidant interactions. Am J Respir Crit Care Med. 166, 44-50 (2002).
- Kobzik, L. Environmental particulate-mediated cytokine production in lung epithelial cells (A549): role of preexisting inflammation and oxidant stress. J Toxicol Environ Health. 55, 31-44 (1998).
- Jaeschke, H., McGill, M. R., Ramachandran, A. Oxidant stress, mitochondria, and cell death mechanisms in drug-induced liver injury: lessons learned from acetaminophen hepatotoxicity. Drug Metab Reviews. 44, 88-106 (2012).
- Wolf, M. B., Baynes, J. W. The anti-cancer drug, doxorubicin, causes oxidant stress-induced endothelial dysfunction. Biochim Biophys Acta. 1760, 267-271 (2006).
- Kumagai, Y., Shinkai, Y., Miura, T., Cho, A. K. The chemical biology of naphthoquinones and its environmental implications. Annu Rev Pharmacol Toxicol. 52, 221-247 (2012).
- Pham, H. T., Maccarone, A. T., Campbell, J. L., Mitchell, T. W., Blanksby, S. J. Ozone-induced dissociation of conjugated lipids reveals significant reaction rate enhancements and characteristic odd-electron product ions. J Am Soc Mass Spectrom. 24, 286-296 (2013).
- Abdel-Malek, Z. A., Kadekaro, A. L., Swope, V. B. Stepping up melanocytes to the challenge of UV exposure. Pigment Cell Melanoma Res. 23, 171-186 (2010).
- Berisha, H., Pakbaz, H., Absood, A., Foda, H., Said, S. Nitric oxide mediates oxidant tissue injury caused by paraquat and xanthine oxidase. Ann N Y Acad Sci. 723, 422-425 (1994).
- Gao, X., et al. Mitochondrial dysfunction may explain the cardiomyopathy of chronic iron overload. Free Radic Bio Med. 49, 401-407 (2010).
- Shukla, A., et al. Asbestos induces mitochondrial DNA damage and dysfunction linked to the development of apoptosis. Am J Physiol Lung Cell Mol Physiol. 285, 1018-1025 (2003).
- Charles, R., Jayawardhana, T., Eaton, P. Gel-based methods in redox proteomics. Biochim Biophys Acta. 1840, 830-837 (2014).
- Thornalley, P. J., Rabbani, N. Detection of oxidized and glycated proteins in clinical samples using mass spectrometry-a user's perspective. Biochim Biophys Acta. 1840, 818-829 (2014).
- Arato, S., Ito, H., Miyashita, K., Hayakawa, K., Itabashi, Y. A facile method for the detection of aldehydes in oxidized lipids using solid-phase microextraction fiber and gas chromatograph equipped with a septum-free injector. J Oleo Sci. 58, 17-22 (2009).
- Collins, A. R. Measuring oxidative damage to DNA and its repair with the comet assay. Biochim Biophys Acta. 1840, 794-800 (2014).
- Churg, A., Keeling, B., Gilks, B., Porter, S., Olive, P. Rat mesothelial and tracheal epithelial cells show equal DNA sensitivity to hydrogen peroxide-induced oxidant injury. Am J Physiol Lung Cell Mol Physiol. 268, 832-838 (1995).
- Fraga, C. G., Oteiza, P. I., Galleano, M. In vitro measurements and interpretation of total antioxidant capacity. Biochim Biophys Acta. 1840, 931-934 (2014).
- Niki, E., Noguchi, N. Evaluation of antioxidant capacity: what capacity is being measured by which method. IUBMB Life. 50, 323-329 (2000).
- Pharikal, K., Das, P., Dey, C., Dasgupta, S. Tissue ascorbate as a metabolic marker in cadmium toxicity. Int J Vitam Nut Res. 58, 306-311 (1987).
- Tabata, M., Totani, M., Murachi, T. A chemiluminometric method for NADPH and NADH using a two-enzyme bioreactor and its application to the determination of magnesium in serum. Biomed Chrom. 4, 123-127 (1990).
- Ballatori, N., et al. Glutathione dysregulation and the etiology and progression of human diseases. Biol Chem. 390, 191-214 (2009).
- Nauseef, W. M. Detection of superoxide anion and hydrogen peroxide production by cellular NADPH oxidases. Biochim Biophys Acta. 1840, 757-767 (2014).
- Hawkins, C. L., Davies, M. J. Detection and characterisation of radicals in biological materials using EPR methodology. Biochim Biophys Acta. 1840, 708-721 (2014).
- Kettle, A. J., et al. Measuring chlorine bleach in biology and medicine. Biochim Biophys Acta. 1840, 781-793 (2014).
- Carballal, S., Bartesaghi, S., Radi, R. Kinetic and mechanistic considerations to assess the biological fate of peroxynitrite. Biochim Biophys Acta. 1840, 768-780 (2014).
- Meyer, A. J., Dick, T. P. Fluorescent protein-based redox probes. Antioxid Redox Signal. 13, 621-650 (2010).
- Dooley, C. T., et al. Imaging dynamic redox changes in mammalian cells with green fluorescent protein indicators. J Biol Chem. 279, 22284-22293 (2004).
- Malinouski, M., Zhou, Y., Belousov, V. V., Hatfield, D. L., Gladyshev, V. N. Hydrogen peroxide probes directed to different cellular compartments. PloS One. 6, 14564(2011).
- Guzman, J. N., et al. Oxidant stress evoked by pacemaking in dopaminergic neurons is attenuated by DJ-1. Nature. 468, 696-700 (2010).
- Breckwoldt, M. O., et al. Multiparametric optical analysis of mitochondrial redox signals during neuronal physiology and pathology in vivo. Nat Med. 20, 555-560 (2014).
- Wolf, A. M., Nishimaki, K., Kamimura, N., Ohta, S. Real-time monitoring of oxidative stress in live mouse skin. J Invest Dermatol. 134, 1701-1709 (2014).
- Mishina, N. M., et al. Does cellular hydrogen peroxide diffuse or act locally. Antioxid Redox Signal. , (2011).
- Gutscher, M., et al. Real-time imaging of the intracellular glutathione redox potential. Nat Methods. 5, 553-559 (2008).
- Lohman, J. R., Remington, S. J. Development of a family of redox-sensitive green fluorescent protein indicators for use in relatively oxidizing subcellular environments. Biochem. 47, 8678-8688 (2008).
- Schafer, F. Q., Buettner, G. R. Redox environment of the cell as viewed through the redox state of the glutathione disulfide/glutathione couple. Free Radic Bio Med. 30, 1191-1212 (2001).
- Gibbs-Flournoy, E. A., Simmons, S. O., Bromberg, P. A., Dick, T. P., Samet, J. M. Monitoring intracellular redox changes in ozone-exposed airway epithelial cells. Environ Health Perspect. 121, 312(2013).
- Belousov, V. V., et al. Genetically encoded fluorescent indicator for intracellular hydrogen peroxide. Nat Methods. 3, 281-286 (2006).
- Wood, Z. A., Poole, L. B., Karplus, P. A. Peroxiredoxin evolution and the regulation of hydrogen peroxide signaling. Science. 300, 650-653 (2003).
- Sies, H. Role of Metabolic H2O2 Generation REDOX SIGNALING AND OXIDATIVE STRESS. J Biol Chem. 289, 8735-8741 (2014).
- Cheng, W. -Y., et al. Linking oxidative events to inflammatory and adaptive gene expression induced by exposure to an organic particulate matter component. Environ Health Perspect. 120, 267(2012).
- Cheng, W. -Y., et al. An integrated imaging approach to the study of oxidative stress generation by mitochondrial dysfunction in living cells. Environ Health Perspect. , 902-908 (2010).
- Wages, P. A., et al. Role of H 2 O 2 in the oxidative effects of zinc exposure in human airway epithelial cells. Redox Biol. 3, 47-55 (2014).
- Morgan, B., Sobotta, M. C., Dick, T. P. Measuring E GSH and H2O2 with roGFP2-based redox probes. Free Radic Bio Med. 51, 1943-1951 (2011).
- Schwarzländer, M., Dick, T. P., Meyer, A. J., Morgan, B. Dissecting redox biology using fluorescent protein sensors. Antiox Redox Signal. 24, 680-712 (2016).
- Wang, L., Atkinson, R., Arey, J. Formation of 9, 10-phenanthrenequinone by atmospheric gas-phase reactions of phenanthrene. Atmos Environ. 41, 2025-2035 (2007).
- Tantama, M., Hung, Y. P., Yellen, G. Imaging intracellular pH in live cells with a genetically encoded red fluorescent protein sensor. J Am Chem Soc. 133, 10034-10037 (2011).
- Matlashov, M. E., et al. Fluorescent ratiometric pH indicator SypHer2: applications in neuroscience and regenerative biology. Biochim Biophys Acta. 1850, 2318-2328 (2015).
- Hou, J. -T., et al. A highly selective water-soluble optical probe for endogenous peroxynitrite. Chem Commun. 50, 9947-9950 (2014).
- Kojima, H., et al. Detection and imaging of nitric oxide with novel fluorescent indicators: diaminofluoresceins. Anal Chem. 70, 2446-2453 (1998).
- Gabe, Y., Ueno, T., Urano, Y., Kojima, H., Nagano, T. Tunable design strategy for fluorescence probes based on 4-substituted BODIPY chromophore: improvement of highly sensitive fluorescence probe for nitric oxide. Anal Bioanal Chem. 386, 621-626 (2006).
- Garner, A. L., et al. Specific fluorogenic probes for ozone in biological and atmospheric samples. Nat Chem. 1, 316-321 (2009).
- Cheng, W. -Y., Larson, J. M., Samet, J. M. Monitoring intracellular oxidative events using dynamic spectral unmixing microscopy. Methods. 66, 345-352 (2014).
- Wages, P. A., Cheng, W. -Y., Gibbs-Flournoy, E., Samet, J. M. Live-cell imaging approaches for the investigation of xenobiotic-induced oxidant stress. Biochim Biophys Acta. 1860, 2802-2815 (2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
