我们已将戊型肝炎病毒的衣壳蛋白设计为一种诊疗一体化的纳米颗粒(HEVNP)。HEVNP 在黏膜递送过程中可自组装成稳定的二十面体笼状结构。本文描述了通过将表面暴露的残基突变为半胱氨酸,从而对 HEVNP 进行改造以实现肿瘤靶向的方法,这些半胱氨酸可偶联能够特异性结合肿瘤细胞的合成配体。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
利用化学偶联方法对戊型肝炎病毒纳米颗粒进行表面功能化
* These authors contributed equally
本文内容
摘要
摘要
病毒样颗粒(VLPs)已被用作纳米载体,用于展示外源表位和/或递送小分子,以用于多种疾病的检测和治疗。该应用依赖于基因改造、自组装以及半胱氨酸偶联,以实现重组VLPs的肿瘤靶向应用。与仅采用基因改造相比,将外源肽通过化学偶联方式连接至VLPs具有显著优势,因为它能够在不影响VLPs组装的前提下,以可调控且灵活的方式将多种分子实体(如合成肽或寡糖)偶联至VLPs表面。
本文展示了如何利用戊型肝炎病毒纳米颗粒(HEVNP)——一种模块化的诊疗一体化胶囊——作为多功能递送载体。HEVNP具有组织靶向、成像和治疗递送等多种功能。基于对HEVNP结构的深入研究,我们选择了结构上独立且暴露于表面的氨基酸残基,将其替换为半胱氨酸,从而通过巯基特异性连接方式与马来酰亚胺连接的化学基团进行偶联。其中一种特定的半胱氨酸修饰型HEVNP(在573位氨基酸将天冬酰胺替换为半胱氨酸(HEVNP-573C))被偶联上一种乳腺癌细胞特异性配体LXY30,并标记了近红外(NIR)荧光染料(Cy5.5),从而构建出可靶向肿瘤的HEVNP诊断胶囊(LXY30-HEVNP-Cy5.5)。类似的设计策略也可应用于其他具有明确原子结构的大型分子复合物,以探索其在诊疗一体化递送中的潜在应用。
引言
治疗和诊断递送中纳米级载体的发展,即所谓的纳米诊疗技术,已使生物医学领域的许多研究从广谱性治疗转向靶向递送1。靶向纳米诊疗递送将纳米级载体(纳米颗粒)与诊疗分子相结合,从而稳定地将诊疗分子定向输送至特定的病变组织或生化通路2,3,4。纳米医学已成为靶向递送领域的前沿方向,因为尺寸优化的纳米颗粒能够稳定诊疗分子在体内的循环,并选择性地靶向病变组织表面表达的细胞分子。然而,许多纳米诊疗平台仍存在细胞被动摄取、过早降解、毒性以及与诊疗分子结合不足等问题。病毒样颗粒(VLPs)克服了靶向递送中的诸多障碍,已被用作纳米载体以展示外源表位和/或递送小分子,该策略可用于防治多种疾病1。这一应用主要依赖于VLP的自组装特性以及易于进行遗传修饰的特性,以实现针对特定VLP设计的应用需求。与基因工程相比,将外源肽通过化学偶联方式连接至VLP具有显著优势,因其可在不改变VLP组装的前提下,以可调控且灵活的方式将多种分子(如肽段或寡糖)偶联至VLP表面。
源自重组HEV衣壳蛋白的HEVNPs,2nd 开放阅读框(ORF2)为非感染性、可自我组装的衣壳,具有细胞结合与入侵能力。由于戊型肝炎病毒(HEV)进化适应于黏膜传播,其组装后的衣壳蛋白在蛋白酶解及酸性黏膜环境中同样具有稳定性。5HEVNPs 形成一种中空的 T=1 二十面体衣壳,由 60 个相同的单元组成6,7 ORF2的特性使其在储存及严苛的生理条件下均具有高度稳定性。由于不含任何病毒遗传元件,可通过昆虫细胞中的杆状病毒表达系统实现高效、高产量的生产。得益于其蛋白酶稳定性,自组装的HEVNPs可直接从细胞上清液中提取并纯化,显著减少了所需的纯化步骤。此外,HEVNPs具有一个表面暴露的突出结构域(P结构域),通过一段柔性铰链与稳定的二十面体基底相连。P结构域在二十面体基底顶部形成表面暴露的刺突结构,而柔性铰链则使得P结构域可被大幅修饰,同时不破坏基底的二十面体结构。由于含有60个重复单元,单一位点特异性修饰即可产生60个对称的化学调控位点。近期,我们提出了一种基于HEVNP的纳米平台,可用于化学偶联配体或小分子,以实现诊疗一体化应用。该策略通过在HEV-VLP的突出结构域中将单一氨基酸替换为半胱氨酸,从而提供与马来酰亚胺连接的肽段或分子发生反应的位点。该设计基于此前对HEV-VLP的结构分析以及对已知免疫原性表位的深入研究8,9,以下五个 HEV-VLP 氨基酸被替换为半胱氨酸作为潜在候选位点:Y485C、T489C、S533C、N573C 和 T586C(图1)。在昆虫细胞中表达并纯化后,通过透射电子显微镜(TEM)观察确认了它们的病毒样颗粒(VLP)形成。图2),并通过马来酰亚胺连接的生物素偶联后进行Western印迹分析暴露的半胱氨酸位点(图2在五个突变体中,HEVNP-573C 显示出最强的马来酰亚胺-生物素偶联信号(图2)并被用于后续示范,作为靶向乳腺癌细胞的纳米载体4 (图3).
本方案描述了通过表面半胱氨酸偶联将肿瘤靶向分子化学连接至HEVNPs的方法。我们详细阐述了将肿瘤靶向与检测分子偶联至在N573位点含有半胱氨酸(HEVNP-573C)的重组HEVNPs上,以实现肿瘤递送的技术流程。重点采用两步点击化学偶联法,连接一种靶向乳腺癌的肽段LXY30。10 形成 LXY30-HEVNP图4。随后,将N-羟基琥珀酰亚胺(NHS)-Cy5.5偶联至HEVNPs上不同的赖氨酸位点,构建用于荧光检测的LXY30-HEVNP-Cy5.5 体外 (图5)和 体内4.
访问受限。请登录或开始试用以查看此内容。
方案
1. 在昆虫细胞中生产HEVNP
注意:以下所有步骤均应在细胞培养罩内进行。有关更详细的HEVNP生产流程,请参阅我们之前的出版物11。
- 在6孔板中使用昆虫细胞培养基(参见材料表)培养Sf9细胞,使其融合度达到50 - 75%。
- 根据生产商说明书,使用昆虫细胞转染试剂将含有HEVNP-573C ORF2的Bacmid转染至Sf9细胞中,以产生重组杆状病毒。将转染后的细胞在27 °C下孵育3 - 6天,具体时间取决于细胞活力。
- 在感染后3 - 6天(转染细胞因杆状病毒感染而裂解后)收集上清液,作为P0代杆状病毒原液。
- 在25 cm2单层培养瓶中,当Sf9细胞融合度达到50 - 75%时,弃去培养基,加入200 µL P0代病毒原液。每15分钟轻轻摇动培养瓶一次,确保接种液均匀覆盖,共重复4次,总计60分钟。
- 向培养瓶中加入2 mL昆虫细胞培养基,在27 °C下继续培养3 - 6天(根据细胞活力决定),以扩增杆状病毒并提高滴度。
- 进行噬斑实验以测定杆状病毒滴度12。
- 在250 mL培养瓶中,使用100 mL昆虫细胞培养基培养悬浮生长的Tn5昆虫细胞(材料表),于27 °C、150 rpm条件下振荡培养至细胞密度为0.5 x 10⁵ - 1 x 10⁶,用于接种。
- 以5 - 10的感染复数(MOI)将杆状病毒加入含100 mL Tn5细胞的250 mL培养瓶中。接种后,在27 °C、150 rpm条件下振荡培养5 - 7天。
- 当大多数细胞在光学显微镜下显示含有空泡且70 - 90%细胞死亡时,收集Tn5细胞并转移至33 mL超速离心管中。将超速离心管置于摆动桶转子中平衡后,在25 °C下以10,000 x g离心90分钟,沉淀细胞碎片和重组杆状病毒。
- 将含有释放的HEVNPs的上清液保存于4 °C,用于进一步纯化。如需长期保存杆状病毒上清液,应添加蛋白酶抑制剂。
2. HEVNP 纯化
- 使用氯化铯(CsCl)密度梯度分离法沉淀并分离HEVNPs:
- 转移收集的上清液(来自步骤1.10),向每根离心管中加入20% NP-40,使NP-40的终浓度为0.5%,以溶解任何残留的细胞膜。通过移液轻轻混匀,并在25 °C下孵育至少30分钟。
- 将HEVNPs在4 °C条件下,以112,400 × g的转速在摆动桶转子中进行超速离心2小时,使HEVNPs从上清液中沉淀下来。离心后弃去上清液,并在每根离心管中加入200 µL pH 6.2的10 mM MES缓冲液,于4 °C下轻轻重悬粗沉淀物,过夜(O/N)。进行SDS-PAGE(步骤3.1)以确认粗沉淀物中存在分子量为52 kDa的HEVNP ORF2蛋白条带。
- 在5 mL超速离心管中,通过混合1.96 g CsCl、重悬后的粗沉淀物以及约4 mL pH 6.2的0.01 M MES缓冲液,制备38.5%(w/v)的CsCl梯度。平衡离心管后放入摆动桶转子中,在4 °C条件下以147,000 × g的转速超速离心16小时。
- 收集CsCl梯度分离后的各组分:
- 弃去最上层500 µL组分,该部分主要为轻质的细胞膜碎片。从离心管顶部开始,依次收集500 µL的组分,每次更换移液枪头。将每个组分分别放入编号或标记好的1.5 mL离心管中。
注:由于CsCl浓度较高,无法通过SDS-PAGE凝胶电泳直接检测CsCl梯度分离后各组分中是否存在HEVNP ORF2蛋白。可通过CsCl纯化步骤去除或稀释各组分中的CsCl。或者,可用10–40%蔗糖梯度13替代CsCl梯度,以避免残留CsCl。 - 将每份组分转移至5 mL超速离心管中,并加入4.5 mL pH 6.2的10 mM MES缓冲液稀释CsCl。平衡离心管后放入摆动桶转子中,在4 °C条件下以147,000 × g的转速超速离心2小时,使HEVNPs沉淀。
- 弃去上清液,并在每根离心管中用100 µL pH 6.2的10 mM MES缓冲液轻轻重悬HEVNPs。盖紧离心管以防止蒸发,并在4 °C下过夜(O/N)孵育。
- 使用分光光度计记录A280读数及A260/A280 nm比值。根据以下公式估算ORF2的浓度:
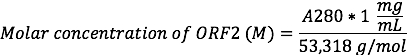
每个ORF2分子含有1个Cys位点和1个Lys位点,可用于化学偶联。
注:HEVNP ORF2的摩尔消光系数为60,280,相当于1.019 mg/mL × A280。该数值非常接近1:1,因此HEVNPs的浓度(单位为mg/mL)可近似等于A280读数,从而可通过上述公式估算ORF2的浓度。例如,若某HEVNP样品的A280读数为1,则其浓度约为1 mg/mL,相当于18.8 µM的ORF2。 - 制备SDS-PAGE凝胶,取每份组分6 µL样品,检测含有53.3 kDa HEVNP ORF2蛋白的组分(步骤3.1)。HEVNPs通常出现在第3至第5组分中,密度约为1.25 g/mL。
- 通过透射电子显微镜(TEM)观察确认HEVNPs的存在及其纯度。将HEVNP样品配制或稀释至0.5–2.0 mg/mL用于TEM观察。在TEM下,HEVNPs表现为直径约27 nm的空心二十面体蛋白结构(图2)。部分蛋白杂质可能仍残留在组分中,在TEM下可见(步骤3.2)。
- 弃去最上层500 µL组分,该部分主要为轻质的细胞膜碎片。从离心管顶部开始,依次收集500 µL的组分,每次更换移液枪头。将每个组分分别放入编号或标记好的1.5 mL离心管中。
- 若TEM观察发现存在杂质,则重复步骤2.1.3–2.2.6,以获得更高纯度的HEVNPs。
注:额外的CsCl梯度纯化可能导致HEVNPs得率下降。或者,可用10–40%蔗糖梯度13替代CsCl梯度纯化,以避免CsCl残留。
3. HEVNP 表征
- 制备SDS-PAGE 4-12% Bis-Tris蛋白凝胶,1.0 mm厚,17孔(见 材料列表根据用户手册14:
- 添加 2 µL 4×上样缓冲液 6 µL 蛋白质样品。将样品混合物置于加热块中,在10分钟内孵育 100 °C 使蛋白质变性。将蛋白质样品上样至凝胶中。
- 将直流电源设置为100 V电泳10分钟,然后调至150 V继续电泳45分钟,直至样品迁移至凝胶底部上方约1 cm处。
- 用考马斯亮蓝染色液(0.25% (w/v) 考马斯亮蓝R250,30% (v/v) 甲醇,10% (v/v) 乙酸)对SDS-PAGE凝胶染色1小时。
- 染色完成后,移除考马斯亮蓝染色液,并将脱色缓冲液(30% (v/v) 甲醇,10% (v/v) 乙酸)加入蛋白凝胶中 >室温下12小时
- 在白光下记录凝胶图像,以确认HEVNP ORF2存在于52 kDa条带处。
- 使用透射电子显微镜观察HEVNPs。
- 用10 mM MES(pH 6.2)缓冲液将HEVNP样品配制或稀释至0.5 - 2 mg/mL,用于透射电子显微镜成像。
- 用40 mA的辉光放电处理碳膜载网30秒,以产生亲水性碳表面。辉光放电设备在下文中描述 材料表.
注意:载网的亲水性碳表面在辉光放电处理后仅能维持30分钟。 - 用镊子夹住并加入 2 µL 将HEVNP样品加到载网上,静置15–30秒,用滤纸吸去多余液体。
- 立即用 ddH₂O 清洗载网20,然后用滤纸吸干。
- 立即加入 2 µL 向载网上滴加2%醋酸铀,静置15秒,然后用滤纸吸去多余液体。将样品载网置于电子防潮干燥柜中过夜干燥。
- 将载网转移至透射电子显微镜(TEM)中,在10,000至80,000倍放大倍数下进行成像。由于缺乏病毒RNA,HEVNPs在TEM下呈现为空心的二十面体蛋白结构,直径约为27 nm。
4. HEVNPs 与生物素、肿瘤靶向配体及荧光染料的化学偶联
- 进行HEVNPs与马来酰亚胺连接的生物素的一步偶联。
- 缓冲液置换:将HEVNPs加入微型透析装置中,按照生产商说明书(材料表)在室温下用0.01 M PBS(pH 7.4)透析1小时。将HEVNPs转移至1.5 mL离心管中,并使用分光光度计在280 nm处测定蛋白浓度。
- 将HEVNP调整至1 mg/mL(相当于18.8 µM的Cys反应位点,详见步骤2.2.4),与等体积的马来酰亚胺-生物素(100 µM)在0.01 M PBS(pH 7.4)中混合,使摩尔比为1:5;在4 °C下过夜反应。按照生产商说明书(材料表)使用40 K MWCO旋转脱盐柱去除未结合的马来酰亚胺-生物素。
- 通过标准还原型SDS-PAGE(步骤3.1)分析样品。
- 采用标准程序,使用HRP标记的链霉亲和素制备化学发光Western Blot。通过X光片捕获化学发光信号(图2)。
- 对HEV NPs表面暴露的半胱氨酸进行两步LXY30偶联(图5)。
- 缓冲液置换:将HEVNPs加入微型透析装置中,按照生产商说明书在室温下用0.01 M PBS(pH 7.4)透析1小时。将HEVNPs转移至1.5 mL离心管中,并使用分光光度计在280 nm处测定蛋白浓度。
- 在0.01 M PBS(pH 7.4)中加入650 µM马来酰亚胺-叠氮和650 µM炔基-LXY3010,同时加入200 µM CuSO4和1 mM抗坏血酸,生成650 µM的马来酰亚胺连接LXY30(Mal-LXY30)。在4 °C下孵育过夜。
- 将HEVNP调整至1 mg/mL(相当于18.8 µM的Cys反应位点,详见步骤2.2.4),在0.01 M PBS(pH 7.4)中加入约10%体积的Mal-LXY30(650 µM),使摩尔比为1:3;在4 °C下过夜反应。
注:由于Mal-LXY30浓度相对较高,混合后反应物(如CuSO4)的终浓度降低约10倍,以避免对HEVNPs造成损伤。另一种选择是使用无铜偶联方法15。 - 按照生产商说明书(见材料表)使用40 K MWCO旋转脱盐柱去除未结合的马来酰亚胺-点击化学-LXY30。将LXY30连接的HEVNPs(LXY30-HEVNPs)保存于4 °C。
- 对LXY30-HEVNPs与Cy5.5 NHS酯(NHS-Cy5.5)进行一步偶联
- 将LXY30连接的HEVNPs(LXY30-HEVNPs)调整至1 mg/mL(相当于18.8 µM的Cys反应位点,详见步骤2.2.4),在0.01 M PBS(pH 7.4)中与等体积的NHS-Cy5.5(100 µM)混合,使摩尔比为1:5;在4 °C下过夜反应。
- 按照生产商说明书(见材料表)使用40K MWCO旋转脱盐柱去除未结合的Cy5.5-NHS。将LXY30和Cy5.5连接的HEVNPs(LXY30-HEVNP-Cy5.5)保存于4 °C。
5. HEVNP 与 MDA-MB231 乳腺癌细胞的结合及内化
- 将 MDA-MB231 乳腺癌细胞接种至 35 mm 玻璃底培养皿中(每皿 5 × 10⁴ 个细胞),在哺乳动物细胞培养箱中过夜培养。
- 进行细胞结合实验时,按照步骤 4.2–4.3 制备 LXY30-HEVNP-Cy5.5。将 LXY30-HEVNP-Cy5.5 用 250 µL 含 0–1% FBS 的 DMEM 培养基稀释至 0.01 mg/mL,相当于 0.188 µM 的 HEVNP ORF2 蛋白(参见步骤 2.2.4)。
- 制备阴性对照样品:按照步骤 4.3 操作,但仅使用 NHS-Cy5.5 染料标记,得到 HEVNP-Cy5.5(即 HEV-Cy5.5),将其用 250 µL 含 10% FBS 的 DMEM 培养基稀释至 0.01 mg/mL,相当于 0.188 µM 的 HEVNP ORF2 蛋白(参见步骤 2.2.4)。
- 加入 250 µL 1 M PBS 缓冲液(pH 7.4)洗涤细胞一次,洗去后弃去 PBS 缓冲液,但保留少量液体于培养皿中。
- 向培养的 MDA-MB231 乳腺癌细胞中加入 250 µL 含 10% FBS 的 DMEM 培养基配制的 LXY30-HEVNP-Cy5.5 或 HEVNP-Cy5.5。用铝箔包裹培养皿以避光。
- 将培养皿置于 37 °C 细胞培养箱中孵育 1 小时,以促进内化。
- 在冰上用 250 µL 1 M PBS 缓冲液(pH 7.4)洗涤培养细胞 3 次,每次 5 分钟。
- 用含 4% 多聚甲醛(PFA)的 1 M PBS 缓冲液(pH 7.4)固定细胞 20 分钟,随后用 250 µL 1 M PBS 缓冲液(pH 7.4)洗涤一次。
注意:此时细胞已准备好进行共聚焦显微镜成像。代表性数据见图 5。
访问受限。请登录或开始试用以查看此内容。
结果
与HEV-VLPs类似,所有含Cys修饰的HEVNP均形成了可溶性的二十面体衣壳,在表达和纯化过程中未在溶液中发生聚集。在单步马来酰亚胺-生物素偶联反应前后,每种含Cys修饰的HEVNP在负染电镜下均与HEV-VLPs无法区分(图2)。首先通过化学发光链霉亲和素结合的Western blot检测马来酰亚胺-生物素对含Cys修饰HEVNP的偶联效率。在完成马来酰亚胺-生物素偶联后,含Cys修饰的HEVNP显示出链霉亲和素结合信号(图2)。
有效的两步半胱氨酸偶联受偶联顺序的影响。由于α3β1整合素在乳腺癌肿瘤细胞中高表达,选择了一种对α3β1具有特异性亲和力的合成配体LXY3010作为肿瘤靶向偶联分子。LXY30无法直接进行马来酰亚胺(MaI)功能化修饰,因为LXY30通过分子间二硫键环化...
访问受限。请登录或开始试用以查看此内容。
讨论
与通常需要数周时间的耗时基因工程方法不同,本文展示了简单的两步法和一步法化学偶联方法,可在3天内完成将肿瘤靶向配体和/或荧光检测染料连接至HEVNPs的Cys/Lys位点。该技术可用于从一系列候选分子中筛选最佳配体靶点,从而以合理成本和交付周期充分利用现有的肽段/小分子合成服务。
与传统的基因工程只能将多肽插入目标蛋白不同,化学偶联技术可以在目标蛋白表面连接多种材料,包括多肽、小分子化合物和纳米颗粒,只要存在可作为反应位点的半胱氨酸(Cys)或赖氨酸(Lys)残基即可。如果在化学偶联位点不存在此类残基,可通过简单的基因改造,在目标蛋白上引入Cys或Lys替换,使其具备化学反应活性,此前的研究已对此进行了验证4。
为了确保化学偶联仅发生在特定的反应位点,必须对偶联分子和待偶联蛋白的结构进行深入研究,以避免发生分子内反应。如本文以靶向乳腺癌的肽段LXY3010为例所示,其环状配体构象由一个关键的二硫键稳定。鉴于马来酰亚胺对巯基具有反应活...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争利益。
致谢
作者感谢美国国立卫生研究院(NIH)提供的资助,项目编号为:AI095382、EB021230、CA198880,以及美国国家食品与农业研究所和芬兰杰出教授计划对RHC的赞助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| MINI 透析装置,10K 分子量截留值(MWCO) | Thermo Fisher Scientific | 69572 | 微型透析装置 |
| High Five 细胞 | Thermo Fisher Scientific | B85502 | Tn5 细胞 |
| SF9 细胞 | Thermo Fisher Scientific | 11496015 | Sf9 细胞 |
| Bac-to-Bac 杆状病毒表达系统 | Thermo Fisher Scientific | A11101, A11100 | 杆状病毒表达系统 |
| Bac-to-Bac 杆状病毒表达系统 | Life Technologies | 10359-016, 10360-014, 10584-027, 10712-024 | Bacmid |
| ESF921 昆虫细胞培养基 | Expression Systems LLC | 96-001-01 | 昆虫细胞培养基 |
| Cy5.5 NHS 酯,5mg | Lumiprobe Corp | 27020 | Cy5.5 NHS 酯 |
| Zeba 脱盐离心柱,40K 分子量截留值(MWCO),0.5 mL | Thermo Scientific | 87766 | 离心脱盐柱 |
| MES 水合物 | Sigma-Aldrich Chemical Co | M8250-250G | MES |
| Ultra-Clear 超速离心薄壁离心管 | Beckman Coulter, Inc | 取决于转子型号 | 超速离心管 |
| NuPage 4-12% Bis-Tris 蛋白凝胶 | Thermo Fisher Scientific | NPO321BOX | SDS 蛋白凝胶 |
| Cellfectin II 转染试剂 | Thermo Fisher Scientific | 10362100 | 转染试剂 |
| EMS 电晕放电仪 | Electron Microscopy Science | 电晕放电仪 |
参考文献
- Ludwig, C., Wagner, R. Virus-like particles-universal molecular toolboxes. Curr Opin Biotechnol. 18 (6), 537-545 (2007).
- Galaway, F. A., Stockley, P. G. MS2 viruslike particles: a robust, semisynthetic targeted drug delivery platform. Mol Pharm. 10 (1), 59-68 (2013).
- Ma, Y., Nolte, R. J., Cornelissen, J. J. Virus-based nanocarriers for drug delivery. Adv Drug Deliv Rev. 64 (9), 811-825 (2012).
- Chen, C. C., et al. Chemically activatable viral capsid functionalized for cancer targeting. Nanomedicine (Lond). 11 (4), 377-390 (2016).
- Jariyapong, P., et al. Chimeric hepatitis E virus-like particle as a carrier for oral-delivery. Vaccine. 31 (2), 417-424 (2013).
- Xing, L., et al. Recombinant hepatitis E capsid protein self-assembles into a dual-domain T = 1 particle presenting native virus epitopes. Virology. 265 (1), 35-45 (1999).
- Li, T. C., et al. Essential elements of the capsid protein for self-assembly into empty virus-like particles of hepatitis E virus. J Virol. 79 (20), 12999-13006 (2005).
- Xing, L., et al. Structure of hepatitis E virion-sized particle reveals an RNA-dependent viral assembly pathway. J Biol Chem. 285 (43), 33175-33183 (2010).
- Xing, L., et al. Spatial configuration of hepatitis E virus antigenic domain. J Virol. 85 (2), 1117-1124 (2011).
- Xiao, W., et al. Discovery and characterization of a high-affinity and high-specificity peptide ligand LXY30 for in vivo targeting of α3 integrin-expressing human tumors. EJNMMI research. 6 (1), (2016).
- Li, T. C., et al. Expression and self-assembly of empty virus-like particles of hepatitis E virus. J Virol. 71 (10), 7207-7213 (1997).
- Technologies, I. bL. Bac-to-Bac Baculovirus Expression System: User Manual. , Available from: http://tools.thermofisher.com/content/sfs/manuals/bactobac_man.pdf (2015).
- Peyret, H. A protocol for the gentle purification of virus-like particles produced in plants. J Virol Methods. 225, 59-63 (2015).
- Technologies, N. bL. Vol. MAN0007891 1-2. , Life Technologies. (2013).
- Baskin, J. M., et al. Copper-free click chemistry for dynamic in vivo imaging. Proc Natl Acad Sci U S A. 104 (43), 16793-16797 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
