评估脂肪生成分化的传统方法成本低廉且易于使用,但无法特异性检测基因表达的变化。我们开发了一种利用谱系特异性标记物来定量间充质细胞分化为成熟脂肪细胞的检测方法。该方法在基础研究和临床医学中具有广泛的应用前景。
本文内容
摘要
摘要
目前有多种染料可用于检测间充质细胞向脂肪细胞的分化。例如油红O(Oil Red O)等染料价格低廉、使用简便,被分析间充质细胞成脂潜能的实验室广泛采用。然而,这些染料并不能特异性地反映基因转录水平的变化。我们开发了一种基因特异性的分化检测方法,用于分析间充质细胞何时转变为成脂谱系。通过针对脂肪酸结合蛋白-4(FABP4)——一种成脂分化谱系特异性标志物——进行免疫标记,可实现对已分化细胞的可视化和定量分析。该方法能够在96孔微孔板体系中定量评估间充质细胞的成脂分化潜能,具有广泛的应用前景。目前已有数百项临床试验涉及使用成人间充质基质细胞,但要在这些临床试验内部尤其是不同试验之间关联治疗效果仍十分困难。这种简便的高通量FABP4检测方法为评估患者来源细胞的分化潜能提供了定量手段,也是比较不同分离与扩增方法的有力工具。鉴于人们日益认识到间充质细胞产品中所给予患者的细胞具有异质性,这一点尤为重要。此外,该检测方法在高通量药物筛选中也具有潜在应用价值,特别是在肥胖症和糖尿病前期研究领域。
引言
国际细胞治疗学会(ISCT)定义多能间充质基质细胞的关键标准之一是,这些细胞必须具备向脂肪细胞、成骨细胞和软骨细胞谱系分化的潜能1。传统检测这三种谱系分化的手段依赖于使用化学染料检测大分子产物1。例如油红O(可染色经历脂肪生成的细胞中的脂滴)等染料价格低廉且操作简便;然而,这些方法无法检测间充质细胞向各谱系分化过程中发生的特异性基因表达变化2。在此,我们开发了一种分化检测方法,用于定量检测脂肪细胞谱系特异性标志物——脂肪酸结合蛋白-4(FABP4)的蛋白表达水平3,4,5。FABP4最初在小鼠3T3-L1脂肪细胞中被发现3,随后被证实也在人皮下脂肪组织中表达6。它是一种胞质蛋白,作为分子伴侣协助细胞摄取脂肪酸,并参与脂解过程4。
用于分化实验的前体细胞为脂肪来源的间充质基质细胞(ASCs)7,8。ASCs 与骨髓来源的间充质干细胞(BM-MSCs)具有许多相似特性,后者是成人体内主要的间充质干细胞群体8,9。在临床应用中,ASCs 相较于 BM-MSCs 具有多项优势,因其可从更易获取的组织来源中分离出更高产量的细胞8,9。分离得到的细胞群体需满足特定标准方可被定义为 ASCs。首先,在标准培养条件下,这些细胞必须能够贴附于塑料培养器皿表面1。其次,它们必须表达特定的表面抗原1。未培养的 ASCs 特征表现为 CD34、CD73、CD90 表面抗原表达阳性,CD105 表达水平较低,而 CD45 和 HLA-DR 表达阴性10。经塑料培养皿培养 28 天后纯化的 ASCs(贴壁纯化 ASCs)表现为 CD73、CD90 和 CD105 表达阳性,而 CD34、CD45 和 HLA-DR 表达阴性10。最后,这些细胞必须保留向多种谱系分化的潜能1,7,8。
脂肪生成分化方案会诱导FABP4表达及其他脂肪细胞谱系基因的显著上调,因此我们采用免疫化学方法在细胞内可视化FABP4蛋白,并利用自动化的荧光高内涵筛选显微镜在单细胞水平上定量FABP4的表达。该方法相较于传统染料具有优势,能够实现对脂肪细胞谱系分化的高度特异性确认。此类基因特异性的谱系检测方法结合高内涵筛选技术,还可量化在异质性细胞样本中能够向特定谱系分化的细胞所占比例。在我们的研究中,我们利用FABP4检测来确认新鲜分离的ASCs在细胞培养后脂肪生成分化潜能的丧失。
方案
1. 准备脂肪来源干细胞用于分化检测
- 在无菌细胞培养罩内配制细胞培养试剂并处理活细胞。
- 制备A0培养基:DMEM/F12培养基(Dulbecco改良Eagle培养基与Ham's F12培养基)、1× GlutaMAX、1×青霉素/链霉素。
- 配制完全ASC培养基:DMEM/F12,1x GlutaMax,1x 青霉素/链霉素,10% 胎牛血清。
- 使用在T75培养瓶中扩增的贴壁纯化ASCs,通过荧光激活细胞分选(FACS)确认ASCs的纯度10.
- 从T75培养瓶中移除所有培养基,加入2 mL细胞解离酶以解离细胞。
- 将培养瓶置于培养箱中(37 °C,湿润环境,5% CO₂)。2孵育5-10分钟。将培养瓶从培养箱中取出,用力轻敲瓶壁。使用倒置显微镜观察细胞是否已从培养瓶壁上脱落。
- 向T75培养瓶中加入13 mL A0培养基。
- 将15 mL转移至15 mL离心管中,在400 × g下离心5分钟。
- 弃去上清液,将细胞沉淀重悬于1 mL完全ASC培养基中。
- 使用血细胞计数板进行细胞计数。
- 将细胞悬液稀释至浓度为 25,000 个细胞/mL-1 在完全ASC培养基中。
- 向96孔板(平底)的所有边缘孔中加入200 µL A0培养基,以降低中央含细胞孔的蒸发速率。
- 将200 µL细胞悬液转移至微孔板中,使最终细胞密度达到5 x 10³ 每孔细胞数。每个处理组需要四个孔(三个技术重复孔,以及一个用于免疫细胞化学(ICC)的无一抗对照孔)。
- 将微孔板置于培养箱中(37 °C,湿润,5% CO₂)2直至细胞达到汇合(3-4 天)。
2. 诱导 ASCs 分化
- 通过在完全ASC培养基中添加1 µM地塞米松、10 µM胰岛素和200 µM吲哚美辛,制备成脂分化培养基。完全分化培养基在4 °C下可稳定保存1个月,因此仅根据单次实验需求配制即可。4 °C保存,使用时将分装 aliquot 置于水浴中加热至37 °C。
- 3–4天后,从培养箱中取出微孔板,用成脂分化培养基更换一半的培养液。
- 每2–3天更换一次培养基。
注意:最佳成脂分化需在分化培养基中培养14天。分化后的细胞可通过传统染料染色法及基因特异性染色法进行分析。
3. 分化染色——基于传统染料的染色法
- 通过将16%甲醛用PBS稀释,配制4%甲醛溶液。仅稀释实验所需量,并密封保存于离心管中。
注意:甲醛为潜在致癌物,吸入后可能引起鼻、咽喉和肺部刺激。所有涉及甲醛的操作均应在通风橱中进行。 - 通过将300 mg Oil Red O溶于100 mL异丙醇中,配制Oil Red O储备液。
- 从培养箱中取出微孔板。以下步骤可在非无菌环境中进行。
- 吸除各孔中的全部培养基,并用4%甲醛固定细胞30分钟。
- 在固定期间,配制Oil Red O工作液。工作液由6份Oil Red O储备液与4份蒸馏水(dH2O)混合而成。充分混匀后,室温静置20分钟,再使用0.2 µm滤器过滤。工作液仅在2小时内稳定。
- 用移液器吸除各孔中的全部甲醛溶液。
- 用60%异丙醇洗涤细胞一次,待各孔完全干燥后再进行下一步操作。
- 向每孔加入50 µL Oil Red O工作液,室温孵育10分钟。
- 移除Oil Red O溶液,立即加入dH2O。在光学显微镜下观察前,用dH2O洗涤4次。
4. 分化染色——基因特异性抗体
- 通过将 80 g NaCl、2 g KCl 和 30 g Tris Base 溶解于 1 L dH2O 中(pH 8),配制 Tris 缓冲盐水(TBS)储备液。使用 dH2O 按 1:10 稀释制备工作液。室温保存。
- 配制免疫缓冲液(IB)(含 1% 胎牛血清(FBS)的 TBS)。在 15 mL 离心管上标注日期,并于 4 °C 保存。IB 自配制之日起可使用 1 周。
- 通过将 0.5 g 酪蛋白和 0.195 g 叠氮化钠溶解于 200 mL 磷酸盐缓冲盐水(PBS)中,配制 0.25% 酪蛋白封闭液。搅拌过夜以完全溶解成分。分装至 15 mL 离心管中,于 -20 °C 冰箱中保存。解冻后的酪蛋白溶液可在 4 °C 保存 1 个月。
- 将 DAPI 储备液用 TBS 按 1:200 稀释,配制 DAPI 溶液。4 °C 避光保存。
- 将硫柳汞溶解于无菌 PBS 中,配制 10 mg mL-1 储备液。4 °C 保存,使用时稀释至 0.4 mg mL-1。
- 用冰冻甲醇(96 孔板)固定并透化细胞 5 分钟。用 200 µL TBS 洗涤细胞一次。
- 加入 50 µL 0.25% 酪蛋白溶液,室温封闭 10 分钟,然后用 TBS 洗涤一次。
- 加入 50 µL 用 IB 稀释的一抗溶液(一抗详细信息见表 1),盖紧盖子孵育 1 小时。
- 用 200 µL TBS 洗涤一次,再用 TBS 轻柔振荡洗涤 3 次,每次 5 分钟。
- 加入 50 µL 用 IB 稀释的二抗溶液(二抗详细信息见表 2),每孔均含 1:2000 DAPI,盖紧盖子孵育 1 小时。用铝箔包裹培养板以防止光漂白。
- 用 TBS 洗涤一次,再用 TBS 轻柔振荡洗涤 2 次,每次 15 分钟。
- 移除所有 TBS,加入 200 µL 硫柳汞溶液。
- 将培养板于 4 °C 避光保存,直至成像。
5. 使用高通量显微镜对细胞进行成像
- 使用高内涵筛选显微镜及其配套软件,分析经基因特异性抗体和荧光染料偶联的二抗染色的细胞(免疫荧光)。
- 将微孔板放入显微镜载物台上。在板扫描控制界面选择中等放大倍数(10X物镜)进行成像。确保每孔图像均采集自孔中心位置,各成像位点之间保持50 µm间距,以避免同一细胞出现在两个相邻视野中。
- 选择需要成像的孔位。
- 选择合适的通道组合、曝光时间及z轴偏移参数。有关各滤光片的详细信息,请参见表3(补充表2)。
- 使用采集向导进行检测(图像将自动存储至数据库服务器)。
- 使用不同的通道组合采集经油红O染色的微孔板图像(补充表3)。
6. 分析获取的图像
注意:远程访问数据库服务器可实现对所获取图像的快速便捷评估,并可使用图像分析软件。
- 在分析软件中打开细胞评分模块。
- 使用 DAPI 通道(核标记)检测细胞核,并根据用户定义的大小和高于背景的信号强度参数,对目标细胞核进行分割。
- 使用 FITC 通道检测 FABP4 信号。根据用户定义的大小和高于背景的信号强度参数,分割已分化的细胞,以选择每张图像中所有 FABP4 阳性区域。
- 在分析软件中打开 Transfluor 模块,用于分析经油红 O 染色的孔板。
- 将油红 O 染色区域的大小和强度定义为“凹陷”(pits)。
结果
本研究中,采用3种不同方法检测了ASCs的成脂分化潜能。FABP4的免疫荧光标记显示,该标志物定位于分化细胞的细胞质中,且其标记信号与DAPI标记的细胞核存在重叠(图1A)。自动图像分析结果显示,在早期传代细胞中,分化组FABP4阳性细胞比例较对照组增加了24.6倍,而在晚期传代细胞中仅增加了6.9倍(图1B)。油红O染色定位于分化细胞胞质中分散的脂滴,其染色信号极少与DAPI标记的细胞核重叠;然而通过肉眼观察可见,晚期传代细胞中与油红O脂滴相关的细胞核数量少于早期传代细胞(图2A)。自动图像分析显示,早期传代细胞中每个细胞的油红O染色面积增加了11.1倍,而晚期传代细胞中则增加了53.9倍(图2B)。两种染色均进行了成像,并使用软件中的Cell Scoring模块(FABP4)或Transfluor模块(油红O)进行定量分析(补充图1,补充表2-5)。FABP4表达上调通过Western blot分析得到验证(图3,补充图5)。三种分析方法均表明,早期传代ASCs的成脂分化潜能高于晚期传代细胞。成脂分化对每孔总细胞数量无显著影响(补充图2、3)。然而,仅在晚期传代ASCs中,FABP4阳性分化细胞的细胞核尺寸显著小于对照组细胞(补充图3)。
我们证明,随着细胞在培养过程中扩增或传代,培养物中具有成脂分化能力的细胞比例下降,这与先前发表的数据一致11。需要注意的是,本研究未能控制年龄、体重指数或既往病史等因素12,这些因素可能导致不同供体样本之间出现差异(补充表1)。
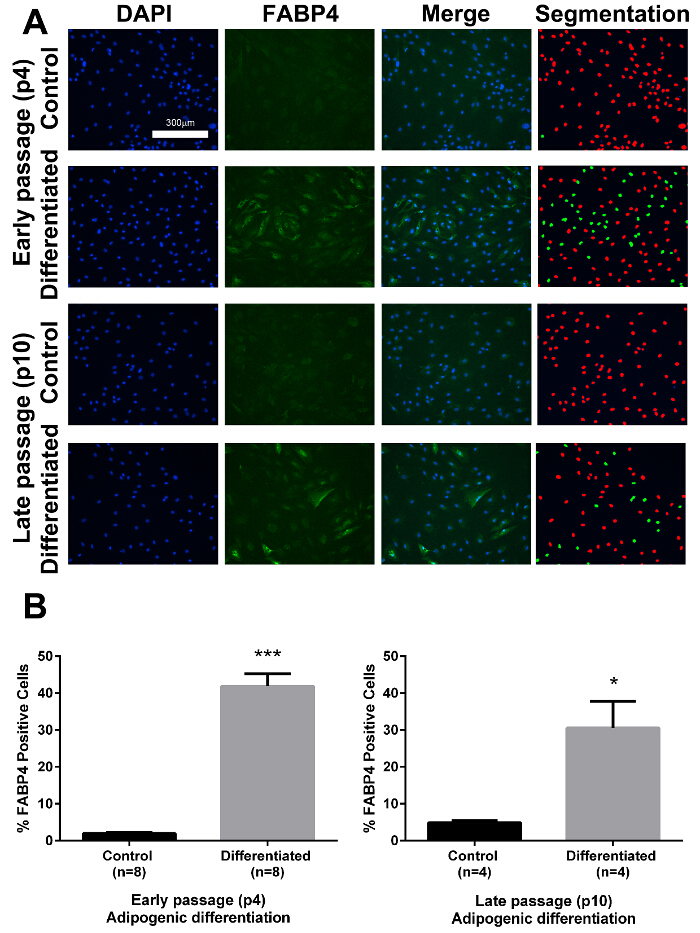
图1:FABP4免疫标记显示,早期传代细胞比晚期传代细胞具有更强的分化潜能。 A) 展示了早期与晚期传代、对照组及分化后细胞的代表性图像,细胞经DAPI(细胞核染色)和FABP4标记,并附有合并图像及分割图像。分割图像中,分化细胞以绿色覆盖显示,未分化细胞以红色覆盖显示。B) 早期和晚期传代细胞在脂肪生成分化过程中均观察到表达FABP4的细胞数量显著增加,但早期传代细胞的分化程度显著高于晚期传代细胞(Mann Whitney检验,*表示P<0.05,***表示P<0.001)。所示数据为早期传代(p4;n=8)或晚期传代(p10;n=4)供体样本的平均值,误差线表示标准误(± SEM)。 请点击此处查看该图的放大版本。

图2油红O染色显示,早期传代细胞的分化潜能高于晚期传代细胞。 A) DAPI(细胞核染色)与 Oil Red O(灰色,脂滴染色)的代表性图像分别展示,并附有合并图像及分割图像。分割图像中,所有细胞核以绿色覆盖显示,Oil Red O 染色的脂滴以红色覆盖显示。B) 随着脂肪向分化过程,Oil Red O 染色面积显著增加。早期传代细胞每细胞的 Oil Red O 染色面积大于晚期传代细胞。每细胞 Oil Red O 染色面积(μm2) 在此用作衡量脂肪向分化潜能的指标。所示数据为早期传代(p4;n=8)或晚期传代(p10;n=4)供体样本的平均值,误差范围为±标准误(SEM),Mann-Whitney检验,*表示P=<0.05,*** 表示 P=<0.001). 请点击此处查看此图的放大版本。

图3:分化后的早期和晚期传代ASCs中FABP4蛋白表达水平的Western印迹分析。 以总蛋白上样量内参β-肌动蛋白(ACTB)为参照,对FABP4条带的光密度进行半定量分析,结果显示,早期传代分化细胞中FABP4免疫染色显著升高,晚期传代分化细胞中升高程度较低。数据为早期传代(p4;n=8)或晚期传代(p10;n=4)供体样本的平均值,误差范围以±SEM表示(Mann Whitney检验,*表示P=<0.05,*** 表示 P=<0.001). 请点击此处以查看此图的放大版本。
| 靶抗原 | 同种型(克隆号) | 种属 | 稀释比例 |
| FABP4 | Polyclonal | Rabbit | 1:100 |
表1:一抗
| 靶向抗体 | 荧光染料标记 | 物种 | 稀释比例 |
| Rabbit IgG | Alexa fluoro 488 | Goat | 1:200 |
表2:二抗
补充图1:图像分析虚拟环境概述。 采用自动化高通量荧光显微镜对染色细胞进行成像,以避免任何潜在的偏差来源。使用ImageXpress Micro XLS获取的图像将直接保存至MDCStore数据管理器数据库,并可通过虚拟桌面连接进行查看,供用户优化和测试其特定的分析参数。图像通过专用的“自动运行”实例进行分析,该实例允许多个不同用户向自动运行队列提交“任务”。用户可在其“任务”完成后,通过虚拟实例获取分析数据。请点击此处下载该图。
补充图2:使用FABP4染色板对早期和晚期传代ASCs的对照组和分化组每孔总细胞数进行比较。 所示数据为早期传代(p4;n=8)或晚期传代(p10;n=4)供体样本的平均值,误差线表示标准误(± SEM)。早期和晚期传代ASCs的对照组与分化组之间细胞数均无统计学显著差异。早期传代细胞每孔的细胞数多于晚期传代细胞。请点击此处下载该图。
补充图3:使用油红O染色板对早期和晚期传代ASCs的对照组和分化组每孔总细胞数的比较。 所示数据为早期传代(p4;n=8)或晚期传代(p10;n=4)供体样本的平均值,误差范围为±标准误(SEM)。早期和晚期传代ASCs的对照组与分化组细胞之间均无统计学显著差异。请点击此处下载该图。
补充图4:在后续传代中,FABP4阳性的分化细胞的核面积显著小于对照孔中的细胞。 早期传代中,对照组与分化细胞的细胞核面积之间无统计学显著差异。所示数据为早期传代(p4;n=8)或晚期传代(p10;n=4)供体样本的平均值,± SEM。(非配对t检验。***表示P=<0.001)。数据以均值 ± 标准误表示。) 请点击此处下载该图片。
补充图5:Western印迹凝胶图像。红色通道显示β-actin,绿色通道显示FABP4免疫标记。 请点击此处下载该图。
补充表1:供体的临床病理学信息 请点击此处下载该表格。
补充表 2:成像参数(FABP4) 请点击此处下载该表格。
补充表3:成像设置(油红O) 请点击此处下载该表格。
补充表4:所用分析参数表(FABP4)。细胞评分模块。 请点击此处下载该表格。
补充表5:分析参数表(油红O染色)。Trans Fluor模块。 请点击此处下载该表格。
讨论
本文展示了FABP4免疫标记在准确检测和定量源自间充质基质细胞的成熟脂肪细胞方面的实用性和优势。FABP4能够检测成熟脂肪细胞中谱系特异性蛋白表达的变化3,4,5,而不同于其他常用的染料(如油红O15、尼罗红16和苏丹黑17),后者标记的是大分子结构的变化13,14。FABP4免疫标记可实现对细胞形态变化的可视化和分析,这是相较于以往方法的一项显著优势:例如,定量逆转录PCR(RT-qPCR)仅在转录水平分析变化而无法提供可视化信息5,18,19,20;流式细胞术要求细胞处于悬浮状态20;而Western blotting则需裂解细胞以提取蛋白19,20。FABP4免疫标记在固定后的细胞中稳定,不会在溶液中泄漏;且由于其为胞质蛋白,在贴壁单层细胞中标记时会与细胞核重叠,从而便于观察,并在自动分析中提高准确性。
高内涵筛选具有快速、准确、可重复和客观的优势。它为试剂和研究人员时间的高效利用提供了平台,因为图像的采集和分析几乎不需要人工干预,主要依赖仪器的自动处理。已有研究确定了若干对高内涵筛选实验的准确性和可重复性至关重要的因素31。抗原表达量的定量依赖于图像质量。为了实现成功的图像分析,每个孔中各通道的图像必须聚焦清晰,并且灰度值处于最佳动态范围内(自动曝光设置最为理想)。失焦或过饱和的图像会导致错误的结果。
本文所述方法可能存在以下一些局限性。需要使用专业的成像设备和分析软件。尽管这超出了本文的范围,但可采用其他开源软件选项(例如 ImageJ32,33、Fiji34、CellProfiler32,35)来执行类似的图像分割任务;然而,这些软件要求使用者具备下载并修改网上现有宏代码,或为其特定分析流程编写宏命令或指令的能力。所有自动成像分析流程均存在一定程度的背景噪声,这主要归因于碎片残留、图像质量不佳或分析误差,因此强调了精细的样品制备以及成像与分析平台的严谨设置的重要性。已有研究发现,小鼠中的 FABP4 标记物可检测到未分化的前体细胞30;而本研究中的对照样本(由未分化细胞组成)则未出现特异性的 FABP4 染色。这进一步凸显了在每次应用该检测方法时,必须在特定的生物学背景下验证未分化前体细胞中 FABP4 表达情况的必要性。
为了在FABP4标记与油红O染色之间进行有效的比较,图像分析所得的输出测量值必须具有生物学意义。因此,FABP4采用“阳性细胞百分比”作为测量指标,而油红O则采用“每细胞染色面积”作为测量指标。值得注意的是,在本研究中并未对油红O标记的细胞使用“阳性细胞百分比”这一指标,因为无法准确地将标记的脂滴归属于特定的细胞核;脂滴在细胞内的大小、数量和分布差异显著,且很少与细胞核重叠。来源于不同组织来源的细胞之间存在油红O染色的变异性;尽管“阳性细胞百分比”在本研究中并不适用,但另一研究团队已成功将其用于量化来源于人腺体干细胞的脂肪细胞22,在该研究中油红O染色表现为一个贯穿细胞质并覆盖细胞核的大脂滴,从而能够将数据以阳性细胞百分比的形式呈现。
相比之下,源自不同组织来源的脂肪细胞中FABP4免疫标记的形态具有一致性23,24,25。能够量化培养物中具有分化能力的细胞比例,在多个方面具有应用价值。成体间充质基质细胞在多种治疗用途中具有广阔前景。然而,在临床转化过程中出现的一个重要问题是,这些细胞在不同患者之间26、不同分离部位之间27,28,以及不同分离方法12和细胞扩增方法12用于治疗时,其分化能力存在固有的变异性。已有研究表明,贴壁生长的基质细胞培养物通常具有异质性,其中部分细胞具备分化能力,而另一些则不具备12,17,这一点也通过本研究中的FABP4检测在ASC培养物中得到证实。此类检测方法结合富集技术,将有助于识别异质性培养物中具有谱系特异性分化能力的亚群。拥有如本FABP4检测这样标准化且可量化的检测手段,可为上述各种变量之间的比较提供简便方法,并有望用于评估不同临床试验内部及之间的治疗效果。
以半自动化方式定量 FABP4 可在大量供体样本和样品的分析中实现客观性和可重复性。此外,由于该标记位于细胞质中,因此除增生(脂肪细胞数量增加)外,还可用于分析肥大(脂肪细胞体积增大),这一区别在肥胖研究中具有重要意义,因为肥大与肥胖个体中脂肪组织功能障碍密切相关21。肥胖的流行促使人们高度关注寻找能够调控脂质储存的药物。该 FABP4 检测方法还为筛选成千上万种化合物抑制脂质积聚的能力提供了简便的读出手段。
披露
作者声明无利益冲突。
致谢
我们感谢提供脂肪组织的捐赠者以及负责采集并提供该资源供我们用于研究的研究人员。我们感谢艾尔建公司(Allergan)提供的经费支持。同时,我们也感谢奥克兰大学医学与健康科学学部基于绩效的研究基金,为本文投稿所需的视频拍摄与编辑费用提供了资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Tris 碱 | Invitrogen | 15504-020 | Tris 缓冲盐水 |
| 氯化钠 | Merck | 1064041000 | Tris 缓冲盐水 |
| 氯化钾 | Merck | 1049360500 | Tris 缓冲盐水 |
| 叠氮化钠 | Scharlau | SO0091 | 酪蛋白封闭液 |
| 酪蛋白 | Sigma | C7078-500G | 酪蛋白封闭液 |
| PBS 片剂 | Sigma | P4417-100TAB | 磷酸盐缓冲盐水 |
| DMEM/F12 | Gibco | 11330-032 | 细胞培养 |
| 青霉素/链霉素 | Invitrogen | 15140-122 | 细胞培养 |
| Glutamax | Gibco | 35050-061 | 细胞培养 |
| 胎牛血清 | Gibco | 10091-148 | 细胞培养 |
| TrypLE Select 酶(1X),无酚红 | Gibco | 12563-029 | 细胞解离酶 |
| 96 孔板(平底) | Falcon | FAL353072 | 细胞培养设备 |
| T75 培养瓶,带滤膜瓶盖 | Greiner | 658175 | 细胞培养设备 |
| 胰岛素 | Sigma | 19278-5ML | 成脂分化培养基 |
| 地塞米松 | Sigma | D2915-100MG | 成脂分化培养基 |
| 吲哚美辛 | Sigma | I7378-5G | 成脂分化培养基 |
| 油红 O | Sigma | O-0625 | 成脂作用的经典染色剂 |
| 异丙醇 | Merck | 1.09634 | 成脂作用的经典染色剂 |
| 16% 甲醛 | Pierce | 28908 | 细胞固定 |
| 丙酮 | Merck | 100983 | 细胞固定 |
| DAPI | Sigma | D9542 | 免疫细胞化学 |
| 抗兔 IgG Alexa 488 | Molecular Probes | A11008 | 免疫细胞化学 |
| 硫柳汞 | Sigma | T5125-10G | 免疫细胞化学 |
| 兔抗人脂肪酸结合蛋白 4(FABP4)抗体 | Cayman Chemicals | 10004944 | 成脂作用的标志物 |
| 离心管(15 mL) | Greiner | GR188271 | 通用 |
| 离心管(50 mL) | Greiner | GR227261-P | 通用 |
| ImageXpress Micro XLS | Molecular Devices | 高内涵筛选仪器 | |
| MetaXpress | Molecular Devices | 高内涵筛选软件,版本 5.4.01 |
参考文献
- Dominici, M., et al. Minimal criteria for defining multipotent mesenchymal stromal cells. The International Society for Cellular Therapy position statement. Cytotherapy. 8 (4), 315-317 (2006).
- Proescher, F. Oil Red O Pyridin, A Rapid Fat Stain. Biotech Histochem. 2 (2), 60-61 (1927).
- Matarese, V., Bernlohr, D. a Purification of murine adipocyte lipid-binding protein. Characterization as a fatty acid- and retinoic acid-binding protein. J Biol Chem. 263 (28), 14544-14551 (1988).
- Lafontan, M., Langin, D. Lipolysis and lipid mobilization in human adipose tissue. Prog Lipid Res. 48 (5), 275-297 (2009).
- Sekiya, I., Larson, B. L., Vuoristo, J. T., Cui, J. C., Prockop, D. J. Adipogenic Differentiation of Human Adult Stem Cells From Bone Marrow Stroma (MSCs). J Bone Min Res. 19 (2), 256-264 (2004).
- Baxa, C., et al. Human adipocyte lipid-binding protein: purification of the protein and cloning of its complementary DNA. Biochemistry. 28 (22), 8683-8690 (1989).
- Bourin, P., et al. Stromal cells from the adipose tissue-derived stromal vascular fraction and culture expanded adipose tissue-derived stromal/stem cells: A joint statement of the International Federation for Adipose Therapeutics and Science (IFATS) and the International So. Cythotherapy. 15 (6), 641-648 (2013).
- Zuk, P., et al. Multilineage cells from human adipose tissue: implications for cell-based therapies. Tissue Eng. 7 (2), 211-228 (2001).
- Orbay, H., Tobita, M., Mizuno, H. Mesenchymal stem cells isolated from adipose and other tissues: Basic biological properties and clinical applications. Stem Cells Int. 2012, (2012).
- Feisst, V., Brooks, A. E. S., Chen, C. J. J., Dunbar, P. R. Characterization of mesenchymal progenitor cell populations directly derived from human dermis. Stem Cells Dev. 23 (6), 631-642 (2014).
- Mitterberger, M. C., Lechner, S., Mattesich, M., Zwerschke, W. Adipogenic differentiation is impaired in replicative senescent human subcutaneous adipose-derived stromal/progenitor cells. Journals Gerontol - Ser A Biol Sci Med Sci. 69 (1), 13-24 (2014).
- Baer, P. C., Geiger, H. Adipose-derived mesenchymal stromal/stem cells: Tissue localization, characterization, and heterogeneity. Stem Cells Int. , (2012).
- Xu, S., et al. Evaluation of foam cell formation in cultured macrophages: An improved method with Oil Red O staining and DiI-oxLDL uptake. Cytotechnology. 62 (5), 473-481 (2010).
- Hopkins, P. M., et al. Oil red O stain of alveolar macrophages is an effective screening test for gastroesophageal reflux disease in lung transplant recipients. J Hear Lung Transplant. 29 (8), 859-864 (2010).
- Dragunow, M., Cameron, R., Narayan, P., O'Carroll, S. Image-based high-throughput quantification of cellular fat accumulation. J Biomol Screen. 12 (7), (2007).
- Greenspan, P., Mayer, E. P., Fowler, S. D. Nile red: a selective fluorescent stain for intracellular lipid droplets. J Cell Biol. 100 (3), 965-973 (1985).
- Muraglia, A., Cancedda, R., Quarto, R. Clonal mesenchymal progenitors from human bone marrow differentiate in vitro according to a hierarchical model. J Cell Sci. 113 (Pt 7), 1161-1166 (2000).
- Neubauer, M., et al. Basic fibroblast growth factor enhances PPARgamma ligand-induced adipogenesis of mesenchymal stem cells. FEBS Lett. 577 (1-2), 277-283 (2004).
- Janderova, L., McNeil, M., Murrell, A. N., Mynatt, R. L., Smith, S. R. Human mesenchymal stem cells as an in vitro model for human adipogenesis. Obes Res. 11 (1), 65-74 (2003).
- Aldridge, A., Kouroupis, D., Churchman, S., English, A., Ingham, E., Jones, E. Assay validation for the assessment of adipogenesis of multipotential stromal cells--a direct comparison of four different methods. Cytotherapy. 15 (1), 89-101 (2013).
- Wang, Q. A., Tao, C., Gupta, R. K., Scherer, P. E. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 19 (10), 1338-1344 (2013).
- Gorjup, E., Peter, L., Wien, S., von Briesen, H., Schmitt, D. Automated microscopic quantification of adipogenic differentiation of human gland stem cells. Ann Anat. 191 (1), 13-22 (2009).
- Wojciechowicz, K., Gledhill, K., Ambler, C. A., Manning, C. B., Jahoda, C. A. B. Development of the mouse dermal adipose layer occurs independently of subcutaneous adipose tissue and is marked by restricted early expression of FABP4. PLoS One. 8 (3), e59811(2013).
- Sandhu, M. A., Jurek, S., Trappe, S., Kolisek, M., Sponder, G., Aschenbach, J. R. Influence of Bovine Serum Lipids and Fetal Bovine Serum on the Expression of Cell Surface Markers in Cultured Bovine Preadipocytes. Cells Tissues Organs. 204 (1), 13-24 (2017).
- LaRosa, P. C., et al. Trans-10, cis-12 conjugated linoleic acid activates the integrated stress response pathway in adipocytes. Physiol Genomics. 31 (3), 544-553 (2007).
- Sen, A., et al. Adipogenic potential of human adipose derived stromal cells from multiple donors is heterogeneous. J Cell Biochem. 81 (2), 312-319 (2001).
- Zuk, P. A., et al. Human Adipose Tissue Is a Source of Multipotent Stem Cells. Mol Biol Cell. 13 (12), 4279-4295 (2002).
- Russo, V., Yu, C., Belliveau, P., Hamilton, A., Flynn, L. E. Comparison of Human Adipose-Derived Stem Cells Isolated from Subcutaneous, Omental, and Intrathoracic Adipose Tissue Depots for Regenerative Applications. Stem Cells Transl Med. 3 (2), 206-217 (2014).
- Tilg, H., Moschen, A. R. Adipocytokines: mediators linking adipose tissue, inflammation and immunity. Nat Rev Immunol. 6 (10), 772-783 (2006).
- Shan, T., Liu, W., Kuang, S. Fatty acid binding protein 4 expression marks a population of adipocyte progenitors in white and brown adipose tissues. FASEB J Off Publ Fed Am Soc Exp Biol. 27 (1), 277-287 (2013).
- Narayan, P. J., Dragunow, M. High content analysis of histone acetylation in human cells and tissues. J Neurosci Methods. 193 (1), (2010).
- Buchser, W., et al. Assay Development Guidelines for Image-Based High Content Screening, High Content Analysis and High Content Imaging. Assay Guid Man. , 1-80 (2004).
- Abràmofff, M. D., Magalhães, P. J., Ram, S. J. Image processing with ImageJ. Part II. Biophotonics Int. 11 (7), 36-43 (2005).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biol. 7 (10), R100(2006).
重印与许可
