非整倍性会导致基因组不稳定,最终产生具有复杂核型的细胞周期阻滞细胞。本文提供了一种简单便捷的方法,用于分离停止分裂的具有复杂核型的非整倍体细胞。
本文内容
摘要
摘要
染色体错误分离会导致非整倍性,即细胞含有不平衡的染色体数目。大量证据强烈表明,非整倍性会引发基因组不稳定性,最终产生具有复杂核型并停止增殖的细胞。分离和表征具有复杂核型的细胞,对于研究染色体数目失衡对细胞生理功能的影响至关重要。迄今为止,尚未建立可稳定分离此类非整倍体细胞的方法。本文提供了一种利用常规且低成本的组织培养技术来富集和分析具有复杂核型的非整倍体细胞的实验方案。该方案可用于分析具有复杂核型的非整倍体细胞的多种特征,包括其诱导的衰老相关分泌表型、促炎特性以及与免疫细胞相互作用的能力。由于癌细胞常伴有染色体数目的失衡,因此解析非整倍性如何影响正常细胞的生理功能至关重要,最终目标是揭示其在肿瘤发生中的促进和抑制双重作用。
引言
染色体分离过程中的错误会导致非整倍性,即染色体数目不是单倍体染色体组的整数倍的一种状态1,2,3,4。非整倍体核型会引发复制应激,从而导致进一步的基因组不稳定性5,6,7,8,9,10,增加核型复杂性,并最终导致部分细胞发生细胞周期阻滞10。本文所介绍方法的目的是生成并分离出此类细胞亚群,使其与持续增殖的细胞区分开来。通过使用低成本的组织培养技术,本方案有助于分离并鉴定具有复杂核型的细胞周期阻滞的非整倍体细胞。这类细胞被称为 ArCK(具有复杂核型的阻滞细胞),而与其对应的正常整倍体增殖细胞则作为对照。
本方案是首个为此目的建立的实验方法,可用于分离并进一步研究ArCK细胞系,包括但不限于其诱导的衰老特性及衰老相关分泌表型(SASP)、促炎特征以及与免疫细胞相互作用的能力。本文所述方法已在非转化、永生化的人源细胞中开发完成,但尚未在癌细胞系中进行测试。某些转化细胞可能由于一条或多条信号通路被抑制,而对细胞周期阻滞不敏感;因此,应在其他细胞系中进一步验证该方法的有效性。
方案
培养条件
RPE-1 hTERT 细胞系在添加了10%胎牛血清、2 mM L-谷氨酰胺和100 U/ml 青霉素/链霉素的杜氏改良伊格尔培养基(材料表)中培养。细胞在37 °C、5% CO2的湿润环境中孵育。以下所述方案采用10 cm培养皿开发,所有报告的技术细节均针对此类培养皿。若使用不同规格的培养皿,需相应地进行放大或缩小。
1. RPE-1 细胞的同步化
- 所有实验均应使用解冻后未超过15代的细胞。第1天,将约2.5 - 5.0 × 10⁵个RPE-1 hTERT细胞解冻并接种至10 cm细胞培养皿中。加入8 mL标准生长培养基,过夜培养。使用标准细胞计数仪(如血细胞计数板)测定细胞数量。
注意:细胞密度指的是RPE-1细胞的生长条件。不同细胞系的生长条件可能有所不同,应相应调整。 - 第2天,通过吸除常规生长培养基,并加入含5 mM胸腺嘧啶的8 mL培养基,使细胞在G1/S期边界同步化。
注意:不同细胞系所需的胸腺嘧啶浓度和处理时间可能不同。建议先进行预实验,以确定待测细胞系的最佳条件。 - 第3天,在添加胸腺嘧啶培养基24小时后(步骤1.2),吸除培养基,用1× PBS洗涤细胞三次,以解除胸腺嘧啶阻滞。加入8 mL常规生长培养基,将培养皿放回培养箱继续培养。
2. 通过干扰有丝分裂激酶Mps1的活性产生非整倍体细胞
- 第3天,在胸苷阻断释放后6小时(步骤1.3;此时约为细胞进入有丝分裂前3–6小时),吸除培养基,用1× PBS洗涤一次,更换为含有500 nM reversine(Mps1抑制剂)的新鲜培养基。
注意:RPE-1细胞在胸腺嘧啶洗脱后9 - 12小时进入有丝分裂10,11然而,不同细胞系的细胞周期动力学存在差异。因此,通过已建立的方法在预实验中进行细胞周期分析,以确定这些动力学参数至关重要。例如,通过测量DNA含量 通过 FACS 分析)。此外,Mps1 抑制剂的最佳工作浓度可能因细胞系而异。此前使用 RPE1 细胞的实验已成功采用 500 nM 工作浓度的 reversine10,11,12建议进行预实验以确定待测细胞系的最佳浓度。 - 第4天,在使用reversine处理12小时后(约在细胞进入有丝分裂后6小时),吸除含reversine的培养基,用1×PBS洗涤细胞3次。向培养板中加入8 mL常规生长培养基,将细胞放回培养箱中继续培养。
3. 去除非整倍体循环细胞并富集ArCK细胞群
- 在第6天,即细胞进入第一次有丝分裂后约72小时(步骤2.2;相当于撤除reversine后约66小时,对应约2-3个细胞周期),吸除培养基,用1×PBS洗涤一次,然后更换为含有300 nM nocodazole的培养基。
注意:近期研究表明,携带非整倍体核型的RPE-1细胞基因组不稳定,在首次异常有丝分裂后约2-3个细胞周期内会停止增殖10。然而,不同细胞系的这一动力学过程可能存在差异。因此,必须通过预实验确定清除非整倍体循环细胞的合适时间。 - 在第7天,即nocodazole处理12小时后,吸除培养基,并向培养板中加入3 mL 1×PBS。通过轻敲培养板边缘使有丝分裂期细胞脱落。每次敲击之间旋转培养板,以确保有丝分裂期细胞被均匀去除。
- 为确保完全去除有丝分裂期细胞,建议重复振荡脱落过程多次(推荐3-5次),每次之间吸除并重新加入3 mL 1×PBS。
- 振荡脱落后,轻轻吸除附着在盖子或培养板边缘的液体。在10倍显微镜下快速检查培养板,确认几乎无有丝分裂期细胞残留。若在10倍物镜下观察到超过五个有丝分裂期细胞,则需再进行一轮振荡脱落。
注意:有丝分裂期细胞呈圆形,振荡后可能部分脱离。在细胞接受下一轮nocodazole处理前,确保完全去除有丝分裂期细胞至关重要。若未彻底清除,可能导致有丝分裂细胞死亡和/或产生四倍体细胞。 - 最终振荡脱落后,用5 mL 1×PBS轻轻洗涤细胞一次。向培养板中加入8 mL含330 nM nocodazole的培养基,继续孵育12小时。
- 每12小时重复一次nocodazole处理/振荡脱落(步骤3.1–3.5),直至孵育后显微镜下未见有丝分裂期细胞。通常建议进行4–5轮处理/脱落。
注意:此处提供的信息基于RPE-1细胞。不同细胞系所需的处理/脱落轮次可能有所不同。为避免细胞长时间且不必要的nocodazole暴露,必须通过预实验仔细确定高效且彻底清除非整倍体循环细胞所需的处理轮次。 - 完成4–5轮nocodazole处理/振荡脱落(步骤3.1–3.6)后,加入10 mL常规生长培养基并继续孵育。在进行后续操作或检测前,让细胞静置恢复12–24小时。
注意:最终振荡脱落后,培养板上残留的细胞处于细胞周期阻滞状态,且如近期研究所示10,具有复杂的核型。这类细胞被称为ArCK(具有复杂核型的阻滞细胞)。建议在分离后一周内对ArCK细胞群体进行相关检测。 - 可选:为评估具有复杂核型的阻滞细胞比例,可使用标准细胞计数仪收集并计数每轮振荡脱落所得的细胞。

图1:生成并分离具有复杂核型(ArCK)的非整倍体细胞的方法总览示意图及代表性图像。 (A) ArCK细胞生成与分离流程示意图。 (B) RPE-1 hTERT细胞在处理各阶段的代表性图像。最后一幅图(红色边框)代表分离得到的ArCK细胞。比例尺:100 µm。 请点击此处查看该图的放大版本。
4. ArCK 细胞群的表征
- 通过执行以下实验确认ArCK细胞群体分离成功。
- 使用 commercially available kit(参见材料表)进行β-半乳糖苷酶染色(衰老标志物)检测。
- 利用 commercially available kit(参见材料表)检测促炎性细胞因子(如CCL2)的分泌水平。
- 通过Western Blot确认细胞周期抑制因子p53、p21、p16的表达水平升高。
注意:为正确设置对照,ArCK细胞群体应与整倍体和非整倍体增殖细胞同时比较。前者指低代次、野生型RPE-1 hTERT细胞,处于指数生长期;后者可通过在RPE-1 hTERT细胞中诱导染色体错误分离,并在首次异常有丝分裂后72小时收集细胞获得。具体操作请参照上述第1.1步开始的实验流程,并在第一次诺考达唑处理前(第3.1步)收集细胞。
- 进行单细胞测序以分析 arrested 细胞的核型。
注意:单细胞测序是一种成熟的技术,可用于在单细胞水平上检测细胞群体中的染色体及亚染色体水平的改变13。有关单细胞测序操作的详细步骤可参考其他文献10。
结果
该方法利用一种 体外 用于分离增殖停滞且具有复杂核型的非整倍体细胞的组织培养系统。该细胞群体被称为ArCK(增殖停滞伴复杂核型)细胞。 图1A 图示为实验方案。将野生型周期性RPE-1 hTERT细胞用胸苷同步于G1/S期交界处,并用Mps1抑制剂处理以诱导染色体错误分离。在诱导染色体错误分离72小时后,向细胞中加入纺锤体毒物诺考达唑。诺考达唑处理12小时后,仍具有增殖能力的非整倍体细胞进入有丝分裂,并因微管聚合受阻而停滞于该细胞周期阶段。通过轻柔振摇即可去除这些停滞的细胞。重复振摇3至5次以确保完全清除周期性细胞。 图1B 显示了RPE-1细胞在处理各阶段的代表性图像。
与整倍体和非整倍体增殖细胞相比,ArCK细胞表现出更高水平的细胞周期抑制因子,如p53、p21和p16,如图2A所示。此外,图2B显示,与整倍体对照细胞相比,ArCK细胞呈现β-半乳糖苷酶染色阳性,这是细胞衰老的一个公认标志。

图2:利用ArCK细胞获得的代表性结果。 (A) 通过Western blot检测整倍体细胞、非整倍体循环细胞和ArCK细胞中细胞周期抑制因子的表达水平。采用Western blot分析检测p53、p21和p16的表达水平,以肌动蛋白(Actin)作为上样对照。 (B) β-半乳糖苷酶染色检测ArCK细胞的衰老水平。检测整倍体细胞和ArCK细胞中与衰老相关的β-半乳糖苷酶(β-Gal)活性。比例尺为100 µm。 请点击此处查看该图的放大版本。
这种细胞周期阻滞是具有复杂核型的非整倍体细胞的一个显著特征,如图3中单细胞测序的代表性核型分析所示,ArCK细胞表现出多个随机的染色体获得和丢失。该发现与先前的报道完全一致10。
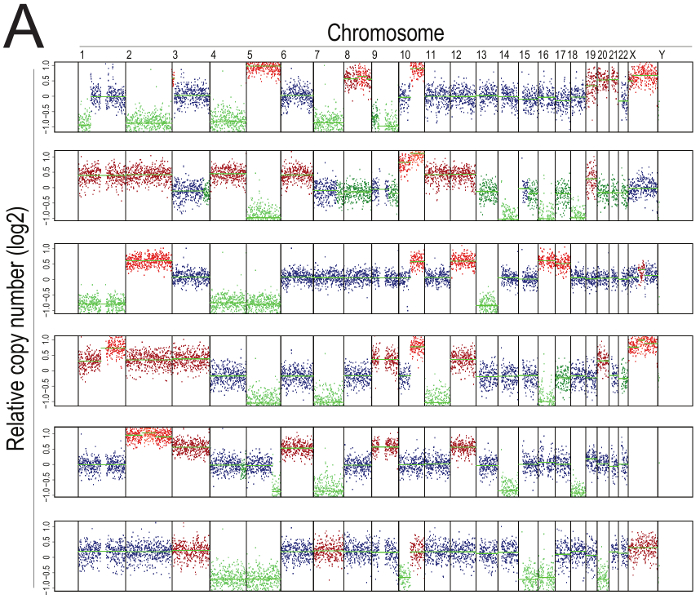
图3:ArCK细胞的代表性单细胞测序结果。 分段图显示了六个代表性ArCK细胞的核型。分段图以对数2尺度展示了从染色体1到X染色体相对于整倍体参考样本的拷贝数(野生型RPE-1为女性来源的二倍体细胞系)。染色体拷贝数增加以红色标出,拷贝数减少以绿色标出。请点击此处查看该图的放大版本。
讨论
这种用于生成并富集具有复杂核型的停滞细胞(ArCK)的新方法,可实现对发生多条染色体获得或丢失且停止分裂的细胞进行研究。该方法的设计旨在快速、可靠地分离出ArCK细胞。
该实验中最关键的步骤是严格控制药物处理的时间进程,尤其是去除非整倍体增殖细胞的时机。为了获得最佳结果,秋水仙素处理及振摇去除细胞的时间尤为关键,需确保在细胞仍处于变圆且处于有丝分裂阶段时将其从培养板中去除,从而避免有丝分裂细胞死亡或滑入G1期,防止产生四倍体细胞群体。不建议振摇去除细胞的时间偏离推荐的12小时秋水仙素孵育时间超过两小时。
关于ArCK细胞的未来研究有望促进对复杂核型如何影响细胞生理学的深入理解。特别是,最近一项研究表明,免疫系统的细胞能够与ArCK细胞相互作用并触发其免疫清除10。本文所述方法为ArCK细胞的进一步表征提供了良好的起点,包括阐明非转化细胞中免疫清除背后的分子机制,以及研究癌基因转化如何可能绕过这种监视机制,这是该领域的一个关键科学问题14,15。
披露
作者无任何利益冲突需要披露。
致谢
本工作部分得到了美国国家癌症研究所科赫研究所支持(核心)基金(P30-CA 14051)、美国国立卫生研究院基金(CA206157-22 和 GM118066)以及安杰丽卡·阿蒙(Angelika Amon)获得的柯特·马布尔癌症研究基金的资助。安杰丽卡·阿蒙(Angelika Amon)同时也是霍华德·休斯医学研究所和格伦生物医学研究基金会的研究员。S. S. 获得了美国意大利癌症基金会(AICF)、玛丽·居里行动计划和意大利癌症研究协会(AIRC)癌症研究奖学金以及科赫研究所五年期癌症研究奖学金的资助。E. M. 获得了霍华德·休斯医学研究所奖学金的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMEM(Dulbecco’s 改良型 Eagle 培养基) | Thermofisher | 11995-073 | |
| 胸腺嘧啶核苷(Thymidine) | Sigma Aldrich | T1859 | |
| Reversine | Cayman Chemical Company | 10004412 | |
| 诺考达唑(Nocodazole) | Sigma Aldrich | M1410 | |
| 抗-p53 抗体 | Santa Cruz | sc-126 | |
| 抗-p21 抗体 | Santa Cruz | sc-6246 | |
| 抗-p16 抗体 | BD | 554079 | |
| 衰老相关 β-半乳糖苷酶染色试剂盒 | Cell Signaling Technology | 9860 | |
| Proteome Profiler 人细胞因子阵列试剂盒 | R&D Systems | ARY005B |
参考文献
- Santaguida, S., Amon, A. Short- and long-term effects of chromosome mis-segregation and aneuploidy. Nature Reviews Molecular Cell Biology. 16 (8), 473-485 (2015).
- Pfau, S. J., Amon, A. Chromosomal instability and aneuploidy in cancer: from yeast to man. EMBO reports. 13 (6), 515-527 (2012).
- Gordon, D. J., Resio, B., Pellman, D. Causes and consequences of aneuploidy in cancer. Nature Reviews Genetics. 13 (3), 189-203 (2012).
- Holland, A. J., Cleveland, D. W. Boveri revisited: chromosomal instability, aneuploidy and tumorigenesis. Nature Reviews Molecular Cell Biology. 10 (7), 478-487 (2009).
- Meena, J. K., Cerutti, A., et al. Telomerase abrogates aneuploidy-induced telomere replication stress, senescence and cell depletion. The EMBO Journal. , 1-14 (2015).
- Ohashi, A., Ohori, M., et al. Aneuploidy generates proteotoxic stress and DNA damage concurrently with p53-mediated post-mitotic apoptosis in SAC-impaired cells. Nature Communications. 6, 7668(2015).
- Passerini, V., Ozeri-Galai, E., et al. The presence of extra chromosomes leads to genomic instability. Nature Communications. 7, 10754(2016).
- Sheltzer, J. M., Blank, H. M., et al. Aneuploidy drives genomic instability in yeast. Science. 333 (6045), 1026-1030 (2011).
- Zhu, J., Pavelka, N., Bradford, W. D., Rancati, G., Li, R. Karyotypic determinants of chromosome instability in aneuploid budding yeast. PLoS Genetics. 8 (5), e1002719(2012).
- Santaguida, S., Richardson, A., et al. Chromosome Mis-segregation Generates Cell-Cycle-Arrested Cells with Complex Karyotypes that Are Eliminated by the Immune System. Developmental Cell. 41 (6), 638.e5-651.e5 (2017).
- Santaguida, S., Vasile, E., White, E., Amon, A. Aneuploidy-induced cellular stresses limit autophagic degradation. Genes & Development. 29 (19), 2010-2021 (2015).
- Santaguida, S., Tighe, A., D'Alise, A. M., Taylor, S. S., Musacchio, A. Dissecting the role of MPS1 in chromosome biorientation and the spindle checkpoint through the small molecule inhibitor reversine. The Journal of Cell Biology. 190 (1), 73-87 (2010).
- Gawad, C., Koh, W., Quake, S. R. Single-cell genome sequencing: current state of the science. Nature Reviews Genetics. 17 (3), 175-188 (2016).
- López-Soto, A., Gonzalez, S., López-Larrea, C., Kroemer, G. Immunosurveillance of Malignant Cells with Complex Karyotypes. Trends in cell biology. , 1-4 (2017).
- Watson, E. V., Elledge, S. J. Aneuploidy Police Detect Chromosomal Imbalance Triggering Immune Crackdown! Trends in genetics: TIG. , 1-3 (2017).
重印与许可
