本文介绍了一种用于获取脂滴指数(LD指数)的实验方案,以研究在高通量培养实验中细胞内三酰甘油的动态变化。LD指数检测是一种简便且可靠的检测方法,采用BODIPY 493/503染料,无需进行繁琐的脂质提取或显微镜分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
通过液体荧光恢复法测定真菌病原体 Ustilago maydis 中的脂质指数
* These authors contributed equally
本文内容
摘要
摘要
本文介绍如何实施脂滴指数(LD index)检测方法,这是一种灵敏的微孔板检测法,用于测定脂滴(LDs)中甘油三酯(TAGs)的积累情况。该方法无需进行脂质提取即可获得脂滴指数,能够在不同条件下(如在富营养或氮缺乏培养基中培养)对高通量实验中的脂滴含量进行定量分析。尽管该方法最初是为研究脂滴代谢而首次描述的 酿酒酵母(Saccharomyces cerevisiae) 已成功将其应用于担子菌 Ustilago maydis有趣的是,由于脂滴(LDs)是在真核细胞中系统发育上保守的细胞器,该方法可广泛应用于多种细胞类型,从酵母到哺乳动物细胞均可适用。脂滴指数基于在淬灭条件下通过加入经甲醛固定的细胞,对BODIPY 493/503进行液体荧光恢复检测(LFR)而获得. 碘化钾用作荧光淬灭剂。荧光与光密度斜率之间的比值称为LD指数。斜率由BODIPY荧光和600 nm处光密度(OD)所得直线计算得出。600) 与样品添加量作图。最佳数据质量表现为相关系数等于或高于 0.9(r ≥ 0.9)。由于该方法可在微孔板中进行,因此可同时检测多个样品。由于 BODIPY 493/503 是一种亲脂性荧光染料,可分布于脂滴中,因此可用于多种积累脂滴的细胞类型。
引言
脂滴(LDs)是普遍存在于细胞内的脂肪结构,其核心由中性脂质组成,主要是三酰甘油(TAGs)和甾醇酯(SE)。核心外包裹着一层磷脂单分子层,该单分子层与多种蛋白质相互作用,例如 perilipin 蛋白以及参与中性脂质合成的酶类,如二酰甘油酰基转移酶、乙酰辅酶A羧化酶和酰基辅酶A合成酶1。由于其动态特性,磷脂单分子层还含有能够水解TAGs和SE的三酰甘油脂肪酶2。根据细胞类型和生物体的不同,储存的中性脂质可用于能量生成,或用于合成磷脂和信号分子。在酵母及其他真菌中,脂滴的内容物会随着培养基中氮/碳比例的变化而改变,表明氮源可用性的降低可能是提高中性脂质产量的关键因素3,4,5。酵母中大量产生TAGs在生物技术领域具有潜在应用价值,可作为生物燃料的来源,并可用于食品工业。某些储存的脂质含有高比例的多不饱和脂肪酸,如ω-3和ω-6,具有重要的营养和膳食意义6,7,8,9,10,11。哺乳动物细胞(包括人类细胞)的脂滴也含有TAGs和胆固醇酯。其磷脂单分子层与酵母脂滴中所述蛋白的哺乳动物同源蛋白相互作用,并且还结合一种在S. cerevisiae中不存在的额外蛋白——perilipin12。磷脂单分子层及其相关蛋白的一个被提出的功能是稳定脂滴结构,并介导脂滴与线粒体、内质网、过氧化物酶体和液泡等细胞器之间的相互作用,主要参与脂质交换13,14。有趣的是,在人类中,脂滴似乎参与了2型糖尿病、动脉粥样硬化、脂肪性肝炎和冠心病等疾病的病理过程,这些疾病中脂滴数量有所增加15,16,17。某些类型的病毒利用脂滴作为组装病毒颗粒的平台2,18,19。
由于脂滴(LDs)在人类病理学中的意义及其潜在的生物技术应用,精确实验测定脂滴的形成是一项重要任务。本文描述了一种基于BODIPY 493/503(4,4-二氟-1,3,5,7,8-五甲基-4-硼-3a,4a-二氮杂-s-引达省)荧光恢复(LFR)的可靠检测方法,用于获得细胞中中性脂质含量的相对值。利用该方法,无需进行脂质提取20,即可追踪中性脂质在U. maydis和S. cerevisiae等真菌以及哺乳动物细胞中的积累动态。该方法首次应用于S. cerevisiae,以鉴定参与脂质代谢调控的蛋白磷酸酶和激酶,且无需脂质提取或蛋白质纯化过程21,22。LFR还被用于建立腹膜巨噬细胞中脂滴形成的动态过程23。与尼罗红等其他中性脂质染料相比,BODIPY 493/503具有一些优势:它对中性脂质具有高度特异性,并且发射光谱较窄,因而在共聚焦显微镜分析样品时,有利于同时检测红色荧光蛋白或Mito-tracker等染料的信号。然而,BODIPY 493/503易受光漂白影响,但通过在光照期间使用抗淬灭试剂可避免这一问题24。
为了在酵母细胞中进行脂滴荧光回复(LFR)检测,需将细胞在所需的营养条件下培养,并在不同时间点取样。接着,用甲醛固定细胞,当细胞在4 °C保存时,该固定方法可使脂滴(LDs)的完整性保持数月。应避免使用其他固定技术,尤其是甲醇或冷丙酮固定法,因为这些方法会导致细胞内脂滴的降解24。为测定脂滴指数,将甲醛固定的细胞重悬于水中,以获得特定浓度。然后将其加入含有被碘化钾(KI)淬灭的荧光染料BODIPY 493/503的溶液中;当荧光染料进入细胞并与脂滴结合后,其荧光信号得以恢复。在检测荧光信号(激发波长485 nm,发射波长510 nm)的同时,通过测定600 nm处的光密度来量化细胞浓度。每个样品通过向同一孔中依次添加4份5 µL的甲醛固定细胞悬液,共读取四次数据。在加入细胞前,需先测定荧光和吸光度的空白值。通过评估测量数据的线性关系来判断荧光和吸光度数据的质量:若相关系数r <0.9,则舍弃该组数据。r值至关重要,因为荧光强度理论上应随细胞浓度的增加呈线性响应。若细胞浓度过高,则会导致线性关系丧失。LFR检测提供了一种快速、简便且经济的方法,可用于高通量实验中筛选理想的脂滴表型。在确定理想条件后,可利用共聚焦显微镜对经相同甲醛固定并用BODIPY染色的单个细胞进行脂滴形态观察,从而获得细胞内脂滴的图像。随后,还可通过薄层色谱法进一步分析其三酰甘油(TAGs)和甾醇酯(SE)的含量。
访问受限。请登录或开始试用以查看此内容。
方案
1. 缓冲液和溶液的配制
- 配制1 L磷酸盐缓冲液(PBS,pH 7),溶解8 g NaCl、0.2 g KCl、1.44 g Na2HPO4,0.24 g KH2PO4 在800 mL蒸馏水中,用HCl调节pH至7.0,然后加水定容至1 L。PBS可配制成10x储存液,在室温下保存。
- 配制10 mL固定液:将1 mL 37%甲醛加入9 mL PBS中,使终浓度为3.7%。该溶液需现用现配。
注意:操作甲醛溶液时需佩戴手套。 - 配制淬灭溶液(500 mM):将8.3 g碘化钾(KI)溶于100 mL蒸馏水中。使用前配制,并于室温保存。
- 为配制 BODIPY 10 mM 储存液,将 10 mg BODIPY 493/503 溶于 3.8 mL 二甲基亚砜(DMSO)中。保存 100 µL 避光保存于 -70 °C.
- BODIPY 的制备方法 5 µM淬灭溶液,加入 1 µL 将10 mM BODIPY 493/503加入2 mL 500 mM淬灭溶液中。对于LFR检测,终浓度为 5 µM 需要 BODIPY。
- 为配制矿物溶液,加入 0.06 g H3BO3,0.14 g MnCl2-4H2O,0.4 g ZnCl₂2,0.04 g Na2MoO4-2H2O,0.1 g FeCl₃3-6H2O 和 0.4 g 的 CuSO4-5H20 至 1 L 的蒸馏水。
- 配制盐溶液时,加入16 g KH2PO4,4 g Na2SO4,8 g KCl,2 g MgSO₄4,1 g CaCl2,将8 mL矿物溶液加入1 L蒸馏水中。
- 为制备不含氮源的最低限度培养基 U. maydis FB2 (a2b2) 根据 Holliday 的方法,将 10 g 葡萄糖和 62.5 mL 盐溶液加入 1 L 蒸馏水中。 等31调节pH至7.0,然后将100 mL培养基分装于250 mL锥形瓶中并灭菌。在15 psi(1.05 kg/cm²)条件下高压蒸汽灭菌20分钟。2) 进行液体循环或过滤除菌。
- 制备酵母提取物蛋白胨葡萄糖培养基(YPD)时,将 5 g 酵母提取物、2.5 g 蛋白胨和 5 g 葡萄糖加入 1 L 蒸馏水中。分装 100 mL 溶液至 250 mL 三角瓶中并进行灭菌。在 15 psi(1.05 kg/cm²)条件下高压蒸汽灭菌 20 分钟。2) 进行液体循环或滤膜除菌。
2. 培养条件与细胞固定
注意:应尽快固定细胞以保持脂滴(LDs)的结构。固定可在微量离心管中进行。若避免脱水并保留一层薄水,固定后的细胞可在 4 °C 下保存长达一个月。
- 培养 U. maydis 在与研究相关的培养条件下培养细胞。以初始OD开始培养600 0.05(1.15 × 10⁶ 细胞/毫升)。将细胞在 28 °C,180 rpm 振荡培养 24 小时。OD600 对应于 2.3 × 10⁷ cells/mL
- 在选定时间点,取出部分细胞样品。对于 U. maydis 在前8小时内,每2小时吸取5 mL;8小时培养后,每次取2 mL即可。
- 测定每份样品在 600 nm 处的光密度。
- 以 14,000 x g 离心细胞悬液 1 分钟,温度为 4 °C 使用台式离心机离心。弃去上清液。
- 将细胞沉淀重悬于1 mL PBS-3.7%甲醛缓冲液中,在室温下孵育15分钟。
- 孵育后,在4 °C下以14,000 × g离心1分钟 4 °C弃去上清液。
- 用等体积的蒸馏水(1 mL)洗涤细胞沉淀两次。将细胞悬液在14,000 x g离心1分钟,温度为 4 °C每次洗涤步骤后弃去上清液。
- 将细胞沉淀调节至5 OD600 (1.15 × 10⁸ 细胞/毫升)用蒸馏水稀释(公式1)。
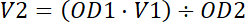 公式 1.
- 保持样品在 4 °C 直至使用为止。
3. 液相荧光恢复实验(LFR)
- 打开分光光度计并启动 SkanIt 软件。点击 NEW SESSION,选择 START,然后选择 Varioskan Lux。在会话树中选择 PROTOCOL,输入荧光波长设置(激发波长 485 nm/发射波长 510 nm;光密度 600 nm),并选择自动光电倍增管增益。激发带宽选择 12 nm。在光学设置中选择顶部检测(样品激发来自孔板上方)。
- 设置温和且持续的振荡(300 rpm)。选择 RUN PLATE OUT,并选择 PAUSE UNTIL THE USER ACTION(用于在孔中添加样品的时间)。重复该程序五次。点击 SAVE,并在 SESSION NAME FIELD 中为本次会话命名。该程序现已准备好用于样品分析。
- 向 96 孔黑色透明底板的每个孔中加入 200 µL BODIPY 5 µM-淬灭溶液。
- 将孔板放入分光光度计腔室内,在 30 °C 下孵育 5 分钟。从此步骤开始,应尽可能避免孔板暴露于光线下。
- 点击 START 按钮,读取空白孔的荧光值(激发波长 485/发射波长 510)和 OD600 。
- 在暂停期间,向各孔中加入 5 µL 甲醛固定的细胞悬液。使用移液器小心混匀样品。将孔板放回分光光度计中,点击 CONTINUE。随后,样品将按照上述设计的程序进行处理。
- 连续重复三次,每次加入 5 µL 细胞悬液。确保细胞未发生沉淀。(图 1)。
4. LD 指数的计算
- 对于微孔板中的每个样品,绘制荧光值和吸光度随每次添加体积变化的曲线图(包括空白对照共5个数据点)。本研究中使用 Microsoft Excel 软件进行计算。绘制数据时,将体积、荧光值和吸光度数据分别输入工作表的第一、第二和第三列中。然后用光标选中全部数据,点击“插入”并选择“散点图”(XY)。
- 在图表中选择每条曲线的数据点,并插入相应的趋势线,同时勾选显示公式选项。根据公式 2 记录两条直线的斜率值:
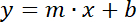 公式 2
其中 y = 荧光值或光密度,x = 样品体积(0、5、10、15、20 µL),m = 荧光值或光密度曲线的斜率,b = y 轴截距。 - 将荧光曲线的斜率除以光密度曲线的斜率,得到 LD 指数(公式 3)。
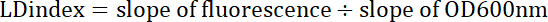 公式 3
LD 指数对应于荧光值与光密度斜率的商。
5. 数据质量分析
- 计算每条直线的相关系数:单击函数向导(fx),选择CORREL。如果 r < 0.9,则舍弃数据并重复测量;如果 r ≥ 0.9,则测量结果可靠。
访问受限。请登录或开始试用以查看此内容。
结果
LFR,以BODIPY 493/503作为荧光探针,是一种可靠且简便的方法,用于研究脂滴在活细胞中动态积累的过程 U. maydis 无论培养条件如何。当细胞在YPD培养基中培养时,脂滴(LD)指数在对数生长期增加,随后在稳定期下降(图 2A)。相比之下,在氮饥饿条件下培养的细胞中,无论是对数期还是稳定期,脂滴指数(LD index)均呈现持续上升的趋势(图 2B)。由于两种培养物的起始光密度相同(细胞数量相近),结果表明LFR检测法具有高灵敏度,可检测脂质含量的微小变化图2)。该方法的灵敏度通过共聚焦显微镜得到验证:YPD培养的细胞在整个细胞内含有许多小脂滴,而在氮饥饿条件下则显著产生大脂滴,通常每个细胞含有4-5个脂滴,(图2,右侧面板A和B)。由于脂滴指数并非中性脂质含量的绝对值,因此应构建脂滴指数与三酰甘油含量...
访问受限。请登录或开始试用以查看此内容。
讨论
LFR 是一种新方法,最初被应用于研究 S. cerevisiae 中的脂质代谢,随后成功应用于 U. maydis20,21。尽管脂滴指数(LD index)不能提供细胞中积累的三酰甘油(TAGs)的绝对数值,但它能快速反映细胞的脂质含量,且在比较两种或多种实验条件下的脂滴指数时,数据解读十分直观。BODIPY 493/503 对中性脂质具有高度特异性,而中性脂质是脂滴的主要成分;其发射光谱较窄,因此在共聚焦显微镜观察细胞时,便于同时检测来自 Mito-tracker 或 CMAC blue 等其他染料的信号26。与许多荧光分子一样,BODIPY 493/503 在荧光显微镜实验中易受光漂白影响,但通过在光照过程中添加抗光漂白试剂,可减轻这一现象27。综上所述,BODIPY 493/503 可广泛用于多种细胞中,以研究中性脂质的积累与动员过程21
访问受限。请登录或开始试用以查看此内容。
致谢
本工作得到了以下资助:墨西哥国立理工学院-研究生科研秘书处(IPN-SIP-20170864)、墨西哥国立自治大学技术创新与研究项目支持计划(PAPIIT IN222117)、墨西哥国家科学技术理事会(CONACyT 254904-JPP 和 256520-GGS),以及里约热内卢研究资助基金会(FAPERJ-Cientistas do Nosso Estado: E 26/103.353/2011)。我们感谢药学学士奥斯卡·伊万·卢克尼奥·博卡尔多(QFB. Oscar Iván Luqueño Bocardo)提供的示意图概览。感谢米格尔·塔皮亚·罗德里格斯博士(Dr. Miguel Tapia Rodríguez)在脂滴共聚焦显微镜分析中提供的宝贵帮助。 我们谨向布鲁诺·博扎克尔·莫赖斯博士(Dr. Bruno Bozaquel Morais)致以谢意,感谢他在建立酿酒酵母(S. cerevisiae)实验技术方面所做的开创性工作,我们对该技术进行了改进并应用于玉米黑粉菌(U. maydis)的研究。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 分光光度计 | Varioskan Lux 多功能微孔板读板仪 | D5879 | 滤光片 493/503 或单色器检测器 |
| Costar 板 | Corning 公司 | 3615 | 96 孔黑壁透明底板 |
| Costar 板 | Corning 公司 | 3598 | 96 孔 Costar 细胞培养板 |
| BODIPY 493/503 | Invitrogen/Thermofisher | D3922 | 4,4-二氟-1,3,5,7,8-五甲基-4-硼-3a,4a-二氮杂-s-茚并 |
| 甲醛溶液 | Sigma Aldrich | 252549 | ACS 级试剂,37 wt% 水溶液,含 10-15% 甲醇以防止聚合 |
| 碘化钾 | Sigma Aldrich | 60399 | BioUltra,≥ 99.5% (AT) |
| FB2 玉米黑粉菌(Ustilago maydis) | ATCC | 201384 | 担子菌门-酵母 |
| 氯化钠 | Sigma Aldrich | 746398 | ACS 级试剂,无机盐 |
| 磷酸二氢钾 | Sigma Aldrich | P0662 | ACS 级试剂 |
| 酵母提取物(Select Yeast Extract) | Sigma Aldrich | Y100 | 用于培养基的氨基酸、肽类、水溶性维生素和碳水化合物的混合物 |
| N-Z 酪蛋白胨 Plus | Sigma Aldrich | N4642 | 牛乳酪蛋白酶解水解物 |
| 葡萄糖 | Sigma Aldrich | G-8270 | D (+) 葡萄糖 |
| 锥形摇瓶 | Pirex | CLS4450250-6EA | 硼硅酸盐玻璃 |
| 摇床 | SEV México | INO650V-7 | 轨道摇床 |
| 台式离心机 | Eppendorf | 5415C | 离心机 |
| 微量离心管 | Sigma Aldrich | Z606340 | Eppendorf |
| 移液器吸头 | Axygen Scientific | T-200-Y | 带斜面末端的通用移液器吸头,200 微升,非无菌 |
| mLine 多通道移液器 | Biohit | 725130 | 8 通道,体积范围 5–100 µL |
参考文献
- Guo, Y., Cordes, K. R., Farese, R. V., Walther, T. C. Lipid droplets at a glance. Journal of Cell Science. 122 (6), 749-752 (2009).
- Welte, M. A. Expanding roles for lipid droplets. Current Biology. 25 (11), R470-R481 (2015).
- Sestric, R., Munch, G., Cicek, N., Sparling, R., Levin, D. B. Growth and neutral lipid synthesis by Yarrowia lipolytica on various carbon substrates under nutrient-sufficient and nutrient-limited conditions. Bioresource Technology. 164, 41-46 (2014).
- Raimondi, S., et al. Getting lipids from glycerol: new perspectives on biotechnological exploitation of Candida freyschussii. Microbial Cell Factories. 13, 83(2014).
- Cescut, J., Fillaudeau, L., Molina-Jouve, C., Uribelarrea, J. L. Carbon accumulation in Rhodotorula glutinis induced by nitrogen limitation. Biotechnology for Biofuels. 7, 164(2014).
- Galafassi, S., et al. Lipid production for second generation biodiesel by the oleaginous yeast Rhodotorula graminis. Bioresource Technology. 111, 398-403 (2012).
- Kot, A. M., Blazejak, S., Kurcz, A., Gientka, I., Kieliszek, M. Rhodotorula glutinis-potential source of lipids, carotenoids, and enzymes for use in industries. Applied Microbiology and Biotechnology. 100 (14), 6103-6117 (2016).
- Rakicka, M., Lazar, Z., Dulermo, T., Fickers, P., Nicaud, J. M. Lipid production by the oleaginous yeast Yarrowia lipolytica using industrial by-products under different culture conditions. Biotechnology for Biofuels. 8, (2015).
- Zhu, Z. W., et al. Dynamics of the Lipid Droplet Proteome of the Oleaginous Yeast Rhodosporidium toruloides. Eukaryotic Cell. 14 (3), 252-264 (2015).
- Kolouchova, I., Mat'atkova, O., Sigler, K., Masak, J., Rezanka, T. Production of Palmitoleic and Linoleic Acid in Oleaginous and Nonoleaginous Yeast Biomass. International Journal of Analytical Chemistry. , (2016).
- Radulovic, M., et al. The emergence of lipid droplets in yeast: current status and experimental approaches. Current Genetics. 59 (4), 231-242 (2013).
- Takahashi, Y., et al. Perilipin-Mediated Lipid Droplet Formation in Adipocytes Promotes Sterol Regulatory Element-Binding Protein-1 Processing and Triacylglyceride Accumulation. Plos One. 8 (5), e64605(2013).
- Thiam, A. R., Farese Jr, R. V., Walther, T. C. The biophysics and cell biology of lipid droplets. Nature Reviews Molecular Cell Biology. 14 (12), 775-786 (2013).
- Penno, A., Hackenbroich, G., Thiele, C. Phospholipids and lipid droplets. Biochimica et Biophysica Acta. 1831 (3), 589-594 (2013).
- Ageitos, J. M., Vallejo, J. A., Veiga-Crespo, P., Villa, T. G. Oily yeasts as oleaginous cell factories. Applied Microbiology and Biotechnology. 90 (4), 1219-1227 (2011).
- Athenstaedt, K., Daum, G. The life cycle of neutral lipids: synthesis, storage and degradation. Cellular and Molecular Life Sciences. 63 (12), 1355-1369 (2006).
- Marshall, L. L., Stimpson, S. E., Hyland, R., Coorssen, J. R., Myers, S. J. Increased lipid droplet accumulation associated with a peripheral sensory neuropathy. Journal of Biological Chemistry. 7 (2), 67-76 (2014).
- Filipe, A., McLauchlan, J. Hepatitis C virus and lipid droplets: finding a niche. Trends in Molecular Medicine. 21 (1), 34-42 (2015).
- Greenberg, A. S., et al. The role of lipid droplets in metabolic disease in rodents and humans. Journal of Clinical Investigation. 121 (6), 2102-2110 (2011).
- Aguilar, L. R., et al. Lipid droplets accumulation and other biochemical changes induced in the fungal pathogen Ustilago maydis under nitrogen-starvation. Archives of Microbiology. , (2017).
- Bozaquel-Morais, B. L., Madeira, J. B., Maya-Monteiro, C. M., Masuda, C. A., Montero-Lomeli, M. A new fluorescence-based method identifies protein phosphatases regulating lipid droplet metabolism. PLoS One. 5 (10), e13692(2010).
- Madeira, J. B., et al. TORC1 Inhibition Induces Lipid Droplet Replenishment in Yeast. Molecular and Cellular Biology. 35 (4), 737-746 (2015).
- Maya-Monteiro, C. M., et al. Leptin induces macrophage lipid body formation by a phosphatidylinositol 3-kinase- and mammalian target of rapamycin-dependent mechanism. Journal of Biological Chemistry. 283 (4), 2203-2210 (2008).
- Listenberger, L. L., Brown, D. A. Current Protocols in Cell Biology. , John Wiley & Sons, Inc. (2001).
- Jump, D. B., Torres-Gonzalez, M., Olson, L. K. Soraphen A, an inhibitor of acetyl CoA carboxylase activity, interferes with fatty acid elongation. Biochemical Pharmacology. 81 (5), 649-660 (2011).
- Hobro, A. J., Smith, N. I. An evaluation of fixation methods: Spatial and compositional cellular changes observed by Raman imaging. Vibrational Spectroscopy. 91, 31-45 (2017).
- Chen, Y. T., Wan, L., Zhang, D. P., Bian, Y. Z., Jiang, J. Z. Modulation of the spectroscopic property of Bodipy derivates through tuning the molecular configuration. Photochemical & Photobiological Sciences. 10 (6), 1030-1038 (2011).
- Pagac, M., et al. SEIPIN Regulates Lipid Droplet Expansion and Adipocyte Development by Modulating the Activity of Glycerol-3-phosphate Acyltransferase. Cell Reports. 17 (6), 1546-1559 (2016).
- Qiu, B., Simon, M. C. BODIPY 493/503 Staining of Neutral Lipid Droplets for Microscopy and Quantification by Flow Cytometry. Bio-protocol. 6 (17), (2016).
- Rumin, J., et al. The use of fluorescent Nile red and BODIPY for lipid measurement in microalgae. Biotechnology for Biofuels. 8, 42(2015).
- Holliday, R. Ustilago maydis. Handbook of genetics. King, R. , Plenum. New York. 575-595 (1974).
访问受限。请登录或开始试用以查看此内容。
重印与许可
