本文介绍了一种通过从脂肪组织中分离免疫细胞,并随后使用流式细胞术进行分析,以检测脂肪组织中免疫细胞成分的方法。
方法文章
利用流式细胞术对人体脂肪组织中的免疫细胞进行表征
* These authors contributed equally
本文内容
摘要
摘要
免疫细胞浸润皮下和内脏脂肪组织(AT)沉积物可导致低度炎症,进而促进肥胖相关并发症(如2型糖尿病)的发生。为了对人脂肪组织沉积物中的免疫细胞亚群进行定性和定量研究,我们建立了一种流式细胞术分析方法。通过胶原酶消化从皮下和内脏AT活检样本中分离出含有免疫细胞的基质血管组分(SVF),离心后去除脂肪细胞。SVF细胞经多种膜表面标志物染色,以区分不同的免疫细胞亚群,随后采用流式细胞术进行分析。利用该方法,可检测并定量促炎性和抗炎性巨噬细胞亚群、树突状细胞(DCs)、B细胞、CD4+ 和 CD8+ T细胞以及NK细胞。该方法可提供关于脂肪组织中免疫细胞的详细信息,包括各特定亚群的数量。由于目前有大量可用的荧光标记抗体,本流式细胞术方案可调整用于检测其他多种细胞表面或细胞内感兴趣的标志物。
引言
肥胖的特征是脂肪组织(AT)出现低度炎症1,并在内脏和皮下脂肪组织(vAT、sAT)中伴有促炎性免疫细胞的浸润。促炎性免疫细胞在vAT中的积聚会导致胰岛素抵抗,而胰岛素抵抗是2型糖尿病发生的主要风险因素2。在肥胖个体的脂肪组织中可发现先天性和适应性免疫系统的多种免疫细胞,例如巨噬细胞、肥大细胞、中性粒细胞、CD4+ 和 CD8+ T细胞以及B细胞3,4,5,6,7。这些免疫细胞与内皮细胞、基质细胞、脂肪细胞前体、成纤维细胞和壁细胞共同构成基质血管组分(SVF)8,是脂肪组织中促炎性物质的主要来源9。
脂肪组织(AT)的炎症状态通常通过多种技术进行研究,包括蛋白质印迹法(Western blot)10、定量PCR(qPCR)11以及免疫组织化学11。然而,使用这些技术时通常以整个脂肪组织,包括脂肪细胞和基质血管组分(SVF)作为样本,这使得难以确定脂肪组织中免疫细胞的数量及其亚群组成。免疫细胞具有多种细胞标志物用于定义和分类,例如巨噬细胞。巨噬细胞在功能和细胞表面标志物表达方面均表现出显著的异质性12。因此,它们通常被分为两类巨噬细胞群体:M1型和M2型。M2型巨噬细胞通常被称为替代性活化的巨噬细胞12,13,主要存在于瘦型、代谢正常个体的脂肪组织中14。然而,在肥胖状态下,巨噬细胞会发生表型转换,由M2型向M1型转变。这类经典活化的M1型巨噬细胞表达CD11C12,并在死亡的脂肪细胞周围聚集,形成环状结构(crown-like structures)13。研究表明,脂肪组织中CD11C+巨噬细胞会损害胰岛素作用,并与肥胖人群中的胰岛素抵抗密切相关15。为了鉴定脂肪组织中的M1和M2型巨噬细胞,免疫组织化学是一种可选方法。该技术可提供巨噬细胞在组织中定位的信息,但其局限性在于单次染色所能使用的标志物数量有限,且定量分析较为困难。因此,为了深入研究内脏脂肪组织(vAT)和皮下脂肪组织(sAT)中不同免疫细胞亚群的分布情况,我们建立了一种流式细胞术分析方法。该方法可在一次流式分析中对单个细胞同时使用多种标志物,从而精确界定细胞亚群并统计各亚群在脂肪组织中的数量。
方案
内脏和皮下脂肪组织样本取自参加研究的受试者,该研究已获得比利时哈瑟尔特市杰萨医院和哈瑟尔特大学医学伦理委员会批准,并遵循《赫尔辛基宣言》的规定。
1. 试剂的制备
- 胶原酶溶液
- 将 1 g 胶原酶 I 溶解于 10 mL 磷酸盐缓冲液(PBS,不含钙和镁)中,配制成 100 mg/mL 的储存液。分装为 200 µL 每份,于 -20 °C 保存。
- 将 1 g 胶原酶 XI 溶解于 10 mL PBS 中,配制成 100 mg/mL 的储存液。分装为 200 µL 每份,于 -20 °C 保存。
- 将 10 mg DNase I 溶解于 10 mL PBS 中,配制成 10 mg/mL 的储存液。分装为 180 µL 每份,于 -20 °C 保存。
- 向 10 mL DMEM Ham's F12 培养基中加入 100 µL 胶原酶 I(100 mg/mL)、100 µL 胶原酶 XI(100 mg/mL)和 90 µL DNase I(10 mg/mL)。每次分离前新鲜配制胶原酶溶液。
- 红细胞裂解缓冲液
- 将 0.84 g NH4Cl 溶解于 100 mL 超纯水中。
- 使用前调节 pH 至 7.4。置于玻璃瓶中,4 °C 保存。
- 使用前将红细胞裂解缓冲液置于冰上预冷。
- FACS 缓冲液
- 将 0.5 g 牛血清白蛋白(BSA)溶解于 100 mL PBS 中,得到含 0.5% BSA 的 PBS 溶液。
- 将 65 mg NaN3 溶解于 100 mL 0.5% BSA PBS 溶液中,得到含 10 mM NaN3 的 0.5% BSA PBS 溶液。将溶液置于玻璃瓶中,4 °C 保存。
- 使用前将 FACS 缓冲液置于冰上预冷。
注意:NaN3 具有高毒性。操作 NaN3 时应在通风橱中进行,并佩戴护目镜和手套以确保安全。
- 人 IgG 封闭液
- 将 10 mg 人 IgG 溶解于 10 mL PBS 中,配制成 1 mg/mL 溶液。分装为 100 µL 每份,于 -20 °C 保存。
- 使用前将人 IgG 封闭液置于冰上预冷。
2. 从脂肪组织中分离SVF
- 用手术刀将1 g脂肪组织活检样本切成小块(约± 2 mm2),转移至50 mL离心管(例如,Falcon管)。向每份脂肪组织样本中加入10 mL胶原酶溶液。
注意:将管盖完全关闭后,再反向旋转¼圈。 - 在37 °C水浴中轻轻振荡(60个循环/分钟)孵育60分钟。
- 用200 µM滤膜过滤所得悬液,并将滤液收集至新的50 mL离心管中。在滤膜上方加入7 mL PBS冲洗滤膜,以回收全部细胞。
- 在4 °C下以280 x g离心5分钟。
- 用移液器吸除上层漂浮的脂肪细胞组分,沉淀即为基质血管组分(SVF)。
注意:去除脂肪细胞组分以获得SVF。避免将移液枪头完全浸入样品中,否则只会移除PBS而无法有效去除漂浮的脂肪细胞。 - 将SVF重悬于5 mL PBS中以去除胶原酶,用70 µM滤膜过滤悬液,用5 mL PBS冲洗滤膜,然后在4 °C下以280 x g离心5分钟。
- 弃去上清液,将沉淀重悬于3 mL红细胞裂解缓冲液中。
- 冰上孵育5分钟,孵育结束后加入7 mL PBS。
- 在4 °C下以280 x g离心5分钟。
3. 流式细胞术分析用基质血管组分的染色
- 将细胞沉淀溶于90 µL 4 °C的FACS缓冲液中,加入10 µL浓度为1 mg/mL的人IgG封闭液。将细胞悬液分至96孔V型底板的2个孔中。将板置于冰上,人IgG封闭孵育15分钟。
- 每份样品中加入100 µL FACS缓冲液进行洗涤,于4 °C以280 × g离心5分钟。通过将板一次性平稳倒置的方式弃去上清液,避免敲击板子。
注意:倒置板子时,需用纸巾擦去板子顶部残留的液体,确保彻底去除。 - 按照表1和表2所述,配制用于巨噬细胞和树突状细胞(DC)亚群(FACS panel 1)以及T细胞和B细胞亚群(FACS panel 2)的抗体混合液。表1和表2中所述体积是在优化抗体浓度后确定的,适用于一份vAT或sAT样品。
注意:在FACS panel 1中,可使用CD303和CD141标记物确认CD11C+ CD11Blow细胞为树突状细胞。但建议从该抗体组合中去除这两个标记物,以便加入活/死细胞染色。当panel 1中去除CD303时,FACS panel 1和panel 2均可与LIVE/DEAD可固定红色死细胞染色试剂盒联合使用,因为此时PE通道将空出。请按照制造商说明书进行活力染色操作。 - 将沉淀重悬于29.5 µL用于FACS panel 1的抗体混合液,或23 µL用于FACS panel 2的抗体混合液中。于冰上避光孵育30分钟。
- 每孔加入150 µL FACS缓冲液,重悬细胞沉淀以进行第二次洗涤步骤。于4 °C以280 × g离心5分钟。通过倒置板子的方式弃去上清液。
- 每孔加入150 µL 1%甲醛溶液以固定细胞。使用P200移液器将每孔中的细胞悬液转移至相应的FACS管中。将FACS管置于4 °C避光保存,最多可保存7天。
注意:也可直接进行检测。此时每孔加入150 µL FACS缓冲液代替1%甲醛溶液,用P200移液器将细胞转移至相应的FACS管中,随后立即分析细胞。
警告:甲醛具有高毒性。配制甲醛溶液时必须在通风橱内操作,避免吸入,并佩戴手套和护目镜以确保安全。
4. 流式细胞术分析
- 首次测量前,使用未染色的阴性对照设置前向散射(FSC)和侧向散射(SSC)。根据仪器制造商的说明调整流式细胞仪的电压,确保所有目标细胞群均能在FSC和SSC图中清晰可见,并能区分碎片与活细胞。
- 按照制造商的方案,使用抗体捕获微球进行多色补偿分析。
- 制备荧光减一(FMO)对照:配制完整的抗体混合物,但每次省略其中一种抗体。针对每种抗体均进行此操作,为FACS panel 1创建8种抗体混合物,为FACS panel 2创建6种抗体混合物。这些FMO抗体混合物将用于按照本方案前述步骤对SVF进行染色。
- 测量所有FMO对照,并基于FMO对照设定设门策略。利用FMO对照检测细胞可能存在的自发荧光。
注意:通过从混合物中去除一种抗体,该通道中检测到的任何荧光信号均为背景信号或自发荧光信号。因此,通过比较不同FMO对照的FACS结果,可在特定细胞群上准确设门,确保设门依据为真正的阳性信号,而非自发荧光。 - 将FACS管在800 rpm下涡旋振荡,然后放入流式细胞仪并开始测量。
注意:建议活细胞门内的事件数至少达到50,000个,以确保每个亚群均有足够数量的细胞被检测。
结果
使用流式细胞术检测从vAT和sAT中分离的SVF。流式细胞术检测生成的图谱可根据细胞标志物显示不同的细胞群体(图1A 和 1B)。首先,通过绘制前向散射宽度(FSC-W)与前向散射面积(FSC-A),可通过设门选择FSC-W较低的单细胞,从而在后续分析中排除细胞聚集体。接着,根据FSC-A和侧向散射面积(SSC-A)分别选择合适大小和复杂度的细胞,以筛选活细胞并排除细胞碎片。死亡细胞体积较小,因此在FSC-A较低处表现为一个独立的细胞群。随后,利用泛白细胞标志物CD45筛选免疫细胞(图1和图2,图1A)。为分析巨噬细胞,使用针对T细胞(CD3)、B细胞(CD19)、中性粒细胞(CD66b+ CD11b+)和NK细胞(CD56)的特异性抗体(但标记相同的荧光染料)将这些其他免疫细胞从后续分析中排除。对剩余细胞进一步根据CD11b和CD11c的表达情况进行细分,得到以下细胞群:CD11b+ CD11c+ 巨噬细胞、CD11b+ CD11c- 巨噬细胞以及CD11blow/- CD11c+ 树突状细胞(DCs)(FACS图谱1,图1B)。通过检测平均荧光强度(MFI),可定量分析CD11b+ CD11c+ 巨噬细胞和CD11blow/- CD11c+ DCs上CD303(浆细胞样DC标志物)和CD141(DC标志物)的表达水平。这两种标志物在CD11blow/- CD11c+ 细胞中的表达均更高,证实CD11blow/- CD11c+ 细胞为树突状细胞(图1C)。
CD45+ 细胞(图1A)通过 CD3 和 CD19 分别划分为 T 细胞和 B 细胞。T 细胞进一步细分为辅助性 T 细胞(CD4+)和细胞毒性 T 细胞(CD8+)。最后,使用标记物 CD56 对 CD3-CD19- 细胞进行分析,以定量自然杀伤细胞(NK 细胞)(FACS 第2组,图1D)。各门控中的细胞数量被定量,可用于计算该细胞类型占所有活细胞的百分比(表3)。
可针对每位受试者计算活细胞百分比,进而计算出各组(例如瘦型或肥胖型男性)中所有受试者的平均值,以显示特定免疫细胞的丰度。 即,促炎性CD11b+ CD11c+ 内脏脂肪组织中的巨噬细胞(图2).
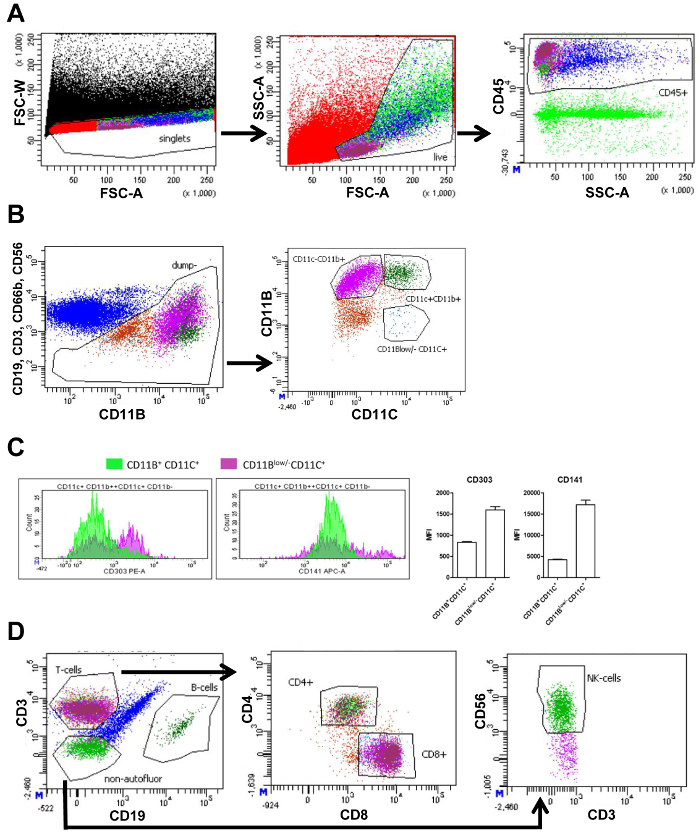
图1. 内脏脂肪组织的FACS设门策略。(A)所有事件(黑色)的前向散射宽度信号(FSC-W)与前向散射面积信号(FSC-A)流式图,其中设门选择单个细胞(红色);随后为基于FSC-A和侧向散射面积信号(SSC-A)的流式图,设门选择活细胞(浅绿色)。下一图显示SSC-A与CD45荧光强度的关系,设门选择所有CD45+(免疫)细胞(蓝色)。(B)CD19、CD3、CD66b和CD56荧光强度相对于CD11b荧光强度的流式图,并设门选择CD19、CD3、CD66b和CD56均为阴性的细胞(棕色),用于进一步分群。下一图基于CD11b和CD11c荧光强度进行进一步细分。图中显示包含CD11b+ CD11c+ 巨噬细胞(深绿色)、CD11b+ CD11c- 巨噬细胞(紫色)以及CD11blow/- CD11c+ 树突状细胞(蓝色)的设门。(C)CD11b+、CD11c+ 或 CD11blow/- CD11c+ 细胞数量(Y轴)及其CD303和CD141荧光强度水平(X轴)的分布,以及相应的平均荧光强度(MFI)定量结果。(D)基于CD3和CD19荧光强度显示先前CD45+ 群体(蓝色)的流式图,设门选择T细胞(洋红色)、B细胞(深绿色)以及CD3和CD19双阴性且无自发荧光的细胞(绿色)。后续流式图基于CD4和CD8荧光强度,设门选择CD4+(浅绿色)和CD8+(洋红色)T细胞。皮下脂肪组织采用相同的设门策略。皮下脂肪组织采用相同的设门策略。本图经Wouters et al.16 修改。 请点击此处查看该图的放大版本。

图 2. 肥胖型 vAT 含有更多促炎性巨噬细胞。 瘦型与肥胖型男性 vAT 中 CD11b+CD11c+ 巨噬细胞占所有活细胞的百分比。所有数据均以均值 ± 标准误表示;瘦型组 n = 20,肥胖型组 n = 31。**p ≤ 0.01,与瘦型组相比。请点击此处查看该图的放大版本。
| 靶标 | 定义靶标 | 表达于 | 荧光染料 | 用量 | 克隆号 |
| CD11B | 髓系整合素标志物 | 粒细胞、单核细胞/巨噬细胞、树突状细胞低表达以及自然杀伤细胞 | BV421 | 2.5 µL | ICRF44 |
| CD19 | 常见B细胞抗原 | 从原B细胞到母细胞样B细胞及浆细胞样B细胞的B细胞发育阶段 | Fitc | 3 µL | HIB19 |
| CD3 | 常见T细胞抗原 | T淋巴细胞、自然杀伤T细胞和胸腺细胞 | Fitc | 3 µL | UCHT1 |
| CD66B | 癌胚抗原(CEA)样糖蛋白家族成员 | 粒细胞 | Fitc | 5 µL | G10F5 |
| CD56 | 高度糖基化的黏附蛋白 | 自然杀伤细胞和自然杀伤T细胞 | Fitc | 5 µL | B159 |
| CD303 | II型跨膜糖蛋白 | 浆细胞样树突状细胞 | PE | 1 µL | 201A |
| CD141 | 血栓调节蛋白 | 单核细胞/巨噬细胞低表达、树突状细胞的一个亚群 | APC | 1 µL | M80 |
| CD11C | I型跨膜糖蛋白;整合素αx | 单核细胞/巨噬细胞、树突状细胞、粒细胞、自然杀伤细胞、部分B细胞和T细胞亚群 | APC-Cy7 | 0.5 µL | Bu15 |
| CD45 | 共同白细胞抗原 | 所有人白细胞,包括淋巴细胞、单核细胞、粒细胞、嗜酸性粒细胞和胸腺细胞 | PE-Cy7 | 1 µL | HI30 |
| FACS缓冲液 | - | - | - | 7.5 µl | - |
表1. 用于FACS分析面板1的抗体混合物,以鉴定巨噬细胞亚群和树突状细胞群体。 所述抗体用量适用于一个样本的分析。
| 靶标 | 定义靶标 | 表达于 | 荧光染料 | 用量 | 克隆号 |
| CD19 | 常见B细胞抗原 | 从原B细胞到母细胞样B细胞及浆细胞样B细胞的B细胞发育过程 | BV421 | 1 µL | HIB19 |
| CD3 | 常见T细胞抗原 | T淋巴细胞、自然杀伤T细胞和胸腺细胞 | V500 | 3 µL | UCHT1 |
| CD56 | 高度糖基化的黏附蛋白 | 自然杀伤细胞和自然杀伤T细胞 | APC | 5 µL | HCD56 |
| CD4 | 免疫球蛋白超家族,I型跨膜糖蛋白 | 辅助性T细胞、胸腺细胞、单核细胞/巨噬细胞、II型自然杀伤T细胞 | PerCP-Cy5.5 | 1 µL | RPA-T4 |
| CD8 | 由二硫键连接的双分子复合物的α亚基 | 细胞毒性T细胞、胸腺细胞、部分自然杀伤细胞亚群 | APC-H7 | 2 µL | SK1 |
| CD45 | 常见白细胞抗原 | 所有人白细胞,包括淋巴细胞、单核细胞、粒细胞、嗜酸性粒细胞和胸腺细胞 | PE-Cy7 | 1 µL | HI30 |
| FACS缓冲液 | - | - | - | 10 µl | - |
表2. 用于FACS 面板2的抗体混合物,以鉴定T细胞和B细胞群体。 所述抗体用量适用于一个样本的分析。
| 巨噬细胞检测面板 | ||
| 门名称 | # 细胞 | 活细胞百分比 |
| 单细胞 | 183054 | |
| 活体 | 10477 | 100 |
| CD45 | 4100 | 39.13 |
| 倾倒- | 771 | 7.36 |
| CD11C- CD11B+ | 430 | 4.1 |
| CD11C+ CD11B+ | 104 | 0.99 |
| CD11C+ CD11B低/- | 15 | 0.14 |
| T细胞、B细胞、NK细胞检测 panel | ||
| 门名称 | #细胞 | 活细胞百分比 |
| 单细胞 | 34616 | |
| 活体 | 3728 | 100 |
| CD45+ | 1589 | 42.62 |
| NK细胞 | 29 | 0.78 |
| CD3+ | 953 | 25.56 |
| CD4+ | 601 | 16.12 |
| CD8+ | 328 | 8.8 |
| CD19+ | 20 | 0.54 |
表3. 不同细胞类型在vAT中的免疫细胞丰度。 各门控范围内的细胞数量,以及基于活细胞总数计算的不同细胞类型所占百分比。
讨论
这些方法描述了如何从内脏脂肪组织(vAT)和皮下脂肪组织(sAT)中分离出基质血管组分(SVF),并定量分析这些组织中免疫细胞的相对含量。此外,这些方法还说明了如何检测特定细胞类型上标志物的表达水平。
组织免疫细胞的流式细胞术是一种用于表征组织免疫状态的强有力技术。对组织免疫细胞进行定量分析具有多种应用。如结果部分所述,可以比较不同患者组之间特定免疫细胞的存在情况例如,瘦型与肥胖型)。此外,通过同时对相同患者的血液进行流式细胞术分析,还可研究循环细胞与组织细胞之间的关联。利用该应用,我们能够确定特定的循环单核细胞亚群与促炎性CD11C+ 脂肪组织巨噬细胞16.
对所述实验方案进行调整可扩展其应用范围,因为目前有大量可用的荧光标记抗体,使流式细胞术具有很高的灵活性。通过使用不同的抗体,几乎可以区分所有类型的细胞,并可检测多种标志物的表达。此外,通过透化细胞膜,可使荧光抗体进入细胞内与靶标结合,从而实现细胞内标志物的染色。这些特性使得能够更精细地区分高度异质性的巨噬细胞群体,而不仅限于过于简化的M1和M2巨噬细胞亚型。除了表面标志物的检测外,还可通过细胞内染色检测蛋白质(例如,细胞因子),以获取有关巨噬细胞功能的信息。另外,还可使用Ki67等增殖标志物来定量分析细胞增殖速率。如文中所述,巨噬细胞与树突状细胞(DCs)的区分基于DC标志物的MFI水平。可将通用巨噬细胞标志物(如CD68)纳入巨噬细胞检测组合(FACS panel 1)。然而,CD68需要进行细胞内染色,这要求对细胞膜进行透化处理,操作上不够理想,并会延长实验流程。其他巨噬细胞标志物为亚群特异性标志物,如CD163和CD206,或CD11c,后者已包含在本文所展示的巨噬细胞检测组合中。
在我们的FACS检测方案中,未包含用于区分活细胞与死细胞的标记物,而加入此类标记物是更理想的做法,因为它能比仅使用FSC和SSC更准确地排除死细胞。常用的细胞活性染料包括DNA染色类的碘化丙啶(PI)或4',6-二脒基-2-苯基吲哚(DAPI),以及可与游离胺反应的染料,例如LIVE/DEAD可固定死细胞染色试剂盒,该试剂盒提供多种荧光颜色。然而,在细胞固定时不能使用PI和DAPI。如本方案所述,LIVE/DEAD可固定红色死细胞活性染色可整合至两个检测方案中,且不会影响整体的FACS设门策略。
此外,数据以活细胞百分比表示,意味着所有数据均为相对值。只有将确切且已知数量的细胞输入流式细胞仪,才能确定每种细胞类型的精确数量。在使用计数板对基质血管组分(SVF)中的细胞进行计数后,可估算出大致的细胞数量。然而,该数值需根据用于分离SVF的活检组织量进行校正。但在比较瘦型与肥胖型脂肪组织(AT)时,这种方法存在局限性。相同质量的肥胖型AT所含脂肪细胞较少,因为这些细胞富含脂质并显著增大。若以每克AT或每个脂肪细胞中的免疫细胞数量来表示,则可能导致对免疫细胞数量的低估。
在人体研究中,患者的纳入通常需要较长时间,因此实验操作流程的标准化显得尤为重要。为了在不同患者之间比较流式细胞术数据,有多种可选方案。如本方案所述,可在检测前对细胞进行固定,从而实现同一天内对多个样本进行分析。另一种方法是,在染色前将基质血管组分(SVF)冷冻保存,这可确保所有样本的染色过程保持一致,但可能会影响细胞的活力。此外,本研究还采用了荧光微球来设置补偿参数,并每两周使用细胞仪质控微球以标准化细胞仪的每日检测结果。当研究涉及长时间跨度的样本检测时,最后一种方法最为高效。
流式细胞术普遍存在的一个限制因素是荧光的使用。由于发射光谱的重叠,可同时检测的荧光标记数量受到限制。然而,通过合理的FACS panel设计,并对每份vAT或sAT样本使用多种抗体混合物,如本方案所述,这一问题可以得到克服。FACS panel设计中的一个重要环节是FMO对照的设置。通过在panel中排除某一种抗体并使用其余所有抗体,可在比较FMO与完整panel时评估潜在的自发荧光水平。这有助于对细胞群进行准确设门,因此在建立新的FACS panel时应执行这些步骤。此外,新一代FACS仪器可检测多达50个参数,从而实现对单个细胞多种特征的同时检测。与荧光相关的另一个问题是细胞的自发荧光,尤其是巨噬细胞。当使用FACS激光(主要为488 nm波长)激发细胞后,这些细胞会发出荧光信号(主要为<640 nm),该信号可能与抗体标记的发射光谱发生重叠17,18。为解决此问题,应检测未染色细胞,以确定每个通道中的自发荧光水平。基于此信息,应选择信号强度高于自发荧光信号的荧光染料。在确定细胞群的设门策略时,必须考虑这种自发荧光背景信号。因此,通过应用本方案并结合合理的FACS panel设计,可深入表征巨噬细胞亚型。新的脂肪组织巨噬细胞亚群及其功能可被鉴定和描述。
披露
作者声明无利益冲突。
致谢
我们感谢荷兰马斯特里赫特大学的 J. van de Gaar 和 M. Vroomen 提供的技术支持。此外,我们感谢 K. Verboven、D. Hansen、J. Jocken 和 E. Blaak 提供用于建立本方案及后续实验的血液和组织活检样本。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 离心 | Hettich Rotanta 460R | 5660 | |
| 杜尔贝科’s 改良伊格尔’s 培养基(DMEM)-Ham’s F12 | Gibco ThermoFisher | 31330-095 | |
| 产气荚膜梭菌来源的胶原酶XI | Sigma Aldrich | C7657-1g | |
| 产气荚膜梭菌来源的胶原酶 I | Sigma Aldrich | C0130-1g | |
| 牛胰脱氧核糖核酸酶 I | Sigma Aldrich | DN25 | |
| NH4Cl | 默克 | 1.01145.0500 | |
| 牛血清白蛋白 | Sigma Aldrich | A4503-100 | |
| NaN3 | 默克 | 1.06688.0100 | |
| 200 µM 型注射器滤器 | BD 生物科学 | 340613 | |
| 70 µM滤光片 | Greiner Bio-one | 542070 | |
| Fc阻断剂 / 人IgG | Sigma Aldrich | 14506 | |
| 甲醛 | 默克 | 1.04003.2500 | |
| CD11b-BV421 | Biolegend | 301324 | |
| CD19-Fitc | BD 生物科学 | 555412 | |
| CD3-Fitc | BD 生物科学 | 561807 | |
| CD66b-Fitc | BD 生物科学 | 555724 | |
| CD56-Fitc | BD 生物科学 | 562794 | |
| CD11c-APC-Cy7 | Biolegend | 337218 | |
| CD45-PE-Cy7 | BD 生物科学 | 557748 | |
| CD19-BV421 | Biolegend | 302234 | |
| CD3-V500 | BD 生物科学 | 561416 | |
| CD56-APC | Biolegend | 318310 | |
| CD4-PerCP-Cy5.5 | Biolegend | 300528 | |
| CD8-APC-H7 | BD 生物科学 | 641400 | |
| CD303-PE | Biolegend | 354204 | |
| CD141-APC | Biolegend | 344106 | |
| FACS-Canto II | BD 生物科学 | ||
| 96 孔V型板 | Greiner Bio-one | 651101 | |
| PBS,pH 7.4 | Gibco ThermoFisher | 10010023 | |
| FACS 管 5 mL 聚苯乙烯圆底管 | 康宁 | 352052 | |
| 人血清中的IgG | Sigma Aldrich | I4506 | |
| 抗大鼠Ig, κ阴性对照补偿微粒套装 | BD 生物科学 | 552844 | |
| 抗小鼠Ig, κ阴性对照补偿微粒套装 | BD 生物科学 | 552843 | |
| LIVE/DEAD 可固定红色死细胞染色试剂盒 | 赛默飞世尔科技 | L23102 | |
| IKA MS 3 基础型摇床 | Sigma Aldrich | Z645028-1EA |
参考文献
- McNelis, J. C., Olefsky, J. M. Macrophages, immunity, and metabolic disease. Immunity. 41 (1), 36-48 (2014).
- Makki, K., Froguel, P., Wolowczuk, I. Adipose tissue in obesity-related inflammation and insulin resistance: cells, cytokines, and chemokines. ISRN Inflamm. 2013, 139239(2013).
- DeFuria, J., et al. B cells promote inflammation in obesity and type 2 diabetes through regulation of T-cell function and an inflammatory cytokine profile. Proc Natl Acad Sci U S A. 110 (13), 5133-5138 (2013).
- Elgazar-Carmon, V., Rudich, A., Hadad, N., Levy, R. Neutrophils transiently infiltrate intra-abdominal fat early in the course of high-fat feeding. J Lipid Res. 49 (9), 1894-1903 (2008).
- Han, J. M., Levings, M. K. Immune regulation in obesity-associated adipose inflammation. J Immunol. 191 (2), 527-532 (2013).
- Liu, J., et al. Genetic deficiency and pharmacological stabilization of mast cells reduce diet-induced obesity and diabetes in mice. Nat Med. 15 (8), 940-945 (2009).
- Nishimura, S., et al. CD8+ effector T cells contribute to macrophage recruitment and adipose tissue inflammation in obesity. Nat Med. 15 (8), 914-920 (2009).
- Koh, Y. J., et al. Stromal vascular fraction from adipose tissue forms profound vascular network through the dynamic reassembly of blood endothelial cells. Arterioscler Thromb Vasc Biol. 31 (5), 1141-1150 (2011).
- Peinado, J. R., et al. The stromal-vascular fraction of adipose tissue contributes to major differences between subcutaneous and visceral fat depots. Proteomics. 10 (18), 3356-3366 (2010).
- Leggate, M., et al. Determination of inflammatory and prominent proteomic changes in plasma and adipose tissue after high-intensity intermittent training in overweight and obese males. Journal of Applied Physiology. 112 (8), 1353-1360 (2012).
- Divoux, A., et al. Mast cells in human adipose tissue: link with morbid obesity, inflammatory status, and diabetes. J Clin Endocrinol Metab. 97 (9), E1677-E1685 (2012).
- Harford, K. A., Reynolds, C. M., McGillicuddy, F. C., Roche, H. M. Fats, inflammation and insulin resistance: insights to the role of macrophage and T-cell accumulation in adipose tissue. Proc Nutr Soc. 70 (4), 408-417 (2011).
- Lumeng, C. N., Bodzin, J. L., Saltiel, A. R. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 117 (1), 175-184 (2007).
- Morris, D. L., Singer, K., Lumeng, C. N. Adipose tissue macrophages: phenotypic plasticity and diversity in lean and obese states. Curr Opin Clin Nutr Metab Care. 14 (4), 341-346 (2011).
- Wentworth, J. M., et al. Pro-inflammatory CD11c+CD206+ adipose tissue macrophages are associated with insulin resistance in human obesity. Diabetes. 59 (7), 1648-1656 (2010).
- Wouters, K., et al. Circulating classical monocytes are associated with CD11c+ macrophages in human visceral adipose tissue. Sci Rep. 7, 42665(2017).
- Duan, M., et al. Distinct macrophage subpopulations characterize acute infection and chronic inflammatory lung disease. J Immunol. 189 (2), 946-955 (2012).
- Li, F., et al. Autofluorescence contributes to false-positive intracellular Foxp3 staining in macrophages: a lesson learned from flow cytometry. J Immunol Methods. 386 (1-2), 101-107 (2012).
重印与许可
