本方案描述了通过口服途径使果蝇Drosophila melanogaster暴露并感染细菌病原体的方法,以及在肠道感染后检测排出的感染性细菌数量的方法。我们进一步描述了免疫相关突变体对果蝇在口服细菌感染后存活率的影响。
本文内容
摘要
摘要
果蝇Drosophila melanogaster是研究感染和先天免疫最成熟的模型系统之一。尽管大多数研究集中于全身性感染,但近年来对肠道免疫能力抵御病原体的机制日益关注,这需要通过口服途径感染果蝇的方法。本文介绍了一种使单只果蝇口服暴露于机会性细菌病原体(Pseudomonas aeruginosa)以及D. melanogaster天然细菌病原体(Pseudomonas entomophila)的实验方案。该方案旨在为雄性和雌性果蝇提供一种可靠的口服感染方法。我们提供了代表性结果,展示存活表型、微生物载量以及细菌排出情况,这些数据对于研究病原体传播异质性具有重要意义。最后,我们证实Dcy突变体(缺乏肠道上皮保护性围食膜基质)和Relish突变体(缺乏功能性免疫缺陷(IMD)信号通路)对细菌性口服感染表现出更高的易感性。因此,本方案描述了一种通过口服途径可靠感染果蝇的方法,可进一步拓展用于研究肠道感染结果及细菌传播中多种遗传和环境因素引起的变异。
引言
果蝇(也称为醋蝇), D. melanogaster被广泛用作研究多种病原体感染与免疫的模式生物1,2这项工作深入揭示了感染所引发的生理后果,并率先解析了宿主针对寄生蜂、细菌、真菌及病毒感染的免疫应答背后的分子通路。这些知识不仅有助于理解昆虫及其他无脊椎动物的先天免疫反应,而且由于许多免疫机制在昆虫与哺乳动物之间具有进化上的保守性, 果蝇 也推动了包括人类在内的哺乳动物主要免疫机制的发现3.
目前关于黑腹果蝇(Drosophila)感染与免疫的研究主要集中于全身性感染,采用穿刺或注射等接种方法将病原体直接导入昆虫体内4,5,6。这些方法能够精确控制感染剂量,其优势明确,并已得到大量系统性感染研究的支持。然而,黑腹果蝇(D. melanogaster)许多自然发生的细菌性病原体是通过摄食腐烂有机物而获得的,在此过程中肠道免疫能力在宿主防御中起着重要作用7,8,9,10,11,12,13,14,15。采用全身性感染的实验绕过了这些防御机制,因此提供了与昆虫抵抗自然病原体时完全不同的防御图景。当研究目标是检验有关感染生态学与进化方面的预测时,这一点尤为重要,因为此时使用自然病原体及自然感染途径至关重要16,17。近期研究已表明,病原体的入侵途径显著影响疾病结局18,19,可激活不同的免疫通路20,21,决定遗传性内共生菌的保护效应16,甚至可能在宿主防御机制的进化过程中发挥重要作用17。
采用口服感染途径的另一个原因是,可通过测量口服感染后粪便排泄过程中的细菌排出情况,来研究病原体传播的变异22,23,24。在自然种群中,解析宿主在疾病传播中异质性的来源具有挑战性25,26,但在受控的实验室条件下测量传播的组成部分(如病原体排出),则提供了一种有效的替代方法27。通过在受控的实验条件下,以细菌喂养果蝇,并在多种遗传和环境背景下测量细菌的排出情况,可识别宿主间传播变异的来源。
在此,我们介绍一种通过口服途径感染的方案 D. melanogaster 与细菌病原体作用,并定量其随后的细菌生长和排出情况(图1)。我们在此以两种 假单胞菌 细菌:一种机会性病原体的高毒力菌株 P. aeruginosa (PA14)以及一种毒力较弱的天然果蝇病原菌菌株 P. entomophila假单胞菌是一类常见的革兰氏阴性细菌,具有广泛的宿主范围,可感染昆虫、线虫、植物和脊椎动物,广泛存在于大多数环境中。4,6肠道感染 果蝇 由 P. aeruginosa 和 P. entomophila 导致肠道上皮的病理变化12,13,14,15,28尽管我们主要关注这两种细菌病原体,但原则上,此处描述的方法经过少量修改后可适用于任何感兴趣的细菌病原体。在经口暴露后,我们测定感染后的存活率,并测定每只果蝇体内的微生物载量以及排入环境中具有活性的微生物数量,以菌落形成单位(CFUs)表示。最后,由于肠道免疫能力依赖于上皮屏障和体液免疫反应的共同作用,我们还测定了这些防御机制被破坏的果蝇品系的存活情况。具体而言,我们检测了Drosocrystallin(Dcy 突变体因肠道围食膜减少,此前已被证明对口腔细菌感染更为敏感29我们还测量了Relish(Rel)突变体,该突变体因IMD通路受阻而无法产生针对革兰氏阴性菌的抗菌肽30.
方案
1. 果蝇的维持
- 将果蝇饲养在含有7 mL新鲜配制的Lewis培养基的23 mL塑料小瓶中(培养基配方修改自参考文献)31;1 L 三蒸水2O、6.1 g 琼脂、93.6 g 红糖、68 g 玉米粉、18.7 g 即发干酵母、15 mL Tegosept 抗真菌剂)置于 25 ± 1 °C 的培养箱中,在光周期 12 h:12 h(光照:黑暗)、相对湿度约 60% 的条件下培养。用非吸收性棉塞封住小瓶管口。
- 每隔14天,将20–30只成虫转移到新的食物瓶中,食物表面添加即食干酵母,放置2–3天以允许产卵。在此期间结束后,确认卵已在食物表面可见,随后移除成虫。
注意:这可确保将果蝇保留在试管中形成单世代、年龄匹配的群体。 - 让卵继续发育。
注意:在 25 °C 条件下,成虫从第 11 天开始从蛹中羽化,并持续至第 12–14 天。
2. 准备实验果蝇
- 在75 mL苹果琼脂平板(1 L三蒸水配制)上的群体/胚胎收集笼中收集亲代的卵2O、30 g 琼脂、33 g 蔗糖、330 mL 苹果汁、7 mL Tegosept 抗真菌剂)中加入酵母糊(将干酵母与水混合至类似花生酱的稠度)。在笼内添加吸水后的棉絮以提供湿度。
注意:为避免幼虫饲养密度差异带来的混杂效应,不同试管中的实验果蝇应保持相似的饲养密度。上述步骤旨在避免此类混杂效应。 - 在25 °C、12小时光照:12小时黑暗循环条件下孵育24小时,直至产卵发生。若24小时后卵的数量过少,可延长适应时间。更换苹果琼脂平板,继续让其产卵额外24小时。
- 从种群饲养笼中取出带有虫卵的苹果琼脂培养皿。清除琼脂表面残留的酵母糊及任何死亡的果蝇。
- 将琼脂浸入20 mL 1×磷酸盐缓冲液(PBS)中,用细毛刷轻轻将虫卵从苹果琼脂上刷下。在PBS中悬浮状态下,将虫卵转移至50 mL离心管中,静置5分钟,使虫卵沉降至管底。
注意:大多数卵位于琼脂的外边缘。 - 用剪刀剪去 p1000 滤芯吸头底部 4 mm,用该吸头从 50 mL 离心管底部吸取 1 mL 溶液,转移至 1.5 mL 微离心管中,静置沉降。
注意:用移液器吸取卵子时,快速释放活塞比缓慢释放更有效。 - 用剪刀剪去p20滤芯吸头底部4 mm。将移液器调至所需体积,从微量离心管底部吸取液体。
注意:经过练习,5 µL 体积大约含有 100 个卵。 - 将收集的卵滴加到食物上,并在所需时间内让其发育。
3. 细菌培养
- 培养 P. entomophila 和 P. aeruginosa 菌液时,分别取100 µL冻存菌种接种于10 mL LB(Luria-Bertani)液体培养基中,在30 °C(P. entomophila)和37 °C(P. aeruginosa)条件下以150 rpm振荡培养过夜。确保细菌培养物达到饱和生长期。
- 为确保用于果蝇接种的细菌处于对数生长期并快速增殖,次日早晨将过夜培养物按10%的预接种量(pre-inoculum)转接至新的子培养物中,子培养物体积根据需要确定。
注:口服感染需要高浓度细菌。因此,必须培养足够体积的菌液,以制备满足所需剂量和实验规模的接种液。使用公式 MsVs = MiVi 计算所需子培养物体积,其中 M 表示在600 nm处测得的光密度值(OD600),V 表示体积。下标字母表示该培养物是子培养物(s)还是感染剂量(i)。 - 将此子培养物置于2 L锥形瓶中培养,培养液体积应控制在液面最高不超过锥形瓶斜面部起始位置为宜。切勿超过此标记,否则会抑制细菌生长。
- 每隔30分钟测定一次OD值,以确保子培养物中的细菌处于对数生长期。
注:通常在培养3–5小时后,子培养物的OD600达到0.6–0.8时即进入该阶段。 - 将子培养物等体积分装至50 mL离心管中,在4 °C条件下以2,500 × g离心15分钟,使细菌沉淀。离心后弃去上清液,并将上清液再次在相同条件下离心,以确认绝大部分细菌已被去除。
注:若二次离心后沉淀极小(高度小于1 mm),则表明细菌已基本去除。 - 用5 mL子培养物上清液重悬各离心管中的细菌沉淀,然后将所有重悬液合并至一个50 mL离心管中。将浓缩后的菌液在4 °C条件下以2,500 × g离心15分钟,使细菌再次沉淀。
- 弃去上清液,将最终的细菌沉淀重悬于5%蔗糖水溶液中。测定OD值,并通过加入适量5%蔗糖水溶液将菌液浓度调整至所需感染剂量(P. entomophila 的OD600 = 1008,P. aeruginosa 的OD600 = 2516,28)。
注:所需添加的5%蔗糖水溶液体积可通过步骤3.2.1中的公式(MsVs = MiVi)计算得出。
4. 口服感染果蝇
- 为确保口服感染,在将果蝇转移至标准琼脂瓶(1 L 三蒸水配制)后,于接种细菌前使其饥饿 2–4 小时2O,20 g 琼脂,84 g 蔗糖,7 mL Tegosept 抗真菌剂。
- 在果蝇饥饿处理的同时准备感染小瓶。制作一个 假单胞菌 将500 µL标准蔗糖琼脂用移液器加入7 mL样品管的管盖中,静置使其干燥。在管盖内放置一张滤纸圆片,并将100 µL细菌培养物直接滴加到滤纸圆片上。作为对照感染,将细菌培养物替换为等体积的5%蔗糖水溶液,滴加于滤纸圆片上。
- 将单只果蝇加入样品管中,静置18–24小时。
- 为确认口服感染,细菌暴露后立即将果蝇置于100 µL 70%乙醇中表面消毒20–30秒。吸除乙醇后,加入100 µL三蒸水清洗20–30秒,随后吸除水分。加入100 µL 1×PBS缓冲液并匀浆果蝇。
- 将匀浆液转移至96孔板的顶行各孔中,并向下方每孔加入90 µL的1x PBS。
- 对该样品进行系列稀释,以区分不同范围的CFU值。取顶部孔中的10 µL匀浆液加入下方孔中。重复此步骤,从第二孔取10 µL转移至第三孔,依此类推,直至完成所需数量的连续稀释。
注意:每进行一组稀释时,必须使用新的移液器吸头。 - 将系列稀释液以5 µL液滴接种于LB营养琼脂平板上,确保各液滴彼此分离。
- 在30 °C和37 °C下将LB琼脂平板过夜培养 P. entomophila 和 P. aeruginosa分别计数可见的菌落形成单位(CFUs)。
注意:尽管 果蝇 肠道微生物需要特定的厌氧生长条件和选择性培养基,例如 假单胞菌 分离培养基(PIM)可用于确保仅 假单胞菌 计数菌落形成单位(CFUs)。 - 通过计数系列稀释后菌落数在10–60个之间清晰可见的平板上的菌落形成单位(CFU)数量,计算每只果蝇的CFU数。然后乘以相应的稀释倍数,得到每只果蝇的细菌总数。
- 进行统计分析。必要时,将每只果蝇的菌落形成单位(CFUs)转换为正态分布,可通过对数转换实现。转换后,采用广义线性模型(GLMs)进行分析。30,31,32 测试不同处理组间每只果蝇的菌落形成单位(CFU)差异(使用 R 等常用统计软件包)33).
注意:剩余的果蝇匀浆可用于通过定量反转录PCR(RT-qPCR)分析检测基因表达。将匀浆与50 µL RNA提取试剂混合固定,提取RNA,并通过RT-qPCR定量特定免疫基因的表达水平(参见 例如,Gupta 和 Vale16 有关详细方案,请参见)。特定免疫基因转录本的表达应相对于看家基因的转录水平进行标准化处理(即,rp49)表示为相对于对照组果蝇的倍数变化,使用2−ΔΔCt 方法31,32,33,34.
5. 感染后存活率的记录
- 按照步骤4.2所述方法通过口服途径感染果蝇。
- 将已感染或对照组的果蝇从各自的感染管转移至标准的Lewis培养管中,并置于25 °C、12小时光照-12小时黑暗循环(或其他所需条件)的培养箱中培养,持续观察直至果蝇全部死亡。
- 每天(或根据需要更频繁地)统计每管中存活或死亡的果蝇数量。
- 每5天将果蝇转移至新的培养管一次,以避免果蝇陷入食物中。
- 将数据以Kaplan-Meier(KM)生存曲线或均值±标准误(Mean ± SE)的比例生存图表示。若需分析多个因素及其相互作用的影响,可使用统计软件包(例如R语言中的“survival”软件包33)进行生存分析,如Cox比例风险模型35。
6. 测定细菌载量
- 在预定时间点,将一只感染的果蝇转移至无菌的 1.5 mL 微离心管中。
- 按照步骤 4.4 中所述方法对果蝇进行表面消毒。
- 匀浆处理果蝇,并采用步骤 4.5–4.10 中所述方案定量细菌载量。
7. 检测细菌脱落
- 在测量内部载量的同时测定细菌脱落情况。
- 感染后,将单只果蝇转移至含有约 50 µL Lewis 培养基的 1.5 mL 微离心管中,培养 24 小时。
- 取出果蝇用于内部载量测定(见步骤 6),并用 100 µL 1× PBS 强烈涡旋振荡 3 秒清洗离心管。
- 采用与步骤 4.6–4.8 中所述相同的方法,将该清洗液涂布于 LB 营养琼脂平板,测定菌落形成单位(CFUs)。
- 感染后,将单只果蝇转移至含有约 50 µL Lewis 培养基的 1.5 mL 微离心管中,培养 24 小时。
- 将果蝇转移至新的含有约 50 µL Lewis 培养基的微离心管中,继续培养 24 小时。用 100 µL 1× PBS 强烈涡旋振荡 3 秒清洗被污染的离心管。
- 采用与步骤 4.6–4.8 中所述相同的方法,将该清洗液涂布于 LB 营养琼脂平板,测定菌落形成单位(CFUs)。
- 重复步骤 7.2 和 7.3,并在每次转移时记录果蝇死亡率。
结果
在此,我们展示了一系列实验的示例性结果,其中 D. melanogaster 经口感染了 P. aeruginosa 或 P. entomophila. 图2 展示了果蝇在12小时或24小时暴露于OD值的细菌培养物后成功实现口服感染600 = 25 和 100 用于 P. aeruginosa (图2A)和 P. entomophila (图2B,C),分别。 图 2B 说明了使用更高浓度培养物的重要性 P. entomophila 通过果蝇暴露于更高光密度的细菌培养物时细菌载量的增加得以证明。雄性和雌性俄勒冈R(OreR)果蝇能够清除 P. aeruginosa 以相同速率感染(图3)并排出相同数量的 P. aeruginosa 菌落形成单位 (CFUs)图 4A)。当感染时 P. entomophila 然而,OreR 果蝇的雄性和雌性在排出细菌的数量上存在差异,且这种差异随时间而变化(图 4B)。雄性和雌性均会因此死亡 P. aeruginosa (图 5A)和 P. entomophila (图5B以不同速率。我们还观察到 Dcy 突变体(缺乏肠道上皮中保护性围食膜)和Relish突变体(缺乏功能性IMD免疫通路)在感染后存活率降低 P. entomophila 和 P. aeruginosa 口服感染(图 5C).

图 1:Drosophila melanogaster 口服感染后测定存活率、细菌排出量及体内细菌负荷的实验方案示意图。 展示了 D. melanogaster 口服感染后的三种可能实验。通过将单只果蝇转移至试管中并记录其感染后的寿命来测定“存活率”。通过将单只果蝇转移至含50 µL Lewis培养基(置于管盖内)的1.5 mL微量离心管中来测定“排出量”。果蝇在管中放置24小时后,取出果蝇,并向管中加入100 µL 1×PBS,涡旋混匀。将该溶液取出并涂布于LB营养琼脂平板上,以计算细菌排出量。可通过在24小时后将果蝇转移至新的含Lewis培养基的管中,并清洗和涂布已被污染的旧管,对同一只果蝇进行纵向多次测定排出量。果蝇的“体内负荷”可通过取感染果蝇,进行表面灭菌,匀浆处理,然后将匀浆液涂布于LB营养琼脂平板上来测定。该测定可在完成排出量检测后进行,以分析“体内负荷”与排出量之间的相关性。本图中使用的果蝇示意图最初由 B. Nuhanen36 绘制。作者对其进行了修改,以配合示例Kaplan-Meier曲线,该曲线取自Wikimedia Commons37。其余所有插图均为原创。请点击此处查看此图的高清版本。
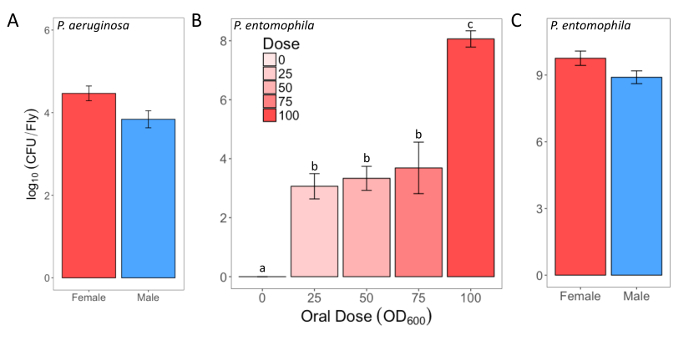
图2:口服感染后细菌的感染剂量。(A) 暴露于一定剂量后雄性和雌性Oregon-R果蝇的感染剂量 P. aeruginosa 培养(OD600 = 25)孵育12小时。数据来自3只雄性和3只雌性,计算其均值和标准误。 (B) 杂交野生型雌性个体暴露于四种条件之一后的感染剂量 P. entomophila 培养物(OD600 = 100、75、50 和 25)或对照 5% 蔗糖溶液处理 24 小时。统计学差异(F3,76 = 18.567, p <不同字母表示暴露处理间感染剂量的显著差异(P < 0.001)。均值基于5只果蝇计算得出,用于OD600 = 0 剂量,其余所有剂量组为 18–20。 (C) 暴露后雄性和雌性Oregon-R果蝇的感染剂量 P. entomophila 培养(OD600 = 100)处理24小时。数据来自20只雄性与20只雌性个体,计算其均值与标准误。 请点击此处以查看此图的放大版本。
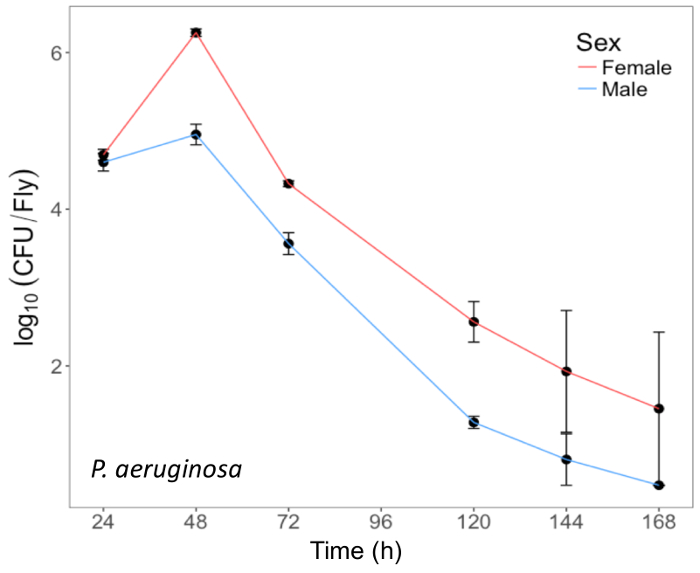
图3:内部 P. aeruginosa 口服感染后载入果蝇。 口服感染后 Oregon-R 果蝇雄性和雌性的细菌载量(均值 ± 标准误) P. aeruginosa (OD600 = 25)直至感染后168小时。每个时间点的均值和标准误由3个个体计算得出。果蝇体内的细菌载量随时间发生显著变化(p <0.001). 请点击此处以查看此图的放大版本。
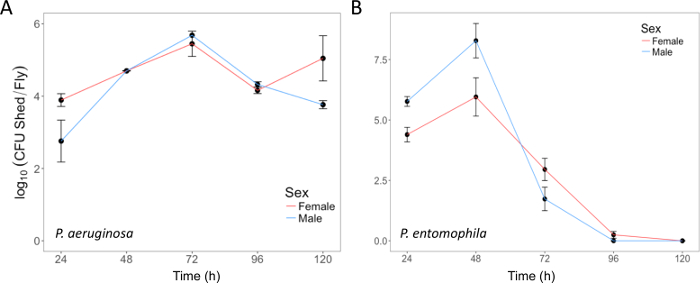
图4:口服感染后细菌的排出情况。(A) 与图3中所用果蝇相同,在感染后120小时内排出的P. aeruginosa。数据来自3只雄性和3只雌性果蝇,计算其均值和标准误。(B) Oregon-R品系雄性和雌性果蝇在口服感染P. entomophila(OD600 = 100)后120小时内排出的P. entomophila。数据来自34只雄性和38只雌性果蝇,计算其均值和标准误。对于P. aeruginosa和P. entomophila,果蝇排出的CFU数量均随时间发生显著变化(p <0.001)。请点击此处查看该图的放大版本。
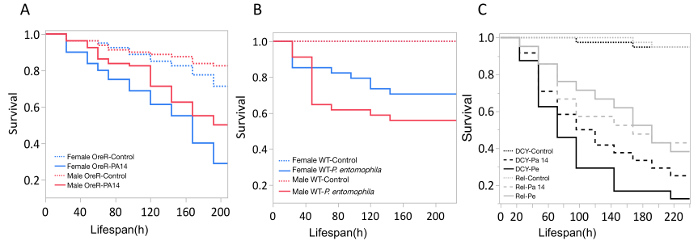
图5:果蝇经口服细菌感染后的存活情况。 Kaplan-Meier(KM)生存曲线 (A) 中国台湾Oregon-R品系果蝇经口服感染后,雄性和雌性个体 P. aeruginosa (OD600 = 25)或对照组5%蔗糖溶液。KM生存曲线根据每组4个样品瓶(每瓶20只果蝇)的数据计算得出。 (B) 口服感染后的OreR雄性和雌性果蝇 P. entomophila (OD600 = 100)。KM生存曲线基于雄性和雌性各4只对照果蝇和34只感染果蝇计算得出。 (C) 免疫突变体: Dcy (果蝇晶体蛋白-围食膜突变体)和 Rel (Relish-IMD 突变体),暴露于 P. entomophila (Pe) P. aeruginosa (Pa14),或对照组的5%蔗糖溶液。所有感染组的死亡速度均显著快于对照组果蝇(p <0.001). 请点击此处以查看此图的放大版本。
讨论
我们提出了一种可靠地通过口服途径感染的实验方案 D. melanogaster 与细菌病原体。我们关注 P. aeruginosa 和 P. entomophila但本方案可轻松调整,以实现对其他细菌物种的感染, 例如, 粘质沙雷菌7. 该方案的关键步骤在不同细菌种类之间会有所差异。因此,最适感染剂量、相应毒力以及宿主基因型的易感性均应予以考虑,并最好通过预实验进行测试。在使用新的细菌种类或果蝇品系时,可将果蝇暴露于不同光密度的细菌培养物中,并测定其感染剂量和存活率,以此作为合适的起始方法。
在口服感染实验中,果蝇喂食前的饥饿处理以及将细菌沉淀重悬于5%蔗糖溶液中的操作步骤十分常见,这些步骤可提高暴露期间细菌感染的可靠性7,8,9,10。然而需要注意的是,在暴露过程中,果蝇实质上是生活于细菌培养物的表面。在该培养物上爬行时,细菌会附着在果蝇体表,尤其容易滞留在表皮或刚毛周围24。这些体表附着的细菌并不代表成功的肠道感染,但在果蝇匀浆及平板培养检测中仍会被检出。为降低假阳性结果的可能,必须通过将果蝇浸入70%乙醇中不超过1分钟的方法进行表面灭菌。
在考虑细菌排出率时,口服感染至关重要。宿主向环境中释放的病原体数量通常难以直接测量,因此常以内部分担量作为感染严重程度以及传播能力的替代指标26,27。同时测量细菌载量与细菌排出情况,可深入分析疾病严重程度和传播过程中这两个关键因素之间的关系38。本方法的一个局限性在于,检测果蝇体内细菌载量需要进行破坏性取样,这使得难以对同一宿主个体在感染过程中病原体的增殖与清除进行长期追踪。然而,可通过在感染不同阶段对多个群体进行破坏性取样来克服这一限制,前提是假设每个群体的平均微生物载量能够反映单个个体内的纵向病原体动态变化。细菌排出的测量则不受此限制,本文提供了如何在横断面样本中定量测定细菌排出,以及如何进行纵向研究以分析个体在感染过程中排出量随时间变化的示例。
多种宿主和病原体的性状共同决定了个体传播疾病的可能性25,26,39。尽管这些性状在不同宿主-病原体系统中的重要性可能有所不同,但排菌很可能是粪口传播的主要决定因素。能够测量细菌的排出,为验证这一假设提供了机会。在表征了目标果蝇品系中的宿主-病原体动态后,实验人员可对个体进行口服感染,并在其具有传染性的期间,将其与未感染的易感宿主共同饲养。随后可在不同时间点检测这些“受体”果蝇体内的细菌载量,以直接衡量传播情况。
致谢
本工作获得了惠康基金会(Wellcome Trust)对免疫、感染与进化中心(http://ciie.bio.ed.ac.uk;资助编号:095831)的战略资助。PFV 获得了布拉anco·魏斯研究员项目(Branco Weiss Fellowship)(https://brancoweissfellowship.org/)和爱丁堡大学校长研究员项目(Chancellor’s Fellowship,爱丁堡大学生物科学学院)的支持;JASJ 获得了英国自然环境研究理事会(NERC)E3 DTP 博士生奖学金的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 小瓶 | Sarstedt Ltd. | 58.490 | 聚苯乙烯平底管 75mm x 23.5mm,23ml |
| 琼脂 | Sigma-Aldrich | A7002 | 琼脂,灰分含量 2.0-4.5% |
| 红糖 | Bidvest | 66032 | 浅色软质红糖 |
| 玉米 | Dove's Farm | 有机玉米粉 | |
| 费尔米潘酵母 | Bidvest | 96360 | 干性即食酵母 |
| 对羟基苯甲酸甲酯 | Sigma-Aldrich | H5501 | >=99.0%,结晶状 |
| 蔗糖 | Sigma-Aldrich | 84097 | 蔗糖 BioUltra,分子生物学用,>=99.5%(HPLC) |
| 培养皿 | Fisher Scientific UK Ltd. | 15788517 | X600 培养皿 90 X 16.2MM 无菌三重通气 |
| 离心管(50ml) | Greiner Bio-one Inc | 210261 | 离心管,50ml,带裙边,袋装,无菌 |
| 微量离心管(0.5ml) | Sarstedt Ltd. | 72.699 | Sarstedt 微量离心管 锥底 推盖式 0.5ml 标准中性 |
| 微量离心管(1.5ml) | Sarstedt Ltd. | 72.690.001 | Sarstedt 微量离心管 锥底 推盖式 1.5ml 标准中性 |
| 乙醇 | VWR International Ltd. | 20821.33 | 分析纯无水乙醇 ANALAR NP ACS/R.PE - 分析级 |
| 2 L 锥形瓶 | VWR International Ltd. | 214-0038 | 窄口,2 L 三角烧瓶 |
| 无菌滤纸 | Fisher Scientific UK Ltd. | 1001-020 | 圆形及片状;颗粒截留:大于11μm;过滤速度:150 Herzberg;空气流速:10.5秒/100mL/in²;中等孔隙率;光滑表面;1号滤纸;类型:圆形;直径:20mm |
| 比约样本容器 | Fisher Scientific UK Ltd. | 129A | 7ml 聚苯乙烯样本容器 |
| 假单胞菌分离琼脂 | Sigma-Aldrich | 17208 | 含琼脂 13.6 g/L,氯化镁 1.4 g/L,动物组织蛋白胨消化物 20g/L,硫酸钾 10g/L,三氯生 0.025g/L |
| LB 肉汤,Miller 配方 | Fisher Scientific UK Ltd. | BP1426 | 每升含胰蛋白胨 10g,酵母提取物 5g,氯化钠 10g |
| 大型胚胎收集笼 | Scientific Laboratory Supplies Ltd. | 59-101 | Flystuff - 适配 100mm 培养皿 |
| TRI 试剂溶液 | Life Technologies | AM9738 | |
| 96 孔微孔板 | Scientific Laboratory Supplies Ltd. | 353072 | Falcon 96 孔透明平底 TC 处理聚苯乙烯细胞培养微孔板,带盖,无菌 |
| 研钵杵 | Fisher Scientific UK Ltd | 12649595 | 研钵杵,预灭菌;Axygen;组织研磨器;蓝色;惰性聚丙烯材质;适配 1.5 和 2.0mL 离心管;独立包装;每包 100 支 |
| 甘油 | Scientific Laboratory Supplies Ltd. | CHE2068 | 甘油 分析纯 99.5% 2.5 L |
| 棉絮 - 非吸收性 | Cowens Ltd | ABL | 非吸收性 大量装 20 袋 x 500 |
| 棉絮 - 吸收性 | Cowens Ltd | ABS | 药典级 小量装 20 袋 x 500 |
| 涡旋振荡器 | Fisherbrand | Whirlimixer 75W 50-6-Hz 220-240V | |
| 轨道摇床培养箱 | Gallenkamp | INR-200-010V | 220 V,50 Hz,5 A。标称温度:70ºC。振荡频率:0...400 rpm。 |
| 吸光度微孔板读数仪 | Biotek Instruments Ltd | ELx808™ 吸光度微孔板读数仪 | |
| Gen 5 微孔板读数仪与成像软件 | Biotek Instruments Ltd | 用于吸光度微孔板读数仪 | |
| 离心机 | Beckman Coulter | 392304 | Allegra X-12R 台式冷冻离心机,50Hz 230V |
| Step One Plus 实时荧光定量 PCR 系统 | Thermofisher Scientific | 4376600 | Applied biosystems Step One Plus 实时荧光定量 PCR 系统 |
| Step One 软件 2.3 版 | Thermofisher Scientific | 适用于 Stepone 和 SteponePlus 实时荧光定量 PCR 系统 | |
| R 统计软件 | https://cran.r-project.org/ | ||
| 10 µL 移液器吸头 | Greiner Bio-one Inc | 741015 | Gilson 风格易装式。带刻度,透明,可重复填充,960 个 |
| 200 µL 移液器吸头 | Greiner Bio-one Inc | 741065 | Gilson 风格易装式。带刻度,透明,可重复填充,960 个 |
| 1000 µL 移液器吸头 | Greiner Bio-one Inc | 741045 | Gilson 风格易装式。带刻度,透明,可重复填充,960 个 |
| 20 µL 滤芯移液器吸头 | Greiner Bio-one Inc | 774288 | Gilson 风格滤芯吸头。透明,蓝色架,单个包装,RNase/DNase 无残留,每架 96 个,共 10 架 |
| 200 µL 滤芯移液器吸头 | Greiner Bio-one Inc | 739288 | Gilson 风格滤芯吸头。透明,蓝色架,单个包装,RNase/DNase 无残留,每架 96 个,共 10 架 |
| 1000 µL 滤芯移液器吸头 | Greiner Bio-one Inc | 740288 | Gilson 风格滤芯吸头。透明,蓝色架,单个包装,RNase/DNase 无残留,每架 60 个,共 10 架 |
参考文献
- Hoffmann, J. A. The immune response of Drosophila. Nature. 426 (6962), 33-38 (2003).
- Buchon, N., Silverman, N., Cherry, S. Immunity in Drosophila melanogaster - from microbial recognition to whole-organism physiology. Nat Rev Immunol. 14 (12), 796-810 (2014).
- Bergman, P., Seyedoleslami Esfahani, S., Engström, Y. Drosophila as a Model for Human Diseases-Focus on Innate Immunity in Barrier Epithelia. Curr Top Dev Biol. 121, 29-81 (2017).
- Apidianakis, Y., Rahme, L. G. Drosophila melanogaster as a model host for studying Pseudomonas aeruginosa infection. Nat Protoc. 4 (9), 1285-1294 (2009).
- Khalil, S., Jacobson, E., Chambers, M. C., Lazzaro, B. P. Systemic Bacterial Infection and Immune Defense Phenotypes in Drosophila Melanogaster. JoVE J Vis Exp. (99), e52613-e52613 (2015).
- Neyen, C., Bretscher, A. J., Binggeli, O., Lemaitre, B. Methods to study Drosophila immunity. Methods San Diego Calif. 68 (1), 116-128 (2014).
- Nehme, N. T., et al. A Model of Bacterial Intestinal Infections in Drosophila melanogaster. PLOS Pathog. 3 (11), e173(2007).
- Bou Sleiman, M. S., Osman, D., Massouras, A., Hoffmann, A. A., Lemaitre, B., Deplancke, B. Genetic, molecular and physiological basis of variation in Drosophila gut immunocompetence. Nat Commun. 6, 7829(2015).
- Buchon, N., Broderick, N. A., Lemaitre, B. Gut homeostasis in a microbial world: insights from Drosophila melanogaster. Nat Rev Microbiol. 11 (9), 615-626 (2013).
- Kuraishi, T., Hori, A., Kurata, S. Host-microbe interactions in the gut of Drosophila melanogaster. Front Physiol. 4, (2013).
- Ha, E. -M., Oh, C. -T., Bae, Y. S., Lee, W. -J. A Direct Role for Dual Oxidase in Drosophila Gut Immunity. Science. 310 (5749), 847-850 (2005).
- Limmer, S., et al. Pseudomonas aeruginosa RhlR is required to neutralize the cellular immune response in a Drosophila melanogaster oral infection model. Proc Natl Acad Sci U S A. 108 (42), 17378-17383 (2011).
- Apidianakis, Y., Pitsouli, C., Perrimon, N., Rahme, L. Synergy between bacterial infection and genetic predisposition in intestinal dysplasia. Proc Natl Acad Sci U S A. 106 (49), 20883-20888 (2009).
- Vodovar, N., et al. Drosophila host defense after oral infection by an entomopathogenic Pseudomonas species. Proc Natl Acad Sci U S A. 102 (32), 11414-11419 (2005).
- Chugani, S. A., Whiteley, M., Lee, K. M., D'Argenio, D., Manoil, C., Greenberg, E. P. QscR, a modulator of quorum-sensing signal synthesis and virulence in Pseudomonas aeruginosa. Proc Natl Acad Sci. 98 (5), 2752-2757 (2001).
- Gupta, V., Vasanthakrishnan, R. B., Siva-Jothy, J., Monteith, K. M., Brown, S. P., Vale, P. F. The route of infection determines Wolbachia antibacterial protection in Drosophila. Proc R Soc B. 284 (1856), 20170809(2017).
- Martins, N. E., Faria, V. G., Teixeira, L., Magalhães, S., Sucena, É Host Adaptation Is Contingent upon the Infection Route Taken by Pathogens. PLoS Pathog. 9 (9), (2013).
- Chambers, M. C., Jacobson, E., Khalil, S., Lazzaro, B. P. Thorax Injury Lowers Resistance to Infection in Drosophila melanogaster. Infect Immun. 82 (10), 4380-4389 (2014).
- Gupta, V., Stewart, C., Rund, S. S., Monteith, K., Vale, P. F. Costs and benefits of sublethal Drosophila C virus infection. J Evol Biol. , (2017).
- Ferreira, ÁG., Naylor, H., Esteves, S. S., Pais, I. S., Martins, N. E., Teixeira, L. The Toll-Dorsal Pathway Is Required for Resistance to Viral Oral Infection in Drosophila. PLoS Pathog. 10 (12), (2014).
- Buchon, N., Broderick, N. A., Poidevin, M., Pradervand, S., Lemaitre, B. Drosophila Intestinal Response to Bacterial Infection: Activation of Host Defense and Stem Cell Proliferation. Cell Host Microbe. 5 (2), 200-211 (2009).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Hori, A., Kurata, S., Kuraishi, T. Unexpected role of the IMD pathway in Drosophila gut defense against Staphylococcus aureus. Biochem Biophys Res Commun. 495 (1), 395-400 (2018).
- Ren, C., Webster, P., Finkel, S. E., Tower, J. Increased Internal and External Bacterial Load during Drosophila Aging without Life-Span Trade-Off. Cell Metab. 6 (2), 144-152 (2007).
- Ezenwa, V. O., et al. Host behaviour-parasite feedback: an essential link between animal behaviour and disease ecology. Proc R Soc B. 283 (1828), 20153078(2016).
- McCallum, H., et al. Breaking beta: deconstructing the parasite transmission function. Phil Trans R Soc B. 372 (1719), 20160084(2017).
- Vale, P. F., Choisy, M., Little, T. J. Host nutrition alters the variance in parasite transmission potential. Biol Lett. 9 (2), 20121145(2013).
- Mulcahy, H., Sibley, C. D., Surette, M. G., Lewenza, S. Drosophila melanogaster as an Animal Model for the Study of Pseudomonas aeruginosa Biofilm Infections In Vivo. PLoS Pathog. 7 (10), e1002299(2011).
- Kuraishi, T., Binggeli, O., Opota, O., Buchon, N., Lemaitre, B. Genetic evidence for a protective role of the peritrophic matrix against intestinal bacterial infection in Drosophila melanogaster. Proc Natl Acad Sci. 108 (38), 15966-15971 (2011).
- Myllymäki, H., Valanne, S., Rämet, M. The Drosophila Imd Signaling Pathway. J Immunol. 192 (8), 3455-3462 (2014).
- Lewis, E. A new standard food medium. Cold Spring Harb Protoc. 2014 (9), pdb.rec081414(2014).
- Bolker, B. M., et al. Generalized linear mixed models: a practical guide for ecology and evolution. Trends Ecol Evol. 24 (3), 127-135 (2009).
- R Core Team. R: A Language and Environment for Statistical Computing. , R Foundation for Statistical Computing. Vienna, Austria. (2015).
- Schmittgen, T. D., Livak, K. J. Analyzing real-time PCR data by the comparative CT method. Nat Protoc. 3 (6), 1101-1108 (2008).
- Kalbfleisch, J. D., Prentice, R. L. The Statistical Analysis of Failure Time Data. , 2nd Edition, Wiley-Blackwell. Hoboken, N.J. (2002).
- Nuhanen, B. Drosophila melanogaster, drawing.SVG. , Available from: https://commons.wikimedia.org/wiki/File:Drosophila-drawing.svg (2007).
- Accountalive. Example of a survival curve estimated by Kaplan-Meier method including 95% confidence limits. , Available from: https://commons.wikimedia.org/wiki/File:Kaplan-Meier-sample-plot.svg (2011).
- Susi, H., Vale, P. F., Laine, A. -L. Host Genotype and Coinfection Modify the Relationship of within and between Host Transmission. Am Nat. 186 (2), 252-263 (2015).
- Fellous, S., Duncan, A. B., Quillery, E., Vale, P. F., Kaltz, O. Genetic influence on disease spread following arrival of infected carriers. Ecol Lett. 15 (3), 186-192 (2012).
重印与许可
