本文展示了从自然野外采集的单细胞结合藻类物种建立克隆培养物的方法。
本文内容
摘要
摘要
建立微藻的克隆培养物对于开展生理学、遗传学、分类学和微生物学等各类研究至关重要。因此,开发建立克隆培养物的技术具有重要意义。本文演示了接合藻类克隆培养物的建立方法。首先从野外采集水样,随后使用玻璃毛细移液管分离单个细胞,将其接种至培养基中,并在适宜条件下培养以获得克隆培养物。
引言
接合藻类(接合藻目,Zygnematales),也被称为接合植体,因其作为陆生植物最近现存祖先的系统发育关键位置而备受关注1,2。近年来,藻类克隆培养体系的建立已促成了大量关于分类学、生理学和遗传学的研究。从自然环境中分离微生物的技术历史悠久3,4。近年来,基于流式细胞术的自动化分离技术也已建立5。目前建立克隆培养物最常用的方法是使用玻璃毛细移液管进行单细胞分离6。这一传统方法对操作技巧和实验流程的精确性要求较高。
本文中,我们展示了从野外样品中采集藻类并建立单细胞接合藻类(如 Closterium 物种,使用 玻璃毛细移液管。从野外采样点采集含有营养细胞的水样(例如,如湖泊、池塘或稻田)。使用玻璃毛细管移液器从水样中分离细胞,随后进行清洗。将细胞接种于含有氮补充培养基(CA培养基)的试管中,在24 °C、16小时光照:8小时黑暗的条件下培养。该方法也适用于分离其他微藻以建立克隆培养物。
方案
1. 采集含有藻类的水样
注意:单细胞结合藻类生长于静止的淡水区域,例如湖泊、沼泽和稻田。可从这些环境之一采集含有藻类的水样,以建立培养菌株。开始操作前需要准备以下物品:浮游生物网、一次性移液管,以及用于采集水样的瓶子或50 mL离心管。
- 在湖泊环境中使用浮游生物网从水中采集藻类。根据具体目的选择合适的网具。
注意:网具上部透水。藻类被网捕获后,会集中到浮游生物网底部的收集容器中。粗网孔会让小型藻类通过,而细网孔则容易堵塞。 - 将约50 mL水样转移至50 mL离心管或100 mL塑料瓶中,并将浓缩后的水样带回实验室。
- 单细胞接合藻类也生长在沼泽或稻田中。在这些浅水区域,可用移液器直接采集含有藻类的水样,然后将30–50 mL水样转移至50 mL离心管或50 mL塑料瓶中。
注意:采样时应小心地在土壤表面以上取水,确保样品中不含有土壤。
2. 藻类的确认
注意:需要以下物品:放大镜或便携式显微镜,以及用于观察的60 mm培养皿。
- 使用放大镜直接观察一次性移液管中的样品,以确认是否存在藻类。
注意:长度约为 400 - 1,000 µm 的较大细胞(例如, Closterium ehrenbergii)可轻松通过此方法观察到。 - 为在便携式显微镜下确认藻类,将水样倒入塑料培养皿中。
- 将样品(约3 mL)置于60 mm培养皿上半部分(盖子)内侧,然后将下半部分倒置,使其底部接触盖子内侧,盖在上半部分之上。
注意:该方法可防止样品移动,使观察更加容易。
- 将样品(约3 mL)置于60 mm培养皿上半部分(盖子)内侧,然后将下半部分倒置,使其底部接触盖子内侧,盖在上半部分之上。
3. 用于分离的巴斯德移液管玻璃毛细移液管的制备
注意:开始操作前,需要准备以下物品:已灭菌的巴斯德吸管、巴斯德吸管架、手套、橡胶吸球、酒精灯、酒精灯用甲醇、打火机、镊子、玻璃废弃物垃圾桶,以及洁净室或超净工作台(如需要)。
- 点燃酒精灯。
- 为了制备用于分离的细玻璃毛细移液管,请确保火焰不闪烁。调整火焰使其集中,并在巴斯德移液管尖端处加热熔化。
- 用手扶住橡胶吸头一侧,用镊子夹住尖端一侧,将无菌玻璃巴斯德移液管在火焰上加热。
- 将巴斯德移液管从火焰中取出并拉伸。
- 当玻璃开始熔化时,迅速将巴斯德移液管移离火焰,然后进行拉伸。
注意:本实验中,巴斯德移液管被拉长约15 - 20 cm。拉伸过程中务必确保移液管已离开火焰。
- 当玻璃开始熔化时,迅速将巴斯德移液管移离火焰,然后进行拉伸。
- 将玻璃毛细移液管的尖端折断至合适长度。由于弯曲部分最细,因此适合作为尖端。
注意:本研究中制备了尖端长度为5 - 10 cm的玻璃毛细移液管。- 熔化后务必丢弃毛细管,并确认火焰已熄灭。
- 从玻璃毛细移液管释放出的气泡可指示尖端开口的大小。根据待分离细胞的尺寸选择合适的开口。对于细胞宽度为10 - 20 µm的 Closterium 物种,约1 mm的气泡大小适合用于分离。
4. 通过玻璃毛细移液管进行单细胞分离
注意:开始前需要准备以下物品:倒置光学显微镜、表面皿、塑料培养皿,以及含有CA培养基(表1)或预处理CA培养基7的无菌螺口试管。
- 准备几个表面皿(直径22 mm,深度1 mm),每个表面皿中加入1 mL无菌CA培养基。
- 从野外采集的水样中分离目标细胞。
- 将含有目标细胞的水样(约30–40 mL)倒入塑料培养皿中。
- 在倒置光学显微镜下观察塑料培养皿中的样品,使用玻璃毛细移液管挑取单个细胞。
- 将玻璃毛细移液管靠近细胞,以利于通过毛细作用吸入细胞。
- 将细胞转移至含有1 mL无菌CA培养基的表面皿中(图1a)。
- 使用新的玻璃毛细移液管从无菌CA培养基中再次吸取细胞,并转移至第二个含有无菌CA培养基的表面皿中(图1b)。
注意:此过程需重复进行,直至在多孔板中实现单个细胞的分离(图1c)。 - 使用新的玻璃毛细移液管挑取单个细胞,最终将其转移至含有14 mL CA培养基或预处理CA培养基的试管中(图1d)。将样品在23 °C、16小时光照:8小时黑暗的条件下培养2周。
注意:预处理培养基中含有生长细胞分泌到周围环境中的未知促增殖因子,有助于细胞分裂4。若已建立克隆培养,可从该培养物的培养基中制备预处理CA培养基4。若培养成功,培养物将变为绿色。
结果
2016年6月25日,在日本千叶县 Sakura-shi 的印旡沼湖(Inba-numa)一个采样点采集了50 mL水样(Inba1)(pH 8.1,24.7 °C;35°44′30.2″N 140°12′08.2″E)。水样储存于4–8 °C环境中。采样次日,从含有营养细胞的水样中分离出一株 Closterium sp. 标本。从该样品中分离出15个形态相同的营养细胞(Inba1-1、-2、-3、-4、-5、-6、-7、-8、-9、-10、-11、-12、-13、-14 和 -15),并通过移液管洗涤法进行清洗。将15个分离的单细胞分别接种于含有15 mL 预处理CA培养基的独立试管中进行培养。经过2周培养后,观察到其中9支试管中出现细胞增殖 [Inba1-1、-3、-4、-5(图2a)、-6、-9、-10、-12(图2b)和 -13;表2]。最终从Inba1样品分离物中成功建立了9个克隆培养系(图3)。
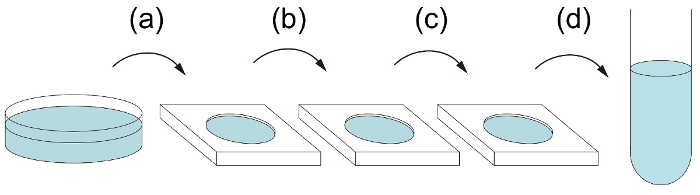
图1:单细胞分离流程。(a)将单个目标藻类细胞从原始水样转移到第一个培养皿中的无菌培养基中。(b、c)再次将细胞转移至下一个培养皿中进行清洗。该步骤应重复进行,直至培养基中除目标细胞外无其他细胞或污染物;图中以三个培养皿为例进行展示。(d)最后,将清洗后的细胞转移至含有适当培养基的试管中进行培养。请点击此处查看此图的放大版本。
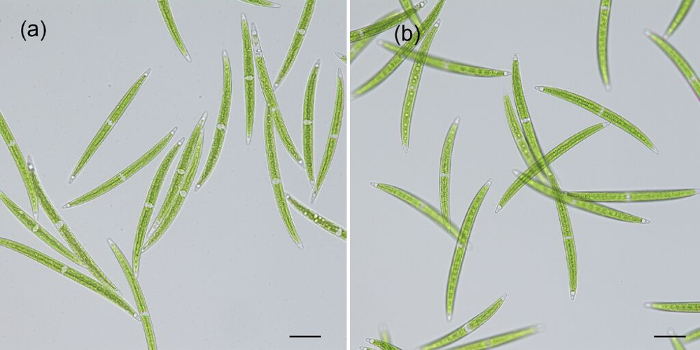
图2:Closterium sp. 的营养细胞照片,其中(a)为Inba1-5,(b)为Inba1-12。比例尺 = 50 µm。请点击此处查看此图的放大版本。
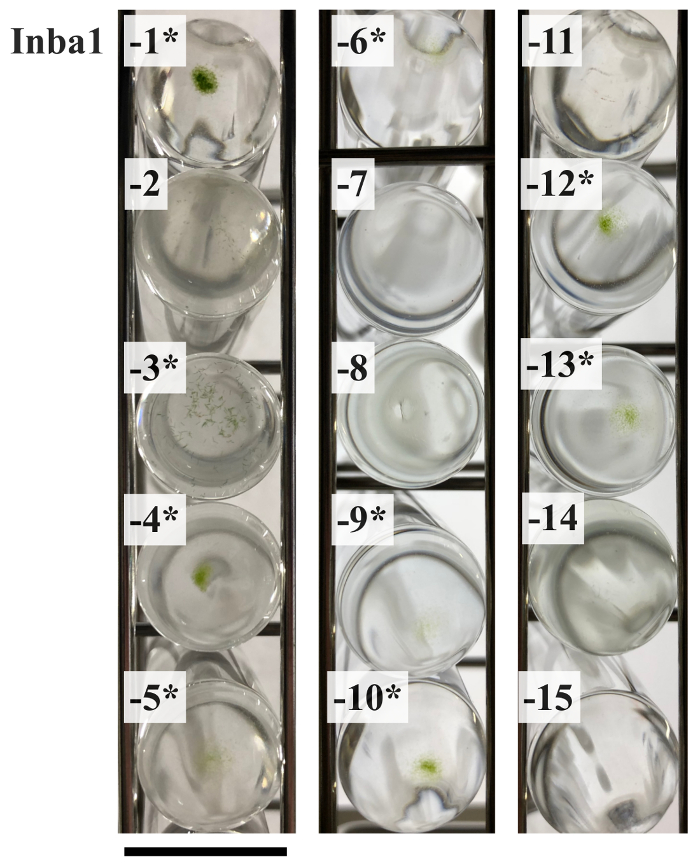
图3:从Inba1样品建立克隆培养物。 培养2周后的试管从底部拍摄。星号表示细胞增殖。比例尺 = 2 cm。 请点击此处查看该图的放大版本。
| 媒体名称 | 参考文献 | 评论 | |
| CA | Ichimura 和 Watanabe12 | Ca(NO3)2·4H2O | 2 mg |
| KNO3 | 10 mg | ||
| NH4一氧化氮3 | 5 mg | ||
| β–Na2甘油磷酸·5H₂O2O | 3 mg | ||
| MgSO₄4·7H2O | 2 mg | ||
| 维生素 B12 | 0.01 μg | ||
| 生物素 | 0.01 μg | ||
| 盐酸硫胺素 | 1 μg | ||
| PIV 金属 | 0.1 mL | ||
| Fe(以EDTA形式存在;1:1摩尔比) | 0.1 mL | ||
| HEPES | 40 mg | ||
| 加水至100 mL | |||
| 用 NaOH 调节 pH 至 7.2 | |||
| P IV 金属 | Provasoli 和 Pintner13 | Na2EDTA·2H2O | 100 mg |
| FeCl3·6H2O | 19.6 mg | ||
| MnCl2· 4H2O | 3.6 mg | ||
| ZnCl2* | 1.04 mg | ||
| CoCl2·6H2O | 0.4 mg | ||
| Na2MoO4·2H2O | 0.25 mg | ||
| 加水至100 mL | |||
| Fe(以EDTA形式;1:1摩尔比) | Provasoli14 | Fe(NH4)2(SO4)2·6H2O, | 70.2 mg |
| Na2EDTA·2H2O | 66 mg | ||
| 加水至 100 mL | |||
| 条件培养基 CA | Abe 等人7 | 将细胞在新鲜的CA培养基中孵育14–20天。使用定性滤纸过滤收集培养液,并通过高压灭菌对滤过后的培养基进行灭菌121 °C 15分钟。 | |
| 在NIES中,1.04 mg ZnCl2 被替换为 2.2 mg ZnSO4·7H2O. | |||
表1:本研究中所用培养基的配方。
| 水样 | 细胞名称 | 培养后状态 | 菌株名称 |
| Inba1 | -1 | 细胞增殖 | Inba1-1 |
| -2 | 无变化 | ||
| -3 | 细胞增殖 | inba1-3 | |
| -4 | 细胞增殖 | inba1-4 | |
| -5 | 细胞增殖 | inba1-5 | |
| -6 | 细胞增殖 | inba1-6 | |
| -7 | 无变化 | ||
| -8 | 无变化 | ||
| -9 | 细胞增殖 | inba1-9 | |
| -10 | 细胞增殖 | inba1-10 | |
| -11 | 无变化 | ||
| -12 | 细胞增殖 | inba1-12 | |
| -13 | 细胞增殖 | inba1-13 | |
| -14 | 无变化 | ||
| -15 | 无变化 |
表2:分离试验总结。
讨论
采用本方法,从水样(Inba1)中分离的15个细胞建立了9株Closterium sp. 克隆培养株,成功率为60%。物种鉴定将在未来通过形态学观察以及DNA分析(如分子系统发育分析8)进行。
在本方法中,水样的新鲜程度对实验成功率至关重要。最好在野外采集后尽快从水样中分离细胞。尽管 Closterium 属物种(例如,C. ehrenbergii、C. peracerosum-strigosum-littorale 复合体)的细胞可在 4 - 8 °C 条件下于水样中保存约 7 天,但仍建议在采集当天或次日完成细胞分离。此外,除去目标细胞以外的任何污染物也非常重要,因此增加洗涤次数(即,> 3 次)有助于防止土壤微生物及其他细胞污染培养物。
该技术的一个局限性在于,本方案中使用的培养基(CA 或条件化 CA 培养基)并不总是适用于所有进行接合的藻类。在某些情况下,可能需要考虑使用其他培养基,以及不同的光照和温度条件。此外,由于很难证明培养物是否来源于单个细胞,因此在将细胞转移至试管时,必须准确挑取仅一个细胞。因此,每次转移都应使用新的玻璃毛细移液管。
采用此移液管清洗方法建立克隆培养物是一种经典/标准方法,也是分离研究所需细胞最可靠的方法。许多研究中所使用的结合藻类克隆培养物8,9,10,11 使用本方法建立了这些藻类。若无克隆培养,则难以对结合藻类进行分析。此外,近年来 从头合成 全基因组序列变得易于获取(例如,通过使用MinION纳米孔测序仪)以及建立克隆培养,将进一步促进 从头合成 测序。换句话说,该方法是未来研究这些藻类以更深入了解其生物多样性的第一步。
为了建立稳定的培养菌株,必须在实验方案中准确执行某些关键步骤。其中最重要的一步是制备具有合适孔径的玻璃毛细移液管,使其仅允许单个细胞通过。玻璃毛细移液管的孔径应略大于目标细胞的短轴长度。理想的玻璃毛细移液管可通过毛细作用吸取单个细胞。然而,如果孔径过大,则除目标细胞外,移液管还可能吸入非活体污染物或甚至其他生物体。
为获得具有最佳孔径的玻璃毛细移液管,需注意以下要点。首先,加热玻璃毛细移液管时,火焰柱必须狭窄。其次,拉制巴斯德移液管时,必须将其从火焰中移开;否则,巴斯德移液管的孔径会塌陷。
本方案中所示的设备和容器为基础配置,可根据需要进行修改。例如,使用多孔板替代单孔培养皿,可提高细胞洗涤的效率。此外,容器也可替换为其他类似的器皿。在最后一步将单个细胞转移至培养基中,即可建立克隆培养物。
准备无菌容器并在超净工作台中操作可建立无菌(未受污染)的菌株。为防止污染,需要用新鲜的等分试样重复洗涤步骤超过3次。有时,也可通过添加抗生素对细菌进行灭菌处理15。
该方法主要针对鼓藻(Zygnematales)的分离,但通过改变玻璃毛细管移液器的孔径大小,也可应用于不同尺寸浮游生物的分离。
致谢
我们感谢东京大学的Hisayoshi Nozaki、庆应义塾大学的Takashi Nakada、日本女子大学的Yuka Marukawa Hashimoto和日本女子大学的Hiroyuki Sekimoto。我们感谢审稿人提出的宝贵意见。本研究得到了日本科学促进会科学研究费补助金(编号26440223和15H04413)以及新科学技术开发基金会向Yuki Tsuchikane提供的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 采样 | |||
| 浮游生物网 | RIGO,日本 | N-NO380T | 网孔尺寸:32 µm |
| 便携式显微镜(例如 Nature Scope FABRE) | 尼康,日本 | JAN:4960759 206725 | 放大倍数:20× |
| 放大镜(例如 Peak 1985 Steinheil System Magnifier) | 东海产业株式会社,日本 | 1985-20 | 放大倍数:20× |
| 注射器 | 荣研化学株式会社,日本 | 无菌注射器 No.4 | |
| 50 mL 离心管(带螺口盖的 50 mL 离心管) | Labcon,美国 | 3181-345-008 | |
| 瓶子(100 mL 聚碳酸酯瓶) | AS ONE 公司,日本 | 1-7403-01 | |
| 60 mm 培养皿 | 旭硝子株式会社,日本 | 1010-060 | 用于藻类观察。 60 mm/未处理培养皿 |
| 微吸管的制备 | |||
| 巴斯德吸管(带棉塞的 9” 巴斯德吸管) | 费舍尔科学公司,美国 | 13-678-8B | 7 × 225 mm |
| 橡胶吸头(SPOID 硅胶,1 cc) | AS ONE 公司,日本 | 5-5669-01 | 10 × 40 mm |
| 不锈钢镊子 | AS ONE 公司,日本 | PT-09 | 110 mm |
| 单细胞分离 | |||
| 表面皿(血液反应板) | 关谷理化有限公司,日本 | F14-155-030 | 用于细胞分离过程中的冲洗。直径 22 mm,深度 1 mm |
| 螺口试管 | 藤本理化有限公司,日本 | XX142 | 18 Ø × 170 mm |
| 倒置光学显微镜 | 奥林巴斯,东京,日本 | CKX41N | 用于藻类的分离。 |
| 塑料培养皿 | 旭硝子株式会社,日本 | SH90-15E | 90 × 15 mm |
参考文献
- Wickett, N. J., et al. Phylotranscriptomic analysis of the origin and early diversification of land plants. Proceedings of the National Academy of Sciences. 111, E4859-E4868 (2014).
- Delwiche, C. F., Cooper, E. D. The evolutionary origin of a terrestrial flora. Current Biology. 25, R899-R910 (2015).
- Daste, P., Neuville, D., Victor-Baptiste, B. A simple procedure for obtaining clonal isolation of diatoms. British Journal of Psychology. 18, 1-3 (1983).
- Pringsheim, E. G. Pure Cultures of Algae: Their Preparation and Maintenance. , Cambridge University Press. London, UK. 119(1946).
- Sieracki, M., Poulton, N., Crosbie, N. Automated isolation techniques for microalgae. Algal Culturing Techniques: Automated isolation techniques for microalgae. Andersen, R. A. , Elsevier Academic Press. 101-116 (2005).
- Andersen, R. A., Kawachi, M. Traditional microalgae isolation techniques. Algal Culturing Techniques: Traditional micro algae isolation techniques. Andersen, R. A. , Elsevier Academic Press. 83-100 (2005).
- Abe, J., et al. Stable nuclear transformation of the Closterium peracerosum-strigosum-littorale complex. Plant and Cell physiology. 52, 1676-1685 (2011).
- Tsuchikane, Y., Tsuchiya, M., Kokubun, Y., Abe, J., Sekimoto, H. Conjugation processes of Penium margaritaceum (Zygnemophyceae, Charophyta). Phycological Research. 59, 74-82 (2011).
- Kanda, N., et al. CRISPR/Cas9-based knockouts reveal that CpRLP1 is a negative regulator of the sex pheromone PR-IP in the Closterium peracerosum-strigosum-littorale complex. Scientific Reports. 7, 17873(2017).
- Ichimura, T. Mating types and reproductive isolation in Closterium-ehrenbergii Meneghini. Botanical Magazine-Tokyo. 94, 325-334 (1981).
- Sekimoto, H., Satoh, S., Fujii, T. Biochemical and physiological properties of a protein inducing protoplast release during conjugation in the Closterium peracerosum-strigosum-littorale complex. Planta. 182, 348-354 (1990).
- Ichimura, T., Watanabe, M. The Closterium calosporum complex from the Ryukyu Islands-Variation and taxonomical problems. Memoirs of the National Science Museum. 7, (1974).
- Provasoli, L., Pintner, I. J. Artificial media for fresh-water algae: problems and suggestions . The Ecology of Algae, a symposium held at the Pymatuning Laboratory of Field Biology on June 18 and 19, 1959. , Pymatuning Laboratory of Field Biology, University of Pittsburgh, . Pittsburgh. 84-96 (1960).
- Provasoli, L. Media & prospects for the cultivation of marine algae. Proceedings of U. S.-Japan Conference in Hakone, Japan. Tryon, C. A. Jr, Hartmann, R. T. , Japanese Society of Plant Physiologists. 63-75 (1968).
- Guillard, R. R. L. Purification methods for microalgae. Algal Culturing Techniques: Purification methods for microalgae. Andersen, R. A. , Elsevier Academic Press. 117-132 (2005).
重印与许可
