细菌细胞在空间上具有高度有序的结构。为了在生长缓慢的Myxococcus xanthus细胞中长时间追踪这种组织结构,建立了一种可在多个世代中实现高时空分辨率的荧光活细胞成像系统。利用该方法,能够确定与染色体分离和细胞分裂相关的重要蛋白质的时空动态行为。
本文内容
摘要
摘要
对细菌细胞进行荧光活细胞成像,是分析蛋白质和染色体在核心细胞周期事件中时空动态的关键方法。然而,由于成像过程中荧光基团的光漂白以及光毒性问题,对生长缓慢的细菌中这些分子的成像仍具挑战性。本文介绍了一种简单的方法,可克服在Myxococcus xanthus(其世代时间为4–6小时)中的上述限制。具体而言,将M. xanthus细胞培养在含有营养物质的厚琼脂垫上,并置于温控且湿度适宜的环境中。在此条件下,通过追踪单个细胞的生长,测定其倍增时间。此外,可通过荧光活细胞成像技术,在表达相关荧光标记蛋白(如ParB-YFP、FtsZ-GFP和mCherry-PomX)的细胞中,对染色体分离和细胞分裂等关键细胞过程进行多细胞周期的连续观察。随后,对所获得的图像进行处理,生成图像拼接图和/或动态视频。
引言
细菌细胞在空间上具有高度有序的结构,许多蛋白质在细胞区室内部呈不对称定位1,2,3,4。这种定位通常具有高度动态性,并随着细胞周期信号或外部刺激随时间发生变化。同样,细菌染色体在空间上也高度有序,各个位点在分离过程之前和期间被精确定位于特定的亚细胞位置5。这种动态的空间组织对细菌的生长、分裂、细胞周期调控、分化、运动性、信号转导以及染色体的结构与分离至关重要,因而几乎影响了细菌功能的所有方面。
这些细胞过程的时空动态正在多种不同的细菌物种中进行分析, 大肠杆菌, 枯草芽孢杆菌,霍乱弧菌,以及 Caulobacter crescentus 作为重要的模式生物。然而,这四种物种仅涵盖了巨大细菌多样性中很小的一部分,且由于这些物种之间存在较大的系统发育距离,它们在细胞结构和极性化机制方面存在差异也就不足为奇了。因此,有必要对更多细菌物种进行研究,以最终揭示细菌细胞时空动态的普遍规律。
革兰氏阴性δ-变形菌 M. xanthus 是研究细菌社会行为与合作的模式生物6. M. xanthus 是一种严格需氧菌,在营养物质存在时,会形成菌落,其中细胞以高度协调的群集方式向外扩散,并捕食其他微生物7在营养缺乏的条件下,细胞会启动一种发育程序,形成由数千个细胞组成的子实体,其中杆状的运动细胞分化为球形的二倍体孢子。8两种类型的行为, 即,群集运动和子实体形成仅由位于固体表面的细胞执行。此外,在两种营养条件下,细胞均会参与涉及直接细胞间接触的过程,包括外膜脂蛋白的交换,这些脂蛋白可能促进运动性,或在受体细胞中发挥毒素功能9,10,LPS的交换11邻近细胞外多糖对运动性的刺激作用12以及由细胞表面锚定信号蛋白介导的细胞间信号传导13,14.
近年来,M. xanthus 也已成为研究运动性及其调控机制15、细胞分裂16,17,18以及染色体组织19,20,21的模式生物。通过荧光显微镜对携带相关荧光标记蛋白的菌株进行静态图像或短时间延时记录,研究人员已详细分析了M. xanthus细胞周期中的关键步骤16,17,18,19,20。理想情况下,应以单细胞分辨率对大量细胞进行活细胞荧光成像,持续至少一个完整的细胞周期,以获得关于细胞周期参数的可靠定量数据。然而,由于M. xanthus在标准实验室条件下的世代时间相对较长,约为4–6小时,且成像过程中存在荧光染料的光漂白和光毒性问题,实现这一目标面临挑战。
本文介绍了一种通过荧光活细胞成像技术以单细胞分辨率持续追踪M. xanthus细胞至少24小时并覆盖多个细胞周期的实验方案。重要的是,在整个实验过程中,细胞被维持在琼脂垫上并保持紧密接触,从而保留了M. xanthus社会性生活方式所必需的依赖于接触的各种生物学活动。该方案还允许用户以高时间分辨率和单细胞分辨率监测细胞形态、大小、分裂过程以及荧光探针信号,因而能够对细胞间的异质性及细胞周期事件之间的相关性进行定量分析。
方案
1. M. xanthus 菌株的制备与培养
注:参见表1和表2。
- 制备1% 酪蛋白胰酶消化物(CTT)生长培养基:1%(w/v)酪蛋白胰酶消化物(例如,Bacto casitone)、10 mM Tris-HCl(pH 8.0)、1 mM KH2PO4 (pH 7.6)、8 mM MgSO422,并添加卡那霉素(50 µg/mL)或土霉素(10 µg/mL)。在所有培养基中加入庆大霉素(10 µg/mL)以降低其他细菌污染的风险,因为M. xanthus细胞对其具有天然抗性。
- 在第1天早晨,用单个新鲜培养的野生型(WT)DK162223、SA4420(ΔmglA)24、SA4797(ΔmglA,ΔpomX/PpomZ mCherry-pomX)16、SA8241(ΔmglA,ftsZ+/PnatftsZ-gfp)或SA4749(ΔmglA,parB+/PnatparB-yfp)菌落接种含相应抗生素的5 mL 1% CTT培养基。
- 将单个M. xanthus菌落重悬于无菌离心管中含抗生素的500 µL 1% CTT培养基中,然后将全部悬液转移至含有5 mL 1% CTT的50 mL锥形瓶中。
注:使用体积为培养液体积10倍的锥形瓶,以确保充分通气和最佳生长。
- 将单个M. xanthus菌落重悬于无菌离心管中含抗生素的500 µL 1% CTT培养基中,然后将全部悬液转移至含有5 mL 1% CTT的50 mL锥形瓶中。
- 在32 °C、220 rpm振荡、避光条件下培养细胞8代(约40–48小时,代时为4–6小时)。保持细胞处于对数生长期(OD550 <1.2),避免其进入稳定期。如需要,将细胞稀释至含相应抗生素的新鲜1% CTT培养基中,使OD550达到0.1–0.2。
注:单细胞显微镜观察的最佳OD550为0.5–0.7。在此OD550下,每张图像中存在足够数量的细胞,可用于细胞参数的定量分析和统计学分析。
2. 显微镜样品的制备
注意:用于显微镜观察的细胞应放置在显微镜盖玻片上,然后覆盖含有营养物质的琼脂糖垫。将盖玻片用胶粘在塑料或金属支架上,以提供机械支撑。在进行显微镜观察前,应提前按照步骤 2.1 - 2.3 所述方法制备一块较大的含 1% 琼脂糖/TPM/0.2% CTT 的琼脂糖垫。有关此处使用的具体产品,请参见材料表。
- 配制 500 mL TPM 缓冲液(10 mM Tris-HCl pH 7.6,1 mM KH2PO4 pH 7.6,8 mM MgSO4),并通过高压灭菌或使用瓶顶滤器过滤除菌。
注:灭菌后的缓冲液可在室温下保存数月。 - 配制含 0.2% CTT 的 1% 琼脂糖显微镜溶液(将 1 g 琼脂糖与 80 mL TPM 缓冲液和 20 mL 1% CTT 培养基混合),在微波炉中加热至琼脂糖完全熔化。
注:0.2% CTT 足以支持细胞生长并防止营养饥饿。显微镜培养基中 CTT 浓度过高会导致背景荧光增强。 - 将熔化的琼脂糖倒入培养皿中,厚度约为 0.5 cm(对于 11.5 cm × 11.5 cm 的方形培养皿,约需 60 mL 熔化的琼脂糖),静置冷却至室温。
注:琼脂糖垫可在 4 °C 潮湿环境中保存最多 2 天。- 使用前,将 1% 琼脂糖/TPM/0.2% CTT 琼脂糖垫在 32 °C 预热至少 15 分钟。
注:为准备用于显微镜观察的细胞,请按步骤 2.4 - 2.8 操作。
- 使用前,将 1% 琼脂糖/TPM/0.2% CTT 琼脂糖垫在 32 °C 预热至少 15 分钟。
- 将一块无菌玻璃盖玻片(60 mm × 22 mm,厚度:0.7 mm)放置在中间带有孔洞的塑料或金属支架上(图 1A);该支架可为薄盖玻片提供机械支撑,并有助于减少显微镜观察过程中的漂移。用胶带将盖玻片固定在支架上。
- 制备支架时,从一块 1 mm 厚的金属板上切割出 75 mm × 25 mm 的框架,然后在其中央切割出适当大小的孔洞(本实验中为 20 mm × 30 mm)。
- 在盖玻片上加入 10 - 20 µL 对数生长期的 M. xanthus 细胞。
- 向细胞中加入荧光标记的 0.5 µm 微球作为定位标记物,以简化延时成像中细胞或蛋白的追踪。
- 用 TPM 缓冲液将微球稀释 1:100,4 °C 保存可长达数月。使用前充分震荡混匀,并向细胞中加入 5 - 10 µL 稀释后的微球。
注:本实验所用微球在常见的蓝色、绿色、黄色和红色荧光通道中均具有荧光信号。
- 用 TPM 缓冲液将微球稀释 1:100,4 °C 保存可长达数月。使用前充分震荡混匀,并向细胞中加入 5 - 10 µL 稀释后的微球。
- 从已预热的大块 1% 琼脂糖/TPM/0.2% CTT 琼脂糖垫上切下一小块,大小与盖玻片相近,将其覆盖在细胞上方(图 1B)。再将一块盖玻片置于 1% 琼脂糖/TPM/0.2% CTT 琼脂糖垫上方,以防止蒸发并维持细胞处于湿润环境中。
注:仅用盖玻片即可有效防止至少 2 小时内的显著蒸发。对于更长时间的延时成像,应使用石蜡膜密封 1% 琼脂糖/TPM/0.2% CTT 琼脂糖垫与盖玻片的夹层结构,以防蒸发。 - 将显微镜样品在 32 °C 下孵育 15 - 20 分钟,使细胞附着于琼脂糖垫底部,随后开始延时显微成像记录。
3. 显微镜设置与延时成像采集
注意:此处描述的实验方案是为配备自动对焦功能、100倍/1.30 数值孔径油镜PH3物镜、X、Y轴电动载物台、sCMOS相机、适用于绿色荧光、红色荧光或黄色荧光蛋白的滤光片以及温度控制培养室的倒置宽场显微镜而开发的。该培养室可使细胞免受光照,并保持恒定的温度。
- 在开始显微成像前约 1 - 2 小时,将培养室和显微镜预热至 32 °C。
注意:根据显微镜配置的不同,加热所需时间可能更长。预热对于减少漂移并稳定自动对焦控制系统至关重要。 - 打开显微镜并启动显微镜控制软件。选择正确的物镜以及用于获取相差图像和绿色荧光、红色荧光或黄色荧光蛋白图像的相应反射镜与滤光片。
注意:显微镜通常配备推荐的控制与图像采集软件。本实验使用一种 commercially available software(见材料表)来控制显微镜和图像采集。 - 在物镜镜头上滴加一滴高质量的浸油,并在已预孵育至 32 °C 的样品底部也滴加一滴。将物镜置于尽可能低的 Z 位置,以避免放置样品时损坏物镜镜头。将带有样品的金属框放置在显微镜载物台上,确保"有孔面"朝向物镜。将样品牢固地固定在载物台夹持器中。
- 通过沿 Z 方向移动载物台使其靠近物镜,对细胞进行对焦。当样品底部的油滴与物镜镜头接触时,应减慢移动速度。在细胞处于焦平面时,沿 X/Y 方向移动载物台,使视野区域内可见多个单个细胞。确保视野区域内至少包含一个荧光微球,以便后续对所采集图像进行对齐。
注意:在理想条件下,每个视野区域(2,048 x 2,048 像素或 133.1 x 133.1 µm)应达到每视野 15 - 30 个细胞的密度。 - 打开显微镜控制软件中的多维采集向导,设置一个时间序列实验,使显微镜能够根据需要在多个波长和多个载物台位置采集图像。
- 在主选项卡中激活时间序列和多波长选项。窗口左侧将出现额外的选项卡。
- 点击保存选项卡,点击选择目录,在计算机硬盘上选择一个空文件夹以保存采集的图像。启用文件存在时递增基础名称,以确保连续的数据集不会覆盖先前的数据。然后为实验命名,包含日期、菌株名称或实验标题。
- 点击时间序列选项卡以调整时间序列参数。将持续时间设为 24 小时,将时间间隔设为 20 分钟。时间点数量将自动更新。
注意:最佳时间间隔取决于具体实验和待分析的细胞功能。频繁成像可能导致光漂白,因此必须通过实验权衡时间分辨率与光漂白效应。在倍增时间为 4 - 6 小时的情况下,相差显微镜可轻松以 5 分钟(或更短间隔)进行图像采集。若需在 24 小时内进行荧光显微成像,则建议以约 15 - 30 分钟的间隔进行图像记录。 - 点击波长选项卡。通过更改数量来设定每个时间点每幅图像需采集的波长数目。
注意:每个波长将在多维采集"向导左侧生成一个新的选项卡,波长将按从上到下的顺序依次采集。每个波长的采集参数可单独调整。 - 点击最上方的第一个波长选项卡。在照明下拉菜单中选择相差模式。将曝光设为 100 毫秒,在采集下拉菜单中选择每个时间点。通过在下拉菜单中选择从不来关闭自动曝光功能。
- 对每个需要在每个时间点采集的波长重复步骤 3.5.5。针对本实验设置及此处描述的荧光标记蛋白,使用以下曝光参数:mCherry 融合蛋白为 250 毫秒,YFP 融合蛋白为 200 毫秒,GFP 融合蛋白为 1,000 毫秒。
注意:每种菌株和荧光蛋白的最佳照明参数应事先通过调整光源强度和各波长的图像采集时间来确定。过长的图像采集时间会增加光毒性效应,最终导致生长停滞和细胞死亡。因此,应在图像质量与细胞活力之间取得平衡。 - 采集多个载物台位置的图像,以增加同一实验中记录的细胞数量。
- 若需采集多个载物台位置的图像,请在主选项卡中激活多个载物台位置。然后点击载物台选项卡,并点击实时按钮以查看视野。
- 沿 X/Y 方向移动载物台,使感兴趣区域(ROI)进入视野。通过点击载物台选项卡中的"+"保存 X 和 Y 坐标。再次沿 X/Y 方向移动载物台,找到新的感兴趣区域,并再次点击"+"保存坐标。重复此过程,直至保存所需数量的区域。
注意:若进行荧光图像采集,应确保各感兴趣区域(ROI)之间距离足够远,以尽量减少光毒性。
- 再次检查细胞是否处于焦点,方法是点击已保存的不同 X 和 Y 位置,并点击AFC 保持启动硬件自动对焦,以在整个实验过程中保持所保存的 Z 位置恒定。
- 在多维采集向导中点击采集,启动显微镜控制软件中的时间序列记录。
注意:每个被采集的波长将弹出一个独立窗口,此外还会出现一个显示已采集时间点数量及下一次图像采集前剩余时间的窗口。 - 在时间序列记录的前几个时间点后,检查细胞是否仍处于焦点,以最大化图像质量,并在必要时重新对焦。
4. 时间序列电影的生成与图像对齐
注意:目前有多种商用和免费的软件包可用于图像采集和图像分析。我们使用一款 commercially available software(参见材料表),该软件配备多种预安装插件及附加工具。
- 将延时记录中的单个图像保存到安装有图像分析/处理软件的计算机上。
- 启动软件,并通过点击以堆栈形式打开图像 审查多维数据 | 选择基础文件 | 选择目录. 打开包含多维数据的文件夹。检查数据集并单击 查看;数据集将显示为从第一个时间点到结束的单张图像。激活波长(以创建堆栈),选择所有应包含在堆栈中的图像,然后单击 加载图像(s)对所有波长重复此步骤,并保存完成的图像序列。
- (可选)使用以下方式打开制作视频所需的全部图像 文件 | 打开.
注意:如果计算能力有限,建议一次仅打开一个波长的图像,以避免计算机运行变慢。如果延时记录的某些部分, 例如开始、结束或多个时间点应被跳过时,可在完成的视频中进行调整。 - 激活需要进行漂移校正的图像序列。通过打开对齐工具 应用程序 | 自动对齐… 检查 堆叠 作为图像的来源 第一平面/时间点 作为参考平面。选择具有该堆栈的 源堆栈 按钮并点击 应用.
注意:自动对齐需要一定时间并消耗计算资源,但它是校正显微镜装置漂移所导致的大图像序列偏移的有效方法。如果图像中包含微球,则自动对齐效果良好,但在无微球的情况下也可能实现。 - 保存对齐后的图像序列。
- 使用感兴趣区域(ROI)。
注意:荧光延时显微镜容易产生大量数据文件,占用大量计算资源,并减慢这些影像的后续处理速度。因此,我们强烈建议识别感兴趣区域(ROIs)并分离细胞,以便处理较小的文件。- 选择 矩形区域 工具。通过在相差图像上手动绘制感兴趣区域(ROI)来圈选目标细胞。确保在整个延时成像过程中,目标细胞均清晰可见且处于焦点范围内。
- 打开同一数据集第二波长的时间序列视频。要将ROI从相差图像转移至第二波长的荧光图像,请使用 转移区域 工具与 区域 | 转移区域选择相差图像数据集作为 源图像 第二个波长数据集作为 目标图像选择 所有地区 并按压 好的.
- 对同一数据集获取的每个波长重复步骤 4.6.2。
- 选择感兴趣区域(ROI)并将其作为图像序列复制 编辑 | 复制 | 堆叠… 或按压 Shift + Ctrl + D 键,然后将复制的堆栈保存为 文件 | 保存 与原始数据放入同一文件夹中。
- 对同一数据集获取的每个波长的每个感兴趣区域重复步骤 4.6.4
- 要生成 MOV 或 AVI 格式的视频,请打开 制作视频 功能通过 堆叠 | 生成视频. 选择具有延时录像的 源堆栈 按钮。选择输出格式、帧率、帧数,然后单击 保存.
结果
M. xanthus 是一种在固体表面移动的生长缓慢的细菌。为了测试我们的实验装置,我们对具有运动能力的DK1622野生型(WT)细胞进行了延时成像实验。在24小时内,每隔5 min采集一次相差图像(图2A, B)。大多数细胞以群体形式排列。与预期一致,细胞表现出运动性,并主要以群体方式移动。我们进一步观察到,细胞偶尔会改变运动方向。这些结果表明,在测试条件下,野生型细胞在细胞运动性方面表现正常。然而,即使每5 min记录一次细胞,仍难以准确识别单个细胞。此外,由于细胞具有运动性,许多细胞会移出或进入视野,导致难以对细胞进行长时间的连续追踪。
为了通过活细胞成像对同一批 M. xanthus 细胞进行多个细胞周期的追踪,可对单个菌株中编码运动所必需蛋白的 mglA 基因进行原位缺失25。该操作可防止细胞在成像过程中移出视野范围。原位缺失突变株的构建方法如 Shi et al.26 所述。
正如预期,在对非运动性 ΔmglA 细胞进行相差活细胞成像时(图3),细胞未表现出主动运动。我们能够追踪单个细胞在微菌落形成过程中的生长与分裂。根据每5分钟采集一次图像、持续24小时的时间序列记录,可实现以单细胞分辨率量化细胞分裂间隔时间(两次细胞分裂事件之间的时间)。ΔmglA 突变株细胞的分裂间隔时间为 235 ± 50 分钟(n = 97 个细胞)。该间隔时间约为4小时,与在悬浮培养中测得的野生型细胞倍增时间相似。这表明在这些实验条件下,M. xanthus 细胞处于最佳生长状态。
为了探究我们的实验装置是否能够在长期追踪YFP标记蛋白的同时允许细胞正常生长,我们对表达YFP标记蛋白的M. xanthus细胞进行了荧光延时成像。为此,我们以ParB-YFP作为复制起点(ori)的标记物进行追踪。ParB是M. xanthus中ParABS系统的一个组分,可结合于ori附近parS位点,因此可以借此观察复制起点的复制以及染色体的分离过程19,20,21。以每20分钟采集一次图像(相差图像和荧光图像,YFP通道曝光时间为200 ms)的条件进行观察时,细胞持续生长、分裂,并在24小时后仍保持活跃生长状态(图4A)。在记录开始时,大多数细胞中ParB-YFP在细胞亚极区形成两个簇状结构(图4A)。在细胞分裂前或分裂后不久,位于旧细胞极的亚极区ParB-YFP簇发生复制。其中一个簇保留在旧细胞极,另一个拷贝则迁移至新形成的细胞极,并在约40–60分钟后到达最终的亚极区位置(图4A, B)。这些观察结果与先前使用薄层琼脂垫进行短时间延时成像所获得的数据一致19。我们得出结论:该实验装置能够在不干扰细胞生长或染色体分离机制的前提下,实现对缓慢生长的M. xanthus细胞中染色体分离过程持续多个细胞周期的荧光延时显微观察。
在一项类似的实验中,我们试图通过延时荧光显微镜观察细胞分裂的标记物。与几乎所有其他细菌相似,M. xanthus 的细胞分裂需要 FtsZ 蛋白,这是一种类似于微管蛋白的细菌 GTP 酶16,17,18。FtsZ 在细胞中部形成环状结构,即所谓的 Z 环,有助于募集细胞分裂所需的所有其他蛋白质27,28。在 M. xanthus 中,Z 环的形成及其在细胞中部的定位由 PomXYZ 三种蛋白质促进16,17。这三种蛋白质形成一个与染色体相关的复合物,该复合物在“母”细胞的分裂位点开始,跨越类核区域,转移至两个子细胞的类核中央。在染色体分离之前,类核的中央位置与细胞中部重合,此处 PomXYZ 复合物募集 FtsZ 并促进 Z 环的形成。
首先,我们观察了表达 ftsZ-gfp 的非运动细胞。由于 FtsZ-GFP 的整体荧光信号弱于 ParB-YFP,我们将 GFP 通道的曝光时间增加了 5 倍,达到 1 秒。正如预期,FtsZ-GFP 仅在细胞中部出现强烈聚集,且该定位决定了细胞分裂收缩的位置(图 5A)。在较长的细胞中,FtsZ-GFP 主要在细胞中部形成一个簇状结构,并且随着时间推移,该簇的荧光强度明显增强。细胞分裂后,我们观察到 FtsZ-GFP 在两个子细胞的细胞中部重新聚集,这一过程大约发生在分裂后 2 小时(图 5B)。该结果与基于快照分析的研究发现一致,即在一个细胞群体中,约有 50% 的细胞在细胞中部显示 FtsZ 的定位16,17。
在第二个实验中,我们观察了非运动性的ΔmglA 表达24小时的细胞 mCherry-pomX作为 PomXYZ 系统的一部分,PomX 有助于引导 Z 环的形成与定位,从而在细胞中部促进细胞分裂16mCherry-PomX 的荧光信号较强,可在荧光通道中使用 250 ms 的曝光时间。重要的是,所有细胞在实验过程中均表现出生长并发生细胞分裂事件,24 小时后形成微菌落。图6A如先前报道16几乎所有细胞都含有一个 mCherry-PomX 簇。其中大多数定位于细胞中部,而偏离细胞中部的簇在实验过程中会移向细胞中部。在细胞分裂过程中,mCherry-PomX 簇被分开,每个子细胞各获得一个簇。与 FtsZ-GFP 不同,mCherry-PomX 在细胞周期的 80 - 90% 时间内定位于细胞中部,并在细胞分裂后很快到达该位置图6B).
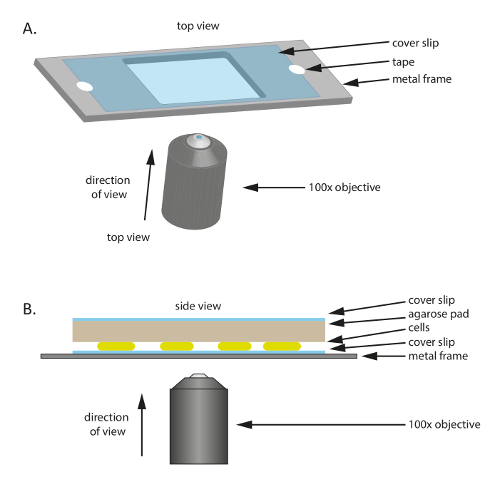
图 1:本研究中使用的实验装置示意图。 (A)金属或塑料框架用作样品的支撑结构。通过胶带将盖玻片固定在金属框架上,以减少样品的移动。(B)实验样品装置的侧视图。细胞被固定在(A)中所示的盖玻片上。为细胞提供营养和湿度的琼脂糖垫置于细胞上方。琼脂糖垫上方再覆盖另一张盖玻片,以减少蒸发。为获得高质量图像,使用100X油浸相位差物镜。请点击此处查看该图的放大版本。
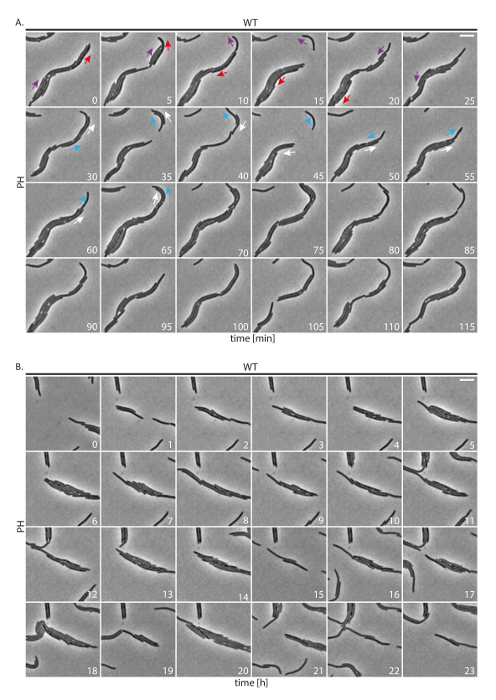
图 2:野生型 M. xanthus 细胞的相差延时显微镜观察。 对细胞连续追踪 24 小时,每 5 分钟采集一次图像。(A)显示同一视野每 5 分钟的代表性图像。彩色箭头指示单个细胞运动的方向。相同颜色标记同一细胞随时间的变化。数字表示时间(分钟)。比例尺:5 µm。(B)显示同一视野每小时的图像。请注意,虽然展示的是同一视野,但由于细胞在移动,细胞会不断进入和离开视野。数字表示时间(小时)。比例尺:5 µm。PH:相差成像。请点击此处查看该图的放大版本。
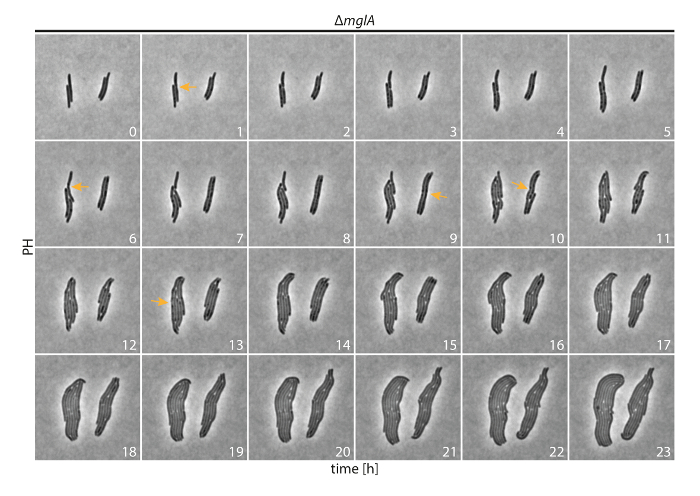
图3:非运动性M. xanthus细胞的相差延时显微观察。对ΔmglA细胞进行了24小时的连续观察。每5分钟采集一次图像,每小时选取代表性图像展示。橙色箭头标示了部分细胞分裂收缩部位。数字表示以小时为单位的时间。PH:相差显微。 请点击此处查看该图的高清版本。
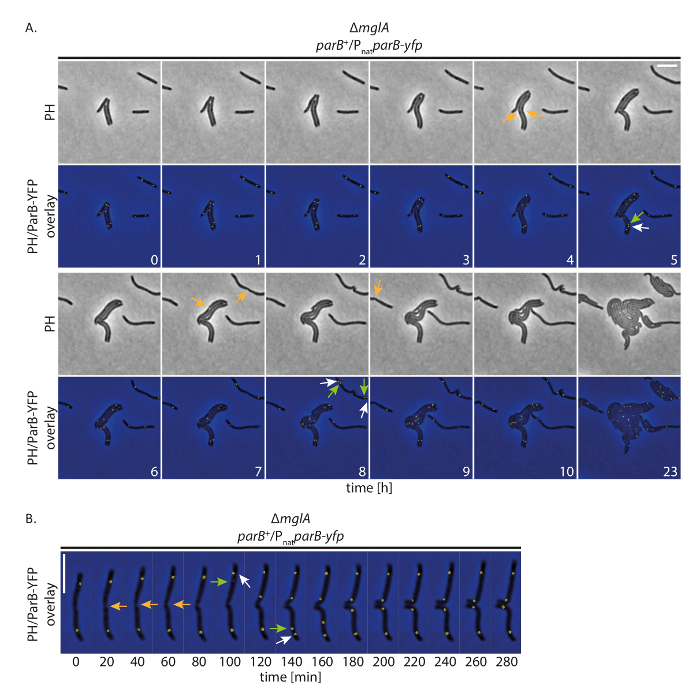
图4:非运动性M. xanthus细胞中ParB-YFP的荧光延时显微成像。对一株ΔmglA突变体(SA4749;ΔmglA;parB+/PnatparB-yfp),在表达parB-yfp且保留内源parB的情况下,通过相差显微镜与荧光显微镜连续追踪观察24小时。(A)每20分钟采集一次图像,展示从开始至10小时期间每小时的代表性图像,以及24小时后的相同细胞。图像以相差模式(PH)显示,并叠加YFP荧光信号。橙色箭头标示了部分细胞分裂事件。白色和绿色箭头标示ParB-YFP簇的复制事件,其中绿色箭头标记正在发生易位的簇。数字表示以小时为单位的时间。比例尺:5 µm。(B)图像采集方式同(A),但以更高的时间分辨率展示。数字表示以分钟为单位的时间。箭头含义同(A)。比例尺:5 µm。 请点击此处查看该图的高清版本。
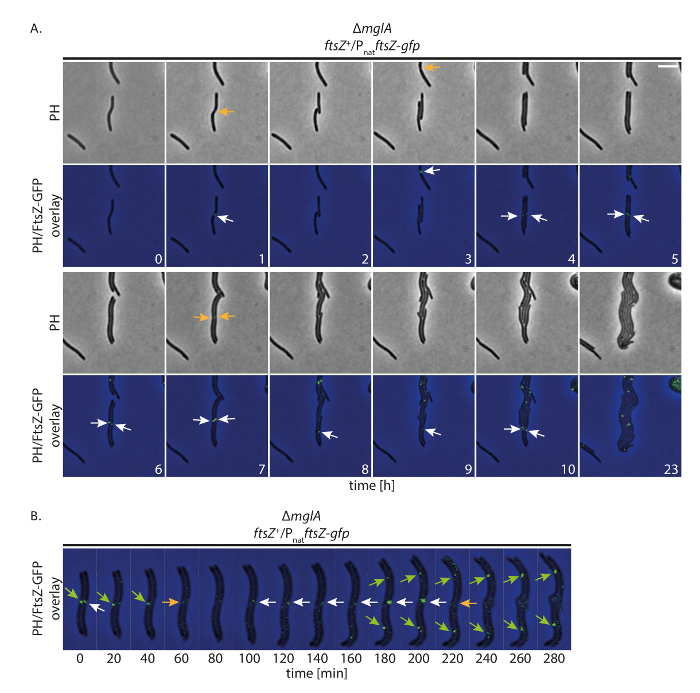
图 5:非运动性 M. xanthus 细胞中 FtsZ-GFP 的荧光延时显微镜观察。 携带 ftsZ-gfp 融合基因且保留内源 ftsZ 的 ΔmglA 突变株(SA8241;ΔmglA;ftsZ+/PnatftsZ-gfp)在连续 24 小时内通过相差显微镜与荧光显微镜进行观察。(A)每 20 分钟采集一次图像,展示从开始至 10 小时每小时的代表性图像,以及相同细胞在 24 小时后的图像。图像以相差模式(PH)及相差与 GFP 荧光信号叠加模式呈现。橙色箭头标记了选定的细胞分裂事件。白色箭头指示细胞中部的 FtsZ-GFP 聚集体。数字表示以小时为单位的时间。比例尺:5 µm。(B)图像采集方式同(A),但以更高时间分辨率展示。数字表示以分钟为单位的时间。绿色和白色箭头分别标记左侧和右侧细胞中的 FtsZ-GFP 聚集体。橙色箭头指示细胞分裂事件。比例尺:5 µm。 请点击此处查看此图的放大版本。
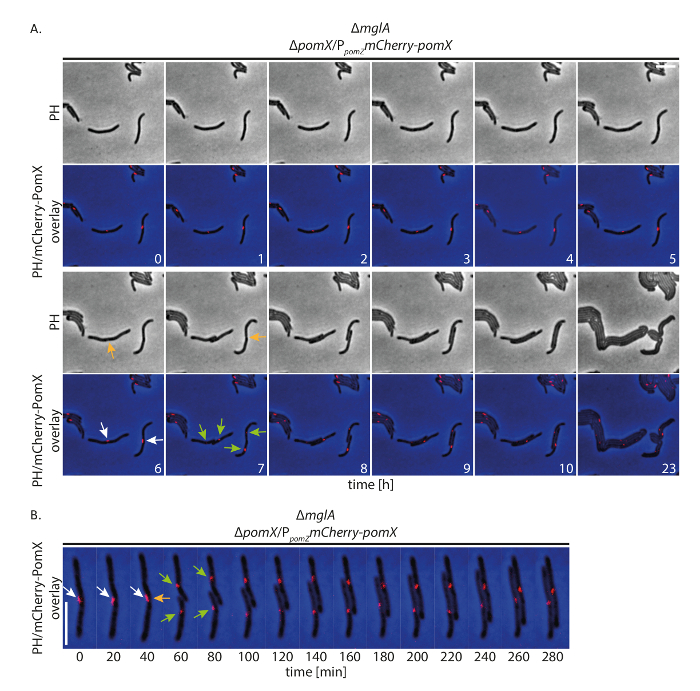
图6:非运动性M. xanthus细胞中mCherry-PomX的荧光延时显微镜观察。 对积累mCherry-PomX的非运动性ΔpomX细胞(SA4797;ΔmglA;ΔpomX/PpomZ mCherry-pomX)进行连续24小时的相差显微镜和荧光显微镜观察,每20分钟采集一次图像。(A) 显示从开始至10小时每小时的代表性图像,以及相同细胞在24小时后的图像。图像以相差模式(PH)显示,并叠加相差与mCherry信号。选定的细胞分裂事件用橙色箭头标记。白色和绿色箭头分别指示分裂事件发生前后的mCherry-PomX簇。数字表示时间(小时)。比例尺:5 µm。(B) 图像采集方式同(A),但时间分辨率更高。箭头含义同(A)。比例尺:5 µm。 请点击此处查看该图的放大版本。
| 细菌菌株 | 相关基因型1 | 参考文献 |
| DK1622 | 野生型 | 23 |
| SA4420 | ΔmglA | 24 |
| SA4749 | ΔmglA;parB+/attB::PnatparB-yfp (pAH7) | 本研究 |
| SA4797 | ΔmglA; ΔpomX/attB::PpomZ mCherry-pomX (pAH53) | 16 |
| SA8241 | ΔmglA;ftsZ+/mxan18-19::PnatftsZ-gfp (pDS150) | 本研究 |
| 括号中的质粒包含指定的基因融合,并整合于基因组的指定位置。 质粒整合于 attB 或该位点 mxan18-19 基因间区域被表达自 其天然启动子(Pnat)或 pomZ 的天然启动子(PpomZ). | ||
表1:本研究中使用的小鼠菌株列表。
| 质粒 | 相关特征 | 参考文献 |
| pAH7 | Pnat parB-yfp;Mx8 attP;TetR | 19 |
| pAH53 | PpomZ mCherry-pomX; Mx8 attP ;KmR | 16 |
| pDS150 1 | Pnat ftsZ-gfp ; mxan18-19 ; 四环素R | 本研究 |
| pMR3691 | 用于香草酸诱导基因表达的质粒 | 18 |
| pKA51 | Pnat ftsZ-gfp ; Mx8 attP; TetR | 17 |
| 1 pDS150:pDS150 是 pKA51 的一种衍生物,其中的 Mx8 attP 位点被替换为 mxan18-19 基因间区 为此 mxan18-19 用引物 Mxan18-19 fwd BsdRI 从 pMR3691 扩增出基因间区 (GCGATCATTGCGCGCCAGACGATAACAGGC) 和 Mxan18-19 rev BlpI (GCGGCTGAGCCCGCGCCGACAACCGCAACC) 并克隆至 pKA51 中。 | ||
表2:本研究中使用的质粒列表。
讨论
荧光活细胞成像已成为研究细菌细胞时空动态的有力工具。然而,对运动性且生长缓慢的细菌(如M. xanthus)进行延时荧光显微成像仍具挑战性,以往仅能在较短时间内实现。本文介绍一种简便且稳健的方法,可用于M. xanthus的延时荧光显微活细胞成像。该方法使研究者能够以单细胞分辨率,连续追踪细胞及荧光标记蛋白在多个细胞周期中的动态变化。
影响慢速生长的M. xanthus细胞活细胞成像成功与否的先决条件包括:1)用于细胞附着的固体表面;2)营养物质和氧气的供应;3)恒定的湿度和温度;以及4)实验条件的优化,如曝光时间和图像采集频率。
在我们的实验设置中,我们使用添加了营养物质的厚层琼脂糖垫。与使用微流控装置追踪单个细胞相比,采用厚层琼脂糖垫具有一些基本优势,但也存在某些局限性。首先,琼脂糖垫不仅为M. xanthus细胞的附着和运动提供了表面,还能提供至少24小时的充足营养以支持其生长。其次,以往对荧光标记蛋白的细胞内定位进行瞬时成像分析时,也常使用相同类型的琼脂糖垫16,17,29。因此,瞬时成像分析所得数据可直接与本方法获得的数据进行比较。第三,琼脂糖垫易于改造,并可添加抗生素或其他添加剂,如常用于诱导基因表达的CuSO4和香草酸18,30。最后,由于在实验过程中允许细胞形成微菌落,该设置还可用于研究直接的细胞间相互作用对所分析特定参数的影响。这一方面对于M. xanthus尤其重要,因为该细菌表现出多种依赖于细胞接触的相互作用。该方法的主要缺点是实验条件在实验期间是预先设定且不可更改的。相比之下,微流控装置通常可在实验过程中通过添加抗生素等方式动态改变实验条件31。
一些免费的软件包(例如,MicrobeJ、Oufti)可用于自动分析单个细胞的生长以及蛋白质在单个细胞内的定位。然而,这些软件仅适用于单细胞或少量细胞群体的分析。因此,对于本文所述的24小时记录所产生的数据,仍难以实现自动化的分析。
综上所述,我们描述了一种简便且可重复的活细胞成像实验方案,适用于生长缓慢的M. xanthus细菌。我们证明,仅需使用添加了简单营养成分的琼脂糖垫,即可维持细菌生长至少24小时,并能够在单细胞分辨率下连续数代观察和分析蛋白质定位及细胞生长情况。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作由德国研究基金会(DFG)在跨区域研究中心174“"细菌细胞的时空动态"”项目框架内以及马克斯·普朗克学会资助完成。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMI6000B 配 AFC | Leica microsystems | 11888945 | 配备自适应聚焦控制的全自动倒置宽场荧光显微镜 |
| 通用安装支架 | Leica microsystems | 11532338 | 适用于不同样品尺寸的载物台支架 |
| HCX PL FLUOTAR 100x/1.30 油镜 PH3 | Leica microsystems | 11506197 | 相差物镜 |
| Orca Flash 4.0 相机 | Hamamatsu | 11532952 | 400 万像素 sCMOS 成像相机 |
| TXR ET, k 滤光片组 | Leica microsystems | 11504170 | 荧光滤光片组,激发光:560/40,发射光:645/75 |
| L5 ET, k 滤光片组 | Leica microsystems | 11504166 | 荧光滤光片组,激发光:480/40,发射光:527/30 |
| YFP ET, k 滤光片组 | Leica microsystems | 11504165 | 荧光滤光片组,激发光:500/20,发射光:535/30 |
| ProScan III | Prior | H117N1, V31XYZEF, PS3J100 | 配备交互式控制中心的显微镜自动化控制器 |
| EL 6000 光源 | Leica microsystems | 11504115 | 外置荧光光源 |
| Incubator BLX Black | Pecon | 11532830 | 环绕显微镜的黑色培养室 |
| Tempcontrol 37-2 digital | Leica microsystems | 11521719 | 培养室自动温控系统 |
| 庆大霉素硫酸盐 | Carl Roth | 0233.4 | 庆大霉素 |
| 土霉素二水合物 | Sigma Aldrich | 201-212-8 | 土霉素 |
| 卡那霉素硫酸盐 | Carl Roth | T832.3 | 卡那霉素 |
| Filtropur BT25 0.2 瓶顶滤器 | Sarstedt | 831,822,101 | 用于缓冲液灭菌的瓶顶滤器 |
| Deckgläser | VWR | 630-1592 | 玻璃盖玻片(60 × 22 mm,厚度:0.7 mm) |
| Seakem LE 琼脂糖 | Lonza | 50004 | 用于显微镜载片的琼脂糖 |
| Leica Metamorph AF | Leica microsystems | 11640901 | 显微镜控制软件及图像分析软件 |
| Tetraspeck 微球,0.5 µm | ThermoFisher | T7281 | 荧光微球 |
| 培养皿 | Greiner Bio-one | 688102 | 120 mm × 120 mm × 17 mm 方形培养皿,用于制备琼脂糖垫 |
| BD Bacto Casitone | Becton Dickinson | 225930 | Casitone |
| Parafilm M | VWR | 291-1213 | Parafilm |
| 三(羟甲基)氨基甲烷 | Carl Roth | AE15.2 | Tris |
| 七水合硫酸镁 | Carl Roth | P027.2 | 硫酸镁 |
| 磷酸二氢钾 p.a. | Carl Roth | 3904.1 | 磷酸二氢钾 |
| 1% CTT 培养基: 1 % (w/v) BD Bacto™ casitone,10 mM Tris-HCl pH 8.0,1 mM 磷酸钾缓冲液 pH 7.6,8 mM MgSO4 | 用于 M.xanthus 的培养基 | ||
| TPM 缓冲液: 10 mM Tris-HCl pH 8.0,1 mM 磷酸钾缓冲液 pH 7.6,8 mM MgSO4 | 用于制备 M.xanthus 显微镜载片的缓冲液 |
参考文献
- Shapiro, L., McAdams, H. H., Losick, R. Why and how bacteria localize proteins. Science. 326 (5957), 1225-1228 (2009).
- Treuner-Lange, A., Søgaard-Andersen, L. Regulation of cell polarity in bacteria. J Cell Biol. 206 (1), 7-17 (2014).
- Laloux, G., Jacobs-Wagner, C. Spatiotemporal control of PopZ localization through cell cycle-coupled multimerization. J Cell Biol. 201, 827-841 (2013).
- Rudner, D. Z., Losick, R. Protein subcellular localization in bacteria. Cold Spring Harb. Perspect. Biol. 2 (4), 000307(2010).
- Badrinarayanan, A., Le, T. B. K., Laub, M. T. Bacterial chromosome organization and segregation. Annu Rev Cell Dev Biol. 31 (1), 171-199 (2015).
- Munoz-Dorado, J., Marcos-Torres, F. J., Garcia-Bravo, E., Moraleda-Munoz, A., Perez, J. Myxobacteria: Moving, Killing, Feeding, and Surviving Together. Front Microbiol. 7, 781(2016).
- Berleman, J. E., Kirby, J. R. Deciphering the hunting strategy of a bacterial wolfpack. FEMS Microbiol Rev. 33 (5), 942-957 (2009).
- Konovalova, A., Petters, T., Søgaard-Andersen, L. Extracellular biology of Myxococcus xanthus. FEMS Microbiol. Rev. 34, 89-106 (2010).
- Nudleman, E., Wall, D., Kaiser, D. Cell-to-cell transfer of bacterial outer membrane lipoproteins. Science. 309, 125-127 (2005).
- Vassallo, C. N., et al. Infectious polymorphic toxins delivered by outer membrane exchange discriminate kin in myxobacteria. eLife. 6, 29397(2017).
- Vassallo, C., et al. Cell rejuvenation and social behaviors promoted by LPS exchange in myxobacteria. Proc Natl Acad Sci USA. 112 (22), 2939-2946 (2015).
- Li, Y., et al. Extracellular polysaccharides mediate pilus retraction during social motility of Myxococcus xanthus. Proc. Natl. Acad. Sci. USA. 100, 5443-5448 (2003).
- Kim, S. K., Kaiser, D. Cell alignment required in differentiation of Myxococcus xanthus. Science. 249, 926-928 (1990).
- Lobedanz, S., Søgaard-Andersen, L. Identification of the C-signal, a contact dependent morphogen coordinating multiple developmental responses in Myxococcus xanthus. Genes Dev. 17, 2151-2161 (2003).
- Schumacher, D., Søgaard-Andersen, L. Regulation of cell polarity in motility and cell division in Myxococcus xanthus. Annu Rev Microbiol. 71 (1), 61-78 (2017).
- Schumacher, D., et al. The PomXYZ proteins self-organize on the bacterial nucleoid to stimulate cell division. Dev Cell. 41 (3), 299-314 (2017).
- Treuner-Lange, A., et al. PomZ, a ParA-like protein, regulates Z-ring formation and cell division in Myxococcus xanthus. Mol Microbiol. 87 (2), 235-253 (2013).
- Iniesta, A. A., Garcia-Heras, F., Abellon-Ruiz, J., Gallego-Garcia, A., Elias-Arnanz, M. Two systems for conditional gene expression in Myxococcus xanthus inducible by isopropyl-beta-D-thiogalactopyranoside or vanillate. J Bacteriol. 194 (21), 5875-5885 (2012).
- Harms, A., Treuner-Lange, A., Schumacher, D., Søgaard-Andersen, L. Tracking of chromosome and replisome dynamics in Myxococcus xanthus. reveals a novel chromosome arrangement. PLoS Genet. 9 (9), 1003802(2013).
- Iniesta, A. A. ParABS system in chromosome partitioning in the bacterium Myxococcus xanthus. PLoS One. 9 (1), 86897(2014).
- Lin, L., Osorio Valeriano, M., Harms, A., Søgaard-Andersen, L., Thanbichler, M. Bactofilin-mediated organization of the ParABS chromosome segregation system in Myxococcus xanthus. Nat Commun. 8 (1), 1817(2017).
- Hodgkin, J., Kaiser, D. Cell-to-cell stimulation of movement in nonmotile mutants of Myxococcus. Proc Natl Acad Sci U S A. 74 (7), 2938-2942 (1977).
- Kaiser, D. Social gliding is correlated with the presence of pili in Myxococcus xanthus. Proc Natl Acad Sci USA. 76 (11), 5952-5956 (1979).
- Miertzschke, M., et al. Structural analysis of the Ras-like G protein MglA and its cognate GAP MglB and implications for bacterial polarity. EMBO J. 30 (20), 4185-4197 (2011).
- Hodgkin, J., Kaiser, D. Genetics of gliding motility in Myxococcus xanthus. (Myxobacterales): Two gene systems control movement. Mol Gen Genet. 171, 177-191 (1979).
- Shi, X., et al. Bioinformatics and experimental analysis of proteins of two-component systems in Myxococcus xanthus. J Bacteriol. 190 (2), 613-624 (2008).
- Bi, E. F., Lutkenhaus, J. FtsZ ring structure associated with division in Escherichia coli. Nature. 354 (6349), 161-164 (1991).
- Lutkenhaus, J., Pichoff, S., Du, S. Bacterial cytokinesis: From Z ring to divisome. Cytoskeleton. 69 (10), 778-790 (2012).
- McLoon, A. L., et al. MglC, a Paralog of Myxococcus xanthus GTPase-Activating Protein MglB, Plays a Divergent Role in Motility Regulation. J Bacteriol. 198 (3), 510-520 (2015).
- Gomez-Santos, N., et al. Comprehensive set of integrative plasmid vectors for copper-inducible gene expression in Myxococcus xanthus. Appl Environ Microbiol. 78 (8), 2515-2521 (2012).
- Treuner-Lange, A., et al. The small G-protein MglA connects to the MreB actin cytoskeleton at bacterial focal adhesions. J Cell Biol. 210 (2), 243-256 (2015).
重印与许可
