本文描述了一种从大鼠视网膜分离小动脉的简便方案,可用于电生理学、钙成像和压力肌动图研究。
本文内容
摘要
摘要
视网膜是一种代谢极为活跃的组织,需要充足的血液供应。视网膜循环为内层视网膜提供支持,而脉络膜血管则为感光细胞供血。视网膜灌注的改变与多种威胁视力的疾病相关,包括糖尿病性视网膜病变、青光眼和视网膜分支静脉阻塞。了解参与调控视网膜血流的分子机制及其在眼病过程中的变化,可能有助于发现治疗这些疾病的新靶点。视网膜小动脉是视网膜主要的阻力血管,因此通过管腔直径的变化在调节视网膜血流动力学中发挥关键作用。近年来,我们已建立了从大鼠视网膜分离小动脉的方法,适用于包括细胞生理学研究在内的多种应用。该制备方法已开始揭示视网膜血流调控的新机制,并使我们能够识别眼病过程中发生的一些关键改变。本文中,我们描述了大鼠视网膜小动脉的分离方法,并提供了其在膜片钳电生理、钙成像和压力肌图研究中的应用方案。这些血管也适用于基于PCR、蛋白质印迹和免疫组织化学的研究。
引言
了解视网膜血流的调控机制是一个重要的研究目标,因为异常的血流已被证实参与多种致盲性视网膜疾病的发病过程1,2,3,4。视网膜循环负责为内层视网膜神经元和胶质细胞供血,其血管结构为终动脉模式,即来自视网膜动脉和小动脉的所有血液均需流经毛细血管,再汇入视网膜小静脉,最终进入静脉5。视网膜内的血流由视网膜动脉和小动脉的张力,以及位于视网膜毛细血管和毛细血管后小静脉壁上的周细胞的收缩活性共同调节6,7,8。视网膜血管张力的调控机制十分复杂,受到循环系统及周围视网膜组织多种信号输入的调节,包括血液气体、循环分子和激素,以及由视网膜血管内皮细胞和大胶质细胞释放的血管活性物质9,10,11。视网膜小动脉是视网膜内的细小动脉分支,由单层血管平滑肌细胞和内层纵行排列的内皮细胞构成12,13,14。这些血管构成了视网膜循环中主要的血管阻力部位,因此在局部调控视网膜血流中发挥重要作用。视网膜小动脉通过血管平滑肌收缩性的变化,调节其管腔直径的舒张或收缩,从而调控视网膜毛细血管的血流10,15,16。因此,要理解视网膜小动脉调控视网膜灌注的分子机制,就需要建立一种能够接近并研究小动脉平滑肌细胞、且尽可能接近生理条件的实验体系。
离体分离的视网膜血管制备物可获取血管平滑肌细胞,同时仍保留其与底层血管内皮细胞之间的功能性和连接性。迄今为止,大多数使用分离血管的研究集中于大型动物(如牛或猪)的动脉血管(60 - 150 µm)。这些血管可安装于市售的导丝式或压力式肌动图系统中,以实现对血管平滑肌细胞收缩机制的药理学研究17,18。此类制备物极大地增进了我们对正常条件下视网膜血管生理学的认识。然而,极少研究采用从小型实验动物中分离的视网膜微动脉,因其直径较小(约 8 - 45 µm),难以适用于传统的肌动图系统19,20,21,22。但使用小型实验动物血管的一个重要优势在于,存在大量可获得的基因修饰、转基因及视网膜疾病模型。此外,小型实验动物也更适用于在体干预研究。
本文介绍了用于压力肌动图实验的大鼠视网膜小动脉分离与套管植入的简便方案。Ca2+ 使用这些血管的成像和电生理学方案也进行了详细说明。这些方法可为进一步了解视网膜血管平滑肌收缩性及血流调节机制提供新的见解。
方案
本文所述所有实验均遵循英国1986年《动物(科学程序)法案》中的规定,并经贝尔法斯特女王大学动物福利与伦理审查委员会批准。
1. 视网膜小动脉的分离
注意:以下方案用于分离视网膜小动脉。该方法针对大鼠视网膜小动脉优化,但也可用于小鼠视网膜。然而,使用小鼠时血管的收获量较低。
- 配制含低 Ca2+ 的 Hanks 液(LCH),配方见表1。
注意:该溶液可在 4 °C 下保存最多 3 天(使用储存的 LCH 时,使用前应确保其恢复至室温且 pH 值正确)。 - 在组织取材前准备好以下设备,以确保视网膜快速进行显微解剖:齿状镊、弯剪、解剖皿(硅胶包被的培养皿)、单刃刀片、两套钝头镊子、1 支玻璃巴斯德吸管(火焰抛光至平滑但不狭窄的尖端)、1 支一次性塑料移液管(剪去尖端以增大孔径至约 5 - 7 mm)、1 个玻璃圆底试管(5 mL)及试管架。将约 50 mL LCH 倒入玻璃烧杯中,并另备一个烧杯用于盛放废液。
注意:设备规格及生产厂家信息见材料表。 - 采用 CO2 处死大鼠,随后进行心脏穿刺放血(避免采用颈椎脱位或震荡法,因其可能损伤眼部血管)。用齿状镊拉开眼睑,再用弯剪剪除眶周肌肉并切断视神经。轻柔地将眼球从眼眶中取出,同时用剪刀剪断任何残留的连接组织。
- 将眼球浸入 LCH 溶液中置于解剖皿上(如需运输,可将眼球置于含 LCH 溶液的冰上)。用一套钝头镊子夹住眼球的眶周肌肉附着点或视神经,将眼球固定在解剖皿上;固定点应尽可能靠近巩膜,以稳定眼球。
- 使用刀片沿锯齿缘(ora serrata)切开角膜,并用镊子轻压巩膜以取出晶状体。
- 沿视盘对称地将眼杯切成两半。用闭合的镊子轻轻“刷”出眼杯两半部分中的视网膜,注意清除视盘处任何残留的连接组织。对另一只眼重复此操作,并用塑料移液管及少量 LCH 培养基将分离的视网膜转移至试管中。
- 用塑料移液管向试管中加入 LCH 至约 5 mL,使视网膜自然沉降至管底。
- 用塑料移液管吸出约 4 mL 溶液并加入新鲜 LCH,重复洗涤组织约 3 次。必要时,去除悬韧带、玻璃体及毛发等多余组织。
- 用 LCH 冲洗玻璃巴斯德吸管内壁(抛光尖端),防止组织黏附。用同一吸管从试管中吸出约 4 mL 溶液,然后加入约 2 mL 新鲜 LCH。
- 通过缓慢地将组织吸入并推出玻璃吸管尖端,轻柔地进行视网膜解离(吹打)。注意,此步骤应尽量避免产生气泡。
- 重复步骤 1.10,直至视网膜被分散成约 2 - 3 mm2 大小的组织块。
- 用约 2 mL LCH 冲洗吸管内壁,并将冲洗液排入试管中。静置 5 - 10 分钟,使内容物沉降至管底。
- 按照步骤 1.10 - 1.12 所述,再次进行吹打操作,力度稍大,直至组织块大小约为 1 mm2 。再次静置 5 - 10 分钟,使组织沉降。
- 以更大力度重复步骤 1.10 - 1.12 第三次,直至内容物完全均质化,无任何视网膜组织残留(溶液应呈现乳白色)。
注意:该技术每次分离可获得最多 8 段小动脉 (基本去除周围神经组织,部分分支保持完整),其直径为 8 - 45 µm,长度为 200 - 2500 µm。 - 将少量分离得到的血管转移至生理记录室,或加入荧光染料以检测细胞内 Ca2+ 浓度([Ca2+]i;见第 3 节)。根据当地动物废弃物处理规定,妥善处置眼杯残余物及分离过程中弃去的溶液。
注意:尽管建议在分离后立即进行实验,但多余的分离物可在 4 °C 下保存最多 8 小时。
2. 小动脉压力肌动描记术
注意:小动脉压力肌动图实验使用图1A、B及材料表中详述的设备进行。
- 将一份视网膜血管匀浆液(1–2 mL;按第1节所述方法分离)转移至生理记录槽(预先加入不含钙的生理溶液至半满)2+无钙Hanks液;0Ca2+ Hanks';参见 表1) 置于倒置显微镜载物台上。实验前至少静置5分钟,使血管沉降至记录室底部。
- 在记录室中进行视觉扫描以识别小动脉 > 200 µ长度约为 m,且具有一端开口,可用于血管套管插管(血管类型的鉴定将在结果部分进一步探讨)。将血管置于视野中央。若无合适的血管,可按照步骤 2.1 将另一份血管匀浆液转移至记录室中。
- 使用精细镊子和一根细钨丝(75 μm)固定血管的一端 µm 直径,长约 2 - 4 mm)置于血管上(参见 图1C(i) 为此,用镊子夹住导线,并将镊子置于记录室上方。
- 在显微镜下识别镊子对应的阴影,将镊子缓慢 lowered 至灌流槽中,直至看到金属丝。将金属丝置于血管上方,位置大约为200 µ从开口端约 m 处将导丝垂直于血管长轴放下。
注意:钨丝的重量足以在插管和加压过程中远端阻断血管,阻止管腔内容物的流动。
- 在显微镜下识别镊子对应的阴影,将镊子缓慢 lowered 至灌流槽中,直至看到金属丝。将金属丝置于血管上方,位置大约为200 µ从开口端约 m 处将导丝垂直于血管长轴放下。
- 将动脉小段移至记录室内的合适位置,使其水平横跨浴槽,且开口端与加压套管对齐(参见 图1C(ii-iv))。通过用镊子夹持的另一段金属丝轻轻推动阻塞用的钨丝环来完成此操作;切勿触碰微动脉,否则其会不可逆地黏附在镊子上。
- 必要时(对于较长的动脉段),在血管上增加额外的钨丝环,使血管闭塞端与开放端之间的距离不超过200 µm;这有助于防止加压时微动脉移出视野。如果血管有侧支,也应使用额外的钨丝环将其阻塞。若侧支无法阻塞,则应弃用该血管。
- 用无钙溶液灌注腔室2+ Hanks' 溶液,37℃ °C 以去除多余的视网膜组织并将浴槽加热至生理温度。
注意:可使用标准的重力供给式浴槽灌流和管路加热系统(参见 图1A0Ca2+ Hanks 液用于促进插管操作,因为去除外部 Ca2+ 确保小动脉保持扩张状态。 - 使用带纤维的硼硅酸盐玻璃毛细管(尖端直径约 3 - 10)制作加压套管 µm,具体取决于待插管血管的直径;较细的血管需要更细的插管;参见 材料表)使用微电极拉制仪制备并用0Ca溶液反向填充2+ Hanks 溶液。确保套管的管身向尖端方向逐渐变细,以利于插管。
- 将套管安装在移液器架上,通过Y型连接器和三通旋塞与10 mL注射器相连;该装置用于对系统加压,压力通过连接在Y型连接器另一侧管臂上的压力计进行记录(参见 图1B).
注意:需要使用一支“辅助”移液管以协助插管过程。该移液管应由硼硅酸盐玻璃毛细管在微电极拉制仪上拉制而成,尖端直径为0.5 - 2 µm. 使用显微拉针仪将移液管进行充分的火焰抛光(通常直至尖端闭合)。 - 使用三轴机械操纵器,将辅助移液管小心地垂直于血管长轴并靠近开口端放置(参见 图1D将辅助移液管置于血管正上方,但不要接触血管。
- 将灌注管置于血管的开口端(参见 图1D 和 2A(i) 使用精细的显微操作器,将导管尖端置于开口附近,通过调节显微镜(20倍)的焦平面来判断位置。当血管末端与导管尖端同时处于焦点清晰状态时,表明导管已准确定位,可进行插管(参见 图 2A(ii)
- 使用精细显微操作器的x轴控制装置,将加压套管推进至血管开口处(参见 图 2A(iii) 通过沿 y 轴移动导管来评估插管是否成功。如果导管保持在血管内,则表明插管成功(参见 图2A(iv) 如果导管移出血管,则导管很可能位于血管上方;此时应在z轴上将导管置于较低平面,重复步骤2.10–2.11。
- 成功插管后,轻轻将辅助移液管下放至血管以固定小动脉。同时用辅助移液管引导小动脉管壁套入加压灌注管,与此同时将插管移液管进一步推进血管腔内约30 - 50 µm(参见 图 2A(v,vi)。
注意:该操作需要同时控制两个操纵器进行协调移动(辅助移液管向套管移动的同时,套管进入血管管腔),需经过大量练习才能获得较高的成功率。 - 将灌流液更换为含 2 mM Ca 的正常 Hanks 液2+ (参见 表1) 在 37 °C. 通常这会导致小动脉轻微收缩,并在加压套管周围形成紧密的封接。随后可将辅助移液管移离血管。
- 静置15分钟,使密封充分形成。使用连接至显微镜的USB摄像头(及图像采集软件)观察血管,并调节焦距,以最大程度增强血管边界与外部及管腔内空间之间的对比度(参见 图2B以每秒0.5至5帧的速度对血管进行成像。
- 记录 0 mmHg 压力下 1 分钟后,通过关闭连接至加压套管的三通阀,将管腔内压力升高至所需水平(参见 图1B)并通过注射器向系统施加少量正压。观察压力计上的压力变化。
注意:压力可逐步增加至100 mmHg,或直接加至某一特定值,例如40 mmHg(接近视网膜小动脉压力) 在体内)23血管应迅速扩张,以确认插管成功。请注意,压力诱导的血管收缩(即, 肌源性反应将在15分钟内逐渐形成,但由于这些血管体积较小,该反应并不总是能通过肉眼观察到。 - 在初次加压过程中仔细监测血管是否存在明显泄漏。泄漏可能源于被切断的侧支或套管与小动脉内壁密封不充分。
- 注意观察管腔内容物是否流出血管。较小的、不明显的渗漏可能随时间推移在压力计上表现为压力下降而显现。如有可能,用额外的钨丝夹闭合开口,注意避免扰动套管。将存在明显渗漏的标本排除在后续分析之外。
- 根据实验目的,在加压15分钟之前或之后,将目标药物从血管外腔施加于血管(前者可用于确定药物对肌源性张力发展的效应,后者则可用于分析药物对稳态肌源性张力的影响)。典型的药物递送系统如图所示 图 3A.
- 将灌注出口垂直置于目标血管段(如图所示) 图1D)在约 500 的距离处 µm 远离目标血管,注意确保出口角度最佳,以充分灌流该区域(参见 图3B确保灌注变化不会对血管造成物理性扰动。
- 实验结束后,加入0Ca溶液2+ Hanks 液,含 10 µM wortmannin(肌球蛋白轻链激酶抑制剂)以最大程度地扩张血管,从而测定其被动直径。
注意:可在实验结束时通过升高管腔内压力来检测灌注密封的强度 >100 mmHg。大多数血管即使在此高压下仍会保持附着,表明形成了紧密的密封。 - 使用边缘检测进行离线分析,以追踪小动脉直径的变化(参见 材料表 将微动脉直径归一化为被动直径,以便在不同血管之间进行比较。
3. Ca2+ 成像
注意:分离的视网膜小动脉按如下步骤进行制备,用于常规(微荧光测定法)和共聚焦 Ca2+ 成像(所用设备详见材料表)。
- 在5 mL玻璃试管中按照第1节所述方法制备视网膜匀浆液。向1 mL视网膜匀浆液中加入Fura-2AM(微荧光法Ca²⁺指示剂),终浓度为4 μM,并加入0.02% Pluronic F-127。将混合物在室温下避光孵育45分钟,期间每隔10分钟轻轻涡旋混匀一次。孵育结束后,将样品在4°C下以12,000 × g离心10分钟。弃去上清液,将沉淀重悬于1 mL Hanks平衡盐溶液(HBSS)中,用于后续钙成像实验。2+ 记录)或 Fluo-4AM(共聚焦 Ca2+ 成像)以获得终浓度为 5 µM(避光保存);染料指示剂优先加载至平滑肌细胞。
- 室温避光孵育2小时,每15至20分钟轻摇管壁,使视网膜组织重新悬浮。随后,用LCH溶液将匀浆按1:4比例稀释,以减少染料的进一步加载。
注意:血管在4°C下储存时可保持活性长达6小时 °C且在避光条件下);但建议尽快开始实验,以减少染料在细胞器内的区室化或随时间推移被细胞外排的影响。 - 将1-2 mL视网膜匀浆液转移至置于倒置显微镜载物台上的玻璃底记录室(内已部分填充LCH),该显微镜连接有Ca2+ 微荧光测定或共聚焦显微镜系统
- 将小动脉锚定在记录室中,使其与血流方向垂直,使用钨丝固定(50 µ微米直径,2 - 4 毫米长,间距约 100 - 200 µm 间隔沿血管长度分布(参见 图3C)采用与步骤 2.3 中所述相似的技术。
- 用正常 Ca 灌注浴液2+ 37℃的Hanks溶液 °C. 按图示位置放置药物输送出口 图3C 并按照步骤 2.17 所述向血管施加药物。
- 对于常规 Ca2+ 成像时,通过油浸紫外物镜以340/380 nm光照射血管例如, 100倍,数值孔径1.3)并通过光子计数型光电倍增管(PMT)在510 nm处收集发射荧光。
- 每次实验结束时,通过含 MnCl 溶液淬灭血管以测定背景荧光(参见 表1)。使用经背景校正的荧光比值(R-F340/F380)进行分析,或将其转换为细胞内Ca²⁺浓度2+ ([Ca2+]i)使用 R分钟 和 R最大 测量(见表1;在淬灭前施加)24)和 Grynkiewicz 方程25.
- 对于共聚焦钙成像2+ 成像时,在488 nm激发Fluo-4负载的血管,并在490–535 nm范围内采集线扫描模式(xt)或xyt扫描模式(512 × 512像素;建议针孔为300 nm)下的荧光发射信号。将测量值归一化为t=0 s时记录的荧光强度(F/F₀)0). 评估 [Ca2+]i 在使用图像分析软件对特定兴趣区域(ROI)进行离线药物应用或加压时。
- 如有需要,可进行 Ca2+ 结合压力肌动图进行成像。
注意:上述描述已针对未加压血管进行了优化;然而,也可以结合 Ca2+ 采用压力肌动图进行成像,步骤如下。- 按照第1节所述分离小动脉。用Ca负载2+ 指示剂染料按照步骤3.1–3.2操作。将小动脉转移至记录室,并按照第2节进行套管插管。在安装过程中注意避免光照。
- 测量 Ca2+ 如上文步骤 3.5 或 3.7 所述。加压血管并重复 Ca 测量2+. 同时测量血管直径依赖于Ca的模式2+ 测量与所用设备
注意:对于共聚焦 Ca2+ 由于染料在长时间光照下可能发生漂白,因此在加压前后可能需要分别成像不同区域以进行测量。
4. 膜片钳电生理学
注意:可对仍嵌于其母体小动脉内的单个 arteriolar 平滑肌细胞进行全细胞和单通道记录,具体方法如下(所用设备详见材料表)。
- 按照步骤1、2.3和3.3所述,在记录室中分离并固定视网膜小动脉。进行膜片钳记录时,钨丝支架间距为200 - 800 µ沿血管间隔 m。
- 在进行膜片钳记录之前,去除包绕微动脉的基底膜,并使相邻的平滑肌细胞与下方的内皮细胞实现电去耦联。为此,需用一系列酶溶液依次灌流血管(表1) 在 37 °C 下孵育所需时间。
注意:酶作用时间针对大鼠视网膜小动脉进行了优化(蛋白酶约8分钟;胶原酶约12分钟),并取决于药物递送系统的流速(本实验装置约为1 mL/min)以及所用酶批号的单位活性。 - 在胶原酶消化步骤中,通过观察内皮层与平滑肌层的视觉分离情况来评估消化程度,如图所示。 图4. 一旦观察到细胞层分离(如图所示) 图 4B),加入DNA酶I溶液(约4分钟),然后通过更换为正常含钙浴液终止消化。2+ Hanks' 溶液
- 用精细镊子的闭合尖端沿血管表面轻轻扫过,以去除残留的基膜和/或周围神经网。
- 拉制并抛光玻璃毛细管(材料表),用移液管溶液填充(表1)并牢固地放置在膜片钳头阶段的移液管架中。将移液管置于45°角位置° 调整相对于记录室的角度,并使用电动显微操作器的粗调装置将其推进至血管处。
- 选择一个从血管壁突出且表面无可见碎屑的平滑肌细胞(参见 图4B将膜片钳电极尖端垂直置于目标细胞上方,利用显微操作器的微调/慢速移动功能缓慢下降,直至与平滑肌细胞膜接触。
- 通过观察细胞运动以及使用采集软件中的膜片(封接)测试程序测量的移液管电阻变化来评估细胞与移液管之间的接触情况(从0 mV施加5-10 mV的负电压阶跃,频率25 kHz;参见 图5A(i)
- 当封接电阻增加5倍时(例如, 从 2 到 10 M 上升Ω; 图 5A(ii) 通过连接在移液管持架上的Y型接头、三通旋塞、注射器和管路,瞬时对移液管持架后端施加负压(组装方式类似于小动脉加压系统,参见 图1B).
- 重复施加负压,直至形成吉欧封接(gigaseal)>1 GΩ 阻力;由采集软件中的膜测试所示)形成(图5A(iii)注意,此过程可能需要1 - 5分钟。若未能形成吉欧封接(gigaseal),应更换另一个细胞,并使用新的膜片钳移液电极进行膜片钳记录。
- 通过采集软件根据所进行的实验向细胞施加钳制电位(通常为 0、-40 或 -80 mV)。
- 在当前构型下研究(贴附细胞)单通道活性。或者,在形成吉欧封接后,通过快速将记录电极从细胞表面撤回,制备内面向外膜片。
- 由于膜的游离端在这些条件下可能重新退火,因此需通过操纵器的快速垂直移动(粗调档位)将移液管迅速移出浴液。快速穿过弯月面以去除重新形成的膜,仅保留移液管尖端内的膜片。
- 将采集软件的采样频率设置为 5 KHz,并启动连续记录模式以记录通道活性。如有需要,通过软件或放大器施加电压变化。
- 必要时,按照步骤 2.17 所述将药物施加于血管/膜片。
- 若需要进行膜牵拉,使用连接至压力计的三通阀和Y型接头上的注射器,对移液管后端施加负压。
- 按照标准程序分析单通道记录的开放概率和单通道电导26.
- 用于全细胞电流记录时,按以下步骤拉制和抛光移液管 材料表,用含有两性霉素B的移液管溶液填充(将3 mg两性霉素B加入50 µL 的 DMSO;加入 3-6 µ将上述溶液取 L 加入 1 mL 全细胞移液电极溶液中;超声处理以混匀,并按照步骤 4.6 - 4.9 形成封接。
- 由于加入了两性霉素B,无需刺破移液管尖端内的膜即可获得全细胞记录。使用采集软件中的膜测试程序监测通道的逐步形成(从-40 mV施加-20 mV电压阶跃,采样频率25 KHz;参见 图 5B).
- 某些软件对电容瞬变进行自动拟合,可实时测量接入电阻和细胞电容(也可通过肉眼评估瞬变信号的相对下降程度)。一旦接入电阻降至 < 15 MΩ,进行串联电阻补偿(图 5C使用放大器上的全细胞参数调节旋钮(电容和串联电阻)进行调节。
- 为此,使用自动拟合值初步设置旋钮(参见 图 5C(ii)然后增加串联电阻补偿旋钮(如果放大器具备,需同时调整预测和校正),在减小电容瞬变的同时重新调整全细胞补偿 图 5C(iii)
- 注意不要过度补偿(如图所示) 图 5C(iv)在穿孔膜片钳模式下,通常可将串联电阻补偿75%(需要将滞后补偿设置为最大值)。
- 如果无法使用自动拟合,首先将全细胞参数旋钮设置为 15 pF 和 15 mΩ (这些细胞的典型值),然后进行调整以获得如图所示的输出结果 图 5C(ii). 将串联电阻补偿旋钮调至约75%,并根据情况重新调整全细胞参数旋钮 图 5C(iii)
- 在开始实验之前,记录细胞电容测量值,该值可来自初始自动拟合结果或手动补偿后旋钮上的读数。
注意:该值用于将电流归一化至细胞大小。由于两性霉素B持续进入膜片,接触电阻可能进一步改善,因此在实验过程中可能需要调整串联电阻补偿。 - 按照步骤2.17所述向血管施加药物。根据实验需求施加电压方案(包括阶跃或斜坡电压)。
注意:典型的电压阶跃方案, 持续时间为 0.1 - 1 秒的刺激,从保持电位开始,以 10 - 20 mV 的增幅,每隔 5 - 10 秒施加一次,以产生一组电压激活的电流。或者,可采用斜坡刺激程序,通过以缓慢速度(100 - 200 mV/s)改变电压,在一次“扫描”中测量一系列电压下的电流。 例如, -80 至 +80 mV(每 5-10 秒施加一次),在斜坡电压期间以 10 mV 间隔离线采集电流。 - 可以结合 Ca2+ 成像与膜片钳记录操作步骤如下:按照第1节方法分离小动脉,并用Ca2+ 指示剂染料按照步骤3.1-3.2进行操作。按照第4节所述将样品安装至记录室。在上述操作过程中应注意避免光照。
注意:迄今为止,由于酶解离过程中基底膜和血管完整性的丧失,尚无法将膜片钳技术与压力肌动图研究相结合
结果
图6A展示了大鼠视网膜血管树的示意图。在本实验室中,通过共聚焦显微镜对经α-平滑肌肌动蛋白免疫组织化学标记的大鼠视网膜全层铺片进行成像,已实验验证第一级(30 - 45 µm)、第二级(20 - 30 µm)和近毛细血管前小动脉(8 - 20 µm)的管径范围(图6B)。在视网膜组织解离后,可根据血管口径以及血管平滑肌细胞的排列情况,识别出初级、次级和近毛细血管前小动脉。在明场显微镜下,第一级和第二级小动脉在形态上视觉相似,但可根据其尺寸加以区分(图6C)。近毛细血管前小动脉是制备样本中最小的动脉血管,因其血管平滑肌纤维分布较为稀疏而易于辨认。在分离过程中,可将分离出的小动脉与毛细血管和微静脉明确区分。毛细血管表现为小口径(直径4 - 10 µm)血管组成的网状结构,而微静脉管壁较薄,且无平滑肌细胞包被(图6C)。初级、次级和近毛细血管前小动脉适用于压力肌图法、Ca2+成像以及膜片钳研究。
图7 显示了一项压力肌动描记实验,其中一条原代大鼠视网膜小动脉已被插管,并将管腔内压力升高至40 mmHg。随后在此压力下维持该小动脉,以使其在加入0Ca前充分形成肌源性张力。2+ 含Hanks' 10 µM 使用渥曼青霉素(wortmannin)以获得血管的被动直径。 图7A 展示了实验过程中不同时相点微动脉的显微照片。完整的时程记录已绘制成血管直径随时间变化的曲线图 图7B 使用定制的边缘检测软件27加压后血管立即扩张,随后发生主动的肌源性收缩,并在15分钟后达到稳态水平。添加0Ca2+ Hanks'/wortmannin 溶液可使血管扩张至接近初始加压后所观察到的水平。如上所述,可在加压前或加压后向血管施加药物,以研究这些血管中肌源性张力形成与维持的潜在机制。利用该方法,我们先前已证实,牵张激活的瞬时受体电位香草素2(TRPV2)通道以及L型和T型电压门控Ca2+ 通道在促进大鼠视网膜一级和二级小动脉肌源性张力的形成中起核心作用20,21,22我们还报道过,大电导Ca2+ 激活的钾通道(BK通道)19,28 和 Kv含电压门控K的1+ 通道的作用是抑制这些血管的肌源性活动,因为加入针对每种通道的特异性抑制剂均会引发血管收缩(图7C).
图8 展示了视网膜小动脉在暴露于血管收缩肽内皮素-1(Et-1)前后,常规与共聚焦Ca2+成像的示例。在基于fura-2的常规记录中(图8A),Et-1(10 nM)引起视网膜小动脉平滑肌层[Ca2+]i呈双相性升高,表现为一个初始的瞬时成分,随后是一个较低水平的持续成分。我们先前已将瞬时成分和持续成分分别归因于内质网中Ca2+的释放和细胞外空间中Ca2+的内流29。基于fluo-4的共聚焦Ca2+成像可更详细地揭示Et-1在细胞水平上的作用。在这些实验中可以明显看出,在微荧光测定研究中观察到的全局[Ca2+]i的平滑渐进性变化,是由于Et-1刺激了血管壁上相邻视网膜小动脉平滑肌细胞中重复性非同步[Ca2+]i振荡的激活所致(图8B、C;30)。
图9 展示了视网膜小动脉平滑肌细胞的单通道和全细胞膜片钳记录实例。迄今为止,我们已进行了细胞附着式和内面向外式单通道膜片钳记录22,28. 图 9A,例如B,显示了在膜拉伸(通过向膜片电极施加负压产生)之前和之后的细胞附着式膜片钳记录。该特定膜片包含两个由机械拉伸激活的通道。我们先前已证明,这些电流可通过使用TRPV2通道孔阻断抗体来抑制22通道的单通道电导(249.71 pS)也与这些电流由TRPV2介导相符31.
通过电压阶跃方案可诱发全细胞电压激活电流。图9C展示了采用该方法记录到的一组电压激活的A型K+电流。当使用特异性药理学试剂阻断这些细胞中其他较大的电流(例如,BK电流和Ca+激活的Cl- 电流)后,这些电流便显现出来32,33。对于非电压依赖性或弱电压依赖性的离子通道电流,通常采用电压斜坡方案进行检测。我们已利用此类方案在视网膜小动脉平滑肌细胞中鉴定并表征了由低渗牵张22和通道激动剂激活的TRPV2电流(图9D)。
图10 展示了在原代大鼠视网膜小动脉中应用的双压力血管造影与共聚焦Ca2+成像。加压可引发单个平滑肌细胞内[Ca2+]i振荡频率增加,类似于内皮素-1(Et-1)诱导的现象。我们先前已证实,这些振荡由Ca2+火花(局部Ca2+释放事件)的叠加所触发,并参与肌源性张力的形成20。
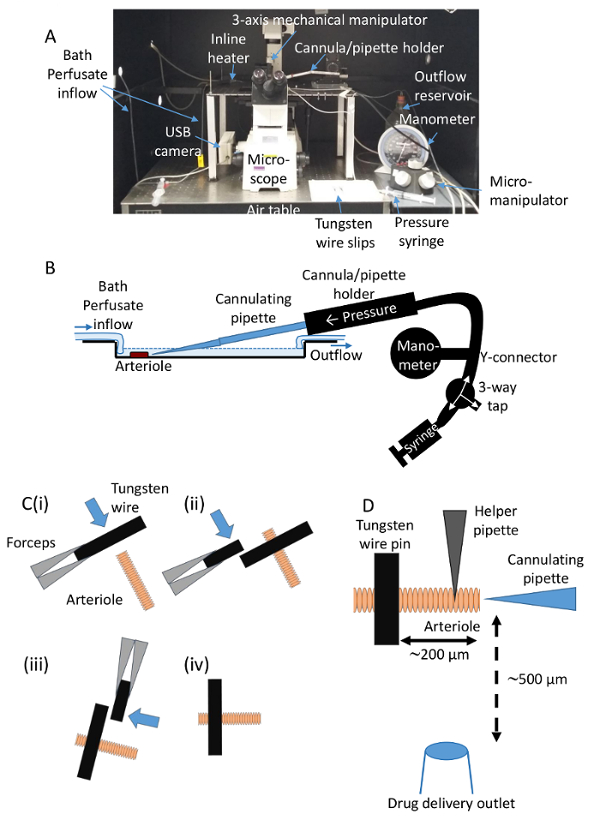
图1. 大鼠视网膜小动脉压力肌动图实验装置A实验设备包括倒置显微镜、用于浴式灌流液的在线加热器、三轴机械和微操纵器、压力计、灌流套管固定器以及气浮台。 B示意图显示了记录室中灌注移液管与目标血管的最佳排列方式。该图还展示了加压设备的基本设置。 C) 示意图显示了使用持于精细镊子中的额外钨丝环固定和移动血管的过程。(i) 滴加1st 滑动以夹闭血管。(ii,iii)使用额外的夹子推动夹闭用的夹子(箭头所示方向)及其伴随的血管,调整至(iv)所示的最佳位置。 D示意图显示了套管插管前钨丝阻断环、辅助移液管和套管相对于血管的最佳位置。药物输送系统的出口置于距离约~ 500 µm 从容器中减少给药过程中的运动伪影。 请点击此处以查看此图的放大版本。
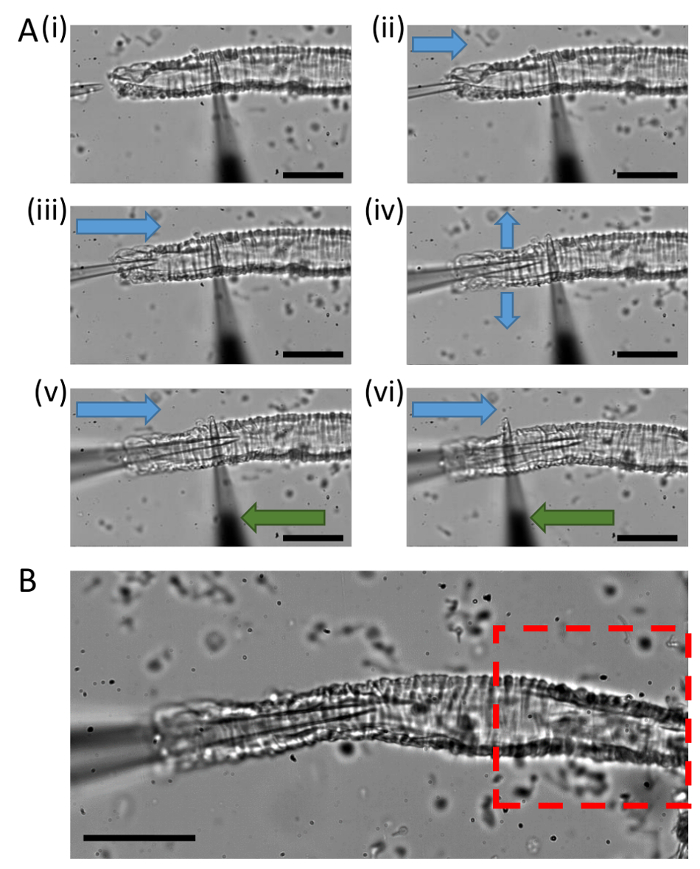
图 2. 压力肌源性血管造影的插管过程。A)显微照片显示视网膜小动脉在记录室中固定后,插管前(i)、插管过程中(ii)–(v)及插管完成后(vi)的情况。蓝色箭头指示插管针的移动方向,绿色箭头指示辅助移液管的移动方向。B)显微照片显示在加压过程中用于记录肌源性活动的最佳区域(以红色高亮显示)。注意,调节光照和焦距以增强血管壁的对比度,有助于在自动分析中更准确地追踪血管边缘。比例尺为 50 µm。请点击此处查看该图的放大版本。
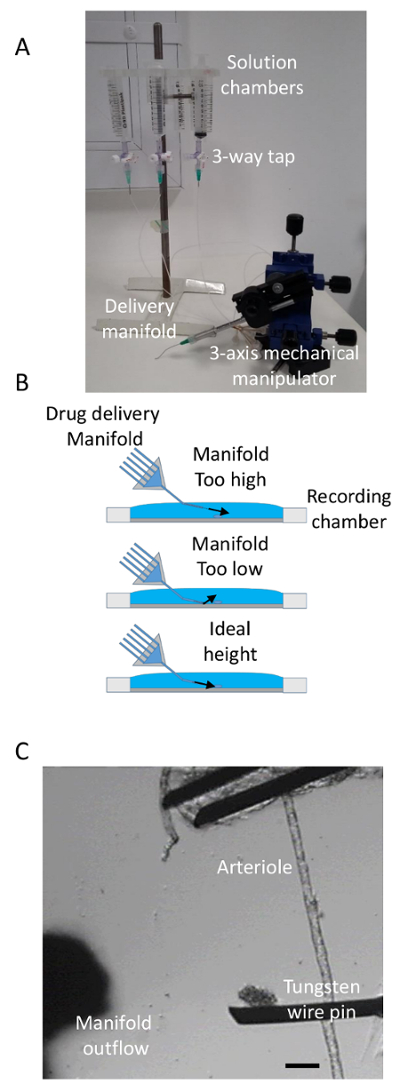
图3.药物递送。 A) 用于药物递送的设备,显示连接至多通道递送歧管的溶液储液器,歧管由三通阀控制,并连接至三轴机械操纵器。 B) 示意图显示药物递送歧管相对于记录室的最佳垂直位置。 C) 记录室内固定血管的显微照片,显示药物递送出口的理想位置。比例尺为 100 µm。 请点击此处查看该图的放大版本。
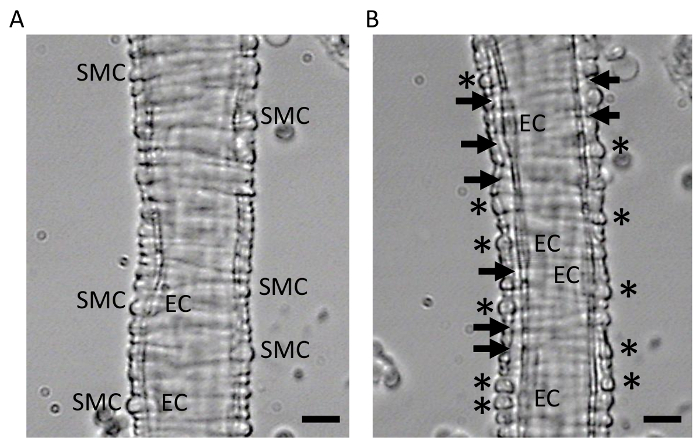
图 4. 视网膜小动脉用于膜片钳记录的酶消化处理。视网膜小动脉在酶消化前(A)和消化后(B)的光学显微图像。注意平滑肌细胞(SMCs)与下方的内皮细胞(ECs)之间发生的物理分离(箭头所示)。适合进行膜片钳记录的平滑肌细胞以星号标出。比例尺代表 10 µm。请点击此处查看该图的放大版本
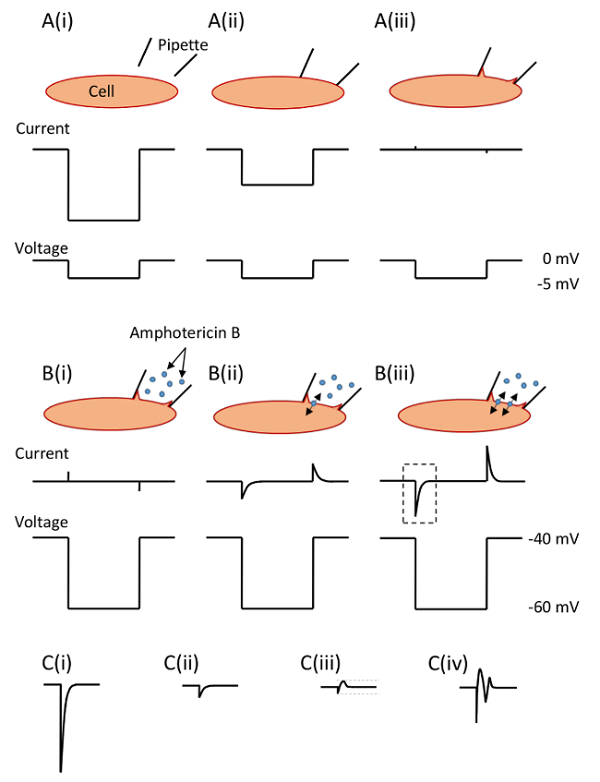
图5.单通道与全细胞膜片钳记录。 A) 在执行“封接测试”方案期间观察到的测试电流示意图,分别对应以下情况:(i) 膜片电极进入外部灌流液环境;(ii) 电极尖端接触血管平滑肌细胞的质膜;(iii) 对电极后端施加负压以形成吉欧封接(gigaseal)。在使用膜片钳放大器完成电极电容补偿后,可在“细胞贴附”构型下记录单通道电流,或通过快速撤出电极以分离出一片膜,形成“膜内朝外”(inside-out)膜片用于记录。B) 在应用两性霉素B介导的全细胞穿孔式膜片钳技术过程中,随着电学通路逐步建立,所记录到的电流变化:(i);(ii) 随着两性霉素B插入细胞膜,通路电阻(access resistance)下降,且在超极化电压阶跃(从 -40 mV 到 -60 mV)下诱发的电容瞬变信号幅度增大;(iii) 当通路电阻(Ra)下降至 < 15 MΩ 时(通常在形成吉欧封接后5–10分钟内达到),即可开始实验。C) 在进行全细胞记录之前,必须使用膜片钳放大器上的相应调节旋钮对通路电阻和细胞电容进行补偿。膜片钳软件中自动功能所提供的通路电阻和细胞电容数值可用于指导此过程:(i) 显示的是补偿前来自B(iii)中高亮区域的电容瞬变信号;(ii) 显示的是在完成通路电阻与电容补偿后通常可观察到的电容瞬变信号减小情况;(iii) 随后应将串联电阻补偿调整至最多75%,并对通路电阻和电容补偿进行精细调节,使得最终的瞬变信号在电压阶跃期间,其高于和低于电流平台水平的振幅大致相等;(iv) 应注意避免对通路电阻过度补偿(表现为瞬变信号出现“振铃”现象),因为在实验过程中若封接状态持续改善,则可能发生此类情况。请点击此处查看该图的放大版本。
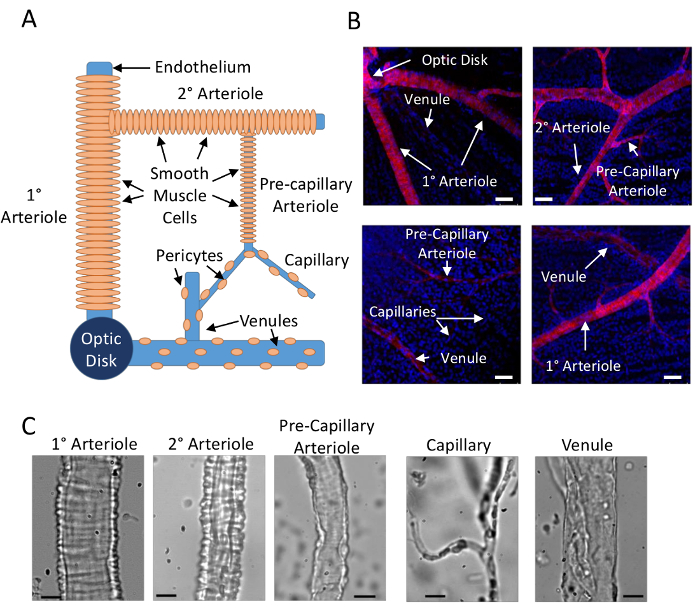
图6. 分离大鼠视网膜小动脉的鉴定. A大鼠视网膜微血管树结构示意图。 B) 大鼠视网膜小动脉和小静脉在平铺标本中的共聚焦图像,经染色后显示 αSMA(红色;细胞核染成蓝色;比例尺代表 50 µm). C) 分离的显微照片 1°, 2° 以及前毛细血管小动脉、毛细血管网和小静脉(比例尺代表 10 µm). 请点击此处以查看此图的放大版本。
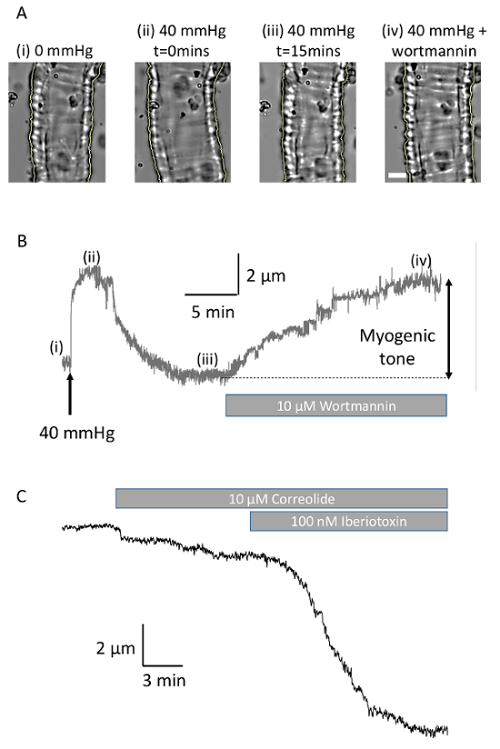
图7. 小动脉压力肌张力记录. A) 显示灌注视网膜小动脉的图像,其中(i)静息状态下管径(约 35.6 µm),(ii) 加压后扩张,(iii) 自发性血管收缩的形成,以及 (iv) 加入物质后引起的扩张 10 µM 0Ca 中的 wortmannin2+ Hanks 溶液。比例尺表示 10 µm. BA图所示完整实验的血管直径随时间变化曲线(采样频率为2.5帧/秒)。 C在稳定肌源性张力下另一细动脉的直径变化轨迹(直径 38.7 µm) 显示Kv1通道抑制剂柯瑞奥利德(correolide)的作用(10 µM)以及BK通道抑制剂iberiotoxin(100 nM)(采样速率0.5帧/秒)。 请点击此处以查看此图的放大版本。
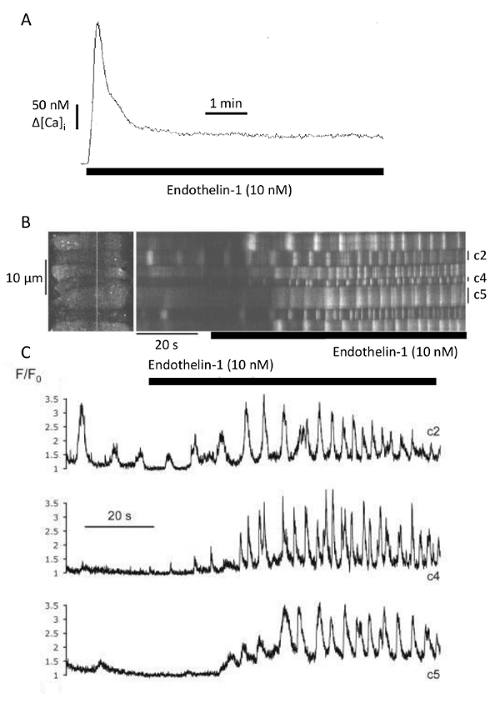
图8. 内皮素-1(Et-1)对大鼠视网膜小动脉[Ca2+]i信号活动的影响。 A) 基于fura-2的传统记录,显示内皮素-1(Et-1,10 nM)对整体[Ca2+]i的影响。该一级小动脉的基础[Ca2+]i为82 nM。 B) 基于fluo-4的共聚焦xt图像,显示内皮素-1(Et-1)在细胞水平上对[Ca2+]i的影响。 C) 对B图中标记细胞测得的归一化荧光强度(F/F0)的绘图。本图经许可改编自Tumelty et al.30。 请点击此处查看此图的放大版本。
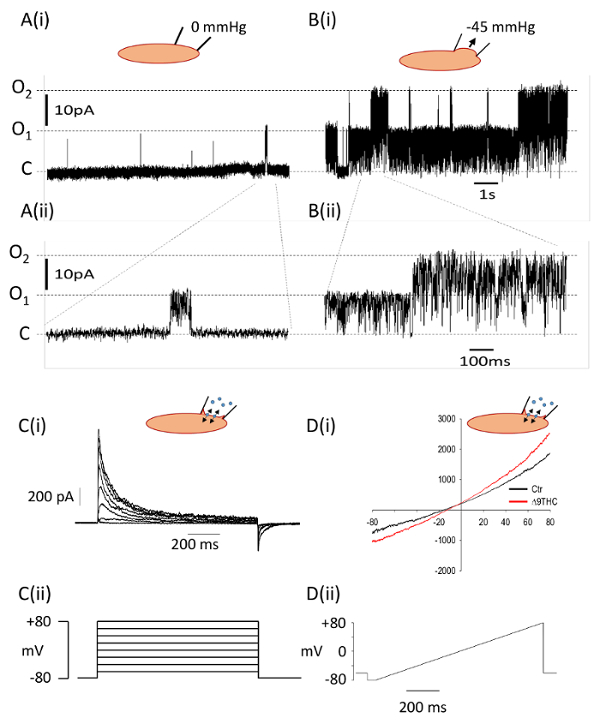
图9. 大鼠视网膜小动脉平滑肌细胞的单通道和全细胞膜片钳记录。A、B)同一膜片在施加负压(-45 mmHg)前(A)和期间(B)的贴附式单通道记录。该膜片中存在两个通道(单通道电流为12.81 pA;单通道电导为249.71 pS),在牵拉条件下其激活显著增强。上图(i)中选定区域在下图(ii)中以更快的时间基线显示。C)在存在BK通道和Ca2+激活的Cl-通道抑制剂的条件下,通过全细胞模式记录的A型K+通道电流族(i),由-80 mV至+80 mV之间每步20 mV的电压阶跃所诱发(ii)。D)在施加TRPV2通道激动剂Δ9-四氢大麻酚(Δ9-THC)前(黑线)和期间(红线)通过-80 mV至+80 mV电压斜坡诱发的全细胞电流(i)。所用电压斜坡方案见下图(ii)。请点击此处查看该图的放大版本。
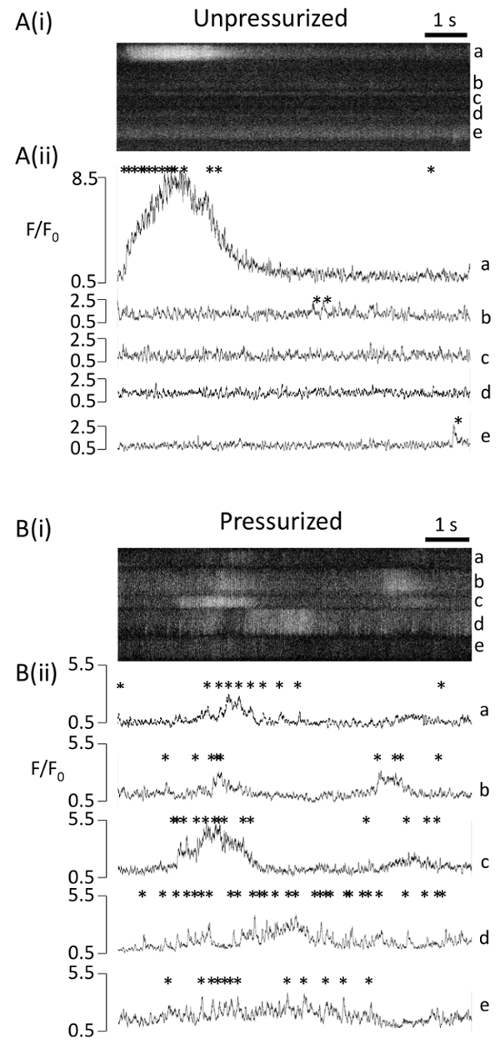
图10. Ca2+ 加压前后大鼠视网膜小动脉的共聚焦成像 代表性共聚焦xt扫描图像(i),显示视网膜小动脉平滑肌细胞在以下条件下的情况(A) 未加压和(B) 同一血管不同区域在加压条件下的变化。(ii)归一化荧光强度的变化(F/F0) 在(i)中标注的单个细胞a-e中记录,并对时间作图。星号表示单个亚细胞Ca2+ 加压后频率增加并总和触发细胞钙信号的火花2+ 振荡。 请点击此处以查看此图的放大版本。
| 化合物(mM) | 低 Ca2+ Hanks' | 无 Ca2+ Hanks' | 正常 Hanks' | 分离酶 蛋白酶 | 分离酶 胶原酶 | 分离酶 DNA酶 | 淬灭溶液 | Rmin 溶液 | Rmax 溶液 | 细胞贴附 外液溶液 | 细胞贴附 玻璃微电极溶液 | 全细胞 外液溶液 | 全细胞 玻璃微电极溶液 |
| 水纯度(电阻) | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥18 MΩ.cm | ≥15 MΩ.cm | ≥18 MΩ.cm |
| NaCl | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | |||
| kCl | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 138 | ||
| D-葡萄糖 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | |
| MgCl2 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1 |
| HEPES | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 |
| CaCl2 | 0.1 | 2 | 0.1 | 0.1 | 0.1 | 10 | 2 | 2 | 2 | 0.2 | |||
| EGTA | 4 | 0.5 | |||||||||||
| MnCl | 10 | ||||||||||||
| 离子霉素 | 0.01 | ||||||||||||
| KOH | 140 | 130 | |||||||||||
| D-葡萄糖酸 | 130 | 130 | |||||||||||
| NaOH | 10 | ||||||||||||
| Penitrem A | 0.0001 | 0.0001 | 0.0001 | ||||||||||
| 4-氨基吡啶 | 10 | ||||||||||||
| 尼莫地平 | 0.01 | 0.01 | |||||||||||
| 氟西汀 | 0.1 | ||||||||||||
| 9-蒽甲酸 | 1 | ||||||||||||
| 两性霉素B | 300-600 μg mL-1 | ||||||||||||
| 蛋白酶 XIV 型 | ~0.01 % (0.4-0.6 mg/40 mL) | ||||||||||||
| 胶原酶 I 型 | 0.1 % (6 mg/60 mL) | ||||||||||||
| DNA酶 I | 20 KU (20 μL of 1 MU/mL stock in 20 mL) | ||||||||||||
| pH | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.2 |
| 用……调节pH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | Tris | Tris | NaOH | KOH |
表1. 实验中使用的溶液组成,包括用于单通道(TRPV2)和全细胞(A型)电流记录的胞外液和电极内液示例。
讨论
上述方案需要练习,但经过少量调试后应可顺利实现。通常情况下,我们每天可从分离过程中获得 6 至 8 条可用的动脉小血管,并完成 3 至 4 次成功的实验。然而,若遇到问题,可采取一些措施以提高成功率。我们偶尔发现,特别是在使用较年轻的动物(< 8 周)时,动脉小血管的收获量可能较低。为解决此问题,建议在步骤 1.12 至 1.14 的每次吹打操作之间对视网膜组织进行离心(500 × g,10 至 30 秒)。这通常有助于提高血管的收获量,但同时也会增加制备物中的细胞碎片含量。
在为压力肌动图研究进行血管套管操作时,必须仔细检查微动脉是否存在在分叉部位附近被切断的侧支。这是实验过程中发生渗漏和压力丧失的常见原因。在[Ca2+]i实验方案中可能出现的主要问题是染料负载水平。染料负载不足会导致信噪比降低,而过度负载则会破坏正常的Ca2+稳态。为降低这两种问题发生的可能性,可在染料负载过程中定期取出少量视网膜匀浆样本,并周期性检查分离的血管。在进行膜片钳实验时,吉欧封接(gigaseal)形成的成功率高度依赖于基底膜的消化程度。在初次测试该方案或使用新批次的酶时,可能需要调整酶消化的浓度或时间。密切监测内皮层与平滑肌层的分离情况,可确保基底膜被充分消化以暴露足够区域便于操作。同时必须仔细监控以避免过度消化,其表现通常为血管开始收缩。一旦发生此现象,平滑肌细胞往往过于脆弱,无法进行膜片钳记录。在使用酶处理时,应加入DNA酶I,以确保清除在分离过程中受损细胞释放的DNA链。DNA片段具有黏性,会导致在清洗过程的最后阶段(步骤4.4)镊子黏附于微动脉,常导致血管丢失。血管清洗在技术上较为困难,最好在高倍放大(20X)下,使用尖端直径尽可能细的闭合镊子进行轻柔的扫动操作。每次扫动之间,应用实验纸巾清洁镊子。
如前所述,开发本论文所述方案的一个关键动机是深入理解视网膜血管疾病期间血流为何会受到破坏。迄今为止,我们的大部分工作集中于糖尿病性眼病28,33. 可使用第1节中描述的方法从糖尿病实验啮齿类动物模型的视网膜中分离小动脉。在对糖尿病动物的离体视网膜小动脉进行实验时,应尽量模拟这些血管所处的高血糖环境 在体因此,我们通常会将分离和实验溶液中的D-葡萄糖浓度提高至25 mM。血管基底膜增厚是糖尿病状态下视网膜血管中公认的现象。34,35. 当使用患有长期糖尿病的动物时(> 1 个月病程),通常需要提高酶浓度或延长消化时间,以实现膜片钳记录技术的应用。
使用该方法的一个重要局限性 离体 分离的视网膜小动脉用于研究视网膜血管生理学与病理生理学时,一个主要问题是失去了周围视网膜神经组织的支持。尽管去除视网膜胶质细胞和神经元细胞可便于对视网膜血管平滑肌细胞进行细胞生理学研究,但血管对血管活性介质的反应在有或无视网膜组织存在的情况下可能发生显著变化。三磷酸腺苷(ATP)的作用即为说明这一问题的良好例证。在分离的大鼠视网膜小动脉中,加入ATP会引发血管强烈收缩36,而在神经纤维网完整存在的情况下,血管会舒张37因此,我们通常会尽可能利用分离的微动脉标本中的关键发现进行验证 离体 视网膜全层铺片和 在体 血管直径和血流量的测量16,37值得注意的是,近期已出现用于研究完整灌注猪视网膜中小动脉和毛细血管的新方法。 离体38,39此类制备方法有望极大增进我们对视网膜神经网如何调控视网膜小动脉和毛细血管张力,以及视网膜血流动力学变化如何调节视网膜内神经元活动的理解。
尽管本文所述方法主要聚焦于利用分离的大鼠视网膜小动脉研究小动脉平滑肌细胞的生理学特性,但我们目前正在开发新的方案,以实现对这些血管中内皮细胞功能的研究。在初步研究中,我们已成功优化了视网膜小动脉节段的酶消化方法,获得了具有活性的内皮细胞管,可用于Ca2+成像和膜片钳记录研究。未来,通过在两端对分离的小动脉进行插管,实现药物的管腔内递送,将有望用于研究这些血管中的内皮依赖性血管舒张反应。
披露
Joanna Kur 博士现就职于美敦力公司(美国明尼苏达州双子城),其目前的工作与本文所述内容无利益冲突。
致谢
本文所述方案的开发得到了以下资助机构的资助:英国生物技术和生物科学研究生理事会(BBSRC,项目号 BB/I026359/1)、Fight for Sight(项目号 1429 和 1822)、青少年糖尿病研究基金会(Juvenile Diabetes Research Foundation,项目号 2-2003-525)、惠康信托基金(Wellcome Trust,项目号 074648/Z/04)、英国心脏基金会(British Heart Foundation,项目号 PG/11/94/29169)、北爱尔兰卫生与社会保健研究与发展部(HSC R&D Division,项目号 STL/4748/13)以及英国医学研究理事会(MRC,项目号 MC_PC_15026)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 烧杯 | Fisherbrand | 15409083 | 或任何等效产品 |
| 弯头剪刀 | Fisher Scientific | 50-109-3542 | 或任何同等产品 |
| 一次性塑料移液管/转移管 | Sarstedt | 86.1174 | 6 mL 最佳,但其他规格也可接受;移除枪头以扩大开口 |
| 解剖显微镜 | Brunel Microscopes LTD | 或任何等效产品 | |
| 镊子 | World Precision Instruments | Dumont #5 14095 | 任何同等精细的镊子 |
| 巴斯德吸管 | Fisherbrand | 11546963 | 用火烧抛光以减少摩擦,但抛光程度不足以使尖端变窄 |
| 培养皿 | Sigma-Aldrich | P7741 | 或任何等效的10 cm产品 |
| 移液管乳头 | Fisherbrand | 12426180 | 或任何等效产品 |
| 纯化水供应 | Merek | Milli-Q Integral 水纯化系统 | 或任何等效系统 |
| 圆底试管 | Fisherbrand | 14-958-10 B | 5 mL;任何等效产品 |
| 有齿镊 | Fisher Scientific | 17-467-230 | 或任何等效产品 |
| 单边刀片 | Agar Scientific | T585 | 或任何等效产品 |
| Sylgard | 道康宁 | 184 | 或任何柔韧的表面 |
| 试管架 | Fisherbrand Derlin | 10257963 | 或任何等效产品 |
| 压力肌动图 | |||
| 三轴机械操纵器 | 科学仪器 | LBM-7 | x2(或任何等效产品) |
| 三通旋塞 | Cole-Parmer | UY-30600-02 | 或任何等效产品 |
| 防震台 | Technical Manufacturing Corporation | 洁净台 | 或任何同等产品 |
| 分析软件 | Image J | https://downloads.imagej.net/fiji/ | 免费成像软件 |
| 分析插件 | Myotraker | https://doi.org/10.1371/journal.pone.0091791.s002 | ImageJ 的自定义插件,可免费下载 |
| 灌注移液管玻璃 | World Precision Instruments | TW150F-4 | 或任何等效产品 |
| 计算机 | Dell | Optiplex 7010 | 或任何等效产品 |
| 数字温度计 | RS | 206-3722 | 或任何等效产品 |
| Fluo-4-AM | Thermo Fisher Scientific | F14201 | 用DMSO配制1 mM的母液 |
| 镊子 | World Precision Instruments | Dumont #7 14097 | 任何同等精细的镊子 |
| Fura-2-AM | Thermo Fisher Scientific | F1221 | 用DMSO配制1 mM的母液 |
| 玻璃底记录室 | Warner Instruments | 64-0759 | 或任何同等产品 |
| 辅助移液管玻璃 | World Precision Instruments | IB150F-3 | 或任何等效产品 |
| 在线加热器 | 定制制作 | Harvard Apparatus 公司生产的 SH-27B 溶液在线加热器 | |
| 倒置显微镜 | 尼康 | Eclypse TE 300 | 或任何等效产品 |
| 压力计 | Riester | LF1459 | 或任何等效产品 |
| 微电极拉制仪 | Sutter Instruments | P97 | 或任何等效产品 |
| 微熔器 + 奥林巴斯CX31显微镜 | 玻璃器皿 | 精细尖端 F-550 | 或任何同等产品 |
| 显微操作器 | Sutter 仪器 | MP-285 | 或任何等效产品 |
| 多通道输送歧管 | Automate Scientific | 灌流笔 | 或任何等效产品 |
| 移液管填充器 | BD Plastipak | 1 mL | 注射器加热并拉制至移液管的内径 |
| 移液管固定器 | Molecular Devices | 1-HL-U | 或任何等效产品 |
| 吸气泵 | 解释 | AP1 | 通过反转风箱改装通气泵 |
| 注射器 | BD Plastipak | 20 mL 鲁尔锁 | 或任何等效产品 |
| 钨丝 | 外膜 | W558818 | 75μ微米直径 |
| Tygon 管 | VWR | 各种尺寸 | 或任何同等产品 |
| USB摄像头 | 罗技 | HD Pro 网络摄像头 C920 | 或任何等效产品 |
| 视频采集软件 | Hypercam | 版本 2.28.01 | 或任何等效产品 |
| 水浴 | 基金 | Sub Aqua 12 Plus | 或任何等效产品 |
| x20物镜 | 尼康 | 20x/0.40 WD 3.8 ∞/0.17 | 或任何等效产品 |
| x4 物镜 | 尼康 | 4倍/0.10,工作距离 30, ∞/- | 或任何等效产品 |
| Y型连接器 | World Percision Instruments | 14012 | 或任何等效产品 |
| 膜片钳 | |||
| 三通旋塞 | Cole-Parmer | UY-30600-02 | 或任何同等产品 |
| 三轴机械操纵器 | 科学仪器 | LBM-7 | 或任何等效产品 |
| 防震台 | Technical Manufacturing Corporation | 洁净台 | 或任何等效产品 |
| 两性霉素B | Sigma-Aldrich | A2411 | 每日将3 mg溶解于50 μL 的 DMSO(超声助溶) |
| 放大器 | Molecular Devices | Axopatch 200a | 或任何等效产品 |
| 模拟数字转换器 | 轴突 | Digidata 1440A | 或任何等效产品 |
| I型胶原酶A | Sigma-Aldrich | C9891 | 0.1 mg/mL in LCH |
| 计算机 | Dell | Optiplex 7010 | 或任何等效产品 |
| 数字温度计 | RS | 206-3722 | 或任何等效产品 |
| DNA酶 I | Millipore | 260913 | 工作液 1 MU mL-1(10 MU 溶于 10 mL LCH) |
| 法拉第笼 | 定制生产 | 任何同等的商用产品 | |
| 精细镊子 | Dumont | 7号 | 任何超细镊子 |
| 玻璃底记录室 | Warner Instruments | 64-0759 | 或任何同等产品 |
| 前置放大器 | Molecular Devices | CV203BU | 或任何同等产品 |
| 在线加热器 | 定制 | 哈佛仪器公司生产的SH-27B溶液在线加热器 | |
| 倒置显微镜 | 尼康 | Eclypse TE 300 | 或任何同等产品 |
| 微电极拉制仪 | Sutter instruments | P97 | 或任何等效产品 |
| 微熔器 + 奥林巴斯CX 31显微镜 | 玻璃器皿 | 精细尖头 F-550 | 或任何等效产品 |
| 显微操作器 | Sutter instruments | MP-285 | 或任何同等产品 |
| 多通道输送歧管 | Automate Scientific | 灌流笔 | 或任何等效产品 |
| 修补软件 | Molecular Devices | Pclamp v10.2 | 或任何等效产品 |
| 移液管填充器 | BD Plastipak | 1 mL | 注射器加热并拉制至移液管的内径 |
| 移液管固定器 | Molecular Devices | 1-HL-U | 或任何等效产品 |
| 蛋白酶 XIV 型 | Sigma-Aldrich | P5147 | 0.01 mg/mL,溶于LCH |
| 单通道移液管玻璃 | World Precision Instruments | IB150F-3 | 或任何等效产品 |
| 抽吸泵 | 解释 | AP1 | 通过反转风箱改装通气泵 |
| 注射器 | BD Plastipak | 20 mL 鲁尔锁 | 或任何等效产品 |
| 钨丝 | 外膜 | W557418 | 50μ微米直径 |
| Tygon 管 | VWR | 各种尺寸 | 任何可兼容的替代产品 |
| USB摄像头 | 罗技 | HD Pro Webcam C920 | 或任何等效产品 |
| 水浴 | 基金 | Sub Aqua 12 Plus | 或任何等效产品 |
| 全细胞记录移液管玻璃 | Warner Instruments | GC150TF-7.5 | 或任何等效产品 |
| x20物镜 | 尼康 | 20x/0.40 WD 3.8 ∞/0.17 | 或任何等效产品 |
| x4 物镜 | 尼康 | 4倍/0.10,工作距离 30, ∞/- | 或任何等效产品 |
| x40物镜 | 尼康 | 40x/0.55,WD 2.1 ∞/1.2 | 或任何等效产品 |
| Y型连接器 | World Percision Instruments | 14012 | 或任何等效产品 |
| 钙2+ 成像 | |||
| 三通旋塞 | Cole-Parmer | UY-30600-02 | 或任何同等产品 |
| 三轴机械操纵器 | Scientifica | LBM-7 | 或任何等效产品 |
| 采集软件 | Cairn Research Ltd. | 采集引擎 V1.1.5 | 或任何等效产品;微荧光测定法 |
| 防震台 | Technical Manufacturing Corporation | 洁净台 | 或任何等效产品 |
| 共聚焦成像分析软件 | Image J | https://downloads.imagej.net/fiji/ | 免费成像软件 |
| 计算机 | 戴尔 | Optiplex 7010 | 或任何等效产品 |
| 共聚焦显微镜 | Leica Geosystems | SP5 | 或任何等效产品;共聚焦显微镜 |
| 数字温度计 | RS | 206-3722 | 或任何等效产品 |
| 精细镊子 | Dumont | 7号 | 任何超细镊子 |
| 玻璃底记录室 | Warner Instruments | 64-0759 | 或任何等效产品 |
| 在线加热器 | 定制 | 哈佛仪器公司生产的SH-27B溶液在线加热器 | |
| 倒置显微镜 | 尼康 | Eclipse TE2000 | 或任何等效产品;微荧光测定法 |
| 单色仪 | Cairn Research Ltd. | Optoscan | 或任何等效产品;微荧光测定法 |
| 多通道输送歧管 | Automate Scientific | 灌流笔 | 或任何等效产品 |
| 移液管填充器 | BD Plastipak | 1 mL | 注射器加热并拉制至移液管的内径 |
| 共聚焦显微镜软件 | Leica Geosystems | LAS-AF 版本 3.3 | 或任何等效产品;共聚焦显微镜 |
| 吸气泵 | 解释 | AP1 | 通过反转风箱改装通气泵 |
| 注射器 | BD Plastipak | 20 mL 鲁尔锁 | 或任何等效产品 |
| 钨丝 | 外膜 | W557418 | 50μ微米直径 |
| Tygon 管 | VWR | 各种尺寸 | 任何可兼容的替代产品 |
| 水浴 | 资助 | Sub Aqua 12 Plus | 或任何同等产品 |
| x100物镜 | 尼康 | x100 N.A. 1.3 油镜 | 或任何等效产品;微荧光测定法 |
| x20物镜 | 尼康 | 20x/0.40 WD 3.8 ∞/0.17 | 或任何等效产品;微荧光测定法 |
| x20物镜 | Leica Geosystems | HCX PL FLUOTAR,20x/0.50 ∞/0.17/D | 或任何等效产品;共聚焦显微镜 |
| x4 物镜 | 尼康 | 4倍/0.10,工作距离 30 ∞/- | 或任何等效产品;微区荧光测定法 |
| x63 物镜 | Leica Geosystems | HCX PL APO,63x/1.40 - 0.60 油镜 CS ∞/0.17/E | 或任何等效产品;共聚焦显微镜 |
| Y型连接器 | World Precision Instruments | 14012 | 或任何同等产品 |
| 移液管 | 实验用移液管制作的规格与设置 | ||
| 辅助移液管 | World Precision Instruments | IB150F-3 | 内径:0.86 mm 斜率:261 压力:300 加热:280 拉:0 速度:56 时间:250 循环次数:4 尖端直径:0.5–2 μm 抛光:是 终末阻力: >10 MΩ |
| 灌注微管 | World Precision Instruments | TW150F-4 | 内径:1.17 mm 斜率:290 压力:300 加热:280 拉:0 速度:58 时间:150 循环次数:4 尖端直径:3-10 μm 抛光:否 最终阻力: &<1 MΩ |
| 细胞贴附式膜片钳 | World Precision Instruments | IB150F-3 | 内径:0.86 mm 斜率:261 压力:300 加热:280 拉力:0 速度:56 时间:250 循环次数:4 尖端直径:0.5–2 μm 抛光:是 最终阻力: >5 MΩ |
| 全细胞膜片钳 | Warner Instruments | GC150TF-7.5 | 内径:1.17 mm 斜率:296 压力:200 加热:287 拉力:0 速度:50 时间:250 循环次数:4 尖端直径:2-3 μm 打磨:有帮助但非必需 最终电阻:1-2 MΩΩ |
参考文献
- Kohner, E. M., Patel, V., Rassam, S. M. Role of blood flow and impaired autoregulation in the pathogenesis of diabetic retinopathy. Diabetes. 44, 603-607 (1995).
- Hafez, A. S., Bizzarro, R. L., Lesk, M. R. Evaluation of optic nerve head and peripapillary retinal blood flow in glaucoma patients, ocular hypertensives, and normal subjects. American Journal of Ophthalmology. 136, 1022-1031 (2003).
- Curtis, T. M., Gardiner, T. A., Stitt, A. W. Microvascular lesions of diabetic retinopathy: clues towards understanding pathogenesis? Eye (London). 23, 1496-1508 (2009).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease). Progress in Retinal and Eye Research. 27, 284-330 (2008).
- Kuwabara, T., Cogan, D. G. Studies of retinal vascular patterns. I. Normal architecture. Archives of Ophthalmology. 64, 904-911 (1960).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Puro, D. G. Retinovascular physiology and pathophysiology: new experimental approach/new insights. Progress in Retinal and Eye Research. 31 (3), 258-270 (2012).
- Kur, J., Newman, E. A., Chan-Ling, T. Cellular and physiological mechanisms underlying blood flow regulation in the retina and choroid in health and disease. Progress in Retinal and Eye Research. 31 (5), 377-406 (2012).
- Delaey, C., Van de Voorde, J. Regulatory Mechanisms in the Retinal and Choroidal Circulation. Ophthalmic Research. 32 (6), 249-256 (2000).
- Metea, M. R., Newman, E. A. Glial cells dilate and constrict blood vessels: a mechanism of neurovascular coupling. Journal of Neuroscience. 26, 2862-2870 (2006).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease. Progress in Retinal and Eye Research. 27 (3), 284-330 (2008).
- Hughes, S., Chan-Ling, T. Characterization of smooth muscle cell and pericyte differentiation in the rat retina in vivo. Investigative Ophthalmology & Visual Science. 45 (8), 2795-2806 (2004).
- Shepro, D., Morel, N. M. Pericyte physiology. The FASEB Journal. 7 (11), 1031-1038 (1993).
- Kornfield, T. E., Newman, E. A. Regulation of Blood Flow in the Retinal Trilaminar Vascular Network. Journal of Neuroscience. 34 (34), 11504-11513 (2014).
- Matsushita, K., Puro, D. G. Topographical heterogeneity of KIR currents in pericyte-containing microvessels of the rat retina: effect of diabetes. Journal of Physiology. 573, 483-495 (2006).
- Needham, M., et al. The role of K+ and Cl- channels in the regulation of retinal arteriolar tone and blood flow. Investigative Ophthalmology & Visual Science. 55 (4), 2157-2165 (2014).
- Hessellund, A., Jeppesen, P., Aalkjaer, C., Bek, T. Characterization of vasomotion in porcine retinal arterioles. Acta Ophthalmologicaogica Scandinavica. 81, 278-282 (2003).
- Delaey, C., Van de Voord, J. Pressure-induced myogenic responses in isolated bovine retinal arteries. Investigative Ophthalmology & Visual Science. 41, 1871-1875 (2000).
- Kur, J., et al. Role of ion channels and subcellular Ca2+ signaling in arachidonic acid-induced dilation of pressurized retinal arterioles. Investigative Ophthalmology & Visual Science. 55 (5), 2893-2902 (2014).
- Kur, J., Bankhead, P., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Ca(2+) sparks promote myogenic tone in retinal arterioles. British Journal of Pharmacology. 168 (7), 1675-1686 (2013).
- Fernández, J. A., McGahon, M. K., McGeown, J. G., Curtis, T. M. CaV3.1 T-Type Ca2+ Channels Contribute to Myogenic Signaling in Rat Retinal Arterioles. Investigative Ophthalmology & Visual Science. 56 (9), 5125-5132 (2015).
- McGahon, M. K., et al. TRPV2 Channels Contribute to Stretch-Activated Cation Currents and Myogenic Constriction in Retinal Arterioles. Investigative Ophthalmology & Visual Science. 57 (13), 5637-5647 (2016).
- Guidoboni, G., et al. Intraocular Pressure, Blood Pressure, and Retinal Blood Flow Autoregulation: A Mathematical Model to Clarify Their Relationship and Clinical Relevance. Investigative Ophthalmology & Visual Science. 55 (7), 4105-4118 (2014).
- Scholfield, C. N., Curtis, T. M. Heterogeneity in cytosolic calcium regulation among different microvascular smooth muscle cells of the rat retina. Microvascular Research. 59 (2), 233-242 (2000).
- Grynkiewicz, G., Poenie, M., Tsien, R. Y. A new generation of Ca2+ indicators with greatly improved fluorescence properties. Journal of Biological Chemistry. 260, 3440-3450 (1985).
- Sakmann, B., Neher, E. Single Channel Recording, Second Edition. , Plenum Press. New York. 53-90 (1995).
- Fernández, J. A., Bankhead, P., Zhou, H., McGeown, J. G., Curtis, T. M. Automated detection and measurement of isolated retinal arterioles by a combination of edge enhancement and cost analysis. PLoS One. 9, e91791(2014).
- McGahon, M. K., et al. Diabetes downregulates large-conductance Ca2+-activated potassium beta 1 channel subunit in retinal arteriolar smooth muscle. Circulation Research. 100 (5), 703-711 (2007).
- Curtis, T. M., Scholfield, C. N. Nifedipine blocks Ca2+ store refilling through a pathway not involving L-type Ca2+ channels in rabbit arteriolar smooth muscle. Journal of Physiology. 532 (3), 609-623 (2001).
- Tumelty, J., et al. Endothelin 1 stimulates Ca2+-sparks and oscillations in retinal arteriolar myocytes via IP3R and RyR-dependent Ca2+ release. Investigative Ophthalmology & Visual Science. 52 (6), 3874-3879 (2011).
- Huynh, K. W., et al. Structural insight into the assembly of TRPV channels. Structure. 22 (2), 260-268 (2014).
- McGahon, M. K., Dawicki, J. M., Scholfield, C. N., McGeown, J. G., Curtis, T. M. A-type potassium current in retinal arteriolar smooth muscle cells. Investigative Ophthalmology & Visual Science. 46 (9), 3281-3287 (2005).
- McGahon, M. K., Zhang, X., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Selective downregulation of the BKbeta1 subunit in diabetic arteriolar myocytes. Channels (Austin). 1 (3), 141-143 (2007).
- Ljubimov, A. V., et al. Basement membrane abnormalities in human eyes with diabetic retinopathy. Journal of Histochemistry and Cytochemistry. 44, 1469-1479 (1996).
- Roy, S., Maiello, M., Lorenzi, M. Increased expression of basement membrane collagen in human diabetic retinopathy. Journal of Clinical Investigation. 93, 438-442 (1994).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Hinds, K., Monaghan, K. P., Frølund, B., McGeown, J. G., Curtis, T. M. GABAergic control of arteriolar diameter in the rat retina. Investigative Ophthalmology & Visual Science. 54 (10), 6798-6805 (2013).
- Torring, M. S., Aalkjaer, C., Bek, T. Constriction of porcine retinal arterioles induced by endothelin-1 and the thromboxane analogue U46619 in vitro decreases with increasing vascular branching level. Acta Ophthalmologica. 92 (3), 232-237 (2014).
- P, S. kov J. ensen, S, M. etz M. ariendal P. edersen, Aalkjaer, C., Bek, T. The vasodilating effects of insulin and lactate are increased in precapillary arterioles in the porcine retina ex vivo. Acta Ophthalmologica. 94 (5), 454-462 (2016).
重印与许可
