本文介绍了一种在哺乳动物细胞中测量整体自噬捕获活性的简单且经过充分验证的实验方案。该方法基于定量分析可沉淀细胞组分中乳酸脱氢酶(LDH)所占的比例,并将其与细胞总LDH水平进行比较。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
乳酸脱氢酶封存检测——一种测定哺乳动物细胞大分子自噬封存活性的简单可靠方法
* These authors contributed equally
本文内容
摘要
摘要
大自噬的特征是将细胞质的大片段包裹进称为自噬体的双层/多层膜结构中。本文描述了一种监测该过程的简单方案,并提供了在多种培养的哺乳动物细胞中,自噬诱导条件下该方法的典型结果及实验验证。在大自噬过程中,自噬体会包裹细胞质,从而非选择性地将可溶性胞质蛋白及其他自噬货物一同包裹进去。乳酸脱氢酶(LDH)是一种稳定且丰度很高的可溶性胞质酶,可被非选择性地包裹进自噬体中。因此,LDH的包裹量反映了大自噬包裹的总量。为了高效且准确地测定细胞中LDH的包裹情况,我们采用基于电穿孔裂解的分级分离方法,有效分离可沉淀的LDH与胞质中的LDH,随后测定沉淀组分与全细胞样品中的酶活性。自噬包裹量通过处理组细胞中可沉淀LDH的比例减去未处理组细胞中的相应比例来确定。LDH包裹检测法的优点在于,它能够定量测定内源性自噬货物的包裹情况,而不同于其他需要异位表达包裹探针或对自噬标志物或受体进行半定量蛋白酶保护分析的方法。
引言
自噬(希腊语意为"自我吞噬")是一种在进化上保守的细胞内物质通过液泡/溶酶体途径进行降解的过程。随着自噬相关("ATG")基因的发现——这些基因在酵母和人类的自噬过程中起重要作用,以及认识到自噬在人类健康与疾病中具有重要意义(大隅良典于2016年因此获得诺贝尔生理学或医学奖),自噬迅速成为细胞生物学中最受关注的研究过程之一1,2。
大自噬(下文简称为 "自噬")的特征是细胞内膜囊("吞噬泡")的扩展和折叠,形成封闭的双层或多层膜结构("自噬体"),从而将包裹的物质与细胞质其余部分有效隔离。自噬体与溶酶体融合后,其内层膜及所包裹的物质被降解并循环利用。自噬体可以以非特异性(非选择性自噬)或特异性(选择性自噬)的方式包裹细胞质成分。大规模自噬很可能同时包含非选择性自噬和选择性自噬的混合过程。
20世纪60年代和70年代"形态学时代" 自噬研究领域,自噬性隔离主要通过超微结构分析进行评估。20世纪80年代至90年代初("生化时代"根据研究大鼠原代肝细胞自噬作用的Per Seglen及其同事所建立的方法,首次实现了对自噬性包封活性的定量检测3利用这些检测方法,Seglen 定义并表征了自噬-溶酶体途径的不同步骤4,5,发现并命名了amphisome6 (内体与自噬体融合的产物),并首次描述了蛋白质磷酸化在自噬调控中的作用7。然而,自从20世纪90年代发现ATGs以来("分子 时代"以及2000年首次对哺乳动物ATG8蛋白——微管相关蛋白1A/1B-轻链3(LC3)的表征8因此,将ATG蛋白用作自噬过程的标志物迅速流行起来,而过去更为繁琐的生化方法则逐渐被淘汰。事实上,在过去18年中,对LC3的蛋白质印迹(western blot)和荧光显微镜分析已成为研究哺乳动物细胞自噬最广泛使用(在许多情况下是唯一使用)的方法。这些方法的优势在于操作相对简便。其缺点在于研究的是运输工具(LC3)本身,而非真正的自噬底物。这是一个相当严重的问题,因为LC3在自噬通路中的状态或流量与底物的包裹及流量之间的关系极不明确。事实上,我们已证明,在完全不存在LC3流量的情况下,尽管细胞中存在共轭形式的LC3,大分子底物的流量仍可维持在较高水平。9此外,我们证明了高效耗竭LC3对整体自噬没有影响,因此整体自噬很可能是不依赖LC3的9这一发现随后通过LC3基因敲除研究得到了证实10,11,这也表明Parkin依赖性线粒体自噬(线粒体的选择性自噬)不依赖于LC310,11.
总之,迫切需要基于货物分子的检测方法来监测自噬活性。理想的此类检测方法应具有广泛的适用性、定义明确且易于操作。在过去的几年中,我们对乳酸脱氢酶(LDH)截留检测法产生了特别的兴趣,该方法由 Per Seglen 在 20 世纪 80 年代开发12,基于检测胞质乳酸脱氢酶(LDH)向可沉淀的、含自噬空泡的细胞组分的转移。LDH 是一种稳定的可溶性胞质蛋白,在吞噬体包裹胞质内容物时可被有效共包裹。因此,LDH 的包裹程度可作为自噬性包裹的通用指标。LDH 仅通过自噬-溶酶体途径降解。12因此,在存在溶酶体降解抑制剂的情况下, 例如, bafilomycin A1 (Baf)13, 实验处理效应直接反映了自噬包封活性的变化。在不存在降解抑制剂的情况下,可测量LDH包封与降解变化的净效应。
乳酸脱氢酶(LDH)截留实验具有广泛的适用性,因为LDH在所有细胞类型中均高表达且普遍存在,其水平可通过酶法检测进行准确定量14,15。然而,最初在原代大鼠肝细胞中建立的实验方案12 耗时较长,需要大量起始材料,并依赖于自制的电击电容器。我们通过逐步优化,将该方法改进为一种简便且通用的技术。首先,将原始方案调整适用于哺乳动物细胞系16;其次,显著缩小了实验规模3,9;第三,删除了多个操作步骤,包括繁琐的密度垫层步骤17,这使得实验规模得以进一步缩小,从最初每样本使用10 cm培养皿16 降至每样本仅使用12孔板中的一个孔(i.e.,起始材料减少约15倍)17;第四,我们确定了一种可商用的电穿孔装置,能够替代自制的电击电容器17。
本文介绍了乳酸脱氢酶(LDH)截留实验的最新实验方案,与先前发表的方法相比,该方案进一步简化了操作步骤17。此外,展示了在多种不同细胞类型中获得的一系列典型实验结果,并且重要的是,提供了通过药理学手段以及基因敲低和基因敲除方法对该实验技术进行验证的多条实验证据。有关整个实验流程的总体示意图,请参见图1。
访问受限。请登录或开始试用以查看此内容。
方案
1. 细胞接种与处理
- 在75 cm²培养瓶中培养贴壁细胞2 含5% CO₂的湿润化培养箱中的组织培养瓶2 在 37 °C,使用相应细胞类型的最佳培养基。让细胞生长至接近汇合的单层状态。
注意:LNCaP、HEK293、小鼠胚胎成纤维细胞(MEFs)、BJ、MCF-7 和 RPE-1 细胞使用添加 10% 胎牛血清(FBS)的 RPMI 1640 培养基。- 用 3 mL 洗涤细胞 37 °C 磷酸盐缓冲液(PBS),pH 7.4。将 PBS 替换为 3 mL 0.25%(w/v)胰蛋白酶-乙二胺四乙酸(EDTA),并在含 5% CO₂ 的湿润培养箱中孵育培养瓶2 在 37 °C 直到细胞脱落(2–5 分钟)。
- 用含有10% FBS的7 mL培养基重悬细胞,混匀 10 µL 细胞悬液等分试样与 10 µL 0.4% 台盼蓝置于微量离心管中,使用 0.5–20 µL 移液枪头。使用同一枪头立即填充计数板载玻片,并在自动细胞计数仪中计数细胞。
- 使用含10% FBS的培养基对步骤1.1.2所得细胞悬液进行适当稀释(见下文注释),每孔加入1 mL稀释后的细胞悬液至12孔组织培养板中(表面积约3.8 cm²)2) 采用无菌技术操作。置于含5% CO₂的加湿培养箱中培养。2 在 37 °C 直至达到所需细胞密度 例如, 收获时细胞融合度为60–90%。
注意:细胞悬液的合适稀释度因细胞类型、实验处理的持续时间及类型而异,需根据收获时所需的细胞汇合度进行经验性评估。- 对于需要在接种后2天进行处理并收获的实验,接种量为2.5 × 10⁵ LNCaP、HEK293 或 MCF-7 细胞,5 x 104 MEFs,4 x 105 BJ,或 1.5 × 10⁵ 12 孔板中每孔的 RPE-1 细胞
- 对于贴壁较弱的细胞,应使用针对特定细胞类型推荐的包被物对培养板进行包被。对于LNCaP(和HEK293)细胞,使用聚-D-赖氨酸(PDL)包被的培养板。
- 为此,添加 500 µL PDL 在 2.5 µg/mL 在无菌 H2向每个孔中加入 O,并在室温(20–25 °C)。用吸液法去除PDL,并用1 mL无菌H₂O短暂洗涤每孔2O.
注意:通常情况下,步骤1.2.1不进行任何实验处理。但如果进行RNA干扰实验,可在接种细胞时同步开始反向转染,以方便操作9.
- 每种条件下的实验处理需设复孔或三孔。
- 例如,用 50 nM 的 mTOR 抑制剂 Torin1 处理细胞,该试剂通常可有效诱导自噬性隔离;或者通过用 1 mL 无氨基酸的 Earle's 平衡盐溶液(EBSS)洗涤细胞,随后在含 5% CO₂ 的湿润化培养箱中用 1 mL EBSS 培养细胞,对其进行急性血清和氨基酸饥饿处理2 在 37 °C.
- 留一组孔不作处理,以确定可沉淀LDH的背景水平。
- 加入过量的吸附后抑制剂巴佛洛霉素 A1(Baf)3,13,16,18 在细胞收获前3–4小时,在无或有实验处理的条件下,将细胞置于含5% CO₂的湿润化培养箱中孵育。2 在 37 °C.
- LNCaP、HEK293、BJ、MCF-7 和 RPE-1 细胞使用 100 nM Baf,MEF 细胞使用 10 nM Baf。
- 对于持续时间仅为 3–4 小时的实验处理(如步骤 1.3.1 中示例的处理),在开始处理的同时加入 Baf。对于较长的实验处理,则在收获前 3–4 小时加入 2 µL 将500倍浓缩的Baf储存液直接加入培养基中。
- 加入Baf后立即通过振荡混匀培养板。此时也建议加入大自噬封存抑制剂作为对照, 例如, 10 mM 的广谱磷脂酰肌醇3-激酶(PI3K)抑制剂3-甲基腺嘌呤(3MA)19,或 10 µM 选择性III类PI3K抑制剂SAR-40520.
2. 细胞收获与电破裂处理的准备
- 治疗期结束时,用吸力吸去培养基,每孔加入 200 µL 预热至 37 °C 的细胞解离液。在 37 °C 下孵育至细胞脱落(通常约 5 分钟)。
注意:可使用 0.25%(w/v)胰蛋白酶-EDTA 替代细胞解离液,但后者含有 DNase,有助于降低解离后细胞的黏度。只要将培养基彻底吸除,添加胰蛋白酶-EDTA 或细胞解离液前无需洗涤细胞。 - 每孔加入 500 µL 室温(20–25 °C)、pH 7.4 的含 2%(w/v)牛血清白蛋白(BSA)的 PBS,用移液器吹打至无可见细胞团块。立即将细胞悬液转移至预冷的 1.5 mL 微量离心管中,置于冰上。
注意:除非另有说明,后续所有步骤均需在冰上操作。 - 在 4 °C 条件下,以 400 × g 离心 5 分钟,使细胞沉淀。
- 用吸力彻底吸去上清液,尽量使细胞沉淀保持干燥。
- 每管加入 400 µL 10%(w/v)蔗糖溶液(以超纯 H2O 配制)。
3. 质膜电穿孔及可沉淀细胞组分与全细胞组分的分离
- 使用移液器重悬细胞沉淀,以获得接近单细胞的悬浮液,并将其转移至4 mm电穿孔比色皿中。
注意:通常使用100–1,000 µL移液器枪头上下吹打约10–15次即可。 - 将比色皿放入指数衰减波电穿孔仪中,在800 V、25 µF和400 Ω条件下放电一次单脉冲;这些参数可产生约8 ms持续时间的脉冲。
- 使用新的移液器枪头将细胞裂解物转移至含有400 µL预冷磷酸盐缓冲蔗糖溶液(100 mM 单磷酸钠、2 mM 二硫苏糖醇(DTT)、2 mM EDTA 和 1.75% 蔗糖,pH 7.5)的1.5 mL微量离心管中,并通过移液短暂混匀。
- 可选:为验证质膜电穿孔效率17,取步骤3.3中稀释后的细胞裂解物10 µL与10 µL 0.4% 台盼蓝在1.5 mL微量离心管中混合。转移至计数室,确认台盼蓝阳性细胞比例 >99%。
- 将样品在室温(20–25 °C)下静置30分钟,确认台盼蓝阳性细胞比例仍保持 >99%。
- 可选:为验证电穿孔未过度剧烈(即未破坏细胞内细胞器),按上述步骤1.1–3.3操作,但使用更大的起始材料(如6孔板中一个约80%汇合度的细胞层孔),并在步骤2.5中使用150 µL 10%蔗糖,在步骤3.3中使用150 µL不含DTT的磷酸盐缓冲蔗糖溶液。
- 使用移液器小心地将200 µL稀释后的细胞裂解物溶液叠加在2 mL离心管中1.2 mL磷酸盐缓冲8%(w/v)密度梯度介质(例如,8% Nycodenz、50 mM 磷酸钠、2.2% 蔗糖、1 mM EDTA)的密度垫上。在具有软模式功能(用于温和加速和减速)的微量离心机中,于4 °C下以20,000 x g离心45分钟,然后小心将离心管置于冰上。
- 小心移除约200 µL上层液体中的60 µL,确保不吸取任何密度梯度介质溶液,并转移至新的微量离心管。
注意:此部分应包含极高纯度的胞质溶胶,称为“细胞汁”21。 - 使用标准技术及4–20%梯度凝胶16,通过蛋白质印迹分析细胞器内含蛋白,检测上述步骤获得组分的纯度。
- 例如,分别对组织蛋白酶B21、细胞色素c和蛋白质二硫键异构酶进行免疫印迹,以验证步骤3.2中的电击未破坏溶酶体、线粒体或内质网;同时对乳酸脱氢酶(LDH)进行免疫印迹,以确认细胞汁中存在胞质蛋白。
- 同时,对来自全细胞裂解物溶液的蛋白提取物进行免疫印迹16,以确认所用抗体能够检测所评估的细胞器内含蛋白。
- 可选:为验证质膜电穿孔效率17,取步骤3.3中稀释后的细胞裂解物10 µL与10 µL 0.4% 台盼蓝在1.5 mL微量离心管中混合。转移至计数室,确认台盼蓝阳性细胞比例 >99%。
- 对每个样品重复步骤3.1–3.3。
- 从每个稀释后的细胞裂解物溶液(步骤3.3获得)中取出550 µL,加入含有900 µL预冷重悬缓冲液(50 mM 单磷酸钠、1 mM DTT、1 mM EDTA 和 5.9% 蔗糖,pH 7.5)并补充0.5% BSA和0.01% Tween-20的2 mL微量离心管中,并通过移液短暂混匀。
- 在4 °C下以18,000 x g离心45分钟,获得含有“沉淀LDH”的沉淀物。彻底吸除上清液(使用抽吸法),使沉淀尽可能干燥。将样品置于-80 °C冰箱中保存。
- 从每个稀释后的细胞裂解物溶液(步骤3.3获得)中转移150 µL至新管中,并将样品置于-80 °C冰箱中保存。这些样品用于测定细胞中“总LDH”水平。
注意:此时实验可暂停任意长时间。
4. 乳酸脱氢酶的提取及乳酸脱氢酶酶活性的测定
- 将步骤 3.6 中的“沉淀的 LDH”和步骤 3.7 中的“总 LDH”样品在冰上解冻。
- 向“总 LDH”样品中加入 300 µL 含 1.5% Triton X-405 的冰上预冷重悬缓冲液(最终 Triton X-405 浓度为 1%)。在冷室(4–8 °C)中将样品置于滚轴混合仪上旋转 30 分钟。
- 向“沉淀的 LDH”样品中加入 750 µL 含 1% Triton X-405 的冰上预冷重悬缓冲液,用移液器重悬沉淀,直至形成均一溶液。
- 将步骤 4.2 和 4.3 的样品在 4 °C 下以 18,000 xg 离心 5 分钟,以沉淀未溶解的细胞碎片。
- 将 4 份冰上预冷的 65 mM 咪唑(pH 7.5)/0.75 mM 丙酮酸与 1 份冰上预冷的 65 mM 咪唑(pH 7.5)/1.8 mM NADH 混合,制备工作液,该工作液在 4 °C 下至少可稳定保存三周。
- 取步骤 4.4 所得上清液 3–30 µL,与 200 µL 步骤 4.5 所得工作液混合。
- 通过测定乳酸脱氢酶(LDH)催化反应中还原型烟酰胺腺嘌呤二核苷酸(NADH)在 37 °C 下 340 nm 处吸光度的下降速率,相对于已知 LDH 浓度的标准品,确定 LDH 含量。持续进行吸光度测定,直至反应接近完成,即 340 nm 处的吸光度不再随时间变化。
注意:这是测定 LDH 活性的经典生化方法。尽管本方案在 37 °C 下进行反应,但也可在室温(20–25 °C)下进行,若采用手动分光光度法测定,建议使用室温条件。本方案使用自动化多功能分析仪,可自动将样品与工作液在 96 孔板中混合,并在 37 °C 下每 20 秒测定一次 340 nm 处的吸光度,持续 3 分钟。随后,仪器软件通过将吸光度随时间变化的斜率与已知 LDH 浓度标准品建立的标准曲线进行比较,计算出 LDH 浓度,以单位(U)/L 表示。该方法的线性检测范围为 30–1,500 U/L。此外,市面上也有多种商用 LDH 检测试剂盒可供选择,其中一些试剂盒通过将酶促反应与显色或荧光产物的生成相偶联,实现除紫外分光光度法以外的检测方式,并具有不同的线性检测范围。
5. 乳酸脱氢酶封存率的计算
- 根据稀释倍数和取样情况,计算每个样品中沉淀的乳酸脱氢酶(LDH)占总LDH的百分比:
沉淀LDH (%) =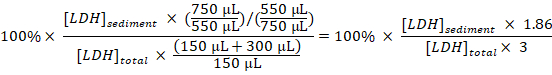
注意:在步骤3.1–3.3中,由于电穿孔比色皿的转移操作,约有50 µL样品损失。因此,在步骤3.3中应按总共750 µL(而非800 µL)稀释后的细胞裂解液进行计算。 - 用实验处理细胞样品测得的沉淀LDH百分比减去未处理细胞样品(步骤1.3.2)测得的沉淀LDH百分比,再除以Baf处理时间,得到采样期间每小时被隔离的LDH百分比:
隔离LDH (%/h) =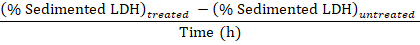
访问受限。请登录或开始试用以查看此内容。
结果
使用本方案中描述的方法,测量了多种不同哺乳动物细胞系中的巨自噬捕获活性,包括 LAPC4、DU145、Huh7、PNT2A、HeLa、VCaP、H3122、Hec1A、MCF-7、T47D、U2OS、PC3、G361、小鼠胚胎成纤维细胞(MEFs)、RPE-1、HEK293、BJ 和 LNCaP 细胞。在基础条件下(使用完全、营养丰富的培养基)或在急性缺乏血清和氨基酸的细胞中评估了捕获活性(a 真正有效的 自噬诱导条件22)。结果表明,在饥饿条件下,不同细胞系中的乳酸脱氢酶(LDH)截留活性存在显著差异,LAPC4、DU145、Huh7 和 PNT2 细胞中该活性几乎检测不到(数据未显示),而在 LNCaP 细胞中则约为 1.6%/h(图2A)。在饥饿状态下的原代大鼠肝细胞中观察到的速率高于上述细胞系,通常为2.5–4%/h23在基础条件下,所测试的细胞系中有一半几乎...
访问受限。请登录或开始试用以查看此内容。
讨论
综上所述,本文所述方案是一种可靠且广泛应用的方法,可用于监测哺乳动物细胞中的整体自噬捕获活性。与原始方法12,16相比,我们删除了多个不必要的步骤,简化了其余部分步骤,并进行了显著的规模缩小。因此,该方案在成本和时间效率方面得到了极大改进,现在处理相同数量的样本所需时间不到原始方案的一半。对于24个样本,第2–3步(第1天)大约需要½小时的准备时间和3小时的有效操作时间,而第4步(第2天)可在约2小时内完成(时间估算基于所有必要缓冲液已预先配制好的前提)。由于第1天的检测通常需要在细胞处理之后进行,包括使用Baf或其他自溶酶体LDH降解抑制剂孵育3–4小时,因此将检测分为连续两天进行较为方便。然而,整个检测也可在同一天内完成。在这种情况下,在第3.6 和3.7步中将样本在液氮中速冻将节省时间。尽管当前方案尚未验证 这一操作,但很可能可以完全省略冻融步骤,因为在原代大鼠肝细胞中进行的更复杂版本检测已无需此步骤23。
访问受限。请登录或开始试用以查看此内容。
致谢
本工作获得了挪威研究理事会、奥斯陆大学、安德斯·亚尔基金会、南森基金会以及亨里克·霍曼纪念遗产基金的资助。我们感谢 Noboru Mizushima 博士提供的 ATG5+/+ MEFs 和 ATG5-/- MEFs,Masaaki Komatsu 博士提供的 ATG7+/+ MEFs 和 ATG7-/- MEFs,以及 Shizuo Akira 博士提供的 ATG9A+/+ MEFs 和 ATG9A-/- MEFs。我们感谢 Frank Sætre 提供的技术支持,以及 Per O. Seglen 博士在方法学方面的建设性讨论。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 和 2 mL 微量离心管 | Eppendorf | 211-2130 和 211-2120 | |
| 12 孔板 | Falcon | 353043 | |
| Accumax 细胞解离液 | Innovative Cell Technologies | A7089 | 分装后于 -20 °C 可保存数年,冰箱中可保存数月 |
| Bafilomycin A1 | Enzo | BML-CM110-0100 | 溶于 DMSO |
| BJ 细胞 | ATCC | CRL-2522 | 使用代次 <30 |
| 牛血清白蛋白 (BSA) | VWR | 422361V | |
| Burker 计数室 | Fisher Scientific | 139-658585 | |
| Countess 细胞计数板 | ThermoFisher Scientfic | C10228 | |
| Countess II 自动细胞计数仪 | ThermoFisher Scientfic | AMQAX1000 | |
| Burker 计数室盖玻片 | Fisher Scientific | 139-658586 | |
| Criterion Tris-HCl 凝胶,4–20%,26 孔,15 µL,13.3 cm × 8.7 cm (W × L) | Bio-Rad | 3450034 | |
| DTT | Sigma-Aldrich | D0632 | |
| Earle's 平衡盐溶液 (EBSS) | Gibco | 24010-043 | 含 0.1% 葡萄糖 |
| EDTA | Sigma-Aldrich | E7889 | |
| 电穿孔比色皿 (4 mm) | Bio-Rad | 1652088 | |
| 指数衰减波电穿孔仪 | BTX Harvard Apparatus | EMC 630 | |
| 胎牛血清 (FBS) | Sigma | F7524 | RPMI 1640 培养基中终浓度为 10% |
| HEK293 细胞 | ATCC | CRL-1573 | |
| 咪唑 | Sigma-Aldrich | 56750 | 将 65 mM 溶液高压灭菌后置于冰箱中可保存数月 |
| 培养箱;Autoflow IR 直接加热 CO2 培养箱 | NuAire | NU-5510E | |
| Lipofectamine RNAiMAX 转染试剂 | ThermoFisher | 13778150 | |
| LNCaP 细胞 | ATCC | CRL-1740 | 使用代次 <30 |
| 3-甲基腺嘌呤 (3MA) | Sigma-Aldrich | M9281 | 100 mM 储存液溶于 RPMI,-20 °C 保存。 使用前于 65 °C 加热 10 分钟,工作终浓度为 10 mM |
| 制冷微量离心机 | Beckman Coulter Life Sciences | 368831 | |
| 带软模式功能的制冷微量离心机 | Eppendorf | Eppendorf 5417R | |
| MRT67307 盐酸盐 (ULKi) | Sigma-Aldrich | SML0702 | 抑制 ULK 激酶活性。溶于 DMSO。 |
| MaxMat 多功能分析仪 | Erba Diagnostics | PL-II | |
| MCF7 细胞 | ATCC | HTB-22 | |
| NADH | Merck-Millipore | 1.24644.001 | |
| Nycodenz | Axis-Shield | 1002424 | |
| Opti-MEM 低血清培养基 | ThermoFisher | 31985062 | |
| 磷酸盐缓冲液 (PBS) | Gibco | 20012-019 | |
| 移液器吸头 3 (0.5–20 µL) | VWR | 732-2223 | Thermo Fischer ART 防污染吸头 |
| 移液器吸头 (1–200 µL) | VWR | 732-2207 | Thermo Fischer ART 防污染吸头 |
| 移液器吸头 (100–1,000 µL) | VWR | 732-2355 | Thermo Fischer ART 防污染吸头 |
| 移液器 | ThermoFisher | 4701070 | Finnpipette F2 GLP 套件 |
| 聚-D-赖氨酸 | Sigma-Aldrich | P6407-10X5MG | 用无菌 H2O 配制成 1 mg/mL 储存液。该溶液在 -20 °C 至少可稳定保存 1 年。 |
| 丙酮酸盐 | Merck-Millipore | 1066190050 | |
| RPE-1 细胞 (hTERT RPE-1) | ATCC | CRL-4000 | |
| RPMI 1640 | Gibco | 21875-037 | |
| SAR-405 | ApexBio | A8883 | 抑制 III 类磷脂酰肌醇 3-激酶 (PIK3C3)。溶于 DMSO。 |
| Silencer Select 阴性对照 #1 (siCtrl) | ThermoFisher/Ambion | 4390843 | |
| Silencer Select ATG9 靶向 siRNA (siATG9A) | ThermoFisher/Ambion | s35504 | |
| Silencer Select FIP200 靶向 siRNA (siFIP200) | ThermoFisher/Ambion | s18995 | |
| Silencer Select ULK1 靶向 siRNA (siULK1) | ThermoFisher/Ambion | s15964 | |
| Silencer Select ULK2 靶向 siRNA (siULK2) | ThermoFisher/Ambion | s18705 | |
| Silencer Select GABARAP 靶向 siRNA (siGABARAP) | ThermoFisher/Ambion | s22362 | |
| Silencer Select GABARAPL1 靶向 siRNA (siGABARAPL1) | ThermoFisher/Ambion | s24333 | |
| Silencer Select GABARAPL2 靶向 siRNA (siGABARAPL2) | ThermoFisher/Ambion | s22387 | |
| 磷酸二氢钠二水合物 (NaH2PO4 • 2H2O) | Merck-Millipore | 1.06580.1000 | |
| 磷酸氢二钠二水合物 (Na2HPO4 • 2H2O ) | Prolabo | 28014.291 | |
| 蔗糖 | VWR | 443816T | 水中终浓度为 10%;经 0.45 µm 滤膜过滤后置于冰箱中可保存数月 |
| 毒胡萝卜素 | Sigma-Aldrich | T9033 | 抑制 SERCA 内质网 Ca2+ 泵。溶于 DMSO。 |
| Triton X-405 | Sigma-Aldrich | X405 | 终浓度 1% |
| 台盼蓝染液 0.4% | Molecular Probes | T10282 | |
| 胰蛋白酶-EDTA (0.25% w/v 胰蛋白酶) | Gibco | 25200-056 | |
| Tween-20 | Sigma-Aldrich | P2287 | 终浓度 0.01% |
参考文献
- Rubinsztein, D. C., Frake, R. A. Yoshinori Ohsumi's Nobel Prize for mechanisms of autophagy: from basic yeast biology to therapeutic potential. J R Coll Physicians Edinb. 46 (4), 228-233 (2016).
- Mizushima, N. The exponential growth of autophagy-related research: from the humble yeast to the Nobel Prize. FEBS Lett. 591 (5), 681-689 (2017).
- Seglen, P. O., et al. Macroautophagic cargo sequestration assays. Methods. 75, 25-36 (2015).
- Hoyvik, H., Gordon, P. B., Seglen, P. O. Use of a hydrolysable probe, [14C]lactose, to distinguish between pre-lysosomal and lysosomal steps in the autophagic pathway. Exp Cell Res. 166 (1), 1-14 (1986).
- Plomp, P. J., Gordon, P. B., Meijer, A. J., Hoyvik, H., Seglen, P. O. Energy dependence of different steps in the autophagic-lysosomal pathway. J Biol Chem. 264 (12), 6699-6704 (1989).
- Gordon, P. B., Seglen, P. O. Prelysosomal convergence of autophagic and endocytic pathways. Biochem Biophys Res Commun. 151 (1), 40-47 (1988).
- Holen, I., Gordon, P. B., Seglen, P. O. Protein kinase-dependent effects of okadaic acid on hepatocytic autophagy and cytoskeletal integrity. Biochem J. 284, Pt 3 633-636 (1992).
- Kabeya, Y., et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. Embo j. 19 (21), 5720-5728 (2000).
- Szalai, P., et al. Autophagic bulk sequestration of cytosolic cargo is independent of LC3, but requires GABARAPs. Exp Cell Res. 333 (1), 21-38 (2015).
- Nguyen, T. N., et al. Atg8 family LC3/GABARAP proteins are crucial for autophagosome-lysosome fusion but not autophagosome formation during PINK1/Parkin mitophagy and starvation. J Cell Biol. , (2016).
- Pontano Vaites, L., Paulo, J. A., Huttlin, E. L., Harper, J. W. Systematic analysis of human cells lacking ATG8 proteins uncovers roles for GABARAPs and the CCZ1/MON1 regulator C18orf8/RMC1 in macro and selective autophagic flux. Mol Cell Biol. , (2017).
- Kopitz, J., Kisen, G. O., Gordon, P. B., Bohley, P., Seglen, P. O. Nonselective autophagy of cytosolic enzymes by isolated rat hepatocytes. J Cell Biol. 111 (3), 941-953 (1990).
- Bowman, E. J., Siebers, A., Altendorf, K. Bafilomycins: a class of inhibitors of membrane ATPases from microorganisms, animal cells, and plant cells. Proc Natl Acad Sci U S A. 85 (21), 7972-7976 (1988).
- Hadjivassiliou, A. G., Rieder, S. V. The enzymatic assay of pyruvic and lactic acids. A definitive procedure. Clin Chim Acta. 19 (3), 357-361 (1968).
- Bergmeyer, H. U., Bernt, E. Methods of enzymatic analysis (2nd English ed). Bergmeyer, H. U. 2, Verlag Chemie. 574-579 (1974).
- Engedal, N., et al. Modulation of intracellular calcium homeostasis blocks autophagosome formation. Autophagy. 9 (10), 1475-1490 (2013).
- Luhr, M., et al. A Simple Cargo Sequestration Assay for Quantitative Measurement of Nonselective Autophagy in Cultured Cells. Methods Enzymol. 587, 351-364 (2017).
- Mousavi, S. A., et al. Effects of inhibitors of the vacuolar proton pump on hepatic heterophagy and autophagy. Biochim Biophys Acta. 1510 (1-2), 243-257 (2001).
- Seglen, P. O., Gordon, P. B. 3-Methyladenine: specific inhibitor of autophagic/lysosomal protein degradation in isolated rat hepatocytes. Proc Natl Acad Sci U S A. 79 (6), 1889-1892 (1982).
- Ronan, B., et al. A highly potent and selective Vps34 inhibitor alters vesicle trafficking and autophagy. Nat Chem Biol. 10 (12), 1013-1019 (2014).
- Saetre, F., Hagen, L. K., Engedal, N., Seglen, P. O. Novel steps in the autophagic-lysosomal pathway. Febs j. 282 (11), 2202-2214 (2015).
- Klionsky, D. J., et al. Guidelines for the use and interpretation of assays for monitoring autophagy (3rd edition). Autophagy. 12 (1), 1-222 (2016).
- Seglen, P. O., Overbye, A., Saetre, F. Sequestration assays for mammalian autophagy. Methods Enzymol. 452, 63-83 (2009).
- Hurley, J. H., Young, L. N. Mechanisms of Autophagy Initiation. Annu Rev Biochem. 86, 225-244 (2017).
- Thastrup, O., Cullen, P. J., Drobak, B. K., Hanley, M. R., Dawson, A. P. Thapsigargin, a tumor promoter, discharges intracellular Ca2+ stores by specific inhibition of the endoplasmic reticulum Ca2(+)-ATPase. Proc Natl Acad Sci U S A. 87 (7), 2466-2470 (1990).
- Kuma, A., et al. The role of autophagy during the early neonatal starvation period. Nature. 432 (7020), 1032-1036 (2004).
- Komatsu, M., et al. Impairment of starvation-induced and constitutive autophagy in Atg7-deficient mice. J Cell Biol. 169 (3), 425-434 (2005).
- Saitoh, T., et al. Atg9a controls dsDNA-driven dynamic translocation of STING and the innate immune response. Proc Natl Acad Sci U S A. 106 (49), 20842-20846 (2009).
- Gordon, P. B., Seglen, P. O. Autophagic sequestration of [14C]sucrose, introduced into rat hepatocytes by reversible electro-permeabilization. Exp Cell Res. 142 (1), 1-14 (1982).
- An, H., Harper, J. W. Systematic analysis of ribophagy in human cells reveals bystander flux during selective autophagy. Nat Cell Biol. 20 (2), 135-143 (2018).
- Fass, E., Shvets, E., Degani, I., Hirschberg, K., Elazar, Z. Microtubules support production of starvation-induced autophagosomes but not their targeting and fusion with lysosomes. J Biol Chem. 281 (47), 36303-36316 (2006).
- Velikkakath, A. K., Nishimura, T., Oita, E., Ishihara, N., Mizushima, N. Mammalian Atg2 proteins are essential for autophagosome formation and important for regulation of size and distribution of lipid droplets. Mol Biol Cell. 23 (5), 896-909 (2012).
- Øverbye, A., Sætre, F., Hagen, L. K., Johansen, H. T., Seglen, P. O. Autophagic activity measured in whole rat hepatocytes as the accumulation of a novel BHMT fragment (p10), generated in amphisomes by the asparaginyl proteinase, legumain. Autophagy. 7 (9), 1011-1027 (2011).
- Kominami, E., Hashida, S., Khairallah, E. A., Katunuma, N. Sequestration of cytoplasmic enzymes in an autophagic vacuole-lysosomal system induced by injection of leupeptin. J Biol Chem. 258 (10), 6093-6100 (1983).
- Rosado, C. J., Mijaljica, D., Hatzinisiriou, I., Prescott, M., Devenish, R. J. Rosella: a fluorescent pH-biosensor for reporting vacuolar turnover of cytosol and organelles in yeast. Autophagy. 4 (2), 205-213 (2008).
- Katayama, H., Kogure, T., Mizushima, N., Yoshimori, T., Miyawaki, A. A sensitive and quantitative technique for detecting autophagic events based on lysosomal delivery. Chem Biol. 18 (8), 1042-1052 (2011).
- Ogier-Denis, E., et al. A heterotrimeric Gi3-protein controls autophagic sequestration in the human colon cancer cell line HT-29. J Biol Chem. 270 (1), 13-16 (1995).
- Seglen, P. O., Gordon, P. B., Tolleshaug, H., Hoyvik, H. Use of [3H]raffinose as a specific probe of autophagic sequestration. Exp Cell Res. 162 (1), 273-277 (1986).
- Luhr, M., Sætre, F., Engedal, N. The Long-lived Protein Degradation Assay: an Efficient Method for Quantitative Determination of the Autophagic Flux of Endogenous Proteins in Adherent Cell Lines. Bio-protocol. 8 (9), e2836(2018).
- Ronning, O. W., Pettersen, E. O., Seglen, P. O. Protein synthesis and protein degradation through the cell cycle of human NHIK 3025 cells in vitro. Exp Cell Res. 123 (1), 63-72 (1979).
- Seglen, P. O., Grinde, B., Solheim, A. E. Inhibition of the lysosomal pathway of protein degradation in isolated rat hepatocytes by ammonia, methylamine, chloroquine and leupeptin. Eur J Biochem. 95 (2), 215-225 (1979).
- Seglen, P. O., Solheim, A. E. Valine uptake and incorporation into protein in isolated rat hepatocytes. Nature of the precursor pool for protein synthesis. Eur J Biochem. 85 (1), 15-25 (1978).
- Bauvy, C., Meijer, A. J., Codogno, P. Assaying of autophagic protein degradation. Methods Enzymol. 452, 47-61 (2009).
- Engedal, N., Seglen, P. O. Autophagy of cytoplasmic bulk cargo does not require LC3. Autophagy. 12 (2), 1-3 (2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
