本方案描述了一种在96孔板体系中由人多能干细胞生成肝细胞样细胞的半自动化方法。该过程快速且成本效益高,可用于生产质量可控的肝细胞样细胞批次,服务于基础和应用型人类研究。
本文内容
摘要
摘要
人类多能干细胞是人类组织的一种可再生来源。我们的研究重点是利用人类胚胎干细胞(hESCs)和诱导性多能干细胞(iPSCs)生成人类肝组织。目前的分化方法所产生的类肝细胞(HLCs)表现出胎儿和成体特征的混合状态。为了改善细胞表型,我们已完全明确了分化过程及细胞微环境,从而获得了基因表达和 功能均得到提升的细胞群体。尽管这些研究取得了进展,但由于操作繁琐且批次间存在差异,用于筛选的大规模多孔板细胞制备能力仍受到限制。为解决这一问题,我们开发了一种半自动化平台,用于将多能干细胞分化为类肝细胞。干细胞的接种与分化过程采用液体处理系统和自动移液系统,在 96孔板格式中完成。分化完成后,通过自动化显微镜和多孔板发光检测仪对细胞表型进行分析。
引言
原代人肝细胞(PHHs)是目前肝脏生物医学研究的标准模型。尽管具有诸多优势,PHHs仍存在来源有限、表型不稳定等局限性1。人胚胎干细胞(ESCs)和人诱导多能干细胞(iPSCs)已被提出作为生物医学研究的强大资源,有望提供可再生的人体组织来源,包括肝脏组织2,3,4。目前的肝细胞分化方案所获得的细胞能够表达与PHHs相似的肝细胞标志物、基因及功能3,4,5,6,7,8,9,10,11。近年来,使用明确成分的材料和基质(如重组层粘连蛋白)已显著改善了细胞表型及实验的可重复性5,12,13,14。
传统的细胞培养技术在很大程度上依赖于手动移液,既耗时又容易出错。这限制了检测的通量以及可使用的培养板规格。迄今为止,大多数描述肝样细胞(HLCs)生成的研究均具有较高的劳动强度,因此规模较小15,16,17。
液体处理与移液系统的最新进展,结合自动化显微镜和实验室分析仪,使得开发出最大限度减少人为干预的实验流程成为可能。我们利用这些技术,建立了一种半自动化的分化系统,可用于生成大量人肝组织 ,服务于基础与应用型生物医学研究。该方法适用于人胚胎干细胞(ESC)和诱导多能干细胞(iPSC)系,仅需根据具体细胞系进行少量调整。将该系统与高内涵分析相结合,我们证明了肝样细胞(HLC)表型分析可以更节省时间,并实现规模化操作18,19,20,21。
总之,本文所述的细胞培养技术自动化已提高了实验的可靠性、时间管理效率以及检测通量。
方案
1. 将人多能干细胞(hPSCs)接种至 用于肝细胞分化的96孔板
注意:本实验方案中使用的试剂和设备已列于表1中。本实验所用培养基必须无菌,并在室温下用于细胞培养。本部分所述的所有试剂/溶液用量均基于96孔板的单个孔,除非另有说明。
- 准备包被层粘连蛋白的96孔板。
- 将一管重组层粘连蛋白521(100 µg/mL)(LN-521)在4 °C条件下解冻2小时至过夜。
- 用预冷的1×杜氏磷酸盐缓冲液(DPBS)(含Ca2+/Mg2+)稀释LN-521,配制5 µg/mL的溶液。
- 使用配备标准管路分配卡盒的自动液体处理分配器,向96孔板的每孔加入50 µL LN-521溶液。
注意:除非另有说明,所有液体体积的分配均使用配备标准管路分配卡盒的自动液体处理分配器完成。先对溶液进行预润,使液体到达卡盒的分配端,然后开始分配。可根据需要重复操作,以在同一实验中制备多个96孔板。 - 将包被LN521的板在37 °C、5% CO2条件下孵育2至4小时。
注意:包被LN521的板可在4 °C保存最多两周。请将板密封后平放,以避免蒸发和污染。
- 将所需数量的预包被板在37 °C预热30分钟至1小时。
- 使用8通道吸液适配器吸除包被表面残留的LN-521溶液。
注意:必须避免任何与包被表面的接触,以防涂层降解。 - 立即向每孔加入50 µL含10 µM Rho相关激酶(ROCK)抑制剂Y27632的mTeSR1培养基,并将板置于37 °C、5% CO2培养箱中,直至进行细胞接种。
注意:请勿让包被层粘连蛋白的孔干燥。 - 用含10 µM ROCK抑制剂Y27632的mTeSR1培养基制备浓度为3 × 10⁵ 细胞/mL的细胞悬液。
注意:不同细胞系的接种密度需进行优化。- 吸除先前所述方法培养在LN-521上、处于约75%至85%融合度的未分化hPSC培养皿中的培养基12。
注意:hPSC在含mTeSR1培养基中培养于LN-521上,每24小时更换一次培养基,并在细胞融合度达到80%时定期传代,方法如前所述12。 - 用5 mL室温1× DPBS(不含Ca2+/Mg2+)洗涤细胞,然后吸除缓冲液。
- 向细胞中加入5 mL 1×温和细胞解离试剂,于37 °C孵育6至8分钟以实现细胞解离。
注意:为终止反应,需在显微镜下观察细胞从基质上的脱离情况。细胞应部分脱离培养皿。若未达到此状态,可额外延长孵育1至2分钟。 - 吸除温和细胞解离试剂以终止反应,向细胞中加入5 mL含10 µM ROCK抑制剂Y27632的新鲜mTeSR1培养基。使用细胞刮刀将细胞从基质上刮下,并用P1000枪头反复吹打数次以混匀。
- 根据台盼蓝染色排除法,使用血细胞计数板计数活细胞,并配制所需浓度的细胞悬液。
- 将所需数量的细胞移入无菌15 mL或50 mL离心管中,在室温下以115 × g离心5分钟,使细胞沉淀。
注意:对于H9细胞系,每块96孔板需要5 mL含3 × 10⁵ 细胞/mL的mTeSR1培养基。 - 吸除上清液,轻柔重悬细胞沉淀,于37 °C下在含10 µM ROCK抑制剂Y27632的mTeSR1培养基中获得均一的细胞悬液。
注意:建议使用ROCK抑制剂,因其可提高细胞再接种后的存活率。
- 吸除先前所述方法培养在LN-521上、处于约75%至85%融合度的未分化hPSC培养皿中的培养基12。
- 将50 µL细胞悬液加入已含有50 µL含10 µM ROCK抑制剂Y27632的mTeSR1培养基的96孔板中。
- 接种后,将板放回37 °C、5% CO2的细胞培养箱中孵育24小时,使细胞贴壁。
- 次日观察细胞状态,待细胞间接触建立后撤除ROCK抑制剂。当细胞融合度达到40%时,更换为分化培养基(图1B)。
注意:若细胞融合度高于40%,则该板不适用于H9细胞系的肝样细胞(HLC)分化。
2. 在重组层粘连蛋白上将人多能干细胞分化为肝细胞样细胞 96孔板
- 准备分化培养基和生长因子。
- 通过将人 Activin A 粉末溶解于无菌 PBS 中含 0.2% 牛血清白蛋白(BSA)的溶液,配制人 Activin A 储存液(100 µg/mL)。分装储存液并于 -20 °C 保存。使用时稀释 1:1,000。
- 通过将小鼠 Wnt3a 粉末溶解于无菌 0.2% BSA 溶液,配制小鼠 Wnt3a 储存液(10 µg/mL)。分装储存液并于 -20 °C 保存。使用时稀释 1:200。
- 通过将人肝细胞生长因子(HGF)粉末溶解于无菌 0.2% BSA 溶液,配制人 HGF 储存液(10 µg/mL)。分装储存液并于 -20 °C 保存。使用时稀释 1:1000。
- 通过将 Oncostatin M(OSM)粉末溶解于无菌 0.2% BSA 溶液,配制 OSM 储存液(20 µg/mL)。分装储存液并于 -20 °C 保存。使用时稀释 1:1,000。
- 定型内胚层:配制内胚层分化培养基,成分为在 Roswell Park Memorial Institute 1640(RPMI 1640)基础培养基中添加 2% B27 补充剂(50 倍浓度,不含胰岛素)和 1% 青霉素/链霉素(终浓度分别为 100 IU/mL 和 100 µg/mL)。4 °C 保存,两周内使用。每次更换培养基时,按终浓度 100 ng/mL 和 50 ng/mL 分别添加 Activin A 和 Wnt3a。
- 肝母细胞分化:配制肝母细胞分化培养基,成分为在 knockout DMEM(KO-DMEM)中添加 20% knockout 血清替代物(KSR)、0.5% L-谷氨酰胺替代补充剂、1% 非必需氨基酸(NEAA)、0.1 mM β-巯基乙醇、1% 二甲基亚砜(DMSO)和 1% 青霉素/链霉素(终浓度分别为 100 IU/mL 和 100 µg/mL)。真空过滤后于 4 °C 保存,两周内使用。
- 肝细胞分化:配制肝细胞分化培养基,成分为在 HepatoZYME 培养基中添加 1% L-谷氨酰胺替代补充剂、10 µM 氢化可的松 21-半琥珀酸钠盐(HCC)和 1% 青霉素/链霉素(终浓度分别为 100 IU/mL 和 100 µg/mL)。储存液于 4 °C 保存,两周内使用。每次更换培养基时,按终浓度 10 ng/mL 和 20 ng/mL 分别添加 HGF 和 OSM。
- 接种后 24 小时,使用自动手持式电子多通道移液系统小心吸除培养基,并加入 100 µL 新鲜的内胚层诱导培养基,其中含 100 ng/mL Activin A 和 50 ng/mL Wnt3a。
注意:一旦加入定型内胚层培养基,分化过程即开始。当细胞接种条件优化后,细胞分化通常在 24 小时内启动。除非另有说明,所有培养基更换均通过自动手持式电子多通道移液系统吸除旧培养基,并使用配备标准管分配盒的自动液体处理分配器加入 100 µL 新鲜培养基。实验中使用带 96 孔头的自动手持式电子多通道移液系统,搭配 300 µL 吸头。简而言之,从孔中吸取 90 µL 培养基,避免接触细胞,且在换液过程中切勿使细胞干燥,以减少细胞应激。 - 对于人胚胎干细胞(hESCs),连续三天每日更换内胚层分化培养基。若使用人诱导多能干细胞(hiPSCs),则仅使用 Activin A 将定型内胚层阶段延长额外两天。
- 完成定型内胚层诱导后,更换为 KSR/DMSO 培养基以进行肝母细胞特化,每两天更换一次培养基,持续 5 天。
注意:若孔中存在较多未贴壁细胞,可在下次换液前使用未添加补充剂的 KO-DMEM 清洗细胞一次。由于该步骤持续时间为 5 天,共需进行 3 次换液,最后一次在肝母细胞特化阶段的最后一天进行。 - 完成肝母细胞分化后,更换为 HepatoZYME 培养基以促进肝细胞成熟。去除 KSR/DMSO 培养基后,先用不含补充剂的 HepatoZYME 洗涤细胞一次,然后加入 100 µL 含 10 ng/mL HGF 和 20 ng/mL OSM 的 HepatoZYME 成熟培养基。
- 每 48 小时更换一次培养基,持续 7 至 10 天。在分化第 18 天,通过分析基因表达和 CYP P450 代谢活性对肝样细胞(HLCs)进行表征。
3. 在重组层粘连蛋白上分化的肝细胞样细胞的表征
- 使用免疫染色法检测肝细胞特异性标志物和极性标志物的表达。
- 采用CYP P450检测法测定肝细胞代谢功能,方法如前所述12。
- 测定培养板间的差异,统计每块板每个孔中的总细胞数。
4. 高通量免疫细胞化学与图像采集
- 第18天 分化后,用1×DPBS洗涤细胞3次,加入50 µL 4%多聚甲醛(PFA)固定肝样细胞(HLCs),室温孵育15至30分钟。固定完成后,用PBST(0.1% Tween)洗涤3次(无钙)2+/毫克2+使用自动洗板机进行操作。
注意:本节中的所有洗涤步骤均使用自动洗板机进行,除非另有说明。所有洗涤均遵循相同的方案。 - 通过加入 100 µL PBST(不含 Ca)使膜通透2+/毫克2+)室温孵育20分钟。接着,加入100 µL含10% BSA的PBST进行蛋白封闭,置于板式摇床中轻柔振荡孵育1小时。蛋白封闭后,加入50 µL含1% BSA的PBST溶液,其中包含一抗抗体,4 °C下置于板式摇床中轻柔振荡过夜孵育。
注意:在蛋白封闭和添加抗体之间不要进行洗涤。 - 24 小时后,用 1x DPBS(不含 Ca2+/毫克2+)加入50 µL含1% BSA的PBST溶液作为二抗。室温避光孵育1小时。
- 二抗孵育后,用1×DPBS洗涤3次。加入含DAPI(10 µg/mL)的DPBS溶液50 µL,室温避光孵育5–10分钟。
- 最后,用DPBS洗涤3次,并在孔中保留100 µL的1x DPBS。平板即可用于成像。
注意:平板应在避光条件下于 4 °C 保存,直至成像。 - 使用高内涵成像系统对培养板进行成像,并在每个孔中采集多个视野,以充分代表孔内的细胞情况。利用Columbus软件(高内涵成像分析系统软件)对肝样细胞(HLCs)中不同标志物的表达水平进行定量分析。
注:Columbus 是一种高内涵分析软件,可提供用于细胞表型分析的细胞分割分析。使用 CellProfiler(一种用于生物图像定量分析的开源软件)也可获得类似结果。22.
结果
细胞分化实验采用胚胎干细胞系(H9)进行。使用半自动化平台对细胞进行分化与表征(图1A)。通过自动液体处理分配仪进行基质包被和单细胞接种。当细胞融合度达到40%时(第0天),启动细胞分化程序。使用自动手持式电子多通道移液系统移除培养基,并结合液体处理分配仪添加新鲜培养基,以完成换液操作(图1A)。细胞固定和染色步骤由自动液体处理分配仪与自动板式洗板机联合完成。成像与定量分析采用高内涵成像系统及Columbus软件进行。细胞色素P450活性通过既定的检测方法测定。在底物孵育后,收集细胞上清液,并使用多功能微孔板读板仪记录生物发光信号(图1A)。此外,采用传统的相差显微镜观察肝细胞分化过程中细胞形态的变化(图1B)。
在第18天,通过DAPI染色检测了各孔之间细胞数量的差异(图2A)。每孔采集七个视野图像,并对细胞核数量进行定量分析(图2A)。结果显示,各孔之间无统计学差异,平均每孔细胞数为41,662 ± 3,366个(图2B)。
在第18天,对肝样细胞(HLCs)进行固定,并染色检测典型的肝细胞标志物(图3A-G),同时检测CYP P450活性。HLCs表达多种肝细胞标志物,包括HNF4α(阳性细胞比例为89.2% ±2)、ALB(阳性细胞比例为92.8% ±6)和AFP(阳性细胞比例为61.8% ±2)。HLCs还表达CYP P450蛋白CYP2D6和CYP3A4,并表现出明显的多边形形态,E-钙黏蛋白(E-Cadherin)蛋白的表达证实了这一点。在第18天测得HLCs的CYP P450活性,其中CYP1A2活性为295,906 ±45,828 RLU/mL/mg蛋白,CYP3A活性为1,066,112 ±177,416 RLU/mL/mg蛋白(图3H)。
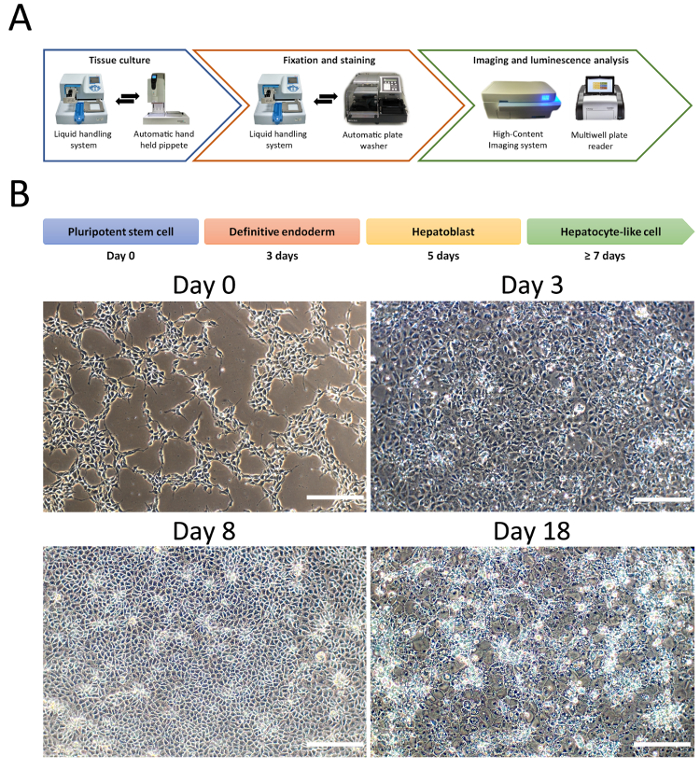
图1:在96孔板格式中由PSCs向肝细胞分化。 (A) 用于半自动化实现细胞分化、固定、染色、成像及功能活性检测的设备示意图。(B) HLC分化过程中细胞形态的代表性变化。简言之,PSCs首先被诱导为定型内胚层,随后指定为肝母细胞,此阶段细胞呈现鹅卵石样形态,之后进一步成熟为多边形的肝样细胞。比例尺 = 100 µm。 请点击此处查看该图的放大版本。
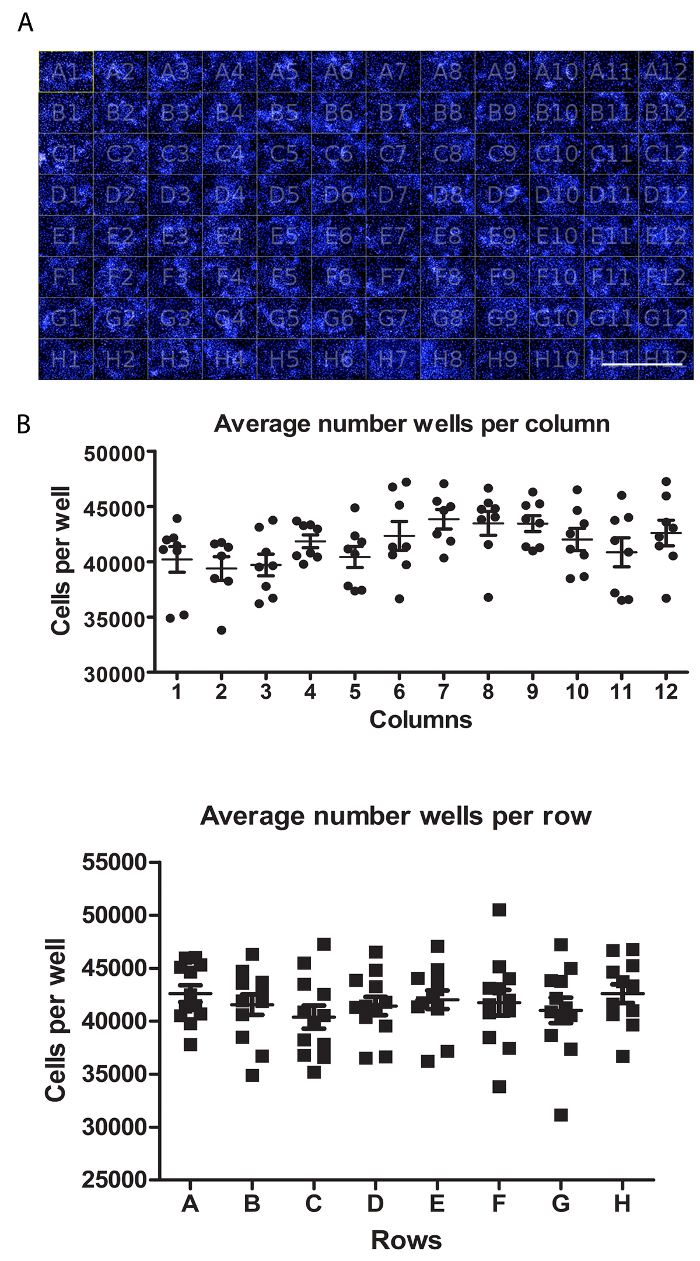
图 2:肝样细胞(HLCs)孔间变异性的评估。(A) 经 DAPI 染色的 96 孔板中 HLCs 的图像展示。比例尺 = 1 mm。(B) 每孔细胞数量的定量分析。每孔取七个视野,使用 Columbus 软件进行量化,得到各列(上图)和各行(下图)每孔的平均细胞数。整块板的平均每孔细胞数为 41,662 ± 3,366 SEM。各孔之间未观察到具有统计学意义的差异。采用单因素方差分析(One-way ANOVA)结合 Tukey 事后检验进行统计分析。请点击此处查看该图的放大版本。
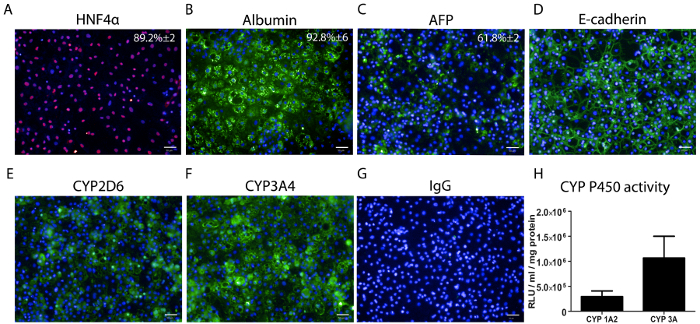
图3:第18天肝样细胞中肝细胞标志物表达及CYP P450活性检测 (A) 肝细胞核因子4α的百分比 (HNF4α)表达量以均值±标准误表示,基于三十个孔,每孔十个视野。 (B) 白蛋白(ALB)表达百分比以均值±标准误(SEM)表示,基于3个独立孔,每孔观察10个视野。 (C) 甲胎蛋白(AFP)的百分比 ± 标准误(SEM)基于3个独立孔,每孔观察10个视野。 (D) E-cadherin 染色 (E) CYP2D6 染色 (F) CYP3A4 染色 (G)免疫球蛋白G(IgG)染色对照。比例尺 = 50 µm. (H) 第18天HLCs中CYP P450 1A2和3A的代谢活性。数据表示六次生物学重复实验的均值±标准误(SEM)。活性单位为每毫克蛋白每毫升的相对光单位(RLUs/mL/mg蛋白)。 请点击此处以查看此图的放大版本。
讨论
我们的半自动化流程高效、可靠且经济,能够大规模生产 HLCs (图1)。培养板中各孔之间的细胞数量无显著差异,表明该平台适用于基于细胞的筛选实验(图2)。此外,半自动化工作流程使用户能够一次性制备大量培养板,而这是以往手动操作无法实现的5,12。
重要的是,自动化过程并未影响分化效率,大多数细胞表达HNF4α(89.2%±2)和ALB(92.8%±6) (图3)。肝样细胞(HLCs)还表达CYP P450酶CYP2D6和CYP3A4,并表现出与既往报道实验相当的CYP1A2和CYP3A代谢活性(图3)5。尽管该方案已实现标准化,但在分化前细胞的汇合度对于获得高纯度的肝样细胞分化至关重要。因此,确保细胞在孔板中的均匀分布是一个重要的考虑因素(图1)。该因素已被证明依赖于细胞系,因此在扩大培养规模之前,需针对每种细胞系优化细胞接种和密度条件。
目前,该平台尚不适合用于临床应用所需的大规模HLCs生产,这一目标更可能通过细胞工厂和生物反应器来实现。然而,所建立的方法确实能够快速生成人肝细胞,用于疾病建模、药物筛选和/或药物再利用研究。此外,该检测方法适用于多重分析,可生成多参数数据集以进行机制性分析。展望未来,我们还认为该技术可应用于更复杂的 体外 3D 分化系统或作为改善肝样细胞表型的平台 体外.
总之,我们认为,我们这套简单且半自动化的系统将提高实验通量,减少实验变异,从而提升生物数据集的质量及其向人体生理学的外推效果。
披露
David C. Hay 教授是 Stemnovate Limited 的联合创始人兼董事。
David C. Hay 教授是 HigherSteaks Limited 的董事。
致谢
本工作获得了首席科学家办公室(TCS/16/37)资助及医学研究理事会(MRC)博士奖学金的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 405 LS 洗板机 | Biotek | ||
| B27 添加剂 | Life Technologies | 12587-010 | |
| β-巯基乙醇 | Life Technologies | 31350 | |
| 牛血清白蛋白 | Sigma-Aldrich | A2058 | |
| DMSO | Sigma-Aldrich | D5879 | |
| 含钙镁的 DPBS | ThermoFisher | 14040133 | |
| 温和细胞解离试剂 | STEMCELL Technologies | 7174 | |
| GlutaMax | Life Technologies | 35050 | |
| VIAFLO 96 用 GripTips | Integra | 6434 | |
| HepatoZYME-SFM 培养基 | Life Technologies | 17705021 | |
| 人 Activin A | Peprotech | 120-14E | |
| 人肝细胞生长因子 | Peprotech | 100-39 | |
| 人 Oncostatin M | Peprotech | 300-10 | |
| 人重组层粘连蛋白 521 | BioLamina | LN521-02 | |
| 氢化可的松 21-半琥珀酸钠盐 | Sigma-Aldrich | H4881 | |
| Knockout DMEM | Life Technologies | 10829 | |
| Knockout 血清替代物 | Life Technologies | 10828 | |
| mTeSR1 培养基 | STEMCELL Technologies | 5850 | |
| Multidrop Combi 试剂分配仪 | ThermoFisher | 5840300 | |
| 非必需氨基酸 | Life Technologies | 11140 | |
| Operetta 高内涵成像系统 | PerkinElmer | HH12000000 | |
| 青霉素-链霉素(10,000 U/mL) | Life Technologies | 15140122 | |
| 重组小鼠 Wnt3a | R&D Systems | 1324-WN-500/CF | |
| Rho 相关激酶(ROCK)抑制剂 Y27632 | Sigma-Aldrich | Y0503-1MG | |
| RPMI 1640 | Life Technologies | 21875 | |
| 标准管式分配卡盒 | ThermoFisher | 24072670 | |
| TWEEN 20 | Sigma-Aldrich | P9416 | |
| VIAFLO 96 电子 96 道移液器 | Integra | 6001 | |
| 无钙无镁 PBS | ThermoFisher | 14190250 | |
| 4% 甲醛溶液,缓冲液,pH 6.9 | Sigma-Aldrich | 1.00496 EMD MILLIPORE | |
| P450-Glo CYP3A4 检测与筛选系统 | Promega | V8801 | |
| P450-Glo CYP1A2 检测与筛选系统 | Promega | V8771 | |
| DAPI | Invitrogen | D1306 | |
| 抗体 | |||
| 白蛋白 | Sigma-Aldrich | A6684 | 1:200(小鼠) |
| 甲胎蛋白 | Abcam | ab3980 | 1:500(小鼠) |
| CYP2D6 | 邓迪大学 | 邓迪大学 | 1:200(绵羊) |
| CYP3A4 | 邓迪大学 | 邓迪大学 | 1:200(绵羊) |
| HNF-4α | Santa Cruz | sc-8987 | 1:400(兔) |
| E-钙黏蛋白 | Abcam | ab76055 | 1:200(小鼠) |
| IgG | DAKO | 1:400 | |
| 抗小鼠 488(二抗) | Life technologies | A-11001 | 1:400 |
| 抗绵羊 488(二抗) | Life technologies | A-11015 | 1:400 |
| 抗兔 488(二抗) | Life technologies | A-11008 | 1:400 |
参考文献
- Forbes, S. J., Gupta, S., Dhawan, A. Cell therapy for liver disease: From liver transplantation to cell factory. J Hepatol. 62 (1, Supplement), S157-S169 (2015).
- Avior, Y., Sagi, I., Benvenisty, N. Pluripotent stem cells in disease modelling and drug discovery. Nat Rev Mol Cell Biol. 17 (3), 170-182 (2016).
- Szkolnicka, D., Lucendo-Villarin, B., Moore, J. K., Simpson, K. J., Forbes, S. J., Hay, D. C. Reducing Hepatocyte Injury and Necrosis in Response to Paracetamol Using Noncoding RNAs. Stem Cells Transl Med. 5 (6), 764-772 (2016).
- Choudhury, Y., et al. Patient-specific hepatocyte-like cells derived from induced pluripotent stem cells model pazopanib-mediated hepatotoxicity. Sci Rep. 7, 41238(2017).
- Cameron, K., et al. Recombinant Laminins Drive the Differentiation and Self-Organization of hESC-Derived Hepatocytes. Stem Cell Rep. 5 (6), 1250-1262 (2015).
- Cayo, M. A., et al. A Drug Screen using Human iPSC-Derived Hepatocyte-like Cells Reveals Cardiac Glycosides as a Potential Treatment for Hypercholesterolemia. Cell Stem Cell. 20 (4), 478-489 (2017).
- Takayama, K., et al. Prediction of interindividual differences in hepatic functions and drug sensitivity by using human iPS-derived hepatocytes. Proc Natl Acad Sci U S A. 111 (47), 16772-16777 (2014).
- Takayama, K., et al. 3D spheroid culture of hESC/hiPSC-derived hepatocyte-like cells for drug toxicity testing. Biomaterials. 34 (7), 1781-1789 (2013).
- Hay, D. C., et al. Efficient differentiation of hepatocytes from human embryonic stem cells exhibiting markers recapitulating liver development in vivo. Stem Cells Dayt Ohio. 26 (4), 894-902 (2008).
- Iii, R. L. G., et al. Maturation of Induced Pluripotent Stem Cell Derived Hepatocytes by 3D-Culture. PLOS ONE. 9 (1), e86372(2014).
- Chen, Y. -F., Tseng, C. -Y., Wang, H. -W., Kuo, H. -C., Yang, V. W., Lee, O. K. Rapid generation of mature hepatocyte-like cells from human induced pluripotent stem cells by an efficient three-step protocol. Hepatol Baltim Md. 55 (4), 1193-1203 (2012).
- Wang, Y., et al. Defined and Scalable Generation of Hepatocyte-like Cells from Human Pluripotent Stem Cells. JoVE J Vis Exp. (121), e55355(2017).
- Takayama, K., et al. Long-Term Self-Renewal of Human ES/iPS-Derived Hepatoblast-like Cells on Human Laminin 111-Coated Dishes. Stem Cell Rep. 1 (4), 322-335 (2013).
- Kanninen, L. K., et al. Laminin-511 and laminin-521-based matrices for efficient hepatic specification of human pluripotent stem cells. Biomaterials. , 86-100 (2016).
- Szkolnicka, D., et al. Accurate prediction of drug-induced liver injury using stem cell-derived populations. Stem Cells Transl Med. 3 (2), 141-148 (2014).
- Kim, D. E., et al. Prediction of drug-induced immune-mediated hepatotoxicity using hepatocyte-like cells derived from human embryonic stem cells. Toxicology. 387 (Supplement C), 1-9 (2017).
- Rashid, S. T., et al. Modeling inherited metabolic disorders of the liver using human induced pluripotent stem cells. J Clin Invest. 120 (9), 3127-3136 (2010).
- Grimm, F. A., Iwata, Y., Sirenko, O., Bittner, M., Rusyn, I. High-Content Assay Multiplexing for Toxicity Screening in Induced Pluripotent Stem Cell-Derived Cardiomyocytes and Hepatocytes. Assay Drug Dev Technol. 13 (9), 529-546 (2015).
- Bray, M. -A., et al. A dataset of images and morphological profiles of 30,000 small-molecule treatments using the Cell Painting assay. GigaScience. , (2017).
- Pradip, A., et al. High Content Analysis of Human Pluripotent Stem Cell Derived Hepatocytes Reveals Drug Induced Steatosis and Phospholipidosis. Stem Cells Int. 2016, 2475631(2016).
- Donato, M. T., Gómez-Lechón, M. J., Tolosa, L. Using high-content screening technology for studying drug-induced hepatotoxicity in preclinical studies. Expert Opin Drug Discov. 12 (2), 201-211 (2017).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biol. 7, R100(2006).
重印与许可
