本文介绍了一种从硅藻中分离岩藻黄素叶绿素a/c结合蛋白(FCP),并将其整合到具有天然脂质组成的脂质体中,以研究离子组成变化对激发能传递影响的实验方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
植物、藻类和硅藻的光合性能在很大程度上依赖于叶绿体类囊体膜中光能捕获与能量传递过程的快速而高效的调控。硅藻的光捕获天线,即所谓的岩藻黄质叶绿素a/c结合蛋白(FCP),在光吸收及高效将能量传递至光合反应中心方面发挥关键作用,同时也参与强光条件下的光保护。这两种功能之间的转换机制长期以来一直是研究的重点。许多相关研究使用了在去垢剂胶束中的FCP进行实验。在进行相互作用研究时,去除去垢剂会导致FCP复合物发生非特异性聚集。这种方法难以区分实验假象与具有生理意义的数据。因此,若将FCP及其他膜结合光捕获复合物置于其天然脂质环境中进行研究,则可更可靠地获得有关蛋白-蛋白相互作用、能量传递及其他光谱特性的信息。该方法的主要优势在于,脂质体具有明确的尺寸和脂质/蛋白比例,从而可精确控制FCP的聚集程度。此外,调控光捕获过程的pH值和离子组成的变化也可在该体系中进行模拟和研究。 体内 可以轻松模拟。与类囊体膜相比,脂质体更加均一且结构更简单,这使得获取和理解光谱数据更为容易。本方案描述了FCP的分离与纯化、脂质体制备,以及将FCP整合到具有天然脂质组成的脂质体中的操作步骤。文中还给出了典型应用的结果并进行了讨论。
引言
光合生物(如硅藻)必须应对不断变化的光照条件,并通过复杂的适应机制维持高光合效率,同时防止过量光照引起的光氧化损伤。在光合真核生物中,一种主要的光保护过程是高能淬灭(qE在光胁迫条件下,吸收光能的耗散是非光化学淬灭(NPQ)的主要贡献因素1,2,3. 光捕获天线复合体(LHC)参与调控激发能传递途径。作为对高光强引起的低 pH 在叶绿体腔内,天线系统从光捕获状态转变为淬灭状态。这种能量耗散状态可保护类囊体膜中的光系统(PS)及其他复合物免受光氧化损伤。在光合真核生物中,该淬灭过程(qE 通常由两个因素诱导1,2,3. 一个因素是能够响应低光环境的特化光捕获蛋白 pH. PsbS 蛋白诱导 qE 在高等植物中4. LhcSRs5,受PsbS活性调节,诱导qE 在绿藻中6. 硅藻含有与LHCSR在结构上相关的Lhcx样蛋白7,8,9,10.
qE 的第二个因素是类胡萝卜素循环,其中天线中的类胡萝卜素通过去环氧作用转化为光保护形式,并通过环氧作用恢复原状。在植物和绿藻中,紫黄质被转化为玉米黄质;在硅藻中,二色藻黄质被转化为硅藻黄素,这一转化与非光化学猝灭(NPQ)的程度密切相关11。尽管硅藻的光捕获天线在进化上与植物和藻类的光捕获复合体(LHCs)相关,但具有一些特殊性质。其从光捕获向光保护状态的转换极为迅速,且其非光化学猝灭能力高于植物12。这可能是硅藻能够在多种生态位中成功生存的原因之一,使其对海洋净初级生产力的贡献高达45%13。因此,硅藻的光捕获系统成为光合作用研究中一个引人关注的研究对象。
硅藻,如中心纲物种 圆筛藻(Cyclotella meneghiniana) 具有类囊体固有的光捕获系统,该系统以其结合的色素命名——岩藻黄素、叶绿素(chl)a 和 c,因此称为 FCP。光捕获蛋白(如 FCP)嵌入由多层膜组成的类囊体膜系统中。硅藻的类囊体以三条为一束排列。这一复合体 这种情况使得在类囊体膜的分子水平上研究它们变得困难。此外,许多组分参与了光捕获的调控(见上文)。因此,在许多研究方法中,使用温和的去垢剂(如正十二烷基-β-D-麦芽糖苷(β-DDM))将这些复合物从膜中分离出来,这类去垢剂能够溶解膜结构,同时保持FCP复合物的完整性。大量光谱学研究采用溶解后的FCP来探究分子内的能量传递过程14,15,16,17然而,这种早期方法存在局限性,因为能量传递的调控需要与其他天线复合物或光系统之间发生激子相互作用。因此,这类研究无法在溶解的复合物中进行,因为复合物之间的相互作用在溶解状态下会丧失。
天线调控中的一个重要特征是天线复合物与光系统在类囊体膜中的“分子拥挤”现象18. 过去,曾采用一种简单的方法来模拟这一效应 体外 去除了去垢剂,导致天线复合物发生随机聚集。尽管通过该方法获得了一些合理数据17,19,去污剂的去除并不能反映实际情况 体内 并且存在一些局限性,因为这些复合物并未以其正常的三级结构相互作用。
脂质体的使用克服了此前存在的多个局限性。其三级结构仍保持完全完整。脂质体膜为捕光复合物提供了准天然的环境。该膜将脂质体内部与外部环境分隔开来。通过这种方式,脂质体为研究离子梯度和pH梯度以及物质运输过程提供了两个反应区室。此外,该实验体系的参数更易于调控,有利于对类囊体膜进行研究。脂质体已被证实是研究光合作用复合物的优良工具。过去的研究重点主要集中在植物LHC上,其中已测试了不同脂质组成对LHC II20的影响。在其他研究中,探讨了不同LHC II之间的蛋白质-蛋白质相互作用21。此外,一些针对绿藻的研究描述了LHC之间可自发形成簇状聚集22。考虑到硅藻在水生生态系统中的重要性,目前针对硅藻捕光复合物的研究仍相对较少。已有两项研究聚焦于中心硅藻Cyclotella meneghiniana的捕光复合物,分别揭示了FCP捕光复合物的簇状聚集特性23以及FCP对电化学梯度的响应能力24。因此,脂质体是在接近天然条件下研究硅藻捕光天线及其相互作用与调控机制的优良工具。该体系具有高度可调性,可精确控制多种条件,如脂质组成、脂质体尺寸、蛋白质密度以及周围水相环境。此外,该方法所需样品量较少,实验体系稳定且高度可重复。脂质体的区室化结构使其可用于研究pH梯度和离子梯度,而这些正是调控捕光复合物的重要因素。
本文描述了从C. meneghiniana中分离FCP捕光复合体,并将其与天然类囊体脂质组成共同组装入脂质体的方法。此外,我们提供了可溶性FCP以及脂质体中FCP的光谱表征示例数据,并对二者进行了比较。该方法总结了Gundermann和Büchel 201223、Natali et al. 201622以及Ahmad和Dietzel 201724研究中优化所得的知识与标准化操作流程。

图1:工作流程示意图。(1) 参见第1段,该段描述了细胞生长、破碎及类囊体膜的分离,并通过蔗糖密度梯度进一步分离捕光色素蛋白复合体(FCP)。 C. m.-Cyclotella meneghiniana 细胞 (2) 天然类囊体脂质混合物(MGDG、DGDG 和 SQDG)的制备(见第 2 段)及使用辛基葡萄糖苷(OG)形成脂质-去垢剂胶束。通过使用特定孔径的滤膜进行挤出处理,获得特定尺寸的脂质胶束。将 FCP 与脂质胶束按预设的脂质:蛋白比例混合,随后去除去垢剂 OG 和 β-DDM 通过 通过控制透析法制备FCP蛋白脂质体。 请点击此处以查看此图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
注意:光合作用复合体(如 FCPs)对光和热极为敏感。操作时务必在冰上进行,并置于极暗的光线下。
1. 从细胞中分离 FCP
- 类囊体的分离提取自 C. meneghiniana 细胞
- 培养 C. meneghiniana 在五个500 mL的烧瓶中,每个烧瓶装有300 mL ASP培养基23,25 以及5000万个细胞。用棉塞封住培养瓶,在120 rpm摇床中培养约一周,光照周期为16小时光照、8小时黑暗,使细胞生长至对数生长期。 40 µmol 光子/(m²·s) 白光,温度介于15-18 °C用细胞计数板检测,确保细胞密度在每毫升150万至200万个细胞之间。
- 以 4,000 x g 离心细胞 g 在预冷的转子中使用500 mL离心瓶(4 °C) 中高速离心 15 分钟。将细胞沉淀重悬于 12 mL 匀浆缓冲液(HB, 表1通过移液操作。
- 将悬浮液转移至一个50 mL塑料管中。将样品在-80 °C 或继续进行步骤 1.1.3。
- 预冷珠磨机及设备。将玻璃珠混合物加入珠磨机的50 mL烧杯至75%容量,然后加入细胞悬液。进行细胞破碎时,以全速进行7次45秒的脉冲处理,每次脉冲之间冷却30秒。取 20 µL 在步骤1.1.6中对裂解细胞进行质量检测
- 将裂解后的细胞悬液通过玻璃滤器漏斗过滤,并倾注HB缓冲液冲洗玻璃珠,直至珠子变得透明。将洗涤液与滤过液合并,最终体积应低于150 mL。
- 将样品以 140 × g 离心 15 分钟 g 使用三个 50 mL 塑料管沉淀细胞碎片。小心将上清液转移至 20 mL 聚碳酸酯超速离心管中,弃去沉淀。
- 用 HB 填充离心管,平衡重量后,在合适的转子中以 300,000 x g 离心 1 小时 g 和 4 °C 以沉淀类囊体膜。
- 利用离心时间,通过显微镜在400倍放大下观察并检测细胞破裂的比例 20 µL 在1.1.3中采集样品,计算无叶绿体与含叶绿体的硅藻壳(二氧化硅外壳)之间的比例。
注意:硅藻的细胞壁由二氧化硅构成,在显微镜下可见为强折射性物质。若细胞破碎成功,应可见叶绿体以绿色小点的形式从细胞中释放出来。 - 用小号画笔以尽可能少的洗涤缓冲液(0.5–1 mL)重悬膜沉淀。用洗涤缓冲液填充聚碳酸酯超速离心管表1),平衡其重量,于200,000 x g离心20分钟 g 和 4 °C.
- 用画笔重新悬浮洗涤后的膜。仅在必要时加入洗涤缓冲液,以保持类囊体浓度尽可能高。将所有类囊体汇集至一个样品瓶(15 mL)中。
- 使用预稀释液稀释样本 10 µL 样本的 90 µL 100% 丙酮。在 12,000 x g 5 分钟,以沉淀蛋白质。取上清液 10 µL 预稀释液的混合 990 µL 90% 丙酮
- 在90%丙酮中测定叶绿素a和叶绿素c在664 nm和630 nm处的吸光度(ABS)。减去ABS750 nm 从两个数值中计算得出。使用以下公式确定总叶绿素含量:24
1)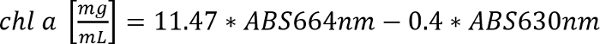
2)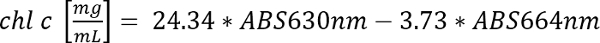
- 在90%丙酮中测定叶绿素a和叶绿素c在664 nm和630 nm处的吸光度(ABS)。减去ABS750 nm 从两个数值中计算得出。使用以下公式确定总叶绿素含量:24
- 将类囊体按每份0.5 mg总叶绿素分装至1.5 mL反应管中,液氮中速冻后于-80 °C保存80 °C 直至进一步使用
- FCP复合物的分离与浓缩
- 制备蔗糖梯度溶液,并将超速离心管填充至顶部减去上样体积(300 – 500 µL). 将试管置于 -20 °C 直至完全冻结。将试管置于+4 °C,一个17 mL离心管需要3-4小时。
- 重复冻融循环两次,以优化梯度,提高分辨率。
- 使用1.1.9步骤中获得的相当于0.5 mg叶绿素的样品,并用缓冲液B1调整表1) 定容至 2 mL。为实现溶解,加入正十二烷基-β-D-麦芽糖苷(b-DDM),使其终浓度为 20 mM。
- 将离心管倒置3次,置于冰上静置20分钟,并轻轻振荡以避免产生泡沫。在12,000 x g 在预冷的台式离心机中于 +4 °C.
- 将上清液加样至梯度层。加样量不得超过 125 µg 若使用17 mL试管,则每梯度含总叶绿素总量。在100,000 x g条件下离心22小时 g 以及 +4 °C.
- 使用注射器从梯度中回收所需的棕色 FCP 组分图 2A)。取一个 5 µL 分装并用……稀释 995 µL B1a的
- 使用紫外-可见分光光度计在370–750 nm范围内测定吸光度(ABS)光谱。采用半微量光学玻璃比色皿。
- 打开光谱管理软件,进入光谱模式,记录370至750 nm范围的基线,随后进行样品测量。设置参数如下:扫描速度200 nm/min;数据间隔0.5 nm;响应速度为中等。
- 用移液枪测量回收样品的体积。通过加入两倍于回收体积的B1缓冲液洗涤FCP复合物(表1)。在截留分子量为30 kDa的膜浓缩器中,于1,000 × g条件下浓缩 g 以及 +4 °C 到 ABS672 nm 至少20。
注意: b-DDM 浓度可能因样品室中胶束富集而升高,这可能导致 FCP 复合物进一步溶解!若需进一步洗涤以去除残留蔗糖,请加入不含去污剂的缓冲液 B1,避免过度溶解。 - 取一个 20 µL 分装样品用于对照。将样品在液氮中速冻,并于 -80 °C.
- 制备蔗糖梯度溶液,并将超速离心管填充至顶部减去上样体积(300 – 500 µL). 将试管置于 -20 °C 直至完全冻结。将试管置于+4 °C,一个17 mL离心管需要3-4小时。
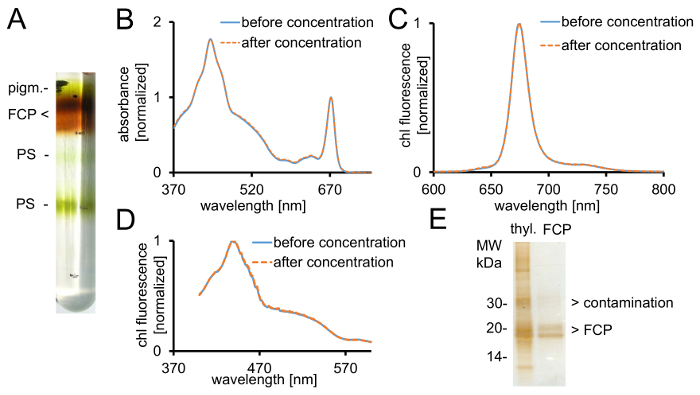
图 2:FCP 的纯化、光谱检测与纯度验证。 (A) 蔗糖密度梯度经夜离心后的典型外观。所有棕色条带均含有由 FCPa 和 FCPb 组成的 FCP 组分。pigm. — 未结合的色素,PS — 光系统。(B) 使用截留分子量为 30 kDa 的离心过滤装置浓缩前后 FCP 的吸收光谱(蓝色实线为浓缩前,橙色虚线为浓缩后)。类胡萝卜素特别容易从 FCP 中丢失,这将导致 500–550 nm 范围内的吸光度降低。图谱已归一化至叶绿素 Qy 在约 670 nm 处的最大吸收峰。(C) 以叶绿素 c(465 nm)激发时的叶绿素 a 发射光谱,用于检测功能性激发能传递。若叶绿素 c 向叶绿素 a 的能量传递受阻,则会在约 640 nm 处出现额外的荧光峰(叶绿素 c)。图谱已归一化至发射最大值。(D) 在 675 nm(叶绿素 a 荧光最大值)处记录的激发光谱,用于检测所有在 370 nm 至 600 nm 范围内吸收光的色素向叶绿素 a 的能量传递。若向叶绿素 a 的能量传递效率降低,则在 465–550 nm 范围内的荧光产率将显著下降。图谱已归一化至约 440 nm 处的最大值。(B)、(C) 和 (D) 中的光谱在浓缩效果良好时几乎完全一致。(E) 利用 Tris-tricine 凝胶28 检测分离所得 FCP 的纯度。FCPa 和 FCPb 的亚基分子量介于 18–19 kDa 之间。所有银染可见、分子量大于 20 kDa 的蛋白质均为污染物。Thyl. — 类囊体 请点击此处查看该图的放大版本。
- 光谱法与凝胶电泳对照
- 记录 370-750 nm 范围内的吸光度 5 µL FCP 的 995 µL 步骤1.2.5后获取B1a的谱图,与步骤1.2.4中获得的谱图进行比较。使用与步骤1.2.4中所述相同的仪器和设置。
- 将数据导出为 *.csv 格式,并将数据导入电子表格中。将两条光谱均归一化至叶绿素 a 在 Q 波段的最大值y 约672 nm处的条带,如图所示 图2B.
- 根据步骤 1.2.4 和 1.3.1 中测得的 ABS 值,计算样品的稀释因子672 nm 按所需的ABS672nm 0.03。根据需要使用B1a稀释样品,并转移至特制的玻璃荧光比色皿中。
- 使用荧光分光光度计记录叶绿素a的荧光发射光谱,以揭示叶绿素c向叶绿素a完整传递光能的情况图2C).
- 使用光谱仪软件,进入光谱测量模式,设置如下参数:模式为发射(emission);激发和发射狭缝宽度均为 3 nm;灵敏度为中等;扫描速度为 100 nm/min;数据步进为 0.5 nm;激发波长为 465 nm;发射波长范围为 600–800 nm。执行自动调零后进行测量。
- 使用相同的样品和设备记录激发光谱,以揭示所有色素向chl a的完整能量传递图 2D)。调整设置参数:模式为激发;发射波长为675 nm;激发波长范围为370-600 nm。记录光谱。
- 使用罗丹明光谱在同一范围内对光源的光谱特性进行校正 – cf用户手册中的说明。
- 混合对应于 FCP 样品 1 µg 叶绿素a的 10 µL SDS上样缓冲液。在 25 °C在台式离心机中以12000 × g离心5分钟。
- 将上清液上样至Tris-三羟甲基甘氨酸凝胶28在150 V电压下电泳分离2小时,分离后进行银染40.
注意:FCP 亚基分离为两条明显的蛋白质条带,分子量介于 18–19 kDa 之间,分别为 FCPa 和 FCPb 的组成成分29 (图 2E).
- 将上清液上样至Tris-三羟甲基甘氨酸凝胶28在150 V电压下电泳分离2小时,分离后进行银染40.
- 记录 370-750 nm 范围内的吸光度 5 µL FCP 的 995 µL 步骤1.2.5后获取B1a的谱图,与步骤1.2.4中获得的谱图进行比较。使用与步骤1.2.4中所述相同的仪器和设置。
2. 脂质体的制备及FCP的包封
- 脂质混合物及脂质去垢剂胶束的制备
注意: 脂质在高温与氧化条件下易发生降解。应尽量将脂质保持在低温环境中,并置于氮气氛围下2 大气- 计算所需的类囊体脂质比例 C. meneghiniana 根据 Vieler 的说法 等 200730。请参考所提供的示例 补充材料 表1. 在耐溶剂的容器中配制制造商推荐的脂质储备液。
- 用移液器将所需量的脂质加入2 mL反应管中,用温和的氮气流吹干氯仿,并尽量使脂质均匀铺展于管底整个区域。继续通入氮气2 流至所有溶剂完全蒸发。
- 将脂质混合物溶解于 29 µL n-辛基-β-D-吡喃葡萄糖苷溶液(OG)的 4 °C 4小时。将脂质混合物在37℃孵育10分钟 30 °C在超声波清洗仪中孵育脂质,每次3分钟,共3次,于 25 °C 在冰上中断 30 秒。
- 添加 221 µL 三羟甲基甘氨酸缓冲液和 250 µL 4倍体积透析缓冲液
- 使用挤出机 0.1 µm 用于制备特定直径为50-70 nm的脂质体的聚碳酸酯膜。将膜与滤器支撑装置组装至挤出器中。避免产生气泡,并彻底拧紧组件。
- 用4倍体积透析缓冲液填充一支注射器,并预润透析器,直至第二支注射器中无可见气泡。
- 将脂质-去垢剂胶束溶液注入挤出器,推动溶液在两个注射器之间来回转移。重复此步骤5次,直至溶液呈现均匀状态。
注意: 该溶液可在 4 °C 数天内使用。切勿冷冻!
- FCP复合体的整合及去垢剂和聚集体的去除
注意: 在此示例中,我们采用脂质/叶绿素a比例为12:1,相当于脂质/蛋白质比例约为100:1。- 加入等量的 FCP 20 µg 总反应体积中chl a的 500 µL B1a 缓冲液至 250 μ挤出的脂质微胶束的 L 和 250 µL 4倍体积透析缓冲液中,将样品孵育3次,每次3分钟 25 °C 在1,500 - 3,000 rpm条件下于恒温混匀仪中进行,期间在冰上暂停30秒。
- 将四个1.5 mL离心管的管盖顶部下方切下,形成仍能套在盖子上的环状结构。准备1.5 cm × 1.5 cm的透析膜片,并将其在20 mL 1×透析缓冲液中清洗
- 填充 250 µL 将样品加入每个盖子中。小心地将膜放置在盖子上,确保样品完全充满腔室且无气泡产生。拧紧反应管环,使组装后的腔室密封。
- 将样品置于50 mL 1×透析缓冲液中,在冰上于旋转摇床上透析过夜(12–16 h)。更换新鲜透析缓冲液,并加入7 mg吸附珠,以去除残留去垢剂,孵育至少6 h。
- 再次更换透析缓冲液,并继续透析12小时。用针刺穿透析膜以回收脂质体 200 µL 移去微量移液器吸头,吸取反应管盖内的全部脂质体。
- 可选步骤:若需要高纯度(>需要达到95%以上的纯度。在17 mL超速离心管中,用透析缓冲液配制不连续密度梯度,依次包含6%、10%、15%和20%的环氧氯丙烷-蔗糖共聚物梯度层。将脂质体加在梯度顶部,使用水平转子在100,000 × g条件下超速离心4小时。
- 用注射器回收上层棕色条带,用DP缓冲液将样品稀释1:5,然后进行下一步操作。
- 将FCP脂质体在至少2 mL的1×透析缓冲液中,于100,000 × g离心1.5小时 4 °C. 以一定角度旋转离心管以回收脂质体 45°. 让脂质体向下移动1 min(图 3A).
- 以终体积 25- 收集 FCP 脂质体50 µL避免扰动沉淀物。
- 对照1:吸光度、荧光光谱法
- 添加一个 3 µL 将FCP脂质体分装至1 mL终体积的1×透析缓冲液中,于12,000 × g离心5分钟。
- 使用与1.2.4节中所述相同的设备,测定FCP-脂质体在370至750 nm范围内的吸收光谱。将光谱归一化至Q波段的最大吸收峰。y 叶绿素a的吸收区域(670-680 nm),并与溶解态FCP的归一化光谱进行比较图3C).
- 在1 mL DP中制备FCP-脂质体,其在670–680 nm最大吸收峰处的吸光度(ABS)为0.03。用B1a缓冲液将步骤1.2.6中去垢剂溶解的FCP稀释至相同的ABS值。
- 按照1.2.4所述方法记录两种样品的吸收光谱。按照1.3.3所述方法记录两种样品的叶绿素a荧光发射光谱。
注意: FCP-脂质体样品中的荧光产率降低(图3D 和 参见 讨论。)
- 添加一个 3 µL 将FCP脂质体分装至1 mL终体积的1×透析缓冲液中,于12,000 × g离心5分钟。

图3:FCP蛋白脂质体的分离及其光谱检测与共聚焦成像。(A) 脂质体经离心后FCP的回收情况。将离心管倾斜至45°,静置约1分钟——脂质体会向下移动,而未被包埋入脂质体的FCP聚集体则附着在管壁上。(B) 去垢剂中溶解的FCP(蓝色)与脂质体中FCP(橙色)的吸收光谱比较。(C) 与(B)相同的光谱,归一化至红光区域叶绿素a的最大吸收峰(~670 nm,Qy峰);去垢剂中溶解的FCP(蓝色)与脂质体中FCP(橙色)。可能存在主要为类胡萝卜素的色素损失,这在500–550 nm区域可见。FCP在脂质体中的聚集可能导致叶绿素a最大吸收峰(~670 nm)展宽并轻微红移。(D) 去垢剂中溶解的FCP与脂质体中FCP的发射光谱。FCP在脂质体中的聚集增强了FCP复合物之间的能量相互作用,从而降低荧光产率(橙色曲线),并使发射峰略微红移。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
本方案描述了从Cyclotella meneghiniana中分离总FCP组分,并将其整合到具有天然脂质组成的脂质体中的方法。类囊体的分离具有高度可重复性,但类囊体得率可能有所变化。若在步骤1.1.4中回收的色素超过总量的50%,结果即为可接受;回收率超过80%为最佳。
类囊体的溶解是一个关键步骤。若步骤1.2.2后的上清液中含有大部分色素,则表明膜已充分溶解。若能清晰区分出褐色条带(FCP)和绿色条带(PS),则说明捕光复合体(FCP)与光系统已实现良好分离。图 2A)。梯度顶部出现明显的黄绿色条带表明因过度溶解而导致的色素损失。每次制备过程中均可能发生色素损失,只要不影响能量向chl a的转移功能,一定程度的色素损失是可以接受的图 2C二维)。此外,FCP 富集步骤(1.2.4)...
访问受限。请登录或开始试用以查看此内容。
讨论
具有天然脂质成分的FCP脂质体为研究光谱特性提供了一种便捷、简单且可重复的工具 体外 FCP脂质体中的脂质环境类似于类囊体膜内的状况,因此获得的实验结果更接近于自然条件。
C. meneghiniana 作为 FCP 天线的研究模型系统具有多个优势。与其他硅藻模式物种(例如 Thalassiosira pseudonana)相比,其生长速度相对较快,且更为强健。细胞在珠磨机中易于破碎,可获得较高产量的完整类囊体复合物。C. meneghiniana 最主要的优势在于近年来已积累了丰富的生物化学与光谱学数据16,17,23,27,29,
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
感谢Rana Adeel Ahmad在FCP纯化方面的协助。感谢Claudia Büchel教授提供的有益讨论及对稿件的审阅。本工作得到了德国研究基金会对LD的资助(DI1956-1/1)以及洪堡基金会为LD提供的费奥多·林嫩奖学金的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 500 ml 离心管 | |||
| 高速离心机 | Heraeus | ||
| Bead Mill VI 2 | Edmund-Bühler(edmund-buehler.de) | 新版本:Vibrogen-Zellmühle Vl 6 | |
| Silibeads S 400 µm | Sigmund-Lindner.com | 5223-7 | |
| Silibeads S 1,-1,3 mm | Sigmund-Lindner.com | 4504 | |
| VitraPOR 滤器漏斗 - por1 | ROBU GmbH | 21121 | |
| 聚碳酸酯超速离心管(30 mL),用于 T-865 | 贝兰实验室äte (Laborgeraete-beranek.de) | 314348 | |
| Ultracentrifuge Discovery 90SE | Sorvall | n.a. | |
| 转子 T 865 | ThermoFisher Scientific (thermofisher.com) | 51411 | |
| 改进型纽鲍尔细胞计数板 | 卡尔罗思实验室用品(Carlroth.com) | T729.1 | |
| 蔡司显微镜 Primostar (7) | Optik-Pro (optik-pro.de) | 51428 | |
| 光学玻璃比色皿(6040-OG) | Hellma Analytics (hellma-analytics.com) | "6040-10-10" | |
| V-630 紫外-可见分光光度计(含软件) | Jasco (jasco.de) | V-630 | |
| 正十二烷基-β正辛基-β-D-吡喃葡萄糖苷 | ANATRACE (anatrace.com) | D310LA | |
| 超清晰管 17 ml,用于 AH629 | 贝兰实验室äte (Laborgeraete-beranek.de) | 344061 | |
| 转子 AH629-17-mL | 赛默飞世尔科技(thermofisher.com) | 54285 | |
| 膜浓缩器_Centriprep 30 kDa 截留分子量 | 默克密理博(merckmillipore.com) | 4307 | |
| Biometra Minigel-Twin | Analytik Jena AG(analytik-jena.de) | 846-010-100 | |
| Silver Stain Plus试剂盒 | Bio-Rad(bio-rad游戏副本) | 1610449 | |
| LibreOffice 电子表格 | 文档基础 | https://de.libreoffice.org/download/libreoffice-still/ | |
| 用于荧光的特殊玻璃比色皿(101-0S) | Hellma Analytics (hellma-analytics.com) | 101-10-20 | |
| 光谱荧光仪 FP-6500(含软件) | Jasco (jasco.de) | FP-6500 | |
| SDS上样缓冲液 Roti-Load | ROTH (carlroth.com) | K929.1 | |
| n-辛基 β-D-葡萄糖吡喃糖苷 | ANATRACE (anatrace.com) | O311 | |
| 单半乳糖基二酰基甘油(MGDG) | Larodan AB (larodan.com) | 59-1300 | 用氯仿配制储备液 |
| 二半乳糖基二酰基甘油(DGDG) | Larodan AB (larodan.com) | 59-1310 | 用氯仿配制储备液 |
| 磺基醌甘油二酯(SQDG) | Larodan AB (larodan.com) | 59-1230 | 用氯仿配制储备液 |
| L-α-磷脂酰甘油(PG) | Larodan AB (larodan.com) | 37-0150 | 用氯仿配制储备液 |
| L-α磷脂酰胆碱 | Sigma-Aldrich(sigmaaldrich.com) | P3782 SIGMA | 用氯仿配制储备液 |
| 超声波清洗仪 S-50TH | Sonicor (getmedonline.com) | SONICOR-S-50TH | |
| mini-Extruder | 艾万迪极性脂质公司(Avanti.com) | 610000 | |
| 核孔聚碳酸酯膜 | Avanti Polar Lipids (Avanti.com) | 610005 | |
| 透析膜 Visking 14 kDa 截留分子量 | ROTH (carlroth.com) | 0653.1 | 使用前在蒸馏水中煮沸 |
| Biobeads SM2 吸附剂 | 伯乐(Bio-rad.com) | 152-3920 | |
| 蔗糖环氧氯丙烷共聚物 - Ficoll 400 | Sigma-Aldrich(sigmaaldrich.com) | F4375 | |
| 用于 TFT 80.4 的聚碳酸酯超速离心管(2.7 mL) | 贝拉诺克实验室äte(Laborgeraete-beranek.de) | 252150 | |
| 转子 TFT 80.4 | 默克密理博(merckmillipore.com) | 54356 | |
| 按出现顺序列出的材料 | 有关具体的安全说明,请参阅材料安全数据表及相关手册。 标准实验耗材和试剂未列出。 |
参考文献
- Eberhard, S., Finazzi, G., Wollman, F. A. The Dynamics of Photosynthesis. Annual Review of Genetics. 42, 463-515 (2008).
- Li, Z. R., Wakao, S., Fischer, B. B., Niyogi, K. K. Sensing and Responding to Excess Light. Annual Review of Plant Biology. 60, 239-260 (2009).
- Niyogi, K. K., Truong, T. B. Evolution of flexible non-photochemical quenching mechanisms that regulate light harvesting in oxygenic photosynthesis. Current Opinion in Plant Biology. 16 (3), 307-314 (2013).
- Li, X. -P., et al. A pigment-binding protein essential for regulation of photosynthetic light harvesting. Nature. 403 (6768), 391-395 (2000).
- Peers, G., et al. An ancient light-harvesting protein is critical for the regulation of algal photosynthesis. Nature. 462 (7272), 518-521 (2009).
- Correa-Galvis, V., et al. Photosystem II Subunit PsbS Is Involved in the Induction of LHCSR Protein-dependent Energy Dissipation in Chlamydomonas reinhardtii. The Journal of biological chemistry. 291 (33), 17478-17487 (2016).
- Bailleul, B., et al. An atypical member of the light-harvesting complex stress-related protein family modulates diatom responses to light. Proceedings of the National Academy of Sciences of the United States of America. 107 (42), 18214-18219 (2010).
- Taddei, L., et al. Multisignal control of expression of the LHCX protein family in the marine diatom Phaeodactylum tricornutum. Journal of experimental botany. 67 (13), 3939-3951 (2016).
- Lepetit, B., et al. The diatom Phaeodactylum tricornutum adjusts nonphotochemical fluorescence quenching capacity in response to dynamic light via fine-tuned Lhcx and xanthophyll cycle pigment synthesis. New Phytologist. 214 (1), 205-218 (2017).
- Büchel, C. Evolution and function of light harvesting proteins. Journal of Plant Physiology. 172, 62-75 (2015).
- Lavaud, J., Rousseau, B., van Gorkom, H. J., Etienne, A. -L. Influence of the Diadinoxanthin Pool Size on Photoprotection in the Marine Planktonic Diatom Phaeodactylum tricornutum. Plant Physiology. 129 (3), 1398-1406 (2002).
- Ruban, A., et al. The super-excess energy dissipation in diatom algae: comparative analysis with higher plants. Photosynthesis Research. 82 (2), 165-175 (2004).
- Mann, D. G. The species concept in diatoms. Phycologia. 38 (6), 437-495 (1999).
- Papagiannakis, E., van Stokkum, I. H. M., Fey, H., Büchel, C., van Grondelle, R. Spectroscopic Characterization of the Excitation Energy Transfer in the Fucoxanthin-Chlorophyll Protein of Diatoms. Photosynthesis Research. 86 (1-2), 241-250 (2005).
- Premvardhan, L., Robert, B., Beer, A., Büchel, C. Pigment organization in fucoxanthin chlorophyll a/c2 proteins (FCP) based on resonance Raman spectroscgopy and sequence analysis. Biochimica et Biophysica Acta-Bioenergetics. 1797 (9), 1647-1656 (2010).
- Gildenhoff, N., Herz, J., Gundermann, K., Büchel, C., Wachtveitl, J. The excitation energy transfer in the trimeric fucoxanthin-chlorophyll protein from Cyclotella meneghiniana analyzed by polarized transient absorption spectroscopy. Chemical Physics. 373 (1), 104-109 (2010).
- Ramanan, C., et al. Exploring the mechanism(s) of energy dissipation in the light harvesting complex of the photosynthetic algae Cyclotella meneghiniana. Biochimica et Biophysica Acta-Bioenergetics. 1837 (9), 1507-1513 (2014).
- Haferkamp, S., Kirchhoff, H. Significance of molecular crowding in grana membranes of higher plants for light harvesting by photosystem II. Photosynthesis Research. 95 (2-3), 129-134 (2008).
- Wahadoszamen, M., et al. Stark fluorescence spectroscopy reveals two emitting sites in the dissipative state of FCP antennas. Biochimica et Biophysica Acta-Bioenergetics. 1837 (1), 193-200 (2014).
- Zhou, F., et al. Effect of monogalactosyldiacylglycerol on the interaction between photosystem II core complex and its antenna complexes in liposomes of thylakoid lipids. Photosynthesis Research. 99 (3), 185-193 (2009).
- Moya, I., Silvestri, M., Vallon, O., Cinque, G., Bassi, R. Time-resolved fluorescence analysis of the photosystem II antenna proteins in detergent micelles and liposomes. Biochemistry. 40 (42), 12552-12561 (2001).
- Natali, A., et al. Light-harvesting Complexes (LHCs) Cluster Spontaneously in Membrane Environment Leading to Shortening of Their Excited State Lifetimes. Journal of Biological Chemistry. 291 (32), 16730-16739 (2016).
- Gundermann, K., Büchel, C. Factors determining the fluorescence yield of fucoxanthin-chlorophyll complexes (FCP) involved in non-photochemical quenching in diatoms. Biochimica et Biophysica Acta-Bioenergetics. 1817 (7), 1044-1052 (2012).
- Ahmad, R. A., Dietzel, L. Relaxation of cellular K+ gradients by valinomycin induces diatoxanthin accumulation in Cyclotella meneghiniana cells and alters FCPa fluorescence yield in vitro. Physiologia Plantarum. , 171-180 (2017).
- Provasoli, L., McLaughlin, J. J. A., Droop, M. R. The development of artificial media for marine algae. Archiv für Mikrobiologie. 25 (4), 392-428 (1957).
- Jeffrey, S., Humphrey, G. New spectrophotometry equations for determining chlorophyll a, chlorophyll b, chlorophyll c-1 and chlorophyll c-2 in higher plants, algae and natural phytoplankton. Biochemie und Physiologie der Pflanzen. 167, 191-194 (1975).
- Beer, A., Gundermann, K., Beckmann, J., Büchel, C. Subunit Composition and Pigmentation of Fucoxanthin−Chlorophyll Proteins in Diatoms: Evidence for a Subunit Involved in Diadinoxanthin and Diatoxanthin Binding. Biochemistry. 45 (43), 13046-13053 (2006).
- Schägger, H., von Jagow, G. Tricine-sodium dodecyl sulfate-polyacrylamide gel electrophoresis for the separation of proteins in the range from 1 to 100 kDa. Analytical Biochemistry. 166 (2), 368-379 (1987).
- Büchel, C. Fucoxanthin-Chlorophyll Proteins in Diatoms: 18 and 19 kDa Subunits Assemble into Different Oligomeric States. Biochemistry. 42 (44), 13027-13034 (2003).
- Vieler, A., Wilhelm, C., Goss, R., Süß, R., Schiller, J. The lipid composition of the unicellular green alga Chlamydomonas reinhardtii and the diatom Cyclotella meneghiniana investigated by MALDI-TOF MS and TLC. Chemistry and Physics of Lipids. 150 (2), 143-155 (2007).
- Gundermann, K., Büchel, C. The fluorescence yield of the trimeric fucoxanthin-chlorophyll-protein FCPa in the diatom Cyclotella meneghiniana is dependent on the amount of bound diatoxanthin. Photosynthesis Research. 95 (2-3), 229-235 (2008).
- Miloslavina, Y., et al. Ultrafast fluorescence study on the location and mechanism of non-photochemical quenching in diatoms. Biochimica et Biophysica Acta-Bioenergetics. 1787 (10), 1189-1197 (2009).
- Grouneva, I., Jakob, T., Wilhelm, C., Goss, R. The regulation of xanthophyll cycle activity and of non-photochemical fluorescence quenching by two alternative electron flows in the diatoms Phaeodactylum tricornutum and Cyclotella meneghiniana. Biochimica et Biophysica Acta-Bioenergetics. 1787 (7), 929-938 (2009).
- Chukhutsina, V. U., Büchel, C., van Amerongen, H. Disentangling two non-photochemical quenching processes in Cyclotella meneghiniana by spectrally-resolved picosecond fluorescence at 77 K. Biochimica et Biophysica Acta-Bioenergetics. 1837 (6), 899-907 (2014).
- Ghazaryan, A., Akhtar, P., Garab, G., Lambrev, P. H., Büchel, C. Involvement of the Lhcx protein Fcp6 of the diatom Cyclotella meneghiniana in the macro-organisation and structural flexibility of thylakoid membranes. Biochimica Et Biophysica Acta-Bioenergetics. 1857 (9), 1373-1379 (2016).
- Darley, W. M. Biochemical composition. The biology of diatoms. 13, 198-223 (1977).
- Milsman, M. H. W., Schwendner, R. A., Weder, H. G. Preparation of large single bilayer liposomes by a fast and controlled dialysis. Biochimica Et Biophysica Acta. 512 (1), 147-155 (1978).
- Zumbuehl, O., Weder, H. G. Liposomes of controllable size in the range of 40 to 180 nm by defined dialysis of lipid-detergent-mixed micelles. Biochimica Et Biophysica Acta. 640 (1), 252-262 (1981).
- Verchere, A., Broutin, I., Picard, M. Photo-induced proton gradients for the in vitro investigation of bacterial efflux pumps. Scientific Reports. 2 (306), (2012).
- Chevallet, M., Luche, S., Rabilloud, T. Silver staining of proteins in polyacrylamide gels. Nature Protocols. 1 (4), 1852-1858 (2006).
访问受限。请登录或开始试用以查看此内容。
重印与许可
