将赖氨酸的环丙烯衍生物引入抗体,可实现含四嗪分子的位点特异性、快速且高效的连接,从而生成抗体-药物偶联物。
本文内容
摘要
摘要
目前临床应用的抗体-药物偶联物(ADC)是由抗体分子与数量和位置各异的毒素连接而成的混合物。临床前研究显示,通过位点特异性连接毒素可提高这些传统ADC的治疗指数。然而,当前制备均一ADC的方法存在多种局限性,例如蛋白表达量低和反应动力学缓慢。在本方案中,我们描述了如何建立一种表达系统,利用遗传密码子扩展技术将赖氨酸的环丙烯衍生物(CypK)插入抗体中。这一最小化的生物正交手性结构可通过逆电子需求的狄尔斯-阿尔德环加成反应,快速与四嗪衍生物发生偶联。本文报道的表达系统可简便地实现曲妥珠单抗在每条重链上均携带CypK的表达与纯化。我们阐述了如何将该抗体与单甲基澳瑞他汀E(MMAE)毒素连接,并通过疏水相互作用色谱和质谱对免疫偶联物进行表征。最后,我们描述了评估偶联后形成的二氢吡啶嗪键在人血清中稳定性的实验方法,以及检测该ADC对高表达HER2受体的乳腺癌细胞选择性细胞毒性的检测方法。
引言
抗体-药物偶联物(ADC)结合了生物治疗药物的选择性和小分子细胞毒药物的高效性。大多数ADC旨在通过将作用于DNA或微管聚合的药物靶向递送至癌细胞,从而降低传统化疗的副作用1。美国食品药品监督管理局(FDA)批准的第一代ADC依赖于赖氨酸和半胱氨酸的修饰,但这种方法会产生在不同位点发生修饰的分子混合物,导致药代动力学性质下降2。相比之下,将药物位点特异性地偶联到抗体上,可获得治疗指数更优的化合物3,4。为了应对制备均一性ADC的挑战,已有多种选择性化学和酶法修饰策略被报道1,5。然而,现有方法通常仅能靶向抗体上的特定位置,或存在蛋白表达量低、连接子稳定性差,或依赖于反应速率慢且产率低的化学反应等问题。
通过遗传密码扩展将非天然氨基酸(ncAA)引入蛋白质,可实现多种生物正交反应基团在蛋白质上的位点特异性修饰,有望克服其他抗体药物偶联物(ADC)制备方法的局限性。利用终止密码子编码非天然氨基酸依赖于氨酰-tRNA合成酶/tRNA配对系统,该系统与细胞内源性识别天然氨基酸的tRNA/合成酶系统相互正交。6已将多种非天然氨基酸(ncAAs)引入抗体以生成抗体药物偶联物(ADCs)。然而,大多数ncAAs在治疗性药物偶联应用中存在各种缺陷。对乙酰苯丙氨酸(pAcF)7,8 不具有完全的生物正交性,需要低pH(4.5)和较长的反应时间(> 60 小时),而叠氮化物(如对叠氮苯丙氨酸(pAzF))7,9,10,对叠氮甲基苯丙氨酸(pAMF)11以及赖氨酸的叠氮衍生物(AzK)12,13 可能在细胞中减少14,且用于催化Huisgen环加成反应的铜可诱导氧化损伤15.
尽管基于反式环辛烯(TCO)、环辛炔(SCO)和双环[6.1.0]壬烯(BCN)的非天然氨基酸(ncAAs)最近已被编码至抗体中用于生物成像,但该表达系统产量极低(0.5 mg/L)16。此外,环辛烯和环辛炔是体积较大且具有疏水性的连接基团,可能增加抗体药物偶联物(ADC)发生聚集的倾向——ADC的有效载荷通常具有疏水性,而连接子的理化性质已被证明会显著影响药代动力学和治疗指数17。相比之下,1,3-二取代环丙烯是体积较小的反应性基团,预计对蛋白质结构及理化性质的影响最小18。环丙烯可通过逆电子需求的狄尔斯-阿尔德环加成反应与四嗪发生高选择性且快速的反应19。在本实验方案中,我们采用一种赖氨酸衍生物(CypK,图1b),其带有甲基环丙烯基团,相较于更大的张力不饱和环,受空间位阻的影响更小,在水相中的反应速率常数约为1–30 M-1s-118,20。
我们最近报道了如何通过将这种最小化的生物正交手柄与含四嗪的分子反应,将CypK引入抗体以生成抗体药物偶联物(ADC)21。本文中,我们将更详细地描述ADC的制备流程,并重点说明其中最具挑战性的步骤。CypK的引入是通过吡咯赖氨酰-tRNA合成酶(PylRS)/tRNACUA(PylT)对识别抗体重链(HC)中引入的琥珀终止密码子来实现的22。本文中我们使用两个质粒进行瞬时转染(图1a),一个编码抗体的重链,另一个编码轻链(LC),两者均包含PylRS/PylT表达盒。此外,也可通过更为繁琐的流程构建稳定细胞系,以获得更高的抗体产量21。
上述表达系统能够以与野生型抗体相似的水平产生治疗性抗HER2免疫球蛋白1(IgG1)曲妥珠单抗与CypK。我们选择重链CH1结构域的第一个位置来编码非天然氨基酸(HC-118TAG)。该位点是抗体药物偶联物(ADC)中最常被修饰的位点23,被称为HC-118(EU编号),但也曾被称为HC-121(序列位置)和HC-114(Kabat编号)24。由于该位点在所有IgG1中均保守,这些表达系统应适用于大多数治疗性抗体。
我们展示了曲妥珠单抗(CypK)2可通过蛋白A层析初步纯化,随后使用疏水相互作用柱进行快速蛋白液相色谱(FPLC-HIC)进一步纯化。随后,该抗体可在3小时内共价连接微管聚合抑制剂单甲基澳瑞他汀E(MMAE),后者是美国FDA批准的抗体药物偶联物Adcetris中所使用的毒素。本文中,我们采用一种MMAE的苄基四嗪衍生物(tetrazine-vcMMAE),其连接子包含戊二酸间隔基、缬氨酸-瓜氨酸蛋白酶敏感元件,以及一个p-氨基苄醇自毁型单元;当抗体药物偶联物被内吞进入溶酶体后,该连接子可被组织蛋白酶B切割,从而无痕释放毒素25。为了展示该反应的广泛适用性,抗体还被连接至荧光染料四甲基罗丹明(TAMRA)。我们阐述了如何通过液相色谱-质谱联用技术(LC-MS)验证偶联产物的结构,并利用带有疏水相互作用柱的高效液相色谱(HPLC-HIC)计算药物-抗体比(DAR)。
作为抗体性能表征的一部分,我们描述了如何检测二氢哒嗪键在人血清中的稳定性。该参数在曲妥珠单抗-TAMRA 中更易于评估,因其可通过简单的 ELISA 进行定量,且结果解读不受曲妥珠单抗(MMAE)2 中蛋白酶敏感组分的干扰。最后,通过比较该抗体药物偶联物(ADC)在表达不同水平 HER2 的细胞系中的细胞毒性,评估曲妥珠单抗(MMAE)2 的选择性和效力。该检测在将免疫偶联物于人血清中孵育后进行,还可提供 ADC 稳定性的功能性验证。
方案
1. 抗体的制备与表征
- 表达抗体
- 解冻一管HEK悬浮细胞于250 mL 锥形瓶中,加入50 mL表达培养基,培养基中添加100 单位/mL青霉素、100 µg/mL链霉素和250 ng/mL两性霉素B。将细胞置于37 °C、8% CO₂条件下培养2 在配备摇床(125 rpm)的加湿培养箱中培养。将细胞按 0.3–0.5 × 10⁶ 细胞/mL(每2-3天传代一次),转染前至少传代2次。
- 当密度为 2.5 x 10⁶ 当细胞密度达到 cells/mL(传代后2-3天)时,配制新鲜的100 mM CypK溶液。称取64 mg CypK,加入2.5 mL 0.1 M氢氧化钠,涡旋混匀,离心以收集未溶解颗粒,并进行超声处理。
- 向添加了抗生素的42.5 mL表达培养基中加入2.5 mL CypK(100 mM,溶于0.1 M NaOH中)。充分混匀,加入250 µL 0.1 M HCl,并使用0.22 µm滤器过滤除菌。
- 稀释50 µg的HC和LC pKym1质粒21 用减血清培养基定容至2.5 mL。在另一管中,将135 µL转染试剂用减血清培养基稀释至2.5 mL。
- 溶液配制后5分钟,将质粒与转染试剂溶液混合,室温孵育20分钟,以使DNA与转染试剂形成复合物。
- 同时,离心1.25亿个细胞 在目标密度下培养5 500 × g 离心数分钟,用含有 CypK 的表达培养基重悬,并加入 DNA-转染试剂混合物。CypK 可按先前报道的方法购买或合成18.
- 孵育细胞20小时后,加入试剂盒中提供的250 µL转染试剂增强剂。
- 在加入CypK后6-7天从上清液中收集抗体(表达期间无需更换培养基)。
*或者,为了获得更高且更一致的产量,可按照 Oller-Salvia 中所述方法构建稳定细胞系 等 201821. 在此情况下,曲妥珠单抗(CypK)2 通过在表达培养基中添加5 mM CypK即可简单实现表达。
- 纯化抗体
- 以 3000 × g 离心 15 分钟。
- 用 0.45 或 0.22 µm 滤器过滤上清液。若滤器堵塞,更换新的滤器并继续过滤。若仅数毫升后即发生堵塞,将上清液在 7000 x g 离心 15 分钟后再行过滤。
- 在空的聚丙烯层析柱中加入蛋白A树脂(每100 mL上清液加2 mL),并用至少5倍柱体积的珠子洗涤缓冲液(0.1 M磷酸钠,150 mM NaCl)平衡树脂。
- 将上清液分装至两个50 mL离心管中,加入5倍体积的珠子洗涤缓冲液(0.5 M磷酸钠,150 mM NaCl),随后加入预平衡的蛋白A树脂。将离心管置于旋转摇床上,室温孵育3小时,以沉淀上清液中的抗体。
或者:将上清液加入柱中,上清液体积至少为推荐树脂体积的两倍,并使其自然流过。通过SDS-PAGE检测上清液中是否残留大量抗体。如果仍有残留,将上清液再次通过树脂进行洗脱。 - 将蛋白A树脂与上清液一同转移至层析柱中,并让液体流过。
- 加入25 毫升洗涤缓冲液(或至少10个树脂体积) 并让其流过。
- 用4 mL 0.1 M柠檬酸钠(pH 3)溶液洗脱抗体,随后加入1 mL 1 M磷酸盐缓冲液(含150 mM NaCl)。
- 用 10 稀释抗体 毫升 PBS,浓缩至 0.5–1 通过离心过滤浓缩至 mL,并用 PBS 缓冲液置换缓冲体系三次。
- 使用疏水相互作用色谱(HIC)丁基柱,以0.5 mL/min的流速和低盐缓冲液在30分钟内进行0–100%线性梯度洗脱,通过FPLC纯化样品 (50 mM 磷酸钠,pH 7.0,20% 异丙醇)的高盐缓冲液(1.5 M (NH₄)2SO4,50 mM 磷酸钠缓冲液(pH 7.0),5% 异丙醇)。收集所有洗脱组分,并在280 nm处监测洗脱情况。少量(< 1 mg)可以 在2.4节所述条件下,采用HPLC-HIC进行纯化,以最大化得率和纯度。
- 合并含有抗体的组分,用 PBS 稀释至至少 4 mL,然后进行浓缩 通过离心过滤,并用PBS缓冲液置换缓冲体系三次。
- 定量抗体
- 使用微量分光光度计在280 nm处测定吸光度,以获得大致浓度。
- 若需精确测量,请使用ELISA试剂盒检测人IgG。若仅需粗略估计,则按以下步骤使用基于考马斯亮蓝染色的SDS-PAGE:
- 通过将浓度为 1 mg/mL 的曲妥珠单抗标准品(经 ELISA 定量)连续六次两倍稀释,制备标准品。
- 将标准品和样品在还原性上样缓冲液中煮沸,浓度约为 0.25 mg/mL。
- 使用 MES-SDS 缓冲液在 4-12% Bis-Tris SDS-PAGE 上电泳分离,然后用考马斯亮蓝类染料染色。最后用 ImageJ 测量对应轻链或重链条带的颜色密度,并根据标准曲线对样品信号进行插值计算。
- 将抗体在 4 °C 下保存。
2. 抗体偶联及ADC表征
- 将抗体与含四嗪的分子进行偶联
- 在小型锥形管中,将10摩尔当量的四嗪-vcMMAE(4 µL,3.4 mM,溶于二甲基亚砜(DMSO))用20 µL乙腈和76 µL磷酸盐缓冲液(PBS)稀释例如,PCR管)
- 加入1摩尔当量的trastuzumab(CypK)2 (100 µL,2 mg/mL,PBS中),充分混匀,室温(25 °C)反应3小时,生成trastuzumab(MMAE)2.
注意:使用本方案时,可将其他分子(如四嗪-5-TAMRA)连接至抗体,而非四嗪-vcMMAE。
- 纯化抗体药物偶联物(ADC)
- 按照制造商说明,用 PBS 预平衡尺寸排阻离心柱。
- 将反应液全部加入离心柱中,1500 × g 离心 1 分钟。
- 定量测定ADC并通过对SDS-PAGE分析偶联物
- 按照1.3.2节所述方法,使用未修饰抗体建立标准曲线,通过测定SDS-PAGE上轻链的颜色密度来定量ADC。
- 重链应出现轻微迁移,表明偶联后分子量有所增加。
注意:如果抗体经荧光染料修饰,例如曲妥珠单抗(TAMRA)2只有对应于重链的条带应在染色前显示凝胶内荧光。
- 通过HPLC-HIC分析偶联物
- 用100%缓冲液A(1.5 M (NH₄)₂SO₄,50 mM磷酸钠,pH 7.0)平衡HPLC-HIC柱4)2SO4,50 mM 磷酸钠 pH 7.0,5% 异丙醇)中孵育 5 分钟。
- 将15 µL(67 pmol)浓度为1 mg/mL的trastuzumab(CypK)2溶液与15 µL 2倍缓冲液A在样品瓶中混合。然后在HPLC中程序化进样10 µL。
- 以1 mL/min的等度流速用100%缓冲液A洗脱1分钟,随后进行15分钟的梯度洗脱,缓冲液A在缓冲液B中的比例从100%降至0%(缓冲液B:50 mM磷酸钠,pH 7.0,20%异丙醇)。在280 nm处监测洗脱过程。
- 通过积分每种物质对应的峰,并将所得峰面积代入以下公式来计算 DAR:
DAR = (1 × trastuzumab(MMAE) + 2 × trastuzumab(MMAE)2)
(曲妥珠单抗(MMAE))0 + 曲妥珠单抗(MMAE)1 + 曲妥珠单抗(MMAE)2)
曲妥珠单抗(CypK)的预期保留时间2 为7.5-8.0分钟,trastuzumab(CypK, MMAE)为9.1-9.6分钟,trastuzumab(MMAE)2 为10.5-11.0分钟。
- 通过液相色谱-质谱法分析偶联物
- 在非还原条件下,使用250单位PNGase F于37 °C孵育至少6小时,对30 µL浓度为1 mg/mL的ADC及未修饰抗体进行去糖基化处理。
- 使用C4 1-5 µm 1.0 x 100 mm色谱柱,以水相中2%至80%乙腈的20分钟梯度将抗体洗脱至质谱仪中。在正离子模式下,锥孔电压设为150 V,采集m/z 350-4000范围内的数据。
- 使用适当的软件对原始数据进行去卷积。计算修饰抗体与未修饰抗体之间的质量差异。
3. 血清中曲妥珠单抗(TAMRA)2二氢哒嗪键的检测稳定性
- 在无菌条件下,使用 0.22 μm 滤膜过滤血清。可加入青霉素至终浓度为 100 单位/mL,链霉素至终浓度为 100 μg/mL。
- 在 96 孔板的外周孔中加入水。在中央孔中,将 90 µL 过滤后的血清与 10 µL 浓度为 1 mg/mL 的 trastuzumab(TAMRA)2 在 PBS 中混合,每组设三个复孔,终浓度为 0.1 mg/mL。将该板置于 37 °C、湿度饱和、含 4–5% CO2 的培养箱中孵育。
- 在连续 5 天内,每隔 24 小时用移液器充分混匀各孔内容物,取 5 µL 等分试样,用液氮速冻后,于 -80 °C 保存。
- 待所有样品收集完毕后,将等分试样解冻,并采用间接 ELISA 方法进行分析,方法参照先前报道12,并略有修改:
- 在 4 °C 条件下,用 0.25 µg/mL HER2 包被 96 孔板过夜。其余所有步骤均在室温下进行。
- 次日,用含 0.05% Tween 的 PBS(PBS-T)洗涤 5 次,然后加入含 1% 牛血清白蛋白(BSA)的封闭液封闭 1 小时。
- 洗涤后,将样品以 1:10000 的比例稀释于 PBS 中,孵育 2 小时。
- 洗涤后,加入小鼠来源的抗 TAMRA 抗体,以 1:2000 的比例稀释于含 0.5% BSA 的 PBS-T 中,孵育 1 小时。
- 洗涤后,加入辣根过氧化物酶(HRP)标记的抗小鼠二抗,以 1:1000 的比例稀释于含 0.5% BSA 的 PBS-T 中,孵育 1 小时。
- 加入 TMB 显色底物,反应 5–10 分钟。
- 加入 50 µL 1 M H2SO4 终止反应,在 450 nm 处测定吸光度,并减去 570 nm 处的背景值。
- 对标准品稀释系列拟合四参数逻辑回归曲线,并据此插值计算样品的测定值。
注:通过将步骤 3.3 中所述检测方法替换为商用 ELISA 试剂盒以测定抗体药物偶联物(ADC)浓度,可采用相同方案评估 trastuzumab(MMAE)2 的稳定性。
4. 评估抗体药物偶联物的细胞毒性
注意:本实验方案基于先前报道的检测方法23,26,并进行了部分修改。
- 解冻 SK-BR-3 和 MCF-7 细胞,并将其接种于含有完全培养基的 p25 培养瓶中,培养基成分为 DMEM,添加 10% 热灭活胎牛血清、100 单位/mL 青霉素和 100 µg/mL 链霉素。
- 在检测前至少传代培养 2 次,当细胞融合度达到 80–90% 时进行传代(每 3–4 天一次)。
- 在检测前两天,向 96 孔板的外周孔中加入水。然后用含 0.5 mM EDTA 的 0.05% 胰蛋白酶消化细胞,250 × g 离心 3 分钟,弃上清,用新鲜培养基重悬细胞,并在 96 孔板每个(空)孔中接种 3000 个细胞,每孔体积为 100 µL。
- 细胞接种后两天,用含 0.1% DMSO 的完全培养基对所有样品进行 10 倍系列稀释,每个样品设三个复孔。需考虑以下样品和对照:trastuzumab(MMAE)2、trastuzumab(CypK)2、野生型 trastuzumab、四嗪-vcMMAE 和 MMAE。
- 向每孔加入 100 µL 各样品,于 37 °C、4–5% CO2 条件下孵育 5 天。
- 第 5 天检测细胞活力。使用商用试剂盒裂解细胞并检测释放的 ATP 含量。以经 0.1% DMSO 处理的对照组细胞信号为基准,计算各组信号的百分比并作图。
注意:抗体药物偶联物(ADC)可在含血清条件下孵育 5 天,并通过细胞毒性检测验证其功能稳定性。
警告:MMAE 具有高度毒性。操作 MMAE 及其衍生物时必须佩戴手套和护目镜。若实验中使用未修饰的 MMAE 作为对照,在 DMSO 中配制其储备液时,务必在通风橱内操作固体原料。
结果
报道的瞬时表达系统(图1a)每升培养基可产生22 ± 2 mg的trastuzumab(CypK)2,相当于相同条件下产生的野生型抗体的2/3(图1c)。稳定细胞系可将产量提高至31 ± 2 mg/L21。
曲妥珠单抗(CypK)2 可与四嗪-vcMMAE 进行偶联,从而在 25 °C 下 3 小时内生成准均一的曲妥珠单抗(MMAE)2(图 2)。当每摩尔 CypK 使用 5 个或更多摩尔当量的毒素时,由于该细胞毒素具有较高的疏水性,需添加 10% 乙腈。或者,在不使用乙腈的条件下,使用 2 当量的四嗪-vcMMAE 也可在 20 小时内完成该环加成反应(图 2c)。曲妥珠单抗(CypK)2 在 25 °C 下 2 小时内即可与四嗪-TAMRA 发生反应;当温度降低至 4 °C 时,则需要 3–6 小时(图 3c)。
trastuzumab(MMAE) 的预期药物抗体比2 通过HPLC-HIC测定为1.9(图2b)。最初在色谱图8.0分钟处观察到的峰代表未结合抗体(DAR 0),反应完全时该峰应完全消失。DAR 1 物种的洗脱时间为9.1–9.6分钟,其峰面积应 < 3小时后保留率为10%;目标产物DAR 2的保留时间为10.5–11.0,预期峰面积 > 90%。SDS-PAGE 凝胶中的迁移率偏移和荧光证实了 TAMRA 的掺入图3b)并通过液相色谱-质谱法(LC-MS)验证免疫偶联物的身份图 2d- e 和 图3d).
将曲妥珠单抗(TAMRA)2在人血清中孵育5天后,通过ELISA分析证实载荷仍连接在抗体上(图4b)。在细胞毒性实验中,曲妥珠单抗(MMAE)2对SK-BR-3(HER2高表达)乳腺癌细胞表现出高活性,其半数最大有效浓度(EC50)为55 ± 10 pM(图4d)。曲妥珠单抗(MMAE)2在人血清中孵育5天后仍保持细胞毒性(图4c)。相反,当该抗体药物偶联物在MCF-7(HER2低表达)细胞中检测时,其EC50降低了200倍(图4d)。野生型抗体、曲妥珠单抗(CypK)2以及四嗪-vcMMAE在两种细胞系中均表现出极低的毒性(图4d和图4e),而游离MMAE则在两种细胞系中均表现出高且非特异性的细胞毒性(图4e)。
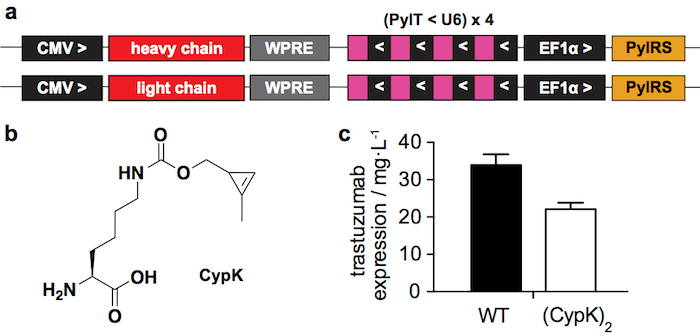
图 1:瞬时表达系统。A. 在 HEK293 细胞中用于瞬时转染的质粒相关区域。CMV:巨细胞病毒启动子,WPRE:土拨鼠肝炎病毒转录后调控元件,PylT:吡咯赖氨酰 tRNA,U6:特异性启动子,PylRS:吡咯赖氨酰 tRNA 合成酶,> 和 <:转录方向。B. Nε-[((2-甲基环丙-2-烯-1-基)甲氧基)羰基]-L-赖氨酸(CypK)。C. 经蛋白 A 纯化后,通过 Western 印迹检测获得的野生型(WT)曲妥珠单抗与 trastuzumab(CypK)2 的表达产量。误差条表示三次生物学重复实验的标准偏差。本图经 Oller-Salvia et al. 201821 许可修改。请点击此处查看本图的放大版本。

图 2:曲妥珠单抗(CypK)2 与四嗪-vcMMAE 的偶联。A. 抗体中的 CypK 残基与 MMAE 四嗪衍生物之间的逆电子需求狄尔斯-阿尔德环加成反应。反应基团以红色标出,p-氨基苯甲醇以绿色表示,缬氨酸-瓜氨酸二肽以蓝色表示。B. HPLC-HIC 色谱图,显示抗体偶联反应的进程。C. 使用不同试剂浓度时,相对于最大 DAR 值 1.9 的转化程度。D-E. 全长抗体在偶联前后的去卷积质谱图。Trastuzumab(CypK)2 由稳定细胞系制备获得。本图经 Oller-Salvia et al. 201821 许可修改。请点击此处查看该图的放大版本。
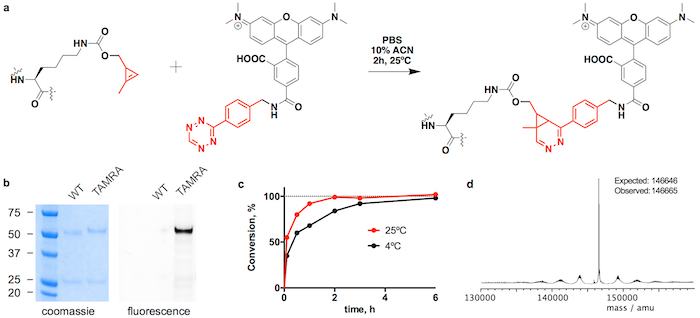
图3:曲妥珠单抗(CypK)2 与四嗪-TAMRA 的偶联反应。A. 抗体中 CypK 残基与 TAMRA 四嗪衍生物之间的逆电子需求型 Diels-Alder 环加成反应。B. SDS-PAGE 凝胶显示由于 TAMRA 偶联导致的迁移率变化及凝胶内荧光信号。C. 在两种不同温度下的偶联动力学。D. 曲妥珠单抗(TAMRA)2 的去卷积质谱图。曲妥珠单抗(CypK)2 由稳定细胞系制备获得。本图经 Oller-Salvia et al. 201821 许可修改。请点击此处查看该图的放大版本。
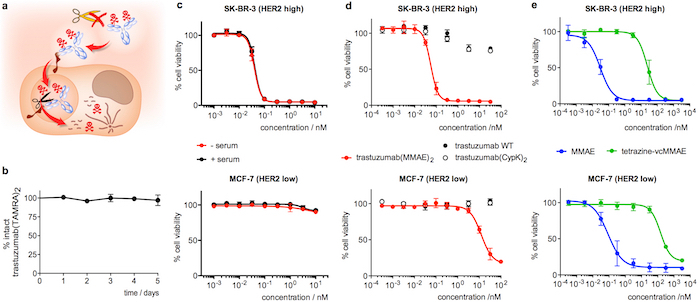
图 4:曲妥珠单抗偶联物在血清中的稳定性及其细胞毒性。A. 示意图突出显示一种理想的内化型抗体药物偶联物(ADC)所需具备的特性。B. 通过 ELISA 测定曲妥珠单抗(TAMRA)2 在人血清中的稳定性。C. 曲妥珠单抗(MMAE)2在人血清中孵育 5 天后的细胞活力检测(+ 血清,黑色)。在同一实验中设置了以 PBS 替代血清孵育的对照样品(- 血清,红色)。D. 使用新鲜稀释的抗体样品进行的细胞活力检测。E. 使用新鲜稀释的 MMAE 衍生物进行的细胞活力检测。误差条表示三次独立实验的均值标准误。本图经许可修改自 Oller-Salvia et al. 201821。请点击此处查看该图的放大版本。
讨论
本方案中所述的瞬时表达程序用于生产 trastuzumab(CypK)2,操作简便且具有高度模块化。所获得的产量处于学术研究环境中预期的范围之内27,并且可通过构建稳定细胞系进一步提高产量21。在表达过程中,CypK 浓度低于 5 mM 可能导致非天然氨基酸(ncAA)的掺入率降低,而浓度过高则可能影响细胞生长并减少抗体产量。CypK 作为游离氨基酸在水中的溶解度较低,因此应先将其溶于 0.1 M NaOH 中配制成 100 mM 储存液,再加入培养基中。在将 CypK 稀释于培养基后、添加至细胞前,必须使用 HCl 中和培养基,并进行过滤除菌。 随后,使用本方案指定的转染试剂,并严格遵循试剂生产商推荐的孵育时间,对于实现高效表达至关重要。有关人源抗体瞬时表达的更多细节,读者可参考其他已发表的实验方案31,32。
当抗体纯化时,需要使用大量过量的蛋白A树脂,以确保从上清液中完全沉淀抗体。为防止曲妥珠单抗在洗脱过程中发生沉淀,建议使用缓冲能力较强的溶液,洗脱后立即用PBS稀释,并通过换液避免过度浓缩。始终保存抗体 <5 mg/mL
曲妥珠单抗(CypK)2与四嗪-vcMMAE的偶联反应速度比大多数已报道的其他用于抗体偶联药物(ADC)的生物正交反应更快。此外,该环加成反应在非常温和的条件下即可发生:室温或更低温度以及生理pH条件。在加入PBS和抗体之前,必须先用乙腈稀释反应物的DMSO储备液;否则四嗪衍生物会发生沉淀。乙腈的使用仅因MMAE和TAMRA具有高度疏水性所致,而疏水性较低的分子可能无需添加共溶剂。或者,四嗪-vcMMAE也可在不使用乙腈的情况下进行偶联,仅需2当量的四嗪-vcMMAE,反应20小时即可完成。与当前基于非天然氨基酸(ncAA)的技术相比,这种毒素用量的显著减少可能大幅降低ADC的生产成本。曲妥珠单抗(CypK)2在4 °C保存条件下至少4个月内保持完全反应活性。
HPLC-HIC 能够准确测定 DAR,因为 MMAE 具有高度疏水性,可对含有 0、1 和 2 个毒素分子的抗体偶联物峰实现优异的分离效果。 未反应的四嗪-vcMMAE 在约 13.7 分钟处洗脱,并在 280 nm 处被检测到。该技术要求起始原料具有高纯度。此外,不建议使用其他可与四嗪反应的分子(如 BCN-OH)来淬灭反应,因为它们可能改变保留时间及峰形。为了获得良好的分离效果,特别是当进样量超过 10–20 µL 时,样品的盐浓度必须与梯度起始时流动相中的盐浓度相匹配。
关于液相色谱-质谱(LC-MS)分析,需要对抗体样品进行去糖基化处理,以便在对原始谱图进行去卷积时获得单一峰。总抗体和抗体药物偶联物(ADC)质量的准确性可能因仪器校准情况而异。因此,为计算修饰基团的质量,应从ADC测得的质量中减去未修饰抗体测得的质量。现代高分辨质谱仪应能提供低于1:10000的相对误差。尽管LC-MS也可用于计算不同物种之间的比例,但该值通常会偏高,因为修饰可能影响生成物种的电离能力,且微量杂质可能无法被检测到。
抗体药物偶联物(ADC)中连接子的稳定性至关重要,因为药物过早释放会导致毒性升高和疗效降低;游离的细胞毒素会损伤健康组织,而无载药抗体则会与载药抗体竞争病变细胞上的靶点结合位点。在稳定性检测的变异范围内,药物释放率应低于5%。
最后,可通过比较SK-BR-3细胞(HER2高表达)和MCF-7细胞(HER2低表达)中的细胞毒性来评估靶向HER2的抗体药物偶联物(ADC)(如trastuzumab(MMAE)2)的选择性,因为后者的HER2受体表达量比前者低15倍28。与MCF-7细胞相比,该免疫偶联物在SK-BR-3细胞中预期导致的细胞活力下降至少达到两个数量级。SK-BR-3细胞中的EC50应处于两位数纳摩尔范围内,反映出该ADC的高活性29,30。未修饰的抗体(无论是trastuzumab(MMAE)2还是trastuzumab)在此实验中应不显示任何毒性。四嗪-vcMMAE的作用应比ADC低三个数量级,因为连接子会消除拟肽毒素的活性。相反,由于MMAE能够穿透细胞膜30,其毒性应与ADC相似,但在HER2高表达和HER2低表达细胞系之间无选择性差异。此外,若在ADC于血清中孵育5天后进行该实验,则可用于功能性验证连接子的稳定性:若MMAE在部分连接子存在的情况下被释放,会导致ADC在SK-BR-3细胞中的效力下降;若连接子以无痕方式被裂解,则会导致选择性降低。
本文所述的ADC技术可实现环丙烯赖氨酸衍生物在IgG1抗体上的高效且位点特异性的整合。经过简便的纯化步骤后,抗体可快速与含四嗪的分子发生偶联,生成均一的产物。由于环丙烯最小连接基团体积小且反应活性高,该方法有望实现对空间位阻较大的有效载荷进行偶联。所获得的免疫偶联物在血清中稳定,且具有高活性和高选择性。总体而言,CypK技术可实现抗体及其他蛋白质偶联物快速、位点特异且稳定的生物正交连接,适用于治疗或诊断应用。
披露
作者无任何利益冲突需要披露。
致谢
本工作由英国医学研究理事会资助。B.O.-S. 获得欧洲分子生物学组织(EMBO)奖学金(ATLF 158-2016),并感谢 H. Pelham 和 J.W. Chin 提供的支持,同时感谢 G. Kym、C. W. Morgan 和 O. Perisic 提供的帮助与建议。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Expi293F | ThermoFisher Scientific | A14527 | HEK 悬浮细胞 |
| Expi293 表达培养基 | ThermoFisher Scientific | A1435101 | 表达培养基 |
| 抗生素-抗真菌剂 | ThermoFisher Scientific | 15240062 | 青霉素-链霉素-两性霉素 B |
| 125 mL 聚碳酸酯锥形瓶,带通气盖 | Corning | 431143 | 摇瓶 |
| Brunswick S41i 培养箱 | Eppendorf | S41I230011 | 带摇床的 CO₂ 培养箱 |
| 氢氧化钠 4 mol/L (4 N) 水溶液 | VWR | 191373M | |
| 环丙烯赖氨酸 | Sichem | SC-8017 | 本研究中按照 Elliot 等人 2014 年所述方法合成 |
| Steriflip-GP,0.22 µm,聚醚砜,γ 射线灭菌 | Merck Millipore | SCGP00525 | |
| Opti-MEM 低血清培养基 | ThermoFisher Scientific | 31985070 | 低血清培养基 |
| ExpiFectamine 293 转染试剂盒 | ThermoFisher Scientific | A14525 | 转染试剂 |
| 5810 R 离心机 | Eppendorf | 5811000460 | |
| Millex-GP 注射器滤器单元,0.22 µm,聚醚砜,33 mm,γ 辐照灭菌 | Merck Millipore | SLGP033RS | |
| Protein A 树脂 | Sino Biological | 10600-P07E-RN-25 | |
| Poly-Prep 层析柱,每包 50 根 | Bio-Rad | 7311550 | 聚丙烯层析柱 |
| Econo-Column 漏斗 | Bio-Rad | 7310003 | |
| 柠檬酸钠 | Fluka | 71635 | |
| ÄKTA explorer FPLC | GE Healthcare | ||
| HiTrap HIC 筛选试剂盒 | GE Healthcare | 28-4110-07 | 包含 HiTrap 1 mL Butyl HP |
| 硫酸铵 | VWR | 2133.296 | |
| 异丙醇 | Honywell | 34863-2.5L | |
| 二甲基亚砜 | Sigma-Aldrich | D8418-50ML | |
| 四嗪-vcMMAE | ChemPartner | - | 定制合成 |
| 四嗪-5-TAMRA | Jena Bioscience | CLK-017-05 | |
| NuPAGE 4-12% Bis-Tris 凝胶,1.0 mm × 10 孔 | ThermoFisherScientific | NP0321BOX | |
| Xcell SureLock Mini-Cell | ThermoFisherScientific | EI0001 | |
| UltiMate 3000 HPLC | ThermoFisherScientific | ||
| Thermo Scientific MAbPac HIC-20,4.6 × 100 mm,5 µm | ThermoFisherScientific | 088553 | |
| PNGase F | New England BioLabs | P0704S | |
| NanoAcquity | Waters | ||
| C4 BEH 1-5 µm 1.0 × 100 mm UPLC 色谱柱 | Waters | ||
| 96 孔细胞培养板 | ThermoFisherScientific | 156545 | |
| 人血清 | Sigma-Aldrich | H4522-20mL | |
| CO₂ 培养箱 | Panasonic | ||
| HER2 ECD | Sino Biological | 10004-HCCH | |
| 抗-TAMRA 抗体 | Abcam | an171120 | |
| 抗小鼠 HRP 抗体 | Santa Cruz | sc-2005 | |
| TMB | BioLengend | 421101 | |
| 硫酸 | Sigma-Aldrich | 84727-500ML | |
| PHERAstar FS | BMG Labtech | 酶标仪 | |
| DMEM | Sigma-Aldrich | D5671-500ML | |
| SK-BR-3 | ATCC | HTB-30 | |
| MCF-7 | ATCC | HTB-22 | |
| CellTiterGlo 2.0 检测试剂盒 | Promega | G9242 | 基于检测细胞裂解后释放的 ATP 的细胞活力检测试剂盒,输出信号为发光 |
| 单甲基奥瑞他汀 E | Cayman Chemical | 16267 | |
| NanoDrop 2000 | ThermoFisherScientific | 微量分光光度计 | |
| 人 IgG ELISA 定量试剂盒 | Bethyl | E80-104 | |
| MassLynx 中的 MaxEnt1 | Waters | 质谱去卷积软件 | |
| IntantBlue | Expedeon | ISB1L | 考马斯亮蓝染色剂 |
| 完整 MMAE-ADC ELISA 试剂盒(夹心法) | Epitope Diagnostics, Inc. | KTR 782 | |
| 50 mL 离心管,114×28 mm,聚丙烯材质 | Sarstedt | 62.547.254 | 锥形离心管 |
| Amicon Ultra-15 离心过滤单元,50,000 NMWL | Merck | UFC905024 | 离心过滤浓缩器(Protein A 沉淀后使用) |
| Amicon Ultra-4 离心过滤单元,50,000 NMWL | Merck | UFC805024 | 离心过滤浓缩器(FPLC 或 HPLC 纯化后使用) |
| Zeba 脱盐离心柱,7K MWCO,0.5 mL | ThermoFisherScientific | 89882 | 尺寸排阻离心柱 |
| PCR 管,0.2 mL,平盖 | Thistle Scientific Ltd | AX-PCR-02-C-CS | PCR 管 |
| Nunc MaxiSorpª 平底板 | ThermoFisherScientific | 44-2404-21 | ELISA 板 |
参考文献
- Beck, A., Goetsch, L., Dumontet, C., Corvaia, N. Strategies and challenges for the next generation of antibody-drug conjugates. Nature Reviews Drug Discovery. 16 (5), 315-337 (2017).
- Wakankar, A. A., et al. Physicochemical Stability of the Antibody−Drug Conjugate Trastuzumab-DM1: Changes due to Modification and Conjugation Processes. Bioconjugate Chemistry. 21 (9), 1588-1595 (2010).
- Stan, A. C., Radu, D. L., Casares, S., Bona, C. A., Brumeanu, T. -D. Antineoplastic Efficacy of Doxorubicin Enzymatically Assembled on Galactose Residues of a Monoclonal Antibody Specific for the Carcinoembryonic Antigen. Cancer Research. 59 (1), 115-121 (1999).
- Hamblett, K. J., et al. Effects of Drug Loading on the Antitumor Activity of a Monoclonal Antibody Drug Conjugate. Clinical Cancer Research. 10 (20), 7063-7070 (2004).
- Chari, R. V. J., Miller, M. L., Widdison, W. C. Antibody-Drug Conjugates: An Emerging Concept in Cancer Therapy. Angewandte Chemie International Edition. 53 (15), 3796-3827 (2014).
- Chin, J. W. Expanding and Reprogramming the Genetic Code. Nature. 550 (7674), 53-60 (2017).
- Axup, J. Y., et al. Synthesis of Site-Specific Antibody-Drug Conjugates Using Unnatural Amino Acids. Proceedings of the National Academy of Sciences of the United States of America. 109 (40), 16101-16106 (2012).
- Hallam, T. J., Wold, E., Wahl, A., Smider, V. V. Antibody Conjugates with Unnatural Amino Acids. Molecular Pharmaceutics. 12 (6), 1848-1862 (2015).
- Tian, F., et al. A General Approach to Site-Specific Antibody Drug Conjugates. Proceedings of the National Academy of Sciences of the United States of America. 111 (5), 1766-1771 (2014).
- Kern, J. C., et al. Discovery of Pyrophosphate Diesters as Tunable, Soluble, and Bioorthogonal Linkers for Site-Specific Antibody-Drug Conjugates. Journal of the American Chemical Society. 138 (4), 1430-1445 (2016).
- Zimmerman, E. S., et al. Production of Site-Specific Antibody-Drug Conjugates Using Optimized Non-Natural Amino Acids in a Cell-Free Expression System. Bioconjugate Chemistry. 25 (2), 351-361 (2014).
- VanBrunt, M. P., et al. Genetically Encoded Azide Containing Amino Acid in Mammalian Cells Enables Site-Specific Antibody-Drug Conjugates Using Click Cycloaddition Chemistry. Bioconjugate Chemistry. 26 (11), 2249-2260 (2015).
- Xiao, H., et al. Genetic Incorporation of Multiple Unnatural Amino Acids into Proteins in Mammalian Cells. Angewandte Chemie International Edition. 52 (52), 14080-14083 (2013).
- Milles, S., et al. Click Strategies for Single-Molecule Protein Fluorescence. Journal of the American Chemical Society. 134 (11), 5187-5195 (2012).
- Lallana, E., Riguera, R., Fernandez-Megia, E. Reliable and Efficient Procedures for the Conjugation of Biomolecules through Huisgen Azide-Alkyne Cycloadditions. Angewandte Chemie International Edition. 50 (38), 8794-8804 (2011).
- Koehler, C., et al. Genetic Code Expansion for Multiprotein Complex Engineering. Nature Methods. 13 (12), 997-1000 (2016).
- Lyon, R. P., et al. Reducing Hydrophobicity of Homogeneous Antibody-Drug Conjugates Improves Pharmacokinetics and Therapeutic Index. Nature Biotechnology. 33 (7), 733-735 (2015).
- Elliott, T. S., et al. Proteome Labeling and Protein Identification in Specific Tissues and at Specific Developmental Stages in an Animal. Nature Biotechnology. 32, 465-472 (2014).
- Ravasco, J. M. J. M., Monteiro, C. M., Trindade, A. F. Cyclopropenes: A New Tool for the Study of Biological Systems. Organic Chemistry Frontiers. 4 (6), 1167-1198 (2017).
- Yang, J., Šečkutė, J., Cole, C. M., Devaraj, N. K. Live-Cell Imaging of Cyclopropene Tags with Fluorogenic Tetrazine Cycloadditions. Angewandte Chemie International Edition. 124 (30), 7594-7597 (2012).
- Oller-Salvia, B., Kym, G., Chin, J. W. Rapid and Efficient Generation of Stable Antibody-Drug Conjugates via an Encoded Cyclopropene and an Inverse-Electron-Demand Diels-Alder Reaction. Angewandte Chemie International Edition. 57, 2831-2834 (2018).
- Schmied, W. H., Elsässer, S. J., Uttamapinant, C., Chin, J. W. Efficient Multisite Unnatural Amino Acid Incorporation in Mammalian Cells via Optimized Pyrrolysyl tRNA Synthetase/tRNA Expression and Engineered eRF1. Journal of the American Chemical Society. 136 (44), 15577-15583 (2014).
- Junutula, J. R., et al. Site-Specific Conjugation of a Cytotoxic Drug to an Antibody Improves the Therapeutic Index. Nature Biotechnology. 26 (8), 925-932 (2008).
- Junutula, J. R., et al. Rapid Identification of Reactive Cysteine Residues for Site-Specific Labeling of Antibody-Fabs. Journal of Immunological Methods. 332 (1), 41-52 (2008).
- Doronina, S. O., et al. Development of potent monoclonal antibody auristatin conjugates for cancer therapy. Nature Biotechnology. 21 (7), 778-784 (2003).
- Shiraishi, Y., et al. Identification of Highly Reactive Cysteine Residues at Less Exposed Positions in the Fab Constant Region for Site-Specific Conjugation. Bioconjugate Chemistry. 26 (6), 1032-1040 (2015).
- Sabourin, M., et al. Increasing Antibody Yield and Modulating Final Product Quality using the Freedom(TM). CHO-S(TM) Production Platform. BMC Proceedings. 5 (8), 102(2011).
- Xiao, Y., Gao, X., Maragh, S., Telford, W. G., Tona, A. Cell Lines as Candidate Reference Materials for Quality Control of ERBB2 Amplification and Expression Assays in Breast Cancer. Clinical Chemistry. 55 (7), 1307-1315 (2009).
- Shinmi, D., et al. One-Step Conjugation Method for Site-Specific Antibody-Drug Conjugates through Reactive Cysteine-Engineered Antibodies. Bioconjugate Chemistry. 27 (5), 1324-1331 (2016).
- Badescu, G., et al. Bridging Disulfides for Stable and Defined Antibody Drug Conjugates. Bioconjugate Chemistry. 25 (6), 1124-1136 (2014).
- Vazquez-Lombardi, R., et al. Transient expression of human antibodies in mammalian cells. Nature Protocols. 13 (1), 99-117 (2018).
- Baldi, L., Hacker, D. L., Meerschman, C., Wurm, F. M. Protein Expression in Mammalian Cells: Methods and Protocols. Hartley, J. L. , Humana Press. 13-26 (2012).
重印与许可
标签
