此处,我们描述了一种 原位 一种杂交检测方法,可在单细胞水平上以单核苷酸分辨率灵敏且特异地检测短至50个核苷酸的序列。该检测既可手动操作,也可自动进行,能够在组织环境中实现对剪接变异体、短序列及突变的可视化。
本文内容
摘要
摘要
由于精准医疗高度依赖于生物标志物的准确检测,因此对可测量RNA生物标志物的标准化且可靠的检测技术的需求日益增长 原位 在临床样本中。尽管研磨结合类检测方法(如RNA测序和定量RT-PCR)能够实现高灵敏度的基因表达检测,但这些方法需要进行RNA提取,因而无法在组织形态学背景下开展有价值的表达分析。 原位 此处描述的原位杂交(ISH)检测方法可在单核苷酸分辨率及单细胞水平上检测短至50个核苷酸的RNA靶序列。该检测方法是对先前开发的商业检测法的补充,具有高灵敏度和高特异性 原位 检测组织中的剪接变体、短靶序列及点突变。本方案中,探针设计用于特异性靶向两种具有重要临床意义的剪接变体EGFRvIII和METΔ14的特有外显子连接区域。通过在Jurkat T细胞系中特异性检测T细胞受体α和β的CDR3序列,展示了该原位杂交(ISH)检测方法对短靶序列的检测能力。同时,利用自动化染色平台,通过对细胞系中EGFR L858R和KRAS G12A单核苷酸变异的可视化,证明了该RNA ISH检测技术可在单核苷酸分辨率下区分RNA靶序列(即点突变)。综上所述,本方案展示了一种专门化的RNA原位杂交检测方法,可实现对剪接变体、短序列及突变的有效检测 原位 用于手动操作及自动染色机。
引言
高通量转录组学技术(如微阵列和下一代RNA测序(RNAseq))极大地加速了RNA生物标志物的发现,这些标志物在包括癌症在内的多种疾病中具有诊断、预后和预测性的临床价值1,2为了推动这些生物标志物在精准医学中的应用,迫切需要标准化且可靠的检测技术,以在临床样本的组织背景下定量RNA生物标志物。尽管RNA测序和定量逆转录PCR等广泛应用的“研磨-结合”式检测方法能够实现高灵敏度的基因表达检测,但其所需的组织均质化和RNA提取过程会导致组织空间信息的丢失 体内 细胞类型特异性与形态学信息3. 传统方法 原位 RNA检测方法缺乏足够的灵敏度和特异性,难以在组织环境中可靠地检测稀有或低表达的RNA生物标志物4.
一种商业化的 原位 原位杂交(ISH)实验(例如, RNAscope 检测是一种已应对上述挑战的技术,可实现对组织形态背景下长度超过 300 个核苷酸的单个 RNA 分子进行高灵敏度和高特异性的可视化。该检测采用一种独特的寡核苷酸探针设计,包含约 6–20 对双 Z 探针,并结合基于杂交的先进信号放大技术5.
本研究介绍了一种专门的RNA原位杂交(ISH)检测方法——BaseScope,该方法是对先前设计的商业技术的补充,能够以单核苷酸分辨率检测短至50个核苷酸的RNA靶序列。 该检测方法可应对转录组的复杂性,仅需一对双Z探针即可在组织环境中准确检测外显子连接区、短靶序列以及点突变(表1)。本报告展示了完整的检测流程,并演示了其在福尔马林固定石蜡包埋(FFPE)细胞系和肿瘤组织中检测剪接变异体、T细胞受体克隆的CDR3序列以及单核苷酸突变中的应用。
方案
本研究中使用的人类肿瘤样本均为去标识化样本,并根据当地人类研究伦理指南从商业来源获得。
1. 样品、仪器和试剂的准备
- FFPE 样本制备
- 组织
- 解剖后立即取组织(切成3–4 mm厚的组织块),于10%中性缓冲福尔马林(NBF)中室温(RT)固定16–32小时。
注意:固定时间将根据组织类型和大小而有所不同。 - 用1×磷酸盐缓冲液(PBS)洗涤样品,随后采用标准乙醇(EtOH)梯度脱水(70% EtOH 30–60分钟,80% EtOH 30–60分钟,90% EtOH 30–60分钟,95% EtOH 30–60分钟,100% EtOH 3次,每次30–60分钟),最后用二甲苯处理。
- 使用标准程序将样本包埋于石蜡中6 根据需要修剪石蜡包埋块,以去除多余的石蜡。
注意:组织样本的包埋块大小会因样本尺寸而异,但通常大小为0.75 x 0.75 英寸2 或更小。
- 解剖后立即取组织(切成3–4 mm厚的组织块),于10%中性缓冲福尔马林(NBF)中室温(RT)固定16–32小时。
- 细胞系
- 根据特定细胞系的推荐方法收集并离心沉淀细胞。
- 在室温下,将细胞置于10%甲醛中,在旋转仪上固定24小时。
- 将细胞制备成预热处理胶中的沉淀例如,Histogel)。将凝胶-细胞沉淀置于冰上的一片Parafilm上,使其凝固,静置2–3分钟。将凝胶-细胞沉淀浸入1×PBS中。
- 按照步骤1.1.1所述对细胞沉淀进行脱水和包埋。
- 切片制备
- 使用切片机将包埋的组织/细胞切成5 ± 1 μm的切片,将切片贴附于静电粘附载玻片上,并在室温下晾干过夜。
注意:载玻片可在室温下干燥保存,最长可达3个月。 - 将切片放入切片架中,在进行检测前,于60 °C的循环空气烘箱中烘烤1小时。
注意:请立即使用载玻片,或在室温下用干燥剂保存最多1周。长期储存可能导致RNA降解。
- 使用切片机将包埋的组织/细胞切成5 ± 1 μm的切片,将切片贴附于静电粘附载玻片上,并在室温下晾干过夜。
- 组织
- 设备准备
- 将杂交炉温度设置为 40 °C。充分润湿加湿滤纸,并去除多余的 dH₂O。2O. 将滤纸放入湿度控制托盘中,并将托盘插入杂交炉内,使用前至少预热30分钟。
- 试剂准备
- 在两个透明剂容器中各加入200 mL二甲苯,并在两个染色容器中各加入200 mL 100%乙醇,用于切片的脱蜡。
- 通过将180 mL去离子水加入20 mL市售的10x靶位修复试剂中,配制200 mL商用1x靶位修复试剂2将10倍浓度的目标修复试剂稀释至20 mL。将两个载玻片架放入蒸锅中。其中一个载玻片架加入200 mL 1倍浓度的目标修复试剂,另一个载玻片架加入200 mL去离子水2O. 使用蒸锅将两种溶液加热至沸腾。
- 将50倍浓缩洗涤缓冲液在40 °C下预热10–20分钟。取60 mL预热的50倍浓缩洗涤缓冲液,加入2.94 L去离子水,稀释配制成3 L的1倍洗涤缓冲液。2O.
- 在通风橱中,通过将 100 mL Gill’s Hematoxylin 加入 100 mL dH₂O 中,配制 50% Gill’s Hematoxylin 复染液2O. 在通风橱中,通过将1.43 mL 28–30%的氢氧化铵加入250 mL dH₂O中,配制蓝化试剂(0.02% (w/v) 氨水)。2O.
- 将目标探针于40 °C预热10分钟,然后进行探针杂交,并将扩增试剂(AMP 0–6)恢复至室温。
2. RNA 原位杂交实验
- 脱蜡与脱水
- 按照步骤 1.1.3.2 所述进行烘片后(可选暂停点 1),在二甲苯中振荡脱蜡 5 分钟。更换新鲜二甲苯再脱蜡 5 分钟。在 100% 乙醇中振荡脱水 2 分钟,再用新鲜 100% 乙醇重复脱水 2 分钟。
- 将切片在循环空气烘箱中 60 °C 下或室温下晾干 5 分钟,直至完全干燥(可选暂停点 2)。
- 样本预处理
- 在室温下,向切片加入约 4 滴即用型过氧化氢溶液,孵育 10 分钟以淬灭内源性过氧化物酶活性。倾去液体,用 dH2O 漂洗两次。
- 在蒸锅中,将切片与 200 mL 靶修复试剂在 100 °C 下孵育 15–30 分钟。
注意:孵育时间可能因组织类型而异。本方案中,肿瘤样本和细胞团均孵育 15 分钟。 - 倾去液体,用 dH2O 漂洗两次,浸入 100% 乙醇中 3 分钟,然后在循环空气烘箱中 60 °C 或室温下干燥至完全。
- 使用疏水笔在切片周围画出疏水屏障,大小约为 0.75 x 0.75 英寸2。
注意:不建议画更小的屏障。对于较大的切片,需画出更大的屏障。 - 让屏障完全干燥 1 分钟,或在室温下过夜放置(可选暂停点 3)。
- 将切片置于切片架中,并将切片架放入湿度控制托盘。每张切片加约 4 滴蛋白酶 III,于杂交炉中 40 °C 孵育 15–30 分钟以进行蛋白消化。
注意:孵育时间可能因组织类型而异。本方案中,肿瘤样本消化 30 分钟,细胞团消化 15 分钟。 - 倾去液体,用 dH2O 漂洗两次。
- 探针杂交
- 加入约 4 滴适当的即用型探针溶液,覆盖整个切片。若使用较大切片,可加 5–6 滴。
- 在杂交炉中 40 °C 下杂交 2 小时。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复本步骤的漂洗程序。
- 信号放大
- 每张切片加约 4 滴 AMP 0,在杂交炉中 40 °C 孵育 30 分钟。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复本步骤的漂洗程序。
- 每张切片加约 4 滴 AMP 1,在杂交炉中 40 °C 孵育 15 分钟。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复漂洗程序。
- 每张切片加约 4 滴 AMP 2,在杂交炉中 40 °C 孵育 30 分钟。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复漂洗程序。
- 每张切片加约 4 滴 AMP 3,在杂交炉中 40 °C 孵育 30 分钟。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复漂洗程序。
- 每张切片加约 4 滴 AMP 4,在杂交炉中 40 °C 孵育 15 分钟。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复漂洗程序。
- 每张切片加约 4 滴 AMP 5,在室温下孵育 30 分钟。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复漂洗程序。
- 每张切片加约 4 滴 AMP 6,在室温下孵育 15 分钟。倾去液体,在 200 mL 1x 洗涤缓冲液中室温漂洗 2 分钟,期间偶尔振荡。重复漂洗程序。
- 信号检测
- 配制 Fast Red 染液工作液。对于一张具有 0.75 x 0.75 英寸2 疏水屏障的切片,将 2 μL Fast Red-B 染液加入 120 μL Fast Red-A 中,混匀。
注意:根据疏水屏障大小和切片数量,Fast Red 工作液的体积会有所不同。 - 倾去切片上多余液体,加入 Fast Red 染液工作液。在加盖的托盘中室温孵育 10 分钟,避免光照。
注意:Fast Red 工作液需在配制后 5 分钟内使用,且避免暴露于直射阳光或紫外光下。 - 倾去 Fast Red 溶液,用自来水漂洗切片两次。将切片放回切片架中。
- 配制 Fast Red 染液工作液。对于一张具有 0.75 x 0.75 英寸2 疏水屏障的切片,将 2 μL Fast Red-B 染液加入 120 μL Fast Red-A 中,混匀。
- 复染
- 在室温下用 50% Gill 苏木精染液复染组织切片 2 分钟。用自来水漂洗切片,并重复多次直至背景清晰而切片保持紫色。将切片浸入 0.02% 氨水溶液中进行蓝化(浸 2–3 次)。将氨水替换为自来水,再漂洗 3–5 次。
- 切片封片
- 将切片在循环空气烘箱中 60 °C 下干燥 15 分钟,或在室温下干燥至完全。每张切片加 1–2 滴封片试剂,盖上盖玻片。避免产生气泡。切片在空气中干燥至少 5 分钟。
注意:Fast Red 底物对酒精敏感。切勿用酒精脱水。
- 将切片在循环空气烘箱中 60 °C 下干燥 15 分钟,或在室温下干燥至完全。每张切片加 1–2 滴封片试剂,盖上盖玻片。避免产生气泡。切片在空气中干燥至少 5 分钟。
- 观察
- 在标准明场显微镜下观察切片。
结果
原位 杂交检测流程:
该流程如图1所示,包括四个步骤:使用靶点修复液和蛋白酶溶液对细胞或组织进行通透处理,探针与靶RNA的杂交,信号放大,以及信号的可视化。也可通过数字成像软件系统或根据每个细胞的信号点数量以半定量方式对信号进行定量分析。图2中描述的手动操作流程目前已在商用自动染色系统中实现完全自动化。
外显子连接检测(EGFRvIII剪接变异体)的代表性染色结果:EGFRvIII是表皮生长因子受体的一种变异体,由第2至第7外显子的框内基因组缺失引起,导致组成性激活的致癌信号通路7。本实验用于鉴定福尔马林固定石蜡包埋(FFPE)胶质母细胞瘤(GBM)肿瘤样本中的EGFRvIII状态。设计了单个双Z探针以跨越外显子连接区域,从而检测野生型(WT)、突变型或两种转录本(图3A)。野生型EGFR探针跨越外显子1与2(E1/E2)或外显子7与8(E7/E8)的连接处,而EGFRvIII特异性探针则跨越外显子1与8(E1/E8)的连接处。同时使用了一个共同探针,跨越外显子8与9(E8/E9)的连接处,用于检测总的EGFR表达(包括野生型和EGFRvIII转录本)。所有探针均用于确定FFPE GBM样本中的EGFR状态。图3B中展示的两个代表性样本来自一项更大规模的研究。EGFR状态通过独立方法RT-PCR进行了验证。两个野生型探针在两个样本中均检测到信号,表明这两个样本均表达野生型EGFR(图3B)。然而,突变型探针仅在EGFRvIII阳性样本中检测到信号,证实该样本确实携带EGFRvIII变异体(图3B,左图)。相反,在EGFRvIII阴性样本中,突变型探针未检测到信号(图3B,右图)。综上所述,这些结果表明外显子连接检测法可用于鉴定GBM FFPE肿瘤样本中的EGFRvIII状态。
短靶标染色的代表性结果:
互补决定区3(CDR3)是T细胞受体中高度可变的区域。通常,CDR3序列较短;例如,Jurkat T细胞系中的CDR3 α和β序列长度分别为51和48个核苷酸(图4A)。为了鉴定Jurkat细胞中表达的特异性CDR序列,除设计用于阴性对照的CDR3 α和β正义探针外,还合成了Jurkat T细胞系中表达的CDR3 α和β反义探针。所有探针均在福尔马林固定石蜡包埋(FFPE)处理的Jurkat细胞中进行检测。结果显示,Jurkat细胞中针对CDR3 α和β的反义探针均呈现强阳性染色,而正义探针几乎未检测到信号(图4B)。这些结果表明,短靶标检测方法能够有效区分T细胞受体克隆中高度可变但长度较短的CDR序列。
代表性EGFR L858R点突变染色结果:
点突变探针被开发用于检测肿瘤背景下存在的单核苷酸变异以及小片段插入或缺失(INDELs)。 图 5A 展示了……的能力 原位 EGFR L858R(2573T)点突变的检测>G)设计了两种探针:一种用于检测EGFR L858R突变序列,另一种用于检测EGFR L858野生型(WT)序列。两种探针均在两种经福尔马林固定石蜡包埋(FFPE)处理的细胞系中进行测试:H2229细胞系仅表达EGFR L858 WT,H1975细胞系为EGFR L858R突变的杂合子。L858R突变探针仅在H1975细胞系中检测到信号,而在H2229细胞系中未检测到信号;而野生型探针在两种细胞系中均检测到信号。类似地, 图 5B 可视化 原位 KRAS G12A(35 G)点突变的检测>C)。设计了两种探针以分别检测KRAS G12A突变型(MT)和KRAS G12野生型(WT)序列,并在HuT78细胞系(仅表达KRAS G12 WT)和SW116细胞系(对KRAS G12A突变呈杂合状态)上进行测试。结果显示,KRAS G12 WT探针在两种细胞系中均检测到信号,而KRAS G12A探针仅在SW116细胞系中检测到信号。综上所述,这些数据表明该点突变检测方法具备在细胞和组织环境中检测单核苷酸多态性的技术能力。
代表性染色结果用于自动化 原位 检测
自动化检测方法能够更可靠地处理更大数量的样本,最大限度地减少操作者之间的差异和手动操作时间,并产生稳定且可重复的结果。因此,开发了该检测方法的自动化版本。为展示本检测方法的自动化染色能力,对剪接变异体METΔ14的检测进行了研究。该变异体是由于MET基因的第14号外显子在pre-mRNA剪接过程中被跳过,导致MET受体持续活化并发生癌性转化8,9为特异性检测METΔ14变异体,设计了两个外显子连接探针:一个跨越第13和第15外显子(E13/E15)的连接区域,用于检测METΔ14变异体转录本;另一个跨越第14和第15外显子(E14/E15)的连接区域,用于检测野生型MET(WT MET)转录本(图6A)。随后在两种经FFPE处理的细胞系中对这两种探针进行测试:H596细胞表达METΔ14变异体,A549细胞表达野生型MET基因。两种探针均显示出相互排斥的表达模式,其中E13/E15探针仅在H596细胞中检测到信号,而E14/E15探针仅在A549细胞中检测到信号(图6B 和 6C最后,dapB 探针未显示任何信号,表明无背景信号(图6B 和 6C总体而言,该数据表明对 MET 变体 METΔ14 的特异性检测 原位 利用自动化的 BaseScope 检测方法。
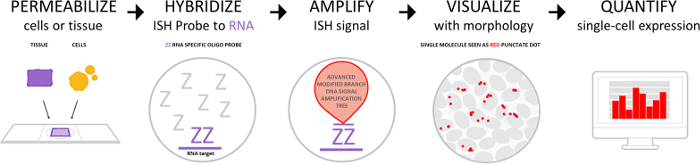
图 1:检测流程。 该检测流程包括四个主要步骤:预处理以通透细胞或组织、探针与靶 RNA 杂交、信号扩增,以及通过明场或荧光显微镜观察进行信号检测。可使用数字图像分析平台对单个信号点进行定量。 请点击此处查看该图的放大版本。
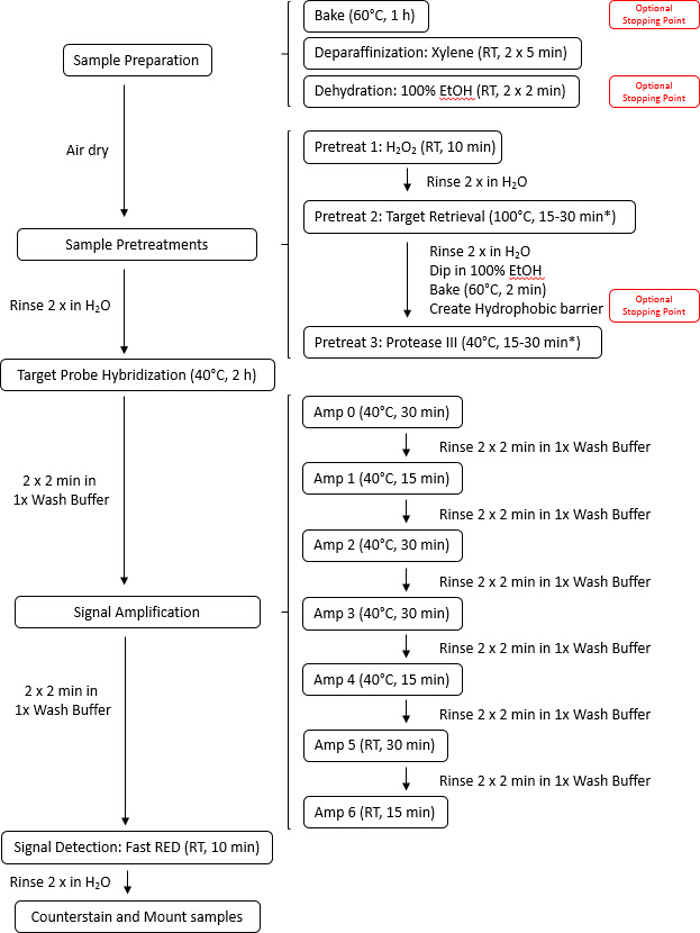
图 2:手动检测实验流程示意图。 整个检测可在 9 小时内完成。预处理时间可能因组织类型而异,因此建议查阅用户手册中的附录 A,以获取有关孵育时间的组织预处理建议。 请点击此处查看此图的放大版本。
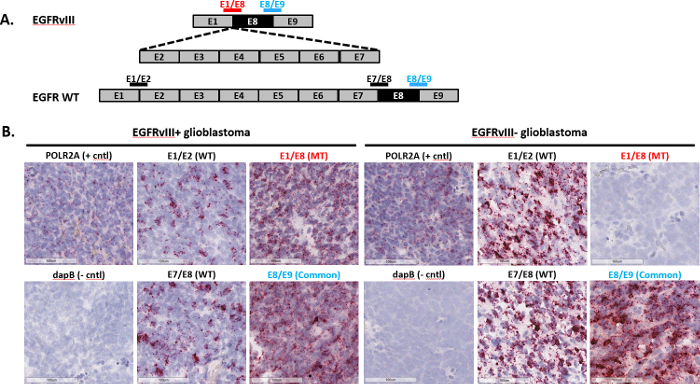
图 3:外显子连接检测的代表性图像。 (A)图中显示了 EGFR WT 与 EGFRvIII 转录本的外显子结构,以及跨越连接区域以检测 EGFR WT 或 EGFRvIII 的双Z型外显子连接探针的示意图。 (B)使用(A)中所列探针,以及阳性对照探针 POLR2A 和阴性对照探针 dapB,对两个福尔马林固定石蜡包埋(FFPE)的胶质母细胞瘤样本进行了外显子连接检测实验。 请点击此处查看该图的放大版本。
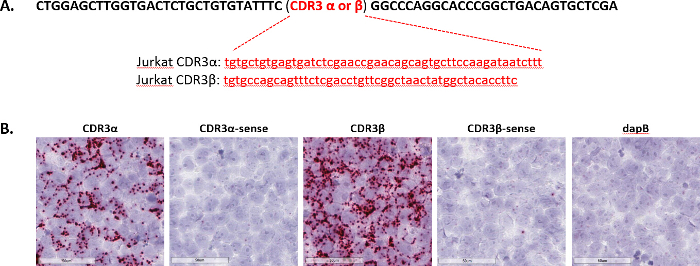
图 4:短靶标序列检测的代表性图像。(A)图中显示Jurkat细胞中的CDR3序列。黑色序列为侧翼共有序列,红色序列为CDR3α或CDR3β特有序列。针对这些序列设计了单个双Z型短靶标序列探针。(B)在制备为福尔马林固定石蜡包埋(FFPE)细胞团块的Jurkat细胞上,使用靶向(A)中序列的反义或正义探针进行短靶标检测,以dapB作为阴性对照。请点击此处查看该图的放大版本。
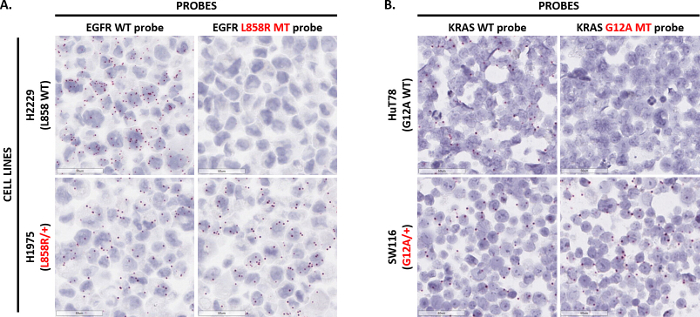
图5:点突变检测的代表性图像。(A)使用靶向EGFR L858野生型序列或EGFR L858R突变序列的单重双Z探针,在H2229细胞(EGFR L858纯合子)和H1975细胞(EGFR L858R突变杂合子)上进行检测,细胞样本以福尔马林固定石蜡包埋(FFPE)细胞团块形式制备。(B)使用靶向KRAS G12野生型序列或KRAS G12A突变序列的单重双Z探针,在HuT78细胞(KRAS G12A纯合子)和SW116细胞(KRAS G12A突变杂合子)上进行点突变检测,细胞样本同样以FFPE细胞团块形式制备。请点击此处查看该图的放大版本。
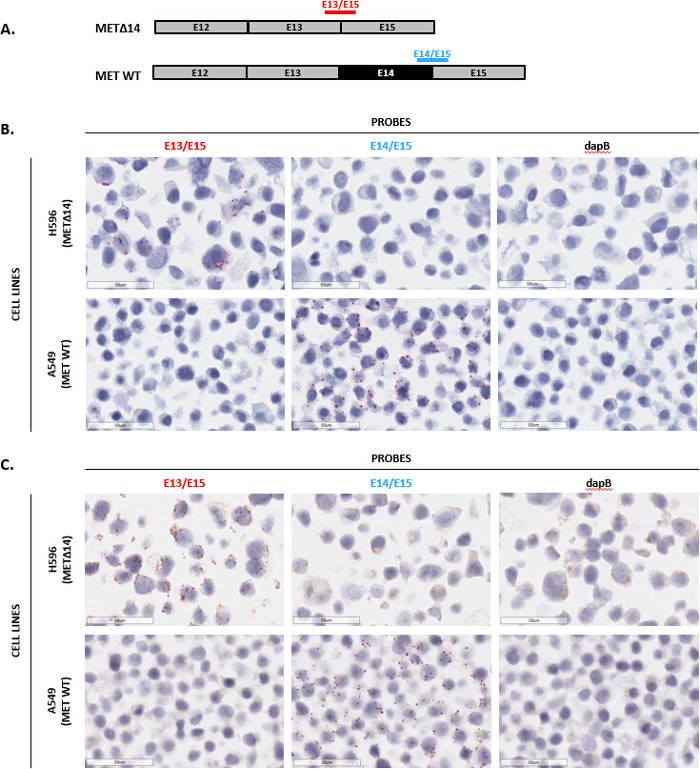
图6:外显子连接检测法的自动化染色代表性图像。(A)图示为MET WT和METΔ14转录本的外显子结构,以及示意图展示跨越连接位点的单个双Z外显子连接探针,用于检测MET WT或METΔ14。(B)和(C)使用(A)中列出的探针以及阴性对照探针dapB,对H596细胞(表达METΔ14)和A549细胞(表达MET WT)进行自动化外显子连接检测,细胞样本以福尔马林固定石蜡包埋(FFPE)细胞团块形式制备。请点击此处查看该图的放大版本。
| 外显子连接 | 短序列 | 点突变 |
| 剪接变体/异构体 | 长度在 50 至 300 nt 之间的序列 | 点突变 |
| 环状 RNA (circRNA) | 高度同源的序列 | 短片段插入缺失(短 indel) |
| 基因融合 | TCR 克隆的 CDR3 序列 | 基因编辑 |
| 基因敲除 (KO) | pre-miRNA | |
| 小核仁 RNA (snoRNA) | ||
| 基因编辑 |
表1:的应用 原位 检测 该检测方法的应用主要包括3个类别:外显子连接、短目标序列和点突变。各列中列出了每个类别的一些具体应用示例。
讨论
本报告详细讨论了一种新型的原位杂交(ISH)检测方案及其应用。该检测方法能够在组织环境中直接可视化外显子连接区、短靶序列和高度同源序列以及点突变。该检测基于RNAscope技术5,因此具备单分子检测能力。然而,由于采用了先进的信号放大系统,即使探针仅包含一对双Z结构(double-Z pair),或靶标模板长度仅为50个核苷酸时,仍可检测到信号。由于探针长度可短至单个双Z结构,因此能够实现对外显子连接区、短靶序列和高度同源序列以及点突变的检测(表1)。
为确保实验成功,有若干技术建议需遵循。首先,组织应在新鲜的10%中性缓冲福尔马林(NBF)中于室温固定16–32小时10。固定不足(<16小时)或过度固定(>32小时)均会影响实验效果,可能需要额外优化。其次,为确保探针杂交和信号扩增所需的温度与湿度处于最佳状态,应在步骤2.3至5(蛋白酶预处理、探针杂交、信号扩增和信号检测)中使用切片处理系统和杂交炉。第三,在整个实验流程的每一步之前,应正确倾去多余的残留缓冲液(但不可倾倒至组织切片干燥)。若切片干燥,将产生显著的非特异性信号。第四,根据组织类型的不同,可能需要进行预处理条件的优化。使用错误的蛋白酶或处理时间不适宜,可能导致消化不足或过度消化,从而对信号产生不利影响。最后,务必始终与待测探针同时运行阳性和阴性对照。阴性对照探针可确保无背景信号,阳性对照探针可确认实验操作正确,并表明样本中的RNA质量适合用于解读待测探针的结果。若阳性对照探针未出现信号,则样本中的RNA质量可能不理想,待测探针也可能无法检测到信号。
除了手动检测外,还展示了在自动染色仪上进行该检测的能力(图6)。这种自动化的原位杂交检测具有高信噪比,适用于与表1中所示相同的各项应用;然而,自动化检测的优势包括检测条件的标准化、减少操作者之间的差异和操作时间,以及能够以可靠的方式对组织样本进行高通量筛选。
尽管免疫组织化学(IHC)和定量逆转录PCR(qRT-PCR)可用于检测剪接变异体(特别是EGFRvIII),但在福尔马林固定石蜡包埋(FFPE)的临床样本中,这些技术可能缺乏必要的特异性,且分别无法提供剪接变异体表达的空间分辨信息11,12。本方案中所述检测方法的一个关键优势在于,能够在保持组织形态学背景的同时,实现对剪接位点的高度敏感和特异性可视化。本文展示了该方法精确靶向多种剪接变异体(包括EGFRvIII和METΔ14)独特外显子连接区域的能力(图3和图6)。此外,该方法已被证实可用于检测前列腺癌中的剪接变异体AR-V7、脑组织中ErbB4的多种异构体,以及验证环状RNA Cdr1as在小鼠脑中的基因敲除效果3,13,14。
通过该原位杂交(ISH)检测法可实现对短靶序列的检测,能够可视化长度短至50个核苷酸的RNA序列,这一点已通过检测源自Jurkat细胞的CDR3序列得到验证(图3)。该检测方法还可识别与其他家族成员或物种高度同源的基因序列,如 Revêchon 所示 等,他们使用短靶标检测法来检测在小鼠皮下白色脂肪组织中表达的人类早衰蛋白15此外,可检测小核仁RNA(snoRNA)、CRISPR介导的基因编辑以及前体微小RNA 原位 使用短靶标检测法。最近,Fu 等 将该 ISH 检测与 IHC 相结合,以鉴定视网膜中表达 pre-miRNA mir125b 的确切细胞16.
肿瘤突变谱分析对于研究肿瘤进展及开发靶向治疗策略至关重要。尽管高通量测序技术可用于突变谱分析,但该技术尚无法全面解决肿瘤内异质性问题,也无法将基因改变与细胞形态学特征关联起来17,18。利用本原位杂交(ISH)检测方法可实现对点突变的检测,从而在单碱基分辨率下区分RNA靶序列,这一点已通过在细胞系中检测EGFR L858R和KRAS G12A单核苷酸变异得到验证(图5)。此外,Baker et al. 采用点突变检测方法,针对结直肠癌中BRAF、KRAS和PIK3CA癌基因的多个突变位点进行了研究18。他们成功识别并进行了肿瘤细胞中罕见突变亚克隆的空间定位,最终揭示了这些亚克隆如何促成肿瘤内异质性。
总之,已开发出一种专门的RNA原位杂交检测方法。该方法能够检测剪接变异体、短序列以及突变。 原位它具有高灵敏度、高特异性、可定量,并且既可通过手工方法操作,也可适用于自动染色仪。
披露
所有作者均受雇于 Advanced Cell Diagnostics, Inc. 公司。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| HybEZ 烤箱(110 或 220 VAC)或 HybEZ II 烤箱(110 或 220 V) | ACD | 310010 或 310013(HybEZ)™),321710 或 321720(HybEZ™ II) | |
| HybEZ 湿度控制托盘(带盖) | ACD | 310012 | |
| ACD EZ-Batch 载玻片架(20 片容量),1 个架子,310017 | ACD | 310017 | |
| HybEZ 加湿纸 | ACD | 310015 | |
| ImmEdge 疏水屏障笔(必需) | Vector Laboratories | H-4000 | |
| SuperFrost Plus 载玻片(必需) | Fisher Scientific | 12-550-15 | |
| 10% 中性缓冲福尔马林(NBF) | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 石蜡 | MLS | / | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| 切片机 | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 鳃’苏木精 I | American Master Tech Scientific/MLS | HXGHE1LT | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 二甲苯 | Fisher Scientific/MLS | X3P-1GAL | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| Tissue-Tek 垂直式 24 片载玻片架 | 美国 Master Tech 科学公司/MLS | LWSRA24 | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| Tissue-Tek 染色皿 | 美国 Master Tech 科学公司/医学实验室科学家 | LWT4457EA | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| Tissue-Tek 透明剂培养皿,耐二甲苯 | 美国 Master Tech 科学公司/MLS | LWT4456EA | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 100% 乙醇(EtOH) | 美国 Master Tech 科学公司/MLS | ALREACS | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| VectaMount 永久封片剂(必需) | Vector Labs | H-5000 | |
| 盖玻片,24 mm × 50 mm | Fisher Scientific/MLS | 12-545-F | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 氢氧化铵,28–30% | Sigma-Aldrich/MLS | 320145-500mL | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| 大容量试剂瓶(Carboy)>3L | MLS | / | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| Oster 蒸汽清洁机型号 5712、Black and Decker 蒸汽清洁机 HS3000,或 Braun Multiquick FS 20 蒸汽清洁机 | / | / | |
| 数字温度计 | MLS | / | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| 水浴锅或培养箱,能够将温度维持在 40 ±– 1 °C | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 移液器和吸头,1–1,000 μL | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 蒸馏水 | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 试管(各种规格) | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 通风橱 | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 量筒 | MLS | / | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| Parafilm | MLS | / | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| 纸巾或吸水纸 | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 微型离心机 | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 显微镜及附件 | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 可维持温度在 60 ± 的干燥烘箱– 1 °C | MLS | / | MLS 北美主要实验室供应商。其他地区请与当地实验室供应商核对货号。 |
| 甲醛 | MLS | / | MLS 北美主要实验室供应商。其他地区请咨询当地实验室供应商并核对货号。 |
| Histogel | Fisher Scientific/MLS | 22-110-678 | |
| BaseScope 试剂盒 - 红色 | Advanced Cell Diagnostics | 322900 | |
| BaseScope Hs-EGFR-E1E2 | Advanced Cell Diagnostics | 701701 | |
| BaseScope Hs-EGFR-E1E8 | Advanced Cell Diagnostics | 701711 | |
| BaseScope Hs-EGFR-E7E8 | Advanced Cell Diagnostics | 701721 | |
| BaseScope Hs-EGFR-E8E9 | Advanced Cell Diagnostics | 701731 | |
| BaseScope Hs-MET-E14E15 | Advanced Cell Diagnostics | 701811 | |
| BaseScope Hs-MET-E13E15 | Advanced Cell Diagnostics | 701801 | |
| BaseScope Hs-KRAS-G12A | Advanced Cell Diagnostics | 705491 | |
| BaseScope Hs-KRAS-G12-nt35WT | Advanced Cell Diagnostics | 705531 | |
| BaseScope Hs-EGFR-L858R | Advanced Cell Diagnostics | 705451 | |
| BaseScope Hs-EGFR-L858WT | Advanced Cell Diagnostics | 705461 | |
| BaseScope对照探针试剂盒 人类 | Advanced Cell Diagnostics | 322975 |
参考文献
- Bolha, L., Ravnik-Glavač, M., Glavač, D. Circular RNAs: Biogenesis, Function, and a Role as Possible Cancer Biomarkers. International Journal of Genomics. 2017, 6218353(2017).
- Yamada, A., Yu, P., Lin, W., Okugawa, Y., Boland, C. R., Goel, A. A RNA-Sequencing approach for the identification of novel long non-coding RNA biomarkers in colorectal cancer. Scientific Reports. 8 (1), 575(2018).
- Erben, L., He, M. X., Laeremans, A., Park, E., Buonanno, A. A Novel Ultrasensitive In Situ Hybridization Approach to Detect Short Sequences and Splice Variants with Cellular Resolution. Molecular Neurobiology. , Epub ahead of print (2017).
- Mahmood, R., Mason, I. In-situ hybridization of radioactive riboprobes to RNA in tissue sections. Methods in Molecular Biology. 461, 675-686 (2008).
- Wang, F., et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. Journal of Molecular Diagnostics. 14 (1), 22-29 (2012).
- Paraffin processing of tissue. Protocols Online. , Available from: https://www.protocolsonline.com/histology/sample-preparation/paraffin-processing-of-tissue/ (2016).
- An, Z., Aksoy, O., Zheng, T., Fan, Q. W., Weiss, W. A. Epidermal growth factor receptor and EGFRvIII in glioblastoma: signaling pathways and targeted therapies. Oncogene. , Epub ahead of print (2018).
- Frampton, G. M., et al. Activation of MET via diverse exon 14 splicing alterations occurs in multiple tumor types and confers clinical sensitivity to MET inhibitors. Cancer Discovery. 5 (8), 850-859 (2015).
- Awad, M. M., et al. MET Exon 14 Mutations in Non-Small-Cell Lung Cancer Are Associated With Advanced Age and Stage-Dependent MET Genomic Amplification and c-Met Overexpression. Journal of Clinical Oncology. 34 (7), 721-730 (2016).
- Hammond, M. E., et al. American Society of Clinical Oncology/College of American Pathologists guideline recommendations for immunohistochemical testing of estrogen and progesterone receptors in breast cancer. Archives of Pathology and Laboratory Medicine. 134 (6), 907-922 (2010).
- Gan, H. K., Cvrljevic, A. N., Johns, T. G. The epidermal growth factor receptor variant III (EGFRvIII): where wild things are altered. Federation of European Biochemical Societies Journal. 280 (21), 5350-5370 (2013).
- Wheeler, S. E., Egloff, A. M., Wang, L., James, C. D., Hammerman, P. S., Grandis, J. R. Challenges in EGFRvIII detection in head and neck squamous cell carcinoma. Public Library of Science One. 10 (2), e0117781(2015).
- Zhu, Y., et al. Novel Junction-specific and Quantifiable In Situ Detection of AR-V7 and its Clinical Correlates in Metastatic Castration-resistant Prostate Cancer. European Urology. , Epub ahead of print (2017).
- Piwecka, M., et al. Loss of a mammalian circular RNA locus causes miRNA deregulation and affects brain function. Science. , Epub ahead of print (2017).
- Revêchon, G., et al. Rare progerin-expressing preadipocytes and adipocytes contribute to tissue depletion over time. Scientific Reports. 7 (1), 4405(2017).
- Fu, Y., et al. Functional ectopic neuritogenesis by retinal rod bipolar cells is regulated by miR-125b-5p during retinal remodeling in RCS rats. Scientific Reports. 7 (1), 1011(2017).
- Yates, L. R., et al. Subclonal diversification of primary breast cancer revealed by multiregion sequencing. Nature Medicine. 21 (7), 751-759 (2015).
- Baker, A. M., et al. Robust RNA-based in situ mutation detection delineates colorectal cancer subclonal evolution. Nature Communications. 8 (1), 1998(2017).
重印与许可
