我们提出了一种对束缚状态下的蚂蚁进行经典条件反射的实验方案,该方法使研究人员能够在无法通过自由活动个体实现的分析水平上研究视觉学习和记忆形成。
本文内容
勘误通知
Important: There has been an erratum issued for this article. View Erratum Notice
摘要
摘要
多种昆虫已成为研究学习与记忆形成的模式系统。尽管许多研究集中于自由活动的动物,但采用束缚式昆虫进行经典条件反射范式的实验,对于探究个体所学习的确切线索以及学习与记忆形成的神经机制具有重要意义。本文介绍了一种通过经典条件反射诱导木蚁产生视觉关联学习的实验方案。在此范式中,将蚂蚁固定后呈现视觉刺激(蓝色硬纸板),即条件刺激(CS),并将其与具有吸引力的糖奖励——非条件刺激(US)配对。蚂蚁会表现出上颚-下唇伸展反射(MaLER),即非条件反应(UR),该反应可作为学习效果的检测指标。训练共包括10次试验,每次试验之间间隔5分钟(ITI)。训练结束后10分钟或1小时,还可对蚂蚁的记忆保持能力进行测试。该方案有望使研究人员以精确且受控的方式,分析木蚁视觉记忆形成的具体过程及其学习与记忆形成的神经基础。
引言
昆虫已被广泛用作研究学习与记忆形成的模型1。其中一项尤为成功的研究方向是利用固定动物进行经典条件反射实验,这种方法能够精确控制所学习的刺激线索,并使研究人员得以探究学习与记忆背后的神经机制。大多数研究集中于对西方蜜蜂(Apis mellifera)工蜂进行趋利性经典条件反射训练。在该范式中,工蜂被训练将条件刺激(CS)与能够引发非条件反应(UR)的非条件刺激(US)关联起来。这一范式最初由Takeda2以及Bitterman et al.3建立,其中UR为喙伸展反射(Proboscis Extension Reflex, PER),US为糖,CS为气味。蜜蜂能够学会CS与US之间的关联,并形成长期记忆。
利用唾液反射作为非条件反应的原始范式已被用于揭示蜜蜂嗅觉学习背后的神经通路4已通过多种方式对其进行修改,以测试不同感觉刺激(包括视觉刺激)的学习能力。5,6,7,以利用PER抑制来整合厌恶学习8 或刺痛延伸反射(Sting Extension Reflex,SER)9 作为未条件化刺激(UR),并用于测试其他物种(如熊蜂)的学习能力10 和果蝇11尽管通过经典条件反射已对多种模态的记忆形成进行了研究,但即使在觅食过程中表现出较强视觉学习能力的物种(如蜜蜂)中,采用这种方法仍难以观察视觉学习过程。
近期研究已将类似方法应用于不具吻管的昆虫,例如蝗虫和蚂蚁。蝗虫表现出触角开张反应(Palp Opening Response, POR)12,而蚂蚁则表现出下颚唇延伸反射(Maxilla-Labium Extension Reflex, MaLER)13。这些研究已揭示出与两种不同生态型沙漠蝗虫——群居型和散居型——的阶段性取食策略相匹配的阶段性学习能力,进一步支持了记忆形成需与生态需求相适应的观点14。此外,关于蚂蚁嗅觉学习的研究表明,蚂蚁与蜜蜂在记忆形成和保持方面具有相似性,训练后72小时的长期记忆保持依赖于蛋白质合成15。
这些对原始范式的改进使得学习和记忆形成的机制能够通过多种方法在多个模式物种中进行研究。这对于识别昆虫中记忆形成所共有的机制至关重要,同时也可用于揭示不同物种在学习与记忆生态特性方面的差异。本文所述实验方案的主要目标是提供一种利用视觉条件刺激对广泛研究的蚂蚁物种Formica rufa进行经典条件反射实验的方法。该方案源自我们对林蚁视觉学习的研究16,也是对视觉经典条件反射范式的进一步改进。
方案
1. 维持Formica rufa 蚁群
注意:本研究所用的木蚁(Formica rufa,L.)群体采自英国苏塞克斯郡阿什当森林(北纬 51 4.680,东经 0 1.800)。在英国境内,F. rufa 群体的采集时间应选在每年 7 月至 8 月之间。为确保群体能够长期维持并保持活跃(最长可达一年),必须移走相当比例的蚁巢,包括数百只工蚁及幼体。在移除蚁巢前,应事先获得相关主管部门的许可。
- 将木蚁群落饲养在一个较大的箱体(约 135 cm × 70 cm × 35 cm)中,箱壁涂覆聚四氟乙烯(PTFE)树脂(例如,Fluon),以防止蚂蚁逃逸,饲养环境保持在 21°C,光照周期为 12 小时光照:12 小时黑暗。
- 使用饮水器为蚂蚁提供蔗糖溶液(333 g/L)和水。为确保蚂蚁饮食富含蛋白质,每周喂食 2 次冷冻蟋蟀。每天向蚁巢喷水以维持湿度。
- 为改善群落的卫生状况,必要时可添加松脂;松脂可减少木蚁群落中的寄生现象17。在蚁巢内放置一个小容器(直径约 15 cm,深约 5 cm),供蚂蚁将死亡的个体搬运至其中。
- 采集蚂蚁后,需在上述条件下至少饲养 2 周,方可开始实验。实验前 2 天移除蚁巢中的蔗糖,使蚂蚁处于饥饿状态,以提高其行为动机。
2. 选择与利用蚂蚁
注意:固定蚂蚁需要使用定制的固定装置。该装置可用油灰和一块带有水平固定切口的纸板制成。纸板的上表面应部分涂蜡,以便在固定过程中使用昆虫针进行固定。在本实验方案的每一步操作(包括饲养、运输和实验)中都必须小心操作,尤其是在固定蚂蚁时,应避免在训练前使蚂蚁承受过高的应激。
- 为选择具有进食动机的蚂蚁,将一滴蔗糖溶液(200 g/L)滴在载玻片上,放入一个小型盒子(约14 cm × 8 cm × 5 cm)中,盒壁涂有聚四氟乙烯(PTF)树脂以防蚂蚁逃逸。不要选择携带木屑或死蚁离开巢穴的蚂蚁;应选择正在巢壁上爬行的蚂蚁,因为这些个体更可能是试图外出觅食的觅食蚁。
- 将每只蚂蚁放入盒中,观察其是否取食蔗糖液滴。若其开始取食,应立即转移至另一个空盒中,以避免其饱食。
- 将每只蚂蚁转移至独立的离心管中,将离心管置于冷冻机中冷冻1–2分钟,或置于碎冰中最多5分钟,以使蚂蚁 immobilize(固定不动)。
- 将固定不动的蚂蚁通过硬纸板上的切口插入固定装置中,插入位置为头部与胸部之间的关节处。使用插入纸板顶部蜡层中的昆虫针,确保触角保持在头部两侧。
- 使用自制加热装置将昆虫针的尖端蘸取少量蜡后固定在蚂蚁头部,使昆虫针与硬纸板平行。操作过程中,切勿让加热丝接触触角,以免造成损伤。
- 待蜡完全干燥后,移除固定触角的昆虫针,并小心将蚂蚁从固定装置中取出。
- 将夹持蚂蚁的昆虫针插入橡皮泥圆柱体中固定,并在其下方安装自制的塑料支撑架,确保蚂蚁保持典型的直立姿态,且除头部外整个身体可自由活动。
- 在训练前,将束缚状态的蚂蚁置于黑暗环境中至少2小时。
3. 训练与测试
- 实验设置、条件刺激与非条件刺激
- 在透明亚克力箱(50 × 50 × 50 cm)中进行实验,箱体前部敞开以便实验者操作。使用摄像机记录蚂蚁的行为。
- 将配备微距镜头的摄像机置于蚂蚁正上方,通过箱体顶部的孔洞进行拍摄。
- 为减少额外的视觉干扰,实验过程中保持房间黑暗,仅使用光源直接照射亚克力箱顶部(两个26 W的灯)。
- 使用一个明亮的蓝色(光谱见图S1)硬纸板矩形(60 × 45 mm)作为视觉线索(条件刺激,CS),将其中心固定在一根针上,并连接至注射器(2 mL),通过该注射器手动向蚂蚁递送非条件刺激(US,200 g/L蔗糖溶液)(图1A 和 1B)。
注意:蔗糖溶液可使用任何白色糖配制,前提是其溶于水后无颜色和气味。 - 并行进行两种类型的训练:配对训练与非配对训练(见下文说明),顺序随机化。
注意:本研究中未关注视觉线索的具体性质,仅考虑线索与奖励之间的关联。颜色和形状未被系统测试,因此具有其他特征的条件刺激也可能产生类似结果。然而,选择蓝色是因为同属蚂蚁已被证明对包含蓝光波长的光敏感18。
- 在透明亚克力箱(50 × 50 × 50 cm)中进行实验,箱体前部敞开以便实验者操作。使用摄像机记录蚂蚁的行为。
- 配对训练
注意:在配对训练中,每次试验均同时呈现条件刺激(CS)与非条件刺激(US),二者相互关联(图1C)。- 在呈现条件刺激前10秒开始记录蚂蚁行为,以确保蚂蚁在刺激出现前未自发执行MaLER行为。若在此期间蚂蚁出现该行为,将试验推迟数秒;若某只蚂蚁持续表现出该行为,则将其从分析中剔除。
- 将连接有CS的注射器移至蚂蚁前方约10秒,针尖保持在蚂蚁面部前方,上下左右偏移不超过5 mm。在此期间,尽量使针尖靠近蚂蚁头部,但不得接触触角(图1B)。
注意:呈现CS时包含移动,因为已有研究表明运动在蜜蜂的视觉联想学习中起重要作用6。 - 施加压力,从注射器尖端挤出一滴蔗糖溶液,并将液滴滴至触角和口器附近,使蚂蚁能够感知蔗糖。允许蚂蚁取食约5秒。
注意:本实验未控制每只蚂蚁在每次试验中摄入的蔗糖量。供蚂蚁取食的蔗糖液滴应足够大,以支持其自由取食约5秒。 - 重复此过程10次,每次试验间隔(ITI)为5分钟。
注意:本实验中,所有蚂蚁始终朝向右侧,右眼靠近亚克力箱的开口侧,因此CS始终从蚂蚁右侧接近。尽管这并不影响学习的有效性,但为避免可能的侧化效应,可将一半蚂蚁朝左、另一半朝右进行实验。
- 非配对训练
注意:该训练方式为分别向蚂蚁单独呈现条件刺激(CS)或非条件刺激(US),两种刺激在时间上彼此分离(图1D)。- 在每次试验前10秒开始记录蚂蚁行为。
- 以与配对训练相同的方式呈现CS,但不向蚂蚁递送蔗糖。
- 2.5分钟后,使用未连接CS的注射器直接将US递送至口器(同时接触触角)。
- 以CS试验开始,每种试验类型各重复10次,交替进行,每次试验间隔(ITI)为2.5分钟。
- 测试
注意:测试应仅进行一次,可在最后一次训练后10分钟或1小时进行;若在测试中仅呈现CS而不给予US,可能导致先前形成的联想记忆消退。- 在测试前10秒开始记录蚂蚁行为。
- 向蚂蚁呈现CS约10秒。
- 测试结束后递送蔗糖,以确保蚂蚁仍具有取食动机。
4. 数据收集与分析
- 从上方记录每次试验前10秒以及条件刺激(CS)和非条件刺激(US)呈现期间蚂蚁的行为。确保所有试验和测试过程均被记录,以便后续分析。
- 根据训练和测试期间的记录,对蚂蚁在条件刺激(CS)呈现10秒期间的反应进行评分。
- 根据口器的伸展和运动情况,将蚂蚁在条件刺激(CS)呈现期间的反应分为三种行为类型:取食样完全伸展并运动(FEM)、完全伸展但无运动(FE),以及上颚-下唇或下颚须的部分伸展(PE)图2A - 二维)。分析时,将所有MaLER类型归为单一响应类别图2E).
- 排除在每次试验和测试中未进食的任何蚂蚁。
注意:在分析时,建议采用将个体蚂蚁纳入考虑的统计检验方法,以反映个体内部的变异性。在将蚂蚁在训练期间的反应以二分类方式(1 表示有反应,0 表示无反应)进行分类时,宜采用混合效应逻辑回归分析。16,19在比较每次训练试验或测试中作出反应的蚂蚁比例时,采用 G-检验或费希尔精确检验,具体选择取决于所分析蚂蚁的数量16,20.
结果
在经典条件反射实验中,条件刺激(CS)在训练前不应引发动物的自发反应。在我们开展的实验中,仅有 3% - 4% 的蚂蚁在首次试验中对视觉线索产生MaLER反应。接受配对训练的蚂蚁在后续试验中对条件刺激产生MaLER反应的比例逐渐上升(图 3A;Logistic回归分析,N = 51,自由度(df)= 507,z = 5.949,p < 0.01)。从第三次试验开始,接受配对训练的蚂蚁对条件刺激的反应率趋于稳定,约为50%。相反,未配对训练的蚂蚁在训练过程中MaLER反应未表现出显著增加(图 3B;Logistic回归分析,N = 29,df = 287,z = 0.758,p = 0.45)。在配对训练中,蚂蚁对视觉线索产生MaLER反应的比例显著高于未配对训练(Logistic回归分析,N = 80,df = 796,z = -5.306,p < 0.01),这一差异在除第一次试验外的所有试验中均成立(表 1)。
为检测蚂蚁的短期和中期记忆15,在最后一次训练试验后10分钟或1小时对其进行测试。在两次测试中,接受配对训练的蚂蚁对条件刺激(CS)产生MaLER反应的比例均显著高于接受非配对训练的蚂蚁(图3C 和 3D;表1)。
在训练过程中,个体蚂蚁表现出的MaLER(下颚伸展反应)次数和类型存在显著差异(图4A 和 4B)。仅有14%的成对蚂蚁从第二次或第三次试验开始在每次试验中均有反应,而大多数蚂蚁在有反应和无反应的试验之间交替。在蚂蚁产生反应的训练试验中,其口器伸展和移动的程度也各不相同。因此,我们将MaLER分为三种不同类型:FEM、FE或PE。通常,蚂蚁执行FEM或PE的频率高于FE。然而,仅有少数蚂蚁始终如一地表现出同一种反应类型;在大多数情况下,蚂蚁所表现出的MaLER类型缺乏一致性(图4)。

图1:实验装置与训练方案。(A)用石蜡将蚂蚁固定在连接于黏土圆柱体(橙色)的昆虫针上,并在其下方放置自制支架,以保持其自然姿态。将其置于一个白色亚克力盒内,盒子由两个光源照明,正上方放置摄像头。以连接在注射器上的硬纸板(蓝色方块)作为条件刺激(CS),注射器用于递送非条件刺激(US),即糖奖励。插图显示了蚂蚁在支架中的特写视图。(B)将注射器针尖尽可能靠近蚂蚁头部移动,但不接触其触角,如本示意图所示。通过(C)配对式或(D)非配对式训练对蚂蚁进行训练。本图改编自 Fernandes et al.16。请点击此处查看此图的放大版本。

图 2:木蚁的下颚-下唇伸展反应。 来自视频记录的单帧图像显示了蚂蚁在训练过程中的口器运动。(A) 本图显示无反应。(B) 本图显示下颚-下唇完全伸展(FE),末端为舌。(C) 本图显示部分伸展(PE),仅可见下颚须。(D) 本图显示下颚-下唇结构的部分伸展(PE)。(E) 接受配对训练的蚂蚁(N = 51)表现出伴随运动的完全伸展(FEM;深棕色)、完全伸展(FE;中棕色)或部分伸展(PE;浅棕色)。本图改编自 Fernandes et al.16。 请点击此处查看此图的放大版本。

图 3:木蚁可形成视觉线索与糖奖励配对的联想记忆。(A)在训练过程中,对条件刺激(CS)呈现产生 MaLER 的配对组蚂蚁(N = 51)所占百分比显著上升。(B)在非配对训练过程中,产生 MaLER 的蚂蚁百分比未显著上升(N = 29)。在最后一次训练试验后,对蚂蚁进行测试:(C)10 分钟后(配对组:N = 15;非配对组:N = 15)或(D)1 小时后(配对组:N = 15;非配对组:N = 14)。配对或非配对训练期间及之后对 CS 产生反应的蚂蚁百分比分别以棕色和灰色表示。三种类型的 MaLER 分别以深色(FEM)、中等(FE)和浅色(PE)色调表示。本图经 Fernandes et al.16 修改。 请点击此处查看此图的放大版本。

图 4:蚂蚁在训练期间的个体表现。 这些图示展示了(A)配对蚂蚁和(B)未配对蚂蚁的个体表现。三种类型的 MaLER 分别以深色(FEM)、中等色(FE)和浅色(PE)的棕色或灰色表示。本图经 Fernandes et al.16 修改。 请点击此处查看此图的放大版本。
| 试验 | N | 自由度 | G(校正后) | P |
| 1 | 80 | na | na | >0.1 |
| 2 | 80 | 1 | 3.86 | <0.05 |
| 3 | 80 | 1 | 8.41 | <0.01 |
| 4 | 80 | 1 | 6.63 | <0.01 |
| 5 | 80 | 1 | 8.41 | <0.01 |
| 6 | 80 | 1 | 7.5 | <0.01 |
| 7 | 80 | 1 | 10.69 | <0.01 |
| 8 | 80 | 1 | 11.76 | <0.01 |
| 9 | 80 | 1 | 17.13 | <0.01 |
| 10 | 80 | 1 | 17.13 | <0.01 |
| 10 min | 59 | 1 | 5.5 | <0.05 |
| 1 h | 59 | 1 | 4.42 | <0.05 |
表1:配对训练与非配对训练蚂蚁在各次试验和测试中对CS的MaLER反应比较 蚂蚁数量(N),自由度(df) G独立性检验(G)以及 p显示了 -值。首次试验采用费舍尔精确检验进行分析。本表格经 Fernandes 修改。 等16.
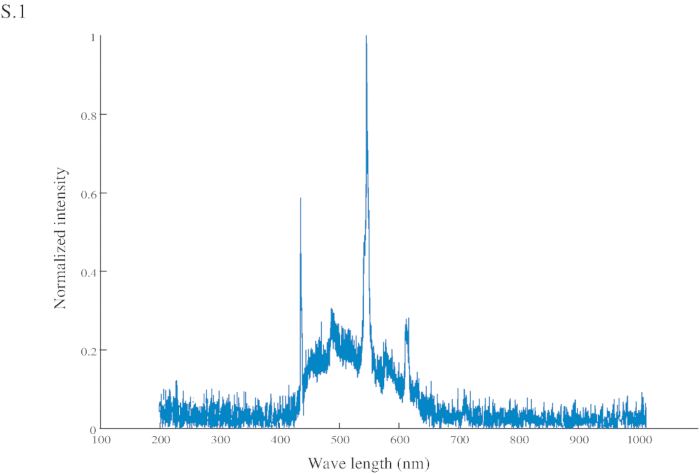
图 S1:条件刺激(CS)的归一化强度。 该条件刺激在 545 nm(绿色光范围)处有一个强度峰值,在 435 nm(蓝色光范围)处有另一个峰值。
讨论
经典条件反射是研究学习与记忆最成熟的范式之一。本文所介绍的方案是对最初为蜜蜂工蜂设计的范式进行的改良2,3,之后该范式被应用于其他多个物种,如果蝇和熊蜂,它们均使用PER作为学习的检测指标10,11,以及蝗虫和蚂蚁,它们分别使用POR和MaLER作为检测指标12,13。利用本方案,可训练束缚状态下的木蚁建立视觉线索与糖奖励之间的关联,并分析其短期(10分钟)和中期(1小时)记忆的保持情况16。
在任何行为学实验中,都必须考虑一些关键步骤,以尽量减少动物反应的变异性。在本实验方案中,采取了多项措施以在训练前和训练过程中最大限度地降低变异性。在实验开始前,需要将蚁群饥饿处理至少两天,并根据蚂蚁在饲养盒中是否愿意取食糖滴来筛选个体。通过这种方式筛选蚂蚁,旨在提高选择到具有取食动机的蚂蚁进行训练的成功率。谨慎操作同样至关重要,因为过度的操作应激会干扰学习过程21。为此,在将蚂蚁固定时应使用低温麻醉使其保持静止,因为在固定过程中任何移动(如试图逃脱)都可能引发应激反应。此外,应尽量减少蚂蚁与石蜡的接触,避免触角接触到热的石蜡或金属丝,以防造成损伤。尽管这些观察结果尚未经过正式分析,但在学习过程中,蚂蚁的触角似乎呈现出一种特定的运动模式。
在实验过程中,谨慎地提供糖溶液对于保持蚂蚁的学习积极性也非常重要。尽管这一现象尚未经过正式分析,但突然提供食物似乎会给蚂蚁带来额外的压力,进而导致其缺乏学习动力。此外,训练过程中提供的蔗糖浓度应适当降低(200 g/L),以避免蚂蚁在训练和测试结束前过早饱足。这使得MaLER成为一个理想的非条件反应指标,因为它不仅对视觉刺激的自发反应率较低,而且在多次试验中不会出现反应饱和现象。最后,与大多数经典条件反射研究2,3,5,6,7,8,9,10,11,12,13不同,我们每次实验仅训练一只蚂蚁直至完成全部流程,在各次试验之间不更换蚂蚁。将多只蚂蚁同时进行训练似乎会导致结果变异性增加,这可能是由于环境场景完全改变所引起的应激水平升高和/或视觉信息冲突所致。为了缩短每次实验的总时长,我们采用了5分钟的试验间隔(ITI),而不是大多数经典条件反射研究中常用的10分钟ITI16。尽管上述各项措施有助于确保蚂蚁在训练期间保持摄食和学习的积极性,但仍无法完全避免个体间的变异性。我们建议选用社会行为、趋食行为和运动行为均表现正常的蚂蚁,并在某只蚂蚁于任一训练试次或测试中未能摄食时,立即将其从数据分析中剔除。
本研究未检验条件刺激(CS)的性质。尽管我们使用了蓝色视觉刺激,因为同属蚂蚁对这些波长敏感18,但其他颜色也可能与奖励建立关联而被学习。需要进一步实验才能全面表征在此实验装置中被看见和学习的颜色。视觉线索的不同形状和大小也同样如此。我们尚未检验蚂蚁的空间分辨能力是否足以在本实验所采用的刺激呈现距离下区分所提供的视觉刺激。尽管木蚁的复眼在小眼大小和数量方面已有描述22,但据我们所知,其空间分辨率尚未被充分阐明。然而,这一参数已在Melophorus magoti中得到计算23。对木蚁或其他受试昆虫眼睛进行类似的表征,将有助于明确探究动物所观察和学习的视觉线索特征。此外,我们在向蚂蚁呈现视觉刺激时加入了运动成分,因为已有研究表明运动在蜜蜂经典条件反射的联想学习中起作用6。但本研究同样未对此进行检验,且由于飞行昆虫与行走昆虫在运动方式上的差异,蜜蜂与蚂蚁在视觉经典条件反射方面可能存在不同表现。
最后需要说明的是,由于蚂蚁在训练后被束缚较长时间无法存活,我们未能检测其长期记忆保持能力。然而,在后续的实验中,我们通过将蚂蚁置于黑暗潮湿的环境中(在其上方放置一个盒子)过夜,成功维持了其存活状态,并保持其进食和学习的动机。因此,该范式除可用于研究木蚁的短期和中期记忆外,还有望用于揭示其长期记忆保持机制。
通过改进经典的条件反射范式,这一简单方法可用于研究被束缚的木蚁对视觉记忆的获得与保持。以往此类研究多采用自由活动的动物范式。该范式有望用于分析昆虫导航经典模型中视觉学习的神经基础。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢 Tom Collett 和 Cornelia Buehlmann 分享有关木蚁群落采集与饲养的信息。作者还感谢 Justine Crevel 对本文早期版本提出的修改意见,以及 Nora Nevala 对视觉刺激光谱强度的测量。本研究得到了英国生物技术和生物科学研究生理事会(BBSRC)对 JEN 的资助(项目编号 BB/R005036/1)。与本论文相关的所有数据均已发表于萨塞克斯大学研究数据存储库在线数据库中(10.25377/sussex.5794386)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 氟龙涂层(Fluon) | Blades Biological Ltd, Edenbridge, 英国 | ACS 109; ACS 112; ACS 114 | 用于防止昆虫逃逸 |
| 蟋蟀 | Blades Biological Ltd, Edenbridge, 英国 | LZJ 217 | 作为蚁群的蛋白质来源供给 |
| 天然松香/树脂 | Minerals-water Ltd, Rainham, 英国 | 500g | 供给蚁群用于卫生维护 |
| Austerlitz 昆虫针 | Fine Science Tools GmbH, Heidelberg, 德国 | 26000-40 | 用于固定蚂蚁 |
| 高速相机 | Edmund Optics Inc., Barrington, 美国 | eo-13122M | 用于训练和测试期间的MaLER记录 |
| 微距镜头 | Cannon, Surrey, 英国 | EF 100 mm f/2.8 L Macro IS USM | 用于训练和测试期间的MaLER记录 |
| 软件 | IDS Imaging Development Systems GmbH | uEye64 | 用于训练和测试期间的MaLER记录 |
| 蓝色纸板 | 萨塞克斯大学 Union Store 的 john smith's | JACK-PJM41358 | 构成条件刺激 |
| 注射器 | Fisher Scientific LTD, Loughborough, 英国 | BD Plastipak 300185case; 产品编号.12369289 | 用于无条件刺激和条件刺激(附着)的呈现 |
| 针头(0.5 x 16 mm) | Fisher Scientific LTD, Loughborough, 英国 | BD Microlance 300600; 产品编号:10442204 | 用于无条件刺激和条件刺激(附着)的呈现 |
参考文献
- Chittka, L., Niven, J. Are bigger brains better? Current Biology. 19 (21), R995-R1008 (2009).
- Takeda, K. Classical conditioned response in the honey bee. Journal of Insect Physiology. 6, 168-179 (1961).
- Bitterman, M. E., Menzel, R., Fietz, A., Schäfer, S. Classical conditioning of proboscis extension in honeybees (Apis mellifera). Journal of Comparative Psychology. 97 (2), 107-119 (1983).
- Menzel, R., Muller, U. Learning and memory in honeybees: from behavior to neural substrates. Annual Review of Neuroscience. 19 (1), 379-404 (1996).
- Hori, S., Takeuchi, H., Kubo, T. Associative learning and discrimination of motion cues in the harnessed honeybee Apis mellifera L. Journal of Comparative Physiology A. 193 (8), 825-833 (2007).
- Balamurali, G. S., Somanathan, H., De Ibarra, N. H. Motion cues improve the performance of harnessed bees in a colour learning task. Journal of Comparative Physiology A. 201 (5), 505-511 (2015).
- Mujagić, S., Würth, S. M., Hellbach, S., Dürr, V. Tactile conditioning and movement analysis of antennal sampling strategies in honey bees (Apis mellifera L). Journal of Visualized Experiments. (70), e50179(2012).
- Wright, G., et al. Parallel reinforcement pathways for conditioned food aversions in the honeybee. Current Biology. 20 (24), 2234-2240 (2010).
- Vergoz, V., Roussel, E., Sandoz, J. C., Giurfa, M. Aversive learning in honeybees revealed by the olfactory conditioning of the sting extension reflex. PloS One. 2 (3), e288(2007).
- Laloi, D., et al. Olfactory conditioning of the proboscis extension in bumble bees. Entomologia Experimentalis et Applicata. 90 (2), 123-129 (1999).
- Chabaud, M. A., Devaud, J. M., Pham-Delègue, M. H., Preat, T., Kaiser, L. Olfactory conditioning of proboscis activity in Drosophila melanogaster. Journal of Comparative Physiology A. 192 (12), 1335-1348 (2006).
- Simões, P., Ott, S. R., Niven, J. E. Associative olfactory learning in the desert locust, Schistocerca gregaria. Journal of Experimental Biology. 214 (15), 2495-2503 (2011).
- Guerrieri, F. J., d'Ettorre, P. Associative learning in ants: conditioning of the maxilla-labium extension response in Camponotus aethiops. Journal of Insect Physiology. 56 (1), 88-92 (2010).
- Simões, P. M., Niven, J. E., Ott, S. R. Phenotypic transformation affects associative learning in the desert locust. Current Biology. 23 (23), 2407-2412 (2013).
- Guerrieri, F. J., d'Ettorre, P., Devaud, J. M., Giurfa, M. Long-term olfactory memories are stabilised via protein synthesis in Camponotus fellah ants. Journal of Experimental Biology. 214 (19), 3300-3304 (2011).
- Fernandes, A. S. D., Buckley, C. L., Niven, J. E. Visual associative learning in wood ants. Journal of Experimental Biology. 221 (3), 173260(2018).
- Christe, P., Oppliger, A., Bancala, F., Castella, G., Chapuisat, M. Evidence for collective medication in ants. Ecology Letters. 6 (1), 19-22 (2003).
- Aksoy, V., Camlitepe, Y. Behavioural analysis of chromatic and achromatic vision in the ant Formica cunicularia (Hymenoptera: Formicidae). Vision research. 67, 28-36 (2012).
- Bates, D. M. lme4: Mixed-Effects Modeling with R. , Springer. New York, NY. (2010).
- Sokal, R. R., Rohlf, F. J. Biometry (3rd edn). , W.H. Freman and Company. New York, NY. (1995).
- Bateson, M., Desire, S., Gartside, S. E., Wright, G. A. Agitated honeybees exhibit pessimistic cognitive biases. Current Biology. 21 (12), 1070-1073 (2011).
- Perl, C. D., Niven, J. E. Differential scaling within an insect compound eye. Biology letters. 12 (3), 20160042(2016).
- Schwarz, S., Narendra, A., Zeil, J. The properties of the visual system in the Australian desert ant Melophorus bagoti. Arthropod Structure & Development. 40 (2), 128-134 (2011).
重印与许可
勘误
Formal Correction: Erratum: Visual Classical Conditioning in Wood Ants
Posted by JoVE Editors on 1/01/1970. Citeable Link.
An erratum was issued for: Visual Classical Conditioning in Wood Ants. The Acknowledgments section was updated, and a supplemental figure was added.
The Acknowledgments sections was updated from:
The authors thank Tom Collett and Cornelia Buehlmann for sharing valuable information regarding collection and maintenance of wood ant colonies. The authors also thank Justine Crevel for commenting on previous versions of this article.
to:
The authors thank Tom Collett and Cornelia Buehlmann for sharing information regarding collection and maintenance of wood ant colonies. The authors also thank Justine Crevel for commenting on previous versions of this article, and Nora Nevala for measuring the spectrum intensity of the visual stimulus. This work was supported by a BBSRC grant to JEN (grant number BB/R005036/1). All the data pertaining to this manuscript are published in the University of Sussex Research Data Repository online database (10.25377/sussex.5794386).
The following supplemental figure was added to the end of the Representative Results section:
Figure S1: Normalized intensity of the conditional stimuli (CS). The CS has a peak intensity at 545 nm (in the green range) and another at 435 nm (in the blue range).
标签
