我们提供一份关于切叶蚁疾病防御行为的可视化指南,包含各个行为片段及其相应的定义,并通过实验性感染情景进行图示说明。我们的主要目标是帮助其他研究人员识别关键的防御行为,并为该领域的未来研究提供一个共同的理解基础。
本文内容
摘要
摘要
切叶蚁复杂的生活方式、高度合作的进化历史及其疾病防御机制已被广泛研究。尽管已有大量研究描述了与疾病防御相关的行为,以及化学物质和抗菌物质的使用,但目前尚缺乏统一的可视化参考。本研究的主要目的是记录切叶蚁在感染前后用于疾病防御的行为短片,包括预防性行为以及直接针对蚁群拮抗物的行为。为此,我们开展了感染实验,使用切叶蚁物种Acromyrmex echinatior的亚群落,以及已知对蚂蚁真菌作物(Leucoagaricus gongylophorus)最具威胁的病原体——专性致病性真菌Escovopsis属。我们对感染与未感染的蚁群在感染早期和较晚期阶段进行了拍摄和比较。我们量化了不同处理组中的关键防御行为,并表明工蚁在不同品级之间、以及在威胁的早期与晚期检测阶段,对病原体攻击的行为反应可能存在差异。基于这些录像资料,我们建立了一个行为片段库,并附有主要个体防御行为的定义。我们预期该指南可为本领域的其他研究人员提供一个共同的参考框架,以识别和研究这些行为,同时为不同研究之间的比较提供更广阔的空间,从而最终有助于更好地理解这些行为在疾病防御中的作用。
引言
切叶蚁是高度进化的社会性昆虫,形成了地球上最复杂的群体之一。它们是真菌种植蚁(Attini族)的一个衍生分支,包含Acromyrmex和Atta1两个属。它们培育一种名为Leucoagaricus gongylophorus(担子菌门:伞菌目)的真菌作物,并主要依赖该真菌作为食物来源2,3。蚂蚁为这种真菌提供新鲜的叶片材料以促进其生长,而真菌则反过来产生富含营养的膨大菌丝顶端(菌球),供蚂蚁及其幼体取食。蚁群在地下筑巢,真菌作物被维持在外部的菌圃中4,5,而蚂蚁“农夫”则保护其单一栽培的真菌作物免受潜在病原体的侵害6,7,8,9,10,11,12。蚁群内部根据工蚁的体型(等级)和年龄进行劳动分工13,14,15,这种分工也延伸到对蚂蚁自身及真菌作物的病原体防御上。
我们可能会认为,切叶蚁群体应该容易受到疾病侵袭。由于个体之间频繁接触,群居生活会促进疾病在亲缘关系密切的工蚁之间传播16。这些蚂蚁易受昆虫病原性真菌寄生物的感染,例如 Metarhizium 属物种和 Beauveria bassiana6。这些寄生物属于广食性种类,常存在于蚁巢附近的土壤中7,8。蚂蚁以单一栽培方式种植真菌作物4,5,这使其也极有可能遭受病害17,18。该真菌作物可被多种广食性真菌寄生物感染(包括 Aspergillus niger 和 Trichoderma 属物种3);然而,最具威胁性的是一种属于子囊菌门肉座菌目(Ascomycota: Hypocreales)的专性腐生真菌 Escovopsis11。通过分泌溶菌酶及其他化合物,Escovopsis 可杀死真菌作物并从中获取营养12,从而对蚂蚁群体造成潜在的致命影响11,19。
为了应对疾病威胁,蚂蚁在个体和群体水平上都具备卓越的防御机制,通过结合生物防控、行为防御和化学防御,既可起到预防作用,也能在必要时对感染作出响应。这些防御机制共同作用,能够预防或减轻来自广谱病原体以及特异性病原体(如Escovopsis)的感染影响。总体而言,这些机制包括避免在环境中感染寄生生物20、阻止寄生生物进入巢穴,以及限制病原体在巢内传播。第一道防御线包括利用腺体分泌物中的化学物质3,21,22,23,24,25,26,27对植物基质进行消毒——工蚁在将基质加入菌圃前会舔舐其表面,以及蚂蚁进行自我梳理和相互梳理行为。工蚁在自我梳理时,尤其是在进入巢穴后,还可能将酸性粪便分泌物涂抹于体表27。这些预防性防御机制已被证实对于避免病原体感染具有重要意义6,7,8,9,10,11,12。
如果初始防御失败,且病原体(例如 Escovopsis 成功进入蚁巢和真菌园后,若在早期阶段检测到感染,蚂蚁会通过真菌梳理行为清除孢子25,28. 蚂蚁可能会利用后胸腺的分泌物,或将孢子转移至下颊袋(口腔腔室),在那里孢子与含有后胸腺和下唇腺分泌物的化学混合物相混合。26这些腺体中含有二十多种已知化合物,包括γ-酮酸、羧酸和吲哚乙酸3. 这些是主动施加的25具有抗生素、抑真菌和杀真菌特性29,并且可以抑制 埃斯科沃普西斯 孢子萌发30孢子被储存在口下囊中,随后被排出到蜂群外部31,32真菌护理大多由小型工蚁在早期检测后进行28,33然而,如果病原体成功逃避检测并在真菌园中扩散,小型工蚁和大型工蚁都会清除受感染的真菌部分28,且这些被移除的物质被堆放在巢穴外部31此外,切叶蚁属中的物种 Acromyrmex 利用共生放线菌产生的抗生素作为生物防治手段34,35,36— 保留在蚂蚁体壁上37主要为年轻的大型工蚁34,38,39,40— 以产生抑制菌丝生长的化合物 Escovopsis34,38,41。这种抗生素的产生可能继而受到损害 Escovopsis感染期间产生的化合物19.
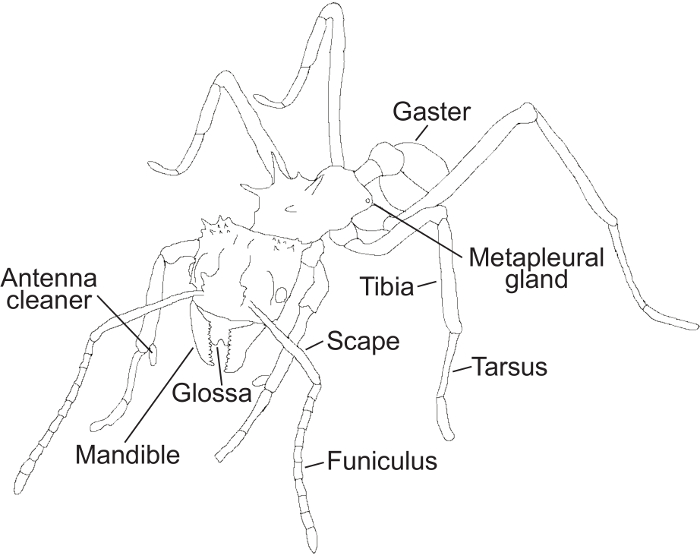
图1:蚂蚁的形态特征。 蚂蚁的示意图,显示本实验方案中提到的形态结构。请点击此处查看该图的放大版本。
因此,切叶蚁的防御机制是由行为和化学机制共同构成的一个综合体系,能够为这些蚂蚁提供极为高效的疾病防护42。理解这些防御机制具有广泛的科学意义,相关研究已十分深入16,20,42,43,44。然而,据我们所知,目前尚无针对防御行为的可视化汇编资料,而此类资料本可帮助研究人员对这些行为进行明确界定和系统描述。尽管用于描述蚂蚁行为的术语已相对标准化,但不同研究中对相同行为的命名仍未必一致。本文的主要目标正是通过汇编一系列个体预防性和防御性行为的视频记录,并辅以相应的定义,来弥补这一不足,提升描述的清晰度与标准化水平。我们是在一项行为实验过程中拍摄了这些视频片段,在该实验中,我们观察并量化了在实验性感染Escovopsis真菌的Acromyrmex echinatior亚群体中的行为表现,其实验结果也在此一并呈现,以说明该视频汇编资料如何用于行为学研究的实例。
方案
1. Escovopsis 的分离
- 分离 Escovopsis 菌株来自 Acromyrmex echinatior 实验室种群,将去除蚂蚁的真菌园碎片置于含湿润棉絮的培养皿中培养数天,直至 Escovopsis 萌发并产孢。将孢子转移至马铃薯葡萄糖琼脂平板(PDA,39 g/L),于约23°C培养约两周。
注意:本研究中使用了一种菌株。 - 使用无菌针从这些初代平板上挑取成熟的孢子。挑取足够覆盖针尖的孢子量。
- 在无菌条件下将孢子接种至新培养皿中,并于约 23 °C 培养约两周。
- 当菌丝覆盖整个培养皿并发育成成熟的褐色孢子时,重复步骤1.3,但此次使用新PDA平板上的孢子。
- 重复该过程,直至获得纯净的储备液 Escovopsis 每种菌株均需获得纯净培养物(平板表面或表面下无可见污染物生长)。
2. 实验装置
- 使用三个 A. echinatior 菌落。
注:此处使用了菌落Ae160b、Ae322和Ae263。 - 从每个菌落中制备12个子菌落。其中6个子菌落用于0小时后的观察,另6个子菌落用于72小时后的观察。每个亲本菌落共产生36个子菌落;将来自每个“亲本”菌落的一半子菌落标记为对照组,另一半标记为“Escovopsis 治疗。
注意:在父代中 由于蜂群中蜂王的存在会影响工蜂的行为,我们预期(尽管无法完全保证)在实验进行的较短时间内,无蜂王亚群体会表现出与有蜂王蜂群相似的行为。 - 对于每个亚群落,使用一个长约为 3.15 英寸(8 厘米)、宽约为 2.17 英寸(5.5 厘米)、深约为 1.77 英寸(4.5 厘米)的方形盒。
注意:关键是要在真菌碎片外部为蚂蚁提供足够的空间以进行觅食和倾倒废物,同时又要使盒子足够小,以便能够进行拍摄和行为识别。 - 每个亚克隆中加入一茶匙量(约2.2 cm)3 和1.2克)真菌园中央部分的样本(L. gongylophorus来自原始菌落的一小部分、几片悬钩子叶以及一块浸过水的棉絮。
注意:棉絮用于提供湿度。棉絮不应滴水,且不应接触菌圃。 - 对于经处理的亚克隆群体 埃斯科维opsis,使用接种环并填满开口,使其恰好被覆盖 Escovopsis 孢子。通过轻轻敲击真菌园的一小块局部区域十到二十次来接种孢子,使孢子分布不过于密集。
- 对于用作对照的亚克隆,模拟处理的应用 Escovopsis 用无菌接种环将真菌接种到真菌园中。
注意:尽管本实验未进行此操作,但在此阶段可接种无菌粉末(如石墨或滑石粉),以区分病原体感染与惰性物质的作用。 - 对于 72 小时观察,将一半的亚克隆(包括对照组和感染组)在接种后继续培养72小时 Escovopsis 在添加蚂蚁或开始视频录制之前。
注意:在没有蚂蚁的情况下等待72小时,很可能导致 Escovopsis 孢子将萌发(未发表) 体外 数据);尽管这也会增加其他感染的风险(例如,来自真菌园中已存在的真菌),但该时间段更适于代表已确立感染的早期阶段。 - 对于 0 小时观察在步骤2.6结束后立即、记录开始前约30分钟,从母群落中同时向每个盒子加入两只蛹、四只小型工蚁和四只大型工蚁。
- 从园内选取两只体色较浅、几丁质层大部分被放线菌覆盖的年轻大型工蚁,另从园外选取两只体色较深、仅侧颈板被放线菌覆盖的大型工蚁。
- 对于 72小时观察,于记录前30分钟重复步骤2.8和2.8.1, 即接种后71.5小时 Escovopsis.
注意:实验性亚群落明显小于已建立的自然群落 Acromyrmex 菌落。这是为了准确记录行为所必需的。尽管这可能在定性上影响某些行为的发生频率,但亚菌落的组成被设计为反映自然菌落中工蚁的混合情况,以更真实地定性反映其行为互动。
3. 视频记录与行为评分
- 将USB内窥镜连接至笔记本电脑(或同等设备),并提供充足的光照。
- 对每个亚群落,进行4小时的视频录制(起始时间为感染后0小时或72小时)。
- 完成36个亚群落的录制后,回顾共计144小时的录像资料,并对每个亚群落中所有个体的目标行为进行评分。
注意:在当前的实验示例中,由于两个亚群落感染了非 Escovopsis 的真菌(分别为Ae160b群落的一个对照组亚群落和Ae322群落的一个处理组亚群落),需将其排除,因此总观察时长减少至136小时。 - 每次观察到某一行为时,记录为1次发生。
注意: 行为持续时间可长可短,但仅当该行为被其他行为中断,或蚂蚁在一段时间内处于静止状态时,才可将其计为>1次。
4. 行为
注:行为定义结合了以往研究中的描述23,27,28,31,45以及个人观察结果。有关本实验方案中用于识别行为的重要形态结构的详细图示,请参见图1。
- 自我梳理与触角清洁 (视频 1)
- 注意观察蚂蚁是否停止腿部运动以开始自我清洁。检查触角是否通过前足上的触角清洁器进行清理图1位于胫节-跗节关节处的钳状结构,由一个凹口与一个具不同大小刚毛和梳状结构的突刺相对构成45,46.
- 清洁触角后,观察到蚂蚁会通过将足拉过口器,用舌(glossa)清除颗粒物和潜在病原体,从而清洁足部和触角清洁器。图1).
注意:自我理毛行为可能包括清洁触角,随后清洁触角清洁器图1),还会使用口器清洁腿部。当蚂蚁清洁其腿部时,通常会连续清洁全部六条腿。
- 真菌梳理(视频 2)
- 注意观察蚂蚁是否在菌圃的某一固定位置停止了腿部运动。观察其触角是否静止不动且平行地指向菌丝体,使得柄节与鞭节之间的夹角(图1)约为45°,触角末端几乎相互接触,靠近上颚末端。图1).
- 注意上颚(上颌)和下唇(下唇)口器张开,舌(glossa)伸出图1)开始探出身体舔食真菌。
- 异体理毛(视频 3)
- 当一只或多只蚂蚁接近另一只(接受者)蚂蚁时,观察这种行为 反之亦然在行为过程中,蚂蚁会停止移动,紧密聚集并保持身体接触。进行梳理的蚂蚁可能会轻微移动,以覆盖被梳理蚂蚁身体的更大区域。
- 观察发现,示踪蚂蚁的触角可能静止不动并指向受体蚂蚁的某个特定部位,或处于运动状态并轻轻敲击受体。触角柄节与梗节之间的夹角(图1)大约呈45°角,具体角度取决于其是否固定于某一点或正在进行敲击动作。表演者触角的尖端通常彼此靠近,并接近其下颚(大颚)的尖端。图1).
- 注意上颚(上颌)和下唇(下唇)口器张开,舌(glossa)图1)探出身体舔舐接受信息的蚂蚁。
- 跗节腺清洁(视频 4))
- 观察蚂蚁停止运动以启动后胸腺(metapleural gland)的时刻。图1)梳理行为。注意,蚂蚁会向一侧倾斜,以便用其中一条前足(例如右前足)向后擦拭后胸腺的开口(外口)。
注意:另一前肢(在此例中为左前肢)同时被舌状体舔舐图1). - 检查蚂蚁是否向相反一侧倾斜,交替使用腿部,并用另一侧的腿重复相同的动作。蚂蚁会持续将前腿移向后胸腺,随后移向舌状器,并不断在双腿之间交替进行这一动作。图1).
注意:在此示例中,蚂蚁将把左前足传递至后胸腺,右前足传递至舌部图1)。在后胸腺(metapleural gland)图1)梳理行为时,蚂蚁通常会启动自我梳理(步骤 4.1)。
- 观察蚂蚁停止运动以启动后胸腺(metapleural gland)的时刻。图1)梳理行为。注意,蚂蚁会向一侧倾斜,以便用其中一条前足(例如右前足)向后擦拭后胸腺的开口(外口)。
- 孢子除草(视频 5)
- 当蚂蚁在菌圃的固定位置停止腿部运动时,观察到其触角静止且相互平行,指向菌圃,触角柄节与鞭节之间的夹角约为45°,触角末端几乎相互接触,并接近上颚末端图1).
- 检查蚂蚁是否张开其上颚(图1以抓取可见的 Escovopsis 孢子和脱落 通过将其拉下,使它们与真菌作物分离。蚂蚁将成簇的孢子带出巢穴,同时触角轻轻摆动以进行定位。触角可通过触角清洁器进行清理图1;参见 视频 1在携带孢子团的同时,蚂蚁会将孢子丢弃到垃圾堆中。
注意:本实验未对垃圾堆周围活动进行记录,但可作为当前实验方案的适当延伸。
- 真菌除草(视频 6)
- 当蚂蚁在真菌的某一固定位置停止腿部运动时,观察到此行为。此时蚂蚁的触角松散地指向其试图移除的真菌部位,并轻微敲击该真菌片段。
- 观察蚂蚁使用其上颚切割真菌作物以分离特定区域,或用上颚夹取真菌片段的一部分图1蚂蚁在扯下真菌碎片的同时,会以其足部为支点,同步向两侧摇动身体。
注意:除草工作可由多名工作人员完成,成年蚁和未成年蚁均可参与。在此过程中,部分蚂蚁负责切割真菌,其他蚂蚁则负责进行摇动和拉扯的动作。被分离下来的真菌部分由蚂蚁运出巢外,并丢弃至废物堆中。本实验未记录废物丢弃行为,但该内容可作为当前实验方案的合适延伸。
- 粪便液体理毛(视频 7)
- 当蚂蚁在菌圃的固定位置停止腿部运动并表现出该行为时进行观察。蚂蚁会弯曲其腹部(gaster)图1并向彼此移动,将一滴粪便液体施加到口器上。
- 观察到蚂蚁通过其上颚将前腿拉过图1),一次一个。随后,蚂蚁将触角穿过触角清洁器(图1位于前足胫节-跗节关节处。
- 液滴反流(视频 8)
- 当蚂蚁在真菌的固定位置停止腿部运动时,可观察到此行为。其触角静止且相互平行,指向真菌,触角柄节与鞭节之间的夹角约为45°,触角末端几乎相互接触,并接近上颚末端图1).
- 观察到蚂蚁从其口器向菌类反刍出一滴液体,该液体从透明到浅黄色甚至棕色不等。
结果
本研究的主要目标是制作一系列短视频片段,用以展示切叶蚁与疾病防御相关的行为,从而建立一个可用于未来研究的参考图谱。此外,本研究还提供了一个实验设计示例,其中对这些行为进行了量化分析,以展示该图谱在行为学研究中的应用方式,其代表性结果在此进行总结。
在感染早期(0 h)和晚期(72 h)分别建立了亚群落进行观察。由于在72 h后部分亚群落受到除Escovopsis以外的真菌严重污染,因此排除了两个亚群落(分别为菌落Ae160b的对照组和菌落Ae322的处理组),故本研究的结果展示主要聚焦于0 h时间点,对72 h后观察到的行为则较少强调。在完成所有亚群落的录像及防御行为评分后,我们发现行为模式在感染后的时间和情境上存在差异,包括小型工蚁与大型工蚁使用这些行为方式的不同。相比之下,自我理毛行为在对照组和感染组的亚群落中均持续发生,且在蚂蚁搜寻并试图清除Escovopsis菌丝或孢子时尤为常见。由于该行为在所有情况下均极为普遍且频繁出现,因此未对其进行量化统计。
我们对方案中描述的所有其他行为进行了评分,并计算了每个亚群落中工蚁(小型和大型)的总频率和平均频率(表 1)。我们发现,在对照组中,小型工蚁对真菌园艺作物的梳理行为多于大型工蚁(图 2a),并且据观察,它们在真菌园中停留的时间更长。在感染了 Escovopsis 的蚁群中,整体真菌梳理行为有增加的趋势,但与对照组相比差异未达到显著水平(F1,23 = 2.80,p = 0.1077;表 2;图 2a)。感染后粪便梳理行为有所增加,但未达到显著性差异(F1,23 = 0.60,p = 0.4455;表 1),且小型与大型工蚁之间无显著差异(图 2b)。我们观察到,工蚁进入真菌区域时会发生粪便梳理行为,而不是在它们位于真菌上或长时间完全离开真菌区域时发生。
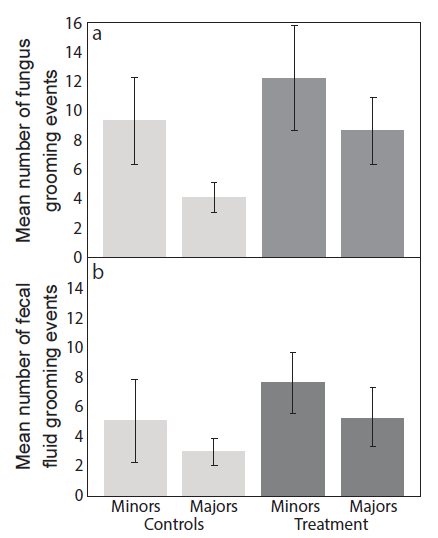
图 2:梳理行为的发生频率。 接种后四小时内,对照组和 Escovopsis 处理组中小型与大型工蚁的 (a) 真菌接触梳理行为和 (b) 粪液接触梳理行为的平均次数(± 标准误(SE);n = 9)。请点击此处查看该图的放大版本。
某些行为极为罕见。我们仅观察到4次蚁酸腺清洁行为,且全部发生在72小时之后;其中1次出现在对照组,3次出现在感染Escovopsis的菌落中(表1)。类似地,极少观察到蚂蚁将液滴反刍至真菌园中,偶尔也发生在真菌园外(表1)。在0小时组中,该行为在对照亚菌落中发生1次,在感染菌落中发生2次;这3次行为均由大型工蚁完成。另有一次,小型工蚁在培养盒角落反刍出液滴,还有一次大型工蚁在黑莓叶片上进行了相同行为,均属于Escovopsis处理组。在72小时的菌落中,对照菌落从未观察到在真菌园上反刍液滴的行为,而在感染菌落中该行为发生了7次;其中6次由大型工蚁完成,且有1只个体单独多次将液滴添加至真菌园外。
孢子除草(图3a)以及真菌除草(图3b)在频率上均较低。尽管感染群落与对照群落在真菌清除频率上无显著差异,但清除行为有随感染时间延长而增加的趋势(F1,23= 2.91,p = 0.1014; Table 2)。我们的观察重点集中在 Escovopsis 孢子剔除现象,其频率随时间变化不显著,但在感染的菌落中呈现较高的趋势 Escovopsis 高于未感染的对照组(F1,23= 3.27,P = 0.0838; Table 2)。感染的亚克隆菌落较少 Escovopsis 观察期结束后仍可见孢子残留,处于早期感染阶段(蚂蚁在接种孢子后0小时引入),在近一半的亚群体中(9个中有4个),蚂蚁清除了所有孢子; 图3c在后期感染阶段(即在孢子接种72小时后引入蚂蚁),蚂蚁无法在任何子群体中完全清除孢子。综上所述,这些观察结果表明,随着感染进程的发展,蚂蚁倾向于从清除孢子转变为清除真菌。
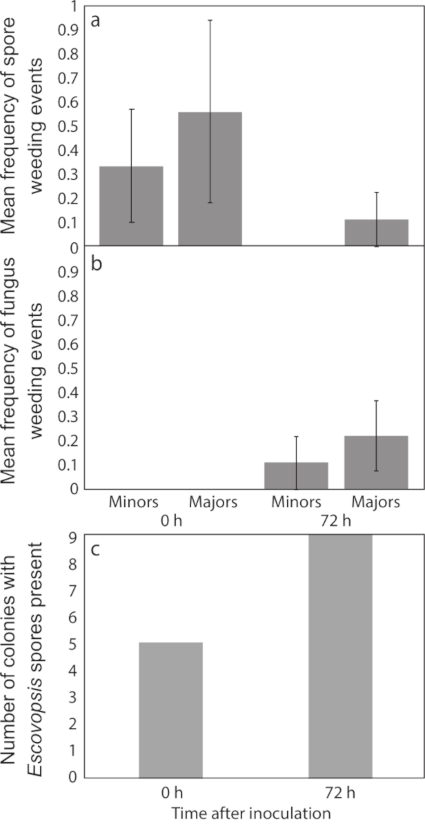
图3:清除事件的发生频率。 在4小时观察期内,各处理组中小型工蚁和大型工蚁的(a)孢子清除(针对Escovopsis孢子)和(b)真菌清除(Escovopsis或其他真菌)的平均频率(±标准误,SE;n = 9),以及(c)观察期结束时各处理组中可见Escovopsis孢子的子菌落数量。请点击此处查看该图的放大版本。
| 小型工蚁 - 对照组 | 小型工蚁 - 处理组 | 大型工蚁 - 对照组 | 大型工蚁 - 处理组 | |
| 0h | ||||
| 真菌梳理行为 | 84 (9.333) | 131 (14.56) | 37 (4.111) | 66 (7.333) |
| 异体梳理行为 | 6 (0.6667) | 14 (1.556) | 5 (0.5556) | 6 (0.6667) |
| 孢子清除行为 | 0 | 3 | 0 | 5 (0.5556) |
| 真菌清除行为 | 0 | 0 | 0 | 0 |
| 粪液梳理行为 | 46 (5.111) | 69 (7.667) | 27 (3.000) | 48 (5.333) |
| 液滴涂抹行为 | 0 | 0 | 1 (0.1111) | 2 (0.2220) |
| 后胸腺梳理行为 | 0 | 0 | 0 | 0 |
| 72h | ||||
| 真菌梳理行为 | 10 (1.429) | 45 (5.000) | 24 (3.429) | 38 (4.222) |
| 异体梳理行为 | 2 (0.2857) | 10 (1.111) | 1 (0.1110) | 4 (0.4440) |
| 孢子清除行为 | 0 | 0 | 0 | 1 (0.1110) |
| 真菌清除行为 | 0 | 1 (0.1110) | 0 | 2 (0.2220) |
| 粪液梳理行为 | 19 (2.714) | 38 (4.222) | 30 (4.286) | 30 (3.333) |
| 液滴涂抹行为 | 0 | 1 (0.1110) | 0 | 6 (0.6667) |
| 后胸腺梳理行为 | 0 | 2 (0.2220) | 1 (0.1429) | 1 (0.1110) |
表 1:接种Escovopsis 后 0 小时和 72 小时进行 4 小时观察所记录的行为次数。 对照组和接种 Escovopsis 的亚群落中,小型工蚁与大型工蚁的行为观察总次数平均值(括号内为个体平均频率),每组 n = 9。
| 固定效应的 III 型检验 | |||||||||||||||||||||
| 真菌梳理 | 异体梳理 | 粪便梳理 | 孢子除草 | 真菌除草 | |||||||||||||||||
| 效应 | Num DF | Den DF | F 值 | Pr > F | Num DF | Den DF | F 值 | Pr > F | Num DF | Den DF | F 值 | Pr > F | Num DF | Den DF | F 值 | Pr > F | Num DF | Den DF | F 值 | Pr > F | |
| 群体 | 2 | 23 | 0.77 | 0.4733 | 2 | 23 | 0.52 | 0.5989 | 2 | 23 | 0.54 | 0.5903 | 2 | 23 | 0.51 | 0.6052 | 2 | 23 | 1.17 | 0.3272 | |
| 亚群体(群体) | 6 | 23 | 0.93 | 0.4892 | 6 | 23 | 0.51 | 0.7978 | 6 | 23 | 0.63 | 0.7067 | 6 | 23 | 1.67 | 0.1742 | 6 | 23 | 1.53 | 0.2127 | |
| 处理 | 1 | 23 | 2.8 | 0.1077 | 1 | 23 | 1.85 | 0.1875 | 1 | 23 | 0.6 | 0.4455 | 1 | 23 | 3.27 | 0.0838 | 1 | 23 | 1 | 0.3275 | |
| 时间 | 1 | 23 | 6.53 | 0.0177 | 1 | 23 | 0.88 | 0.3574 | 1 | 23 | 0.97 | 0.3361 | 1 | 23 | 0.53 | 0.4742 | 1 | 23 | 2.91 | 0.1014 | |
表 2:可进行统计分析的独立行为的混合方差分析(ANOVA)检验的统计结果。固定效应包括蜂群、亚蜂群(嵌套于蜂群内)、处理方式和时间。请点击此处下载该表格。
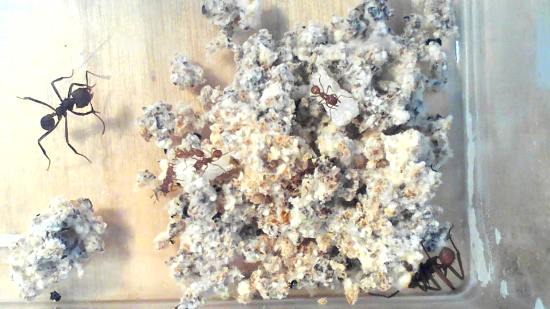
视频 1:自我梳理与触角清洁。 请点击此处观看视频。右键可下载。
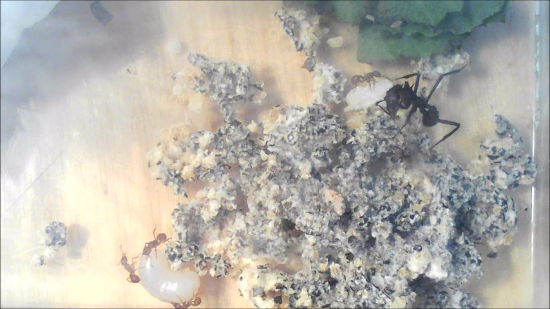
视频 2:真菌梳理行为。 请点击此处观看视频。右键单击可下载。
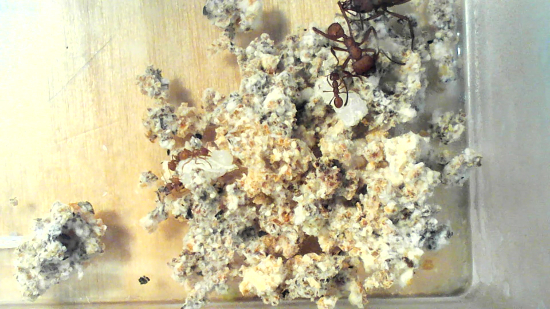
视频 3:异体理毛行为。 请点击此处观看视频。右键可下载。
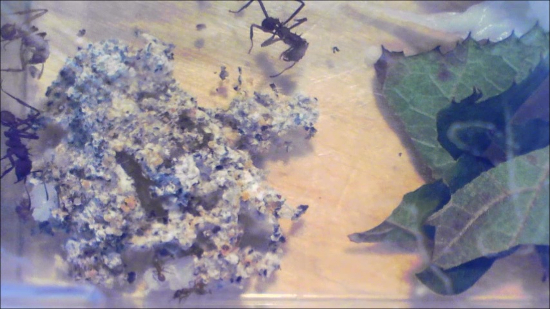
视频 4:后胸腺 grooming 行为。 请点击此处观看视频。右键可下载。
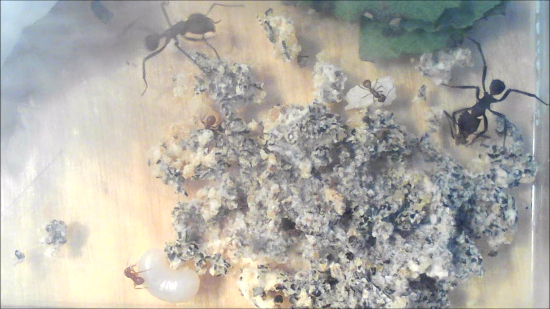
视频 5:孢子除草。 请点击此处观看视频。右键可下载。
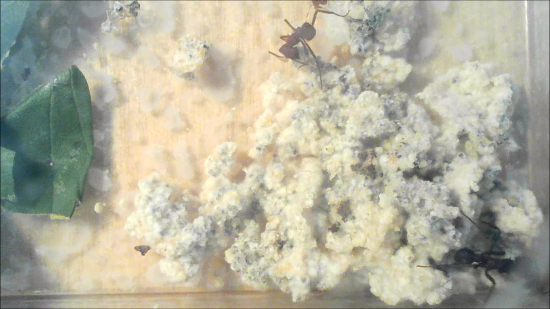
视频 6:真菌除草。 请点击此处观看视频。右键单击可下载。
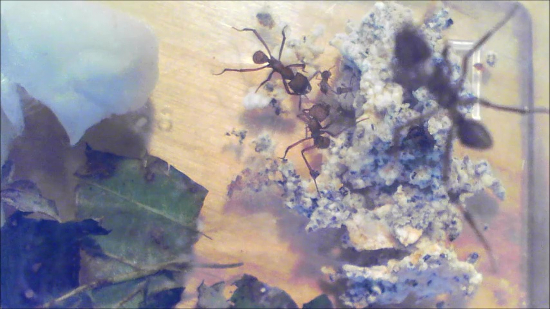
视频 7:粪液梳理行为。 请点击此处观看视频。右键可下载。
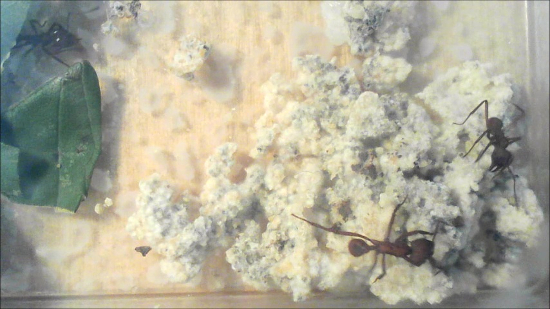
视频 8:液滴反刍。 请点击此处观看视频。右键可下载。
讨论
本研究的主要目标是观察并记录在菌圃受到Escovopsis真菌感染时,切叶蚁所表现出的典型防御行为,并制作可供更广泛科学界使用的参考视频片段。需要注意的是,这些行为并非仅针对Escovopsis的防御反应,它们也可能在抵御其他污染物和病原体感染6,7,8,9,10,11,12,以及蚂蚁个体自身防御过程中发挥重要作用42。我们的实验方案为研究培菌蚂蚁的防御机制提供了基础支持,其意义可能体现在以下方面:(i)帮助不熟悉这些行为的年轻研究人员快速掌握要点;(ii)确保对行为的定义和观察具有一致性;(iii)促进不同研究之间以及不同蚂蚁物种间的比较分析;(iv)由于其中一些行为发生频率极低,即使是经验丰富的研究人员也可能从未观察到;(v)在实验室受控条件下理解并识别这些行为,有助于在野外(in situ)开展研究,因为在自然环境中控制变量更为困难。
我们的行为学研究结果与先前的研究一致,即当早期发现感染时,工蚁中的小型工蚁比大型工蚁更频繁地进行真菌梳理,这一行为至关重要。25,28,32在此,主要工蚁在真菌梳理行为上增加了 grooming 的量 Escovopsis 感染(图2a这表明,小型工蚁是主要的真菌清理者,而大型工蚁可能在防止已建立感染的扩散方面起到辅助作用。体型较大的大型工蚁清除孢子的速度更快,而小型工蚁可能更擅长清除难以触及的孢子。我们还发现,当工蚁在感染发生时即被引入,能够在约一半的受感染亚群体(九个中有四个)中成功清除孢子,从而能够早期识别病原体。图3c总体而言,这表明蚂蚁会表现出一系列行为反应,首先尝试阻止 Escovopsis 通过清除孢子(在感染扩散之前清除)来控制感染,而不是移除菌圃的部分结构图3a,b)。如果感染持续进展,蚂蚁更倾向于移除真菌园的部分区域,这一行为会随时间发生变化28尽管我们的样本量过小而无法得出确凿结论,且不能排除同时发生的感染可能诱发了除菌行为,但我们的数据支持这一趋势,即除菌行为主要出现在感染的后期阶段(图3a)。真菌除草水平普遍较低,可能表明蚂蚁采用了其他防御机制(例如,化学试剂)以抑制进一步生长 Escovopsis,或者我们的实验亚群落均未受到过于严重的感染(使得更具破坏性的防御机制变得不必要)。
我们的研究结果表明,用粪液进行自我理毛是进入菌圃的蚂蚁的特征行为,这是一种预防性措施,而非与感染相关。在蚁后个体中也观察到类似现象:当它们进入巢穴或处理嗉囊时,会自我理毛,并用口器将粪滴转移到腿部27。理论上,如果被移除的感染物质被搬运至巢外并丢弃在废物堆中,则感染应会增加菌圃边缘工蚁的活动。因此,在感染期间,粪液理毛行为也可能间接增加,以最大限度减少疾病的传播。但对于严重感染,我们预期会出现相反的模式,即菌圃边缘的活动减少,因为工蚁可能放弃菌圃,或采取更极端的防御措施,例如化学防御。
尽管粪液可能对个体起到重要的预防性化学保护作用,但当巢内同伴检测到外来颗粒或微生物时,会通过异体理毛行为对其他工蚁进行清理。我们观察到粪液理毛(n = 304)与异体理毛(n = 48)的发生频率之间存在显著差异(表 1),这可能表明两者在病原体检测机制上有所不同。蚂蚁自身难以用触角有效检测体表的病原体;而异体理毛由巢内同伴执行,能够全面检查一只蚂蚁的整个身体,并仅在必要时才进行理毛。由于Escovopsis是真菌园的寄生菌,而非直接寄生蚂蚁,这也可能解释了异体理毛行为发生频率较低的原因。
我们很少观察到后胸腺的梳理行为,且仅在感染的后期阶段出现。具有丰富 Pseudonocardia 细菌覆盖的切叶蚁物种,其后胸腺梳理频率低于覆盖较少或无覆盖的物种25,47。由于 A. echinatior 拥有丰富的共生菌47,这可能解释了其后胸腺梳理频率较低的现象。此外,后胸腺分泌物的合成代价较高30,可能在下颌囊 中储存较长时间,因此对后胸腺进行梳理的需求可能并不频繁。在后胸腺梳理过程中,蚂蚁会交替使用腿部,并舔舐刚刚完成腺体梳理的腿;通过这种方式,真菌孢子被转移至下颌囊,在该部位腺体分泌物对于抑制 Escovopsis 的后续萌发潜力至关重要25。小型工蚁在巢内数量更多,且单位体重的后胸腺更大30,表明它们贡献了大部分的后胸腺分泌物。这也可能解释了为何在本研究中,真菌梳理行为频率最高的个体为小型工蚁。
我们预期会观察到细菌共生体Pseudonocardia主动利用抗生素的行为,这种共生菌通常存在于Acromyrmex工蚁的体壁表面,并已知在抵御Escovopsis36,39,40方面发挥防御作用。未能观察到此类行为的最可能解释是,这些抗生素的应用可能已融入其他行为之中,例如先进行自我梳理,随后进行真菌梳理和/或除草行为,这可能导致其难以被识别为一种独立的行为。
我们观察到一种异常行为,即蚂蚁将液滴反刍到真菌园中。22 此前已有研究描述切叶蚁会将食物反刍给巢伴。在本实验中,这些液滴的颜色从透明到深棕色不等,表明它们可能为其他蚂蚁提供营养来源,或提供水分。我们仅观察到两次其他蚂蚁饮用这些液滴的情况,因此尚无法确定这些液滴是否有利于其他蚂蚁,或在湿度较低时用于为真菌补充水分。大多数此类行为的观察记录出现在Escovopsis 感染期间,这可能暗示其具有防御作用,例如通过反刍抗菌肽实现免疫预激活16,48。但由于该行为较为罕见,我们无法对此得出明确结论,不过这仍是一个值得进一步研究的方向,例如可通过检测液滴是否具有抗菌特性来加以验证。
鉴于在野外对包括有无真菌园感染情况下的切叶蚁复杂防御行为进行观察性研究极为困难,实验数据可为在更受控条件下理解这些行为提供有价值的见解。尽管在实验室条件下观察到的行为可能与自然条件下的行为存在差异,但仍需开发诸如我们所建立的关键防御行为目录之类的工具,以促进未来实验研究和野外研究的改进。然而,实验方法或许能在一定程度上解释为何某些行为极为罕见(例如, 异体理毛,后胸腺理毛)在我们演示使用这些行为定义时。因此,未来的研究或许应考虑这一实验设置的局限性,以寻找实现更自然行为观察的方法 观察结果。还可以将其他因素整合到当前方案中,例如区分携带放线菌(较年轻)的工蚁与体表覆盖较少(较年老)的工蚁,这些不同类群可能对威胁产生不同的反应 埃斯科维opsis 感染。在提高观察准确性(例如通过记录焦点个体)与扩大亚群落规模(更多工蚁数量)之间,以及在特定时间点可拍摄的时间、亚群落数量或个体数量方面,存在权衡。尽管如此,虽然该装置可扩展用于更大型的行为学研究并侧重于解决特定行为目标,但在本研究中,我们重点成功展示了一种用于记录和定义特定防御行为的方法。
我们记录了有助于切叶蚁防御行为的表现,并且更重要的是,系统性地识别、描述并以影像方式捕捉了这些防御行为。我们的代表性结果进一步支持了该领域其他研究的结论,即当病原体面临一系列广泛的防御行为以及伴随使用的抗菌化合物时,很难成功感染培育真菌的蚂蚁群体。我们的主要目标是为该领域的后续研究提供一种新工具,我们希望这一行为目录能够有助于建立共识,并为防御行为的定义、观察和解释提供标准化的框架,从而成为未来研究的重要资源。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Line Vej Ugelvig和Kirsten Sheehy在触角清洁器的梳理机制及拍摄装置方面提供的有益讨论。Michael Poulsen由Villum Kann Rasmussen青年研究员基金(VKR10101)资助,Tabitha Innocent由欧盟玛丽·居里个体奖学金(IEF资助号627949)资助。我们还要感谢史密森尼热带研究所提供在巴拿马的设施和后勤支持,以及国家环境局(Autoridad Nacional del Ambiente)许可我们采集蚂蚁并将其出口至丹麦。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 塑料盒 | N/A | N/A | 透明。长度:3.15 英寸(8 厘米),宽度:2.17 英寸(5.5 厘米),深度:1.77 英寸(4.5 厘米) |
| 培养皿 | Sarstedt | 82.1472 | 3.62×0.63 英寸(9.2×1.6 厘米) |
| 接种环 | Labsolute | 7696431 | 一次性,1 µL。长度:7.67 英寸(19.5 厘米) |
| 摄像头 | DBPower | NTC50HD_8.5mm | USB内窥镜摄像头 |
| 摄像头支架 | N/A | N/A | 旧烧杯夹支架。 |
| 笔记本电脑 | HP | N/A | 用于保存录像的通用笔记本电脑。 |
| 笔记本电脑上使用的程序 | Windows Movie Maker | N/A | |
| 镊子 | Vermandel | 50.054 | 软质 |
| 马铃薯葡萄糖肉汤 | Sigma-Aldrich | P6685-1KG | 24 g/L |
参考文献
- Hölldobler, B., Wilson, E. O. The ants. , Belknap Press of Harvard University Press. (1990).
- Weber, N. A. Gardening ants, the attines. , American Philosophical Society. (1972).
- Bot, A. N. M., Ortius-Lechner, D., Finster, K., Maile, R., Boomsma, J. J. Variable sensitivity of fungi and bacteria to compounds produced by the metapleural glands of leaf-cutting ants. Insectes Sociaux. 49 (4), 363-370 (2002).
- Poulsen, M., Boomsma, J. J. Mutualistic fungi control crop diversity in fungus-growing ants. Science. 307 (5710), 741-744 (2005).
- Mueller, U. G., Scott, J. J., Ishak, H. D., Cooper, M., Rodrigues, A. Monoculture of Leafcutter Ant Gardens. Plos One. 5 (9), (2010).
- Hughes, W. O. H., Thomsen, L., Eilenberg, J., Boomsma, J. J. Diversity of entomopathogenic fungi near leaf-cutting ant nests in a neotropical forest, with particular reference to Metarhizium anisopliae var. anisopliae. Journal of Invertebrate Pathology. 85 (1), 46-53 (2004).
- Samson, R. A., Evans, H. C., Latgé, J. -P. Atlas of entomopathogenic fungi. , Springer-Verlag; Wetenschappelijke Uitgeverij Bunge. (1988).
- Shah, P. A., Pell, J. K. Entomopathogenic fungi as biological control agents. Applied Microbiology and Biotechnology. 61 (5-6), 413-423 (2003).
- Hughes, D. P., Evans, H. C., Hywel-Jones, N., Boomsma, J. J., Armitage, S. A. O. Novel fungal disease in complex leaf-cutting ant societies. Ecological Entomology. 34 (2), 214-220 (2009).
- Andersen, S. B., et al. The Life of a Dead Ant: The Expression of an Adaptive Extended Phenotype. American Naturalist. 174 (3), 424-433 (2009).
- Currie, C. R., Mueller, U. G., Malloch, D. The agricultural pathology of ant fungus gardens. Proceedings of the National Academy of Sciences of the United States of America. 96 (14), 7998-8002 (1999).
- Reynolds, H. T., Currie, C. R. Pathogenicity of Escovopsis weberi: The parasite of the attine ant-microbe symbiosis directly consumes the ant-cultivated fungus. Mycologia. 96 (5), 955-959 (2004).
- Camargo, R. S., Forti, L. C., Lopes, J. F. S., Andrade, A. P. P., Ottati, A. L. T. Age polyethism in the leaf-cutting ant Acromyrmex subterraneus brunneus Forel, 1911 (Hym., Formicidae). Journal of Applied Entomology. 131 (2), 139-145 (2007).
- Hughes, W. O. H., Sumner, S., Van Borm, S., Boomsma, J. J. Worker caste polymorphism has a genetic basis in Acromyrmex leaf-cutting ants. Proceedings of the National Academy of Sciences of the United States of America. 100 (16), 9394-9397 (2003).
- Wilson, E. O. Caste and Division of Labor in Leaf-Cutter Ants (Hymenoptera, Formicidae, Atta). 2. The Ergonomic Optimization of Leaf Cutting. Behavioral Ecology and Sociobiology. 7 (2), 157-165 (1980).
- Schmid-Hempel, P. Parasites and Their Social Hosts. Trends in Parasitology. 33 (6), 453-462 (2017).
- Hamilton, W. D., Axelrod, R., Tanese, R. Sexual Reproduction as an Adaptation to Resist Parasites (a Review). Proceedings of the National Academy of Sciences of the United States of America. 87 (9), 3566-3573 (1990).
- Zhu, Y. Y., et al. Genetic diversity and disease control in rice. Nature. 406 (6797), 718-722 (2000).
- Heine, D., et al. Chemical warfare between leafcutter ant symbionts and a co-evolved pathogen. Nature Communications. 9, (2018).
- Cremer, S., Pull, C. D., Furst, M. A. Social Immunity: Emergence and Evolution of Colony-Level Disease Protection. Annual Review of Entomology. 63, 105-123 (2018).
- Quinlan, R. J., Cherrett, J. M. Role of Substrate Preparation in Symbiosis between Leaf-Cutting Ant Acromyrmex octospinosus (Reich) and Its Food Fungus. Ecological Entomology. 2 (2), 161-170 (1977).
- Richard, F. J., Errard, C. Hygienic behavior, liquid-foraging, and trophallaxis in the leaf-cutting ants, Acromyrmex subterraneus and Acromyrmex octospinosus. Journal of Insect Science. 9, (2009).
- Reber, A., Purcell, J., Buechel, S. D., Buri, P., Chapuisat, M. The expression and impact of antifungal grooming in ants. Journal of Evolutionary Biology. 24 (5), 954-964 (2011).
- Poulsen, M., Bot, A. N. M., Boomsma, J. J. The effect of metapleural gland secretion on the growth of a mutualistic bacterium on the cuticle of leaf-cutting ants. Naturwissenschaften. 90 (9), 406-409 (2003).
- Fernandez-Marin, H., Zimmerman, J. K., Rehner, S. A., Wcislo, W. T. Active use of the metapleural glands by ants in controlling fungal infection. Proceedings of the Royal Society B-Biological Sciences. 273 (1594), 1689-1695 (2006).
- Fernandez-Marin, H., et al. Functional role of phenylacetic acid from metapleural gland secretions in controlling fungal pathogens in evolutionarily derived leaf-cutting ants. Proceedings of the Royal Society B-Biological Sciences. 282 (1807), (2015).
- Fernandez-Marin, H., Zimmermann, J. K., Wcislo, W. T. Nest-founding in Acromyrmexoctospinosus (Hymenoptera, Formicidae, Attini): demography and putative prophylactic behaviors. Insectes Sociaux. 50 (4), 304-308 (2003).
- Currie, C. R., Stuart, A. E. Weeding and grooming of pathogens in agriculture by ants. Proceedings of the Royal Society B-Biological Sciences. 268 (1471), 1033-1039 (2001).
- Ortius-Lechner, D., Maile, R., Morgan, E. D., Boomsma, J. J. Metaplural gland secretion of the leaf-cutter ant Acromyrmex octospinosus: New compounds and their functional significance. Journal of Chemical Ecology. 26 (7), 1667-1683 (2000).
- Poulsen, M., Bot, A. N. M., Nielsen, M. G., Boomsma, J. J. Experimental evidence for the costs and hygienic significance of the antibiotic metapleural gland secretion in leaf-cutting ants. Behavioral Ecology and Sociobiology. 52 (2), 151-157 (2002).
- Bot, A. N. M., Currie, C. R., Hart, A. G., Boomsma, J. Waste management in leaf-cutting ants. Ethology Ecology & Evolution. 13 (3), 225-237 (2001).
- Little, A. E. F., Murakami, T., Mueller, U. G., Currie, C. R. Defending against parasites: fungus-growing ants combine specialized behaviours and microbial symbionts to protect their fungus gardens. Biology Letters. 2 (1), 12-16 (2006).
- Abramowski, D., Currie, C. R., Poulsen, M. Caste specialization in behavioral defenses against fungus garden parasites in Acromyrmex octospinosus leaf-cutting ants. Insectes Sociaux. 58 (1), 65-75 (2011).
- Currie, C. R., Scott, J. A., Summerbell, R. C., Malloch, D. Fungus-growing ants use antibiotic-producing bacteria to control garden parasites. Nature. 398 (6729), 701-704 (1999).
- Scheuring, I., Yu, D. W. How to assemble a beneficial microbiome in three easy steps. Ecology Letters. 15 (11), 1300-1307 (2012).
- Worsley, S. F., et al. Symbiotic partnerships and their chemical interactions in the leafcutter ants (Hymenoptera: Formicidae). Myrmecological News. 27, 59-74 (2018).
- Currie, C. R., Poulsen, M., Mendenhall, J., Boomsma, J. J., Billen, J. Coevolved crypts and exocrine glands support mutualistic bacteria in fungus-growing ants. Science. 311 (5757), 81-83 (2006).
- Poulsen, M., et al. Variation in Pseudonocardia antibiotic defence helps govern parasite-induced morbidity in Acromyrmex leaf-cutting ants. Environmental Microbiology Reports. 2 (4), 534-540 (2010).
- Poulsen, M., Cafaro, M., Boomsma, J. J., Currie, C. R. Specificity of the mutualistic association between actinomycete bacteria and two sympatric species of Acromyrmex leaf-cutting ants. Molecular Ecology. 14 (11), 3597-3604 (2005).
- Andersen, S. B., Hansen, L. H., Sapountzis, P., Sorensen, S. J., Boomsma, J. J. Specificity and stability of the Acromyrmex-Pseudonocardia symbiosis. Molecular Ecology. 22 (16), 4307-4321 (2013).
- Currie, C. R., Bot, A. N. M., Boomsma, J. J. Experimental evidence of a tripartite mutualism: bacteria protect ant fungus gardens from specialized parasites. Oikos. 101 (1), 91-102 (2003).
- Cremer, S., Armitage, S. A. O., Schmid-Hempel, P. Social immunity. Current Biology. 17 (16), R693-R702 (2007).
- Schluns, H., Crozier, R. H. Molecular and chemical immune defenses in ants (Hymenoptera: Formicidae). Myrmecological News. 12, 237-249 (2009).
- Masri, L., Cremer, S. Individual and social immunisation in insects. Trends in Immunology. 35 (10), 471-482 (2014).
- Hackmann, A., Delacave, H., Robinson, A., Labonte, D., Federle, W. Functional morphology and efficiency of the antenna cleaner in Camponotus rufifemur ants. Royal Society Open Science. 2 (7), (2015).
- How ants use 'combs' and 'brushes' to keep their antennae clean. , Available from: https://www.youtube.com/watch?time_continue=65&v=AB4HoeloqZw (2015).
- Fernandez-Marin, H., Zimmerman, J. K., Nash, D. R., Boomsma, J. J., Wcislo, W. T. Reduced biological control and enhanced chemical pest management in the evolution of fungus farming in ants. Proceedings of the Royal Society B-Biological Sciences. 276 (1665), 2263-2269 (2009).
- Konrad, M., et al. Social Transfer of Pathogenic Fungus Promotes Active Immunisation in Ant Colonies. Plos Biology. 10 (4), (2012).
重印与许可
