巨胞饮作用是一种大规模的非特异性液体摄取过程,在免疫学、感染、癌症和神经退行性疾病等多个临床生物学领域具有重要意义。本文对现有技术进行了改进,使其能够利用流式细胞术对巨胞饮作用模式生物Dictyostelium discoideum实现高通量、单细胞分辨率的巨胞饮作用定量检测。
本文内容
摘要
摘要
通过巨胞饮作用进行的大规模非特异性液体摄取,对于某些癌细胞的增殖、抗原采样、宿主细胞侵入以及神经退行性疾病的扩散具有重要意义。当在营养培养基中培养时,实验中常用的小鼠盘基变形虫(Dictyostelium discoideum)具有极高的液体摄取速率,其中超过90%的摄取由巨胞饮作用介导。此外,许多已知的哺乳动物巨胞饮作用核心组分在该生物中也存在,使其成为研究巨胞饮作用的优良模型系统。本文将利用荧光标记葡聚糖作为示踪剂来测定细胞内化液体的标准技术改进为适用于96孔板的操作流程,并通过配备高通量采样(HTS)装置的流式细胞术对样品进行分析。
细胞在预设时间内孵育不可淬灭的荧光葡聚糖,随后用冰冻缓冲液洗涤,并使用5 mM叠氮化钠解离细胞,后者同时可抑制胞吐作用。然后通过流式细胞术分析每个孔中的细胞。该方法也可经调整用于检测细胞膜摄取以及荧光微球或细菌的吞噬作用。
该方法旨在以高通量、节省人力和资源的方式测量Dictyostelium的流体摄取。它能够并行地同时比较多种菌株(例如某基因的敲除突变体)和不同条件(例如在不同培养基中培养或用不同浓度抑制剂处理的细胞),并简化了时间进程实验的操作。
引言
通过巨胞饮作用进行的大规模非特异性液体摄取在多种生物学背景下具有重要意义1,包括免疫细胞对抗原的摄取2、病原体侵入宿主细胞3、癌细胞增殖4以及朊病毒疾病的传播5。在哺乳动物细胞和Dictyostelium细胞中,肌动蛋白(actin)6,7、PI(3,4,5)P38,9,10(尽管这两种细胞中该脂质的确切性质有所不同11)、活化的Ras12,13以及活化的Rac14,15均对高效的液体摄取至关重要。然而,关于巨胞饮斑块如何形成、组织并最终被内化,仍有许多未解之谜。发现更多与巨胞饮作用相关的重要蛋白,并进一步明确它们在不同生物学背景中的作用机制,将有助于更全面地理解巨胞饮过程,并可能为多种疾病的靶向治疗提供新思路。
Dictyostelium 是研究巨胞饮作用的理想模型系统。标准实验室品系中巨胞饮作用的组成型水平很高,意味着液体摄取中有超过90%源于巨胞饮作用6。这使得仅通过测定液体摄取量即可测量巨胞饮作用,而不像哺乳动物细胞,其液体摄取中由巨胞饮作用所占的比例要低得多。此外,巨胞饮作用在此系统中定义明确且易于观察12,这同样为研究巨胞饮体的核心保守组分提供了显著优势,相较于其他可能存在多种调控信号的系统而言尤为突出16,17。
测量哺乳动物细胞巨胞饮作用的标准技术包括:短暂脉冲式加入葡聚糖后固定细胞,再通过显微镜观察葡聚糖阳性囊泡所占细胞面积18。然而,该技术未考虑巨胞饮体进入细胞后可能发生的收缩现象(已在Dictyostelium中报道)19,且仅基于细胞的单一层面上的观察,因此无法明确内吞液体的实际体积。另一种替代方法是计数特定时间内被内吞的巨胞饮体数量,但同样存在上述局限性20。使用Dictyostelium可避免这些问题;然而,目前用于测量Dictyostelium液体摄取的技术相对费力,需要大量细胞和葡聚糖21。该方法将高密度细胞在荧光标记的葡聚糖溶液中振荡培养,并在不同时间点取样,利用荧光计测定细胞内化后的荧光强度。采用此方法制备的细胞也可通过流式细胞术进行分析,从而获得单细胞水平而非群体水平的分辨率22,但通量仍然较低。
本文将使用荧光葡聚糖作为标记物测定细胞内化液体的标准技术改进为适用于96孔板的操作流程,并通过配备高通量进样(HTS)装置的流式细胞仪对样品进行分析。细胞在预设时间内摄取非淬灭性荧光葡聚糖后,用冰冻缓冲液洗涤,并用5 mM叠氮化钠处理使其脱离,该处理同时可抑制胞吐作用。随后对每个孔中的细胞进行流式细胞术分析。该方法旨在克服上述方法的局限性,能够在使用较少资源并降低工作量的同时,实现对大量菌株或条件下的液体摄取能力进行平行比较。
方案
1. 细胞与材料的准备
- 可在含有如产气克雷伯菌(Klebsiella aerogenes)等细菌的SM琼脂平板上培养细胞,或如文献所述在HL5等营养培养基中培养23。
注意:在细菌上培养存在巨胞饮缺陷的基因敲除突变体,有助于防止可能增强巨胞饮速率的继发性突变积累。从冻存菌种接种后,传代次数应控制在4代以内以获得最佳结果。突变体在分离后应尽快以冻存菌种形式保存。 - 在SM琼脂平板上培养细胞时,先将产气克雷伯菌(K. aerogenes)在SM培养基中培养至完全融合状态。取200–300 μL细菌液滴加至SM琼脂平板上并涂布均匀。用无菌接种环取细胞(从其他细菌平板转移时),在平板边缘处涂布。于22 °C培养最多一周。
- 将四甲基罗丹明异硫氰酸酯(TRITC-)葡聚糖溶于水,配制成50 mg/mL溶液,经0.22 μm滤器过滤后分装为1 mL每份,于-20 °C保存。分装样品可长期保存。
注意:通常采用155 kDa的葡聚糖,因其可大量购买且成本较低,但在Dictyostelium中,较小分子量的葡聚糖同样能有效检测巨胞饮活性24。若需使用不同荧光基团,可选用其他非淬灭性葡聚糖替代,如级联蓝(cascade blue)或Alexa-647标记葡聚糖。
2. 将定性测量结果转换为定量结果(可选)
- 使用悬浮细胞进行流体摄取实验。
- 将无菌培养的细胞在 300 × g 条件下离心 3 分钟,弃去上清液,用营养培养基重悬至 1×10⁷ 个细胞/mL。加入 TRITC-葡聚糖至终浓度为 0.5 mg/mL,在 22 °C、180 rpm 条件下振荡孵育。
- 在 0、30、60、90、120 分钟时,分别取 0.8 mL 样品加入 0.7 mL 冰冷的 KK2 缓冲液中进行稀释。在台式离心机中用 1.5 mL 冰冷 KK2 缓冲液23 洗涤一次,再用相同缓冲液重悬至 1 mL,并置于冰上保存。
注意: 立即洗涤或待所有样品收集完毕后统一洗涤,结果等效。
- 测定细胞内化流体的体积。
- 将荧光计设置为激发波长 544 nm、发射波长 574 nm、狭缝宽度 10 nm 的条件进行荧光检测。配制 TRITC-葡聚糖的系列稀释液,测定不同体积葡聚糖对应的荧光值,绘制标准曲线。
- 取 0.9 mL 细胞悬液,检测第 2.1 步中细胞的内化荧光值。利用标准曲线24 计算每个细胞内化的液体体积。
- 将各时间点剩余的细胞分别用 0.5 mL 冰冷的 KK2 缓冲液稀释,经 70 µm 细胞滤网过滤后收集至 5 mL 聚苯乙烯流式细胞仪管中。调整流式细胞仪参数,使各时间点的细胞群体相互分离,并记录其荧光信号(见第 3.4 和 3.5 节)。
- 使用上述相同参数,在流式细胞仪中检测校准微球的荧光信号并记录。
注意:此步骤为后续所有流式荧光检测的参考标准;再次使用前需重新检测微球并调整仪器参数,使其荧光信号保持一致,从而获得一个非常狭窄且明确的峰信号。在荧光峰周围设置门控可便于识别。 - 重复实验三次,将第 2.2 和 2.3 步获得的细胞荧光数据相互对应作图。拟合最佳直线,并利用所得方程将流式细胞术的定性数据转换为定量单位。
3. 测量流体吸收
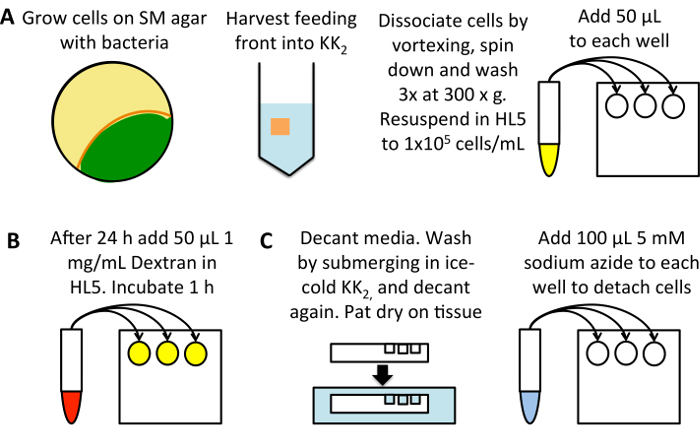
图 1:大胞饮作用高通量检测示意图。(A) 将 Dictyostelium 培养于接种了 K. aerogenes 细菌(黄色)的 SM 平板上。从摄食前沿(橙色)收集细胞,避免采集已发育的细胞(绿色),将其悬浮于 25 mL KK2 缓冲液中。涡旋振荡以分散细胞,于 300 × g 离心 3 分钟收集细胞沉淀,随后用 50 mL KK2 缓冲液洗涤 3 次,每次均弃去上清液。将细胞重悬于 HL5 生长培养基中,浓度为 1 × 10⁵ 个细胞/mL,并向 96 孔平底培养板的每个样品三个孔中各加入 50 µL。于 22 °C 培养 24 小时。(B) 将 TRITC-葡聚糖从 50 mg/mL 储存液稀释至 HL5 生长培养基中终浓度为 1 mg/mL。向每个样品孔中加入 50 µL(0 分钟摄取对照孔除外),于 22 °C 培养 1 小时,之后再向 0 分钟摄取对照孔中加入葡聚糖。(C) 立即倾去培养基,将培养板轻拍于纸巾上以去除残留液体,随后浸入冰浴的 KK2 缓冲液中,充满各孔进行洗涤。倾去缓冲液后再次轻拍干燥。每孔加入 100 µL 含 5 mM 叠氮化钠的 KK2MC 溶液以使细胞脱落。立即送至流式细胞仪检测胞内荧光强度。请点击此处查看该图的放大版本。
- 设置一个平底96孔组织培养板(图1A). 使用在细菌上培养的细胞,并将其转移至HL5培养基(含 100 µg/mL 硫酸二氢链霉素, 100 µg/mL 氨苄青霉素和 50 µg/mL 卡那霉素)在检测前24小时;这可使巨胞饮作用从在细菌上培养的细胞中观察到的低水平状态上调24或者,直接从无菌培养物中稀释细胞,并在检测前孵育24小时,以减少因细胞起始密度不同而导致的误差。
- 从培养前沿收获细胞至25 mL KK中2 在50 mL离心管中。通过涡旋振荡分散细胞,并在300 x g下离心成团 g 3 分钟. 弃去上清液,重悬沉淀,并在300 x g条件下洗涤3次 g 3分钟,50 mL KK中2每次弃去上清液以去除细菌。
- 使用血细胞计数板或其他细胞计数系统测定细胞密度,并用含抗生素的HL5培养基稀释至1 × 10⁶ cells/mL5 细胞/mL。用移液器 50 μL 每个条件使用三个孔,每孔加入,于 22 °C 孵育24小时。请记得设置0分钟 uptake 对照。
注意:一种替代培养基, 例如 SIH,可改用VL6。
- 加载TRITC-葡聚糖的细胞(图1B).
- 将葡聚糖用所使用的培养基稀释至1 mg/mL(在评估摄取能力极低的细胞时,可将其浓度提高至2.5–5 mg/mL)。加入 50 μL 向每个孔中加入(终浓度为 0.5 mg/mL TRITC-葡聚糖),并将培养板放回 22 °C 孵育1 h,此时葡聚糖已显著积累,但尚未开始胞吐。
注意: 使用移液器助管器可加快此步骤的操作速度,并减少误差。
- 将葡聚糖用所使用的培养基稀释至1 mg/mL(在评估摄取能力极低的细胞时,可将其浓度提高至2.5–5 mg/mL)。加入 50 μL 向每个孔中加入(终浓度为 0.5 mg/mL TRITC-葡聚糖),并将培养板放回 22 °C 孵育1 h,此时葡聚糖已显著积累,但尚未开始胞吐。
- 准备细胞用于流式细胞术(图1C).
- 洗涤前立即加入 50 μL 将含葡聚糖的培养基加入至0分钟摄取对照组。
- 弃去培养基,用纸巾轻轻吸干。将培养板浸入冰冻的KK缓冲液中洗涤2,然后倾倒。
注意: 一些具有黏附缺陷的菌株可能在此步骤中脱落, 例如 Talin 两个同源基因的敲除(talA-/talB-)25处理贴壁能力较差的细胞系时需格外小心,必要时吸取培养基。 - 添加 100 μL 冰冷的含5 mM叠氮化钠的KK溶液2MC(KK2 + 2 mM MgSO₄4 和 100 μM CaCl2).
警告:叠氮化钠具有极高毒性。操作粉末时需佩戴防尘口罩和护目镜。务必佩戴手套和实验服。避免接触热源,切勿与酸混合。
注意:细胞迅速脱落,且胞吐作用被抑制24可以使用显微镜进行检查。
- 通过流式细胞术测量流体摄取
- 若计划将相对值转换为绝对值,请使用微球来标准化流式细胞仪的设置(参见第2节)。或者,可使用第2节中经葡聚糖负载的细胞,以确保前向散射和侧向散射设置适当,从而有效分离细胞图2A),确保机器未被堵塞,(图2B)并调整参数以测量内化的荧光(图 2C).
- 连接高通量采样系统并加载微孔板。设置检测荧光的程序(对于TRITC-葡聚糖,使用黄绿色激光激发,并在582 nm通道或类似波长处检测) 65 μL 细胞悬液并上样。
- 分析流式细胞术结果
- 使用前向散射和侧向散射对细胞进行门控(图 2A). 使用统计选项计算细胞的中位荧光强度。利用一个样本设定这些参数,并将其应用于所有样本。
注意:使用不同的突变体或抑制剂时,前向散射/侧向散射图谱在不同样本之间可能存在差异。 - 计算每种条件下三个孔的平均值,并减去0分钟摄取对照值。可使用第2节中确定的方程将其转换为定量值,或对对照组进行归一化处理。
- 使用前向散射和侧向散射对细胞进行门控(图 2A). 使用统计选项计算细胞的中位荧光强度。利用一个样本设定这些参数,并将其应用于所有样本。
4. 进行流体摄取时间进程实验
- 按照第3节的方法进行细胞接种,每种时间点、菌株/条件设置三个孔。
- 依次向不同孔中加入含葡聚糖标记的培养基。典型的时间进程在 0、30、60、90、120 和 180 分钟测量液体摄取量。首先向 180 分钟时间点的孔中加入含葡聚糖的培养基,60 分钟后再向 120 分钟时间点的孔中加入。 等等。 (图3A).
- 在 0 分钟时,加入 50 μL 加入含葡聚糖的培养基后,立即倾倒并按照第3.3节所述洗涤平板。按第3.5节所述进行分析。
5. 剂量反应曲线
- 按照第3节所述方法接种细胞,每种菌株和条件设三个孔。
- 将目标化合物稀释至含有 1 mg/mL 葡聚糖的培养基中 双倍于所需的最大终浓度 化合物的溶液。准备第二支试管,其中含有与第一支试管相同比例溶剂的葡聚糖培养基。涡旋混匀。
- 将目标化合物进行系列稀释 200 μL 每样品含葡聚糖的培养基(图4A。涡旋混匀。加入 50 μL 向每个样品孔中加入适量培养基,孵育1小时。
- 按照第3.3节及后续步骤所述进行洗涤和分析。
6. 吞噬作用与膜摄取
- 为检测膜摄取,按第3节所述方法准备细胞。加入50 μL含有20 μM FM 1-43的培养基,使终浓度为10 μM。加载后,按第3.3节所述方法洗涤并制备细胞用于流式细胞术。使用蓝色激光激发,在585 nm通道或类似通道中检测。
注意:由于膜运输比液相内吞更快,因此使用10分钟作为检测时间点比1小时更合适26。也可使用仅在掺入膜中后才产生荧光的替代染料。 - 使用荧光标记的微球或细菌来检测吞噬作用。不能使用荧光酵母,因为其前向散射和侧向散射无法与Dictyostelium区分开24。按第3节所述设置细胞,并按文献所述方法进行分析27。
- 为检测微球吞噬作用,按第3.2节所述将黄绿色标记的微球加入至终浓度为5 × 10⁷ 个微球/mL(1.75和2 μm)或1 × 10⁸ 个微球/mL(1和1.5 μm),作用1小时后,按第3.3节所述洗涤并制备细胞用于流式细胞术。使用蓝色激光激发,在525 nm通道或类似通道中检测。
注意:过高浓度会导致细胞脱落。 - 为检测细菌吞噬作用,按第3.2节所述加入Texas-Red标记的Escherichia coli生物颗粒,使细菌终浓度为1 × 10⁸ 个/mL,作用1小时后,按第3.3节所述洗涤并制备细胞用于流式细胞术。使用黄绿色激光激发,在610 nm通道或类似通道中检测。
- 为检测微球吞噬作用,按第3.2节所述将黄绿色标记的微球加入至终浓度为5 × 10⁷ 个微球/mL(1.75和2 μm)或1 × 10⁸ 个微球/mL(1和1.5 μm),作用1小时后,按第3.3节所述洗涤并制备细胞用于流式细胞术。使用蓝色激光激发,在525 nm通道或类似通道中检测。
结果
一旦完成该技术操作,细胞已加载葡聚糖并准备进行分析(图1),需确保流式细胞仪未被堵塞,并调整前向散射/侧向散射图谱,使其呈现如图2A所示的细胞形态。若仪器发生堵塞,图谱将更接近图2B所示状态,此时必须先解除堵塞方可继续操作。应确认参数显示:对照无菌细胞在较长时间点具有较高的胞内葡聚糖荧光信号,而在较短时间点信号较低(图2C)。
在比较突变体之间的差异时,通常会出现三种表型之一:突变体可能具有正常的液体吸收能力,可能存在部分缺陷,或者液体吸收功能可能完全丧失。 图 2D 显示一个具有正常液体摄取能力的菌株,此处为标准实验室菌株Ax2,以及一个液体摄取能力下降约50%的突变株(Ax2 rasG-14)以及一个流体摄取功能丧失的菌株(Ax3 gefB-28)。获取平均中位流体摄取量(第3.5节),并利用该值计算内化流体的体积(如 图3B)或将数据与对照组进行比较(如在 图4B 和 4C).
进行流体摄取的时间过程实验时(如图3A所示),内化的荧光信号应在60–90分钟内逐渐增加,之后由于葡聚糖开始被胞吐,信号达到平台期(图3B)。因此,在比较不同突变体或条件下的巨胞饮作用时,选择60分钟作为标准时间点,可获得良好的信号强度,且不会因胞吐作用导致信号丢失。对于胞吐作用严重受阻的突变体,可能需要更长时间才能达到平台期29。
当使用对巨胞饮作用有效的抑制剂处理细胞时 盘基网柄菌 (设置方式同 图4A),在大多数情况下,随着抑制剂浓度升高,1小时内被内化的葡聚糖将几乎降至零图4B)。然而,某些抑制剂可能无法达到100%的有效性, 例如 诺考达唑急性添加时仅能抑制约50%的巨胞饮液体摄取图 4C)。如果抑制剂无效,细胞将以内化与对照组相似量的葡聚糖,且不会观察到荧光强度的降低。该技术可快速筛选大量不同种类及浓度的抑制剂对巨胞饮作用介导的液体摄取的影响,从而缩短优化抑制剂处理条件所需的时间。
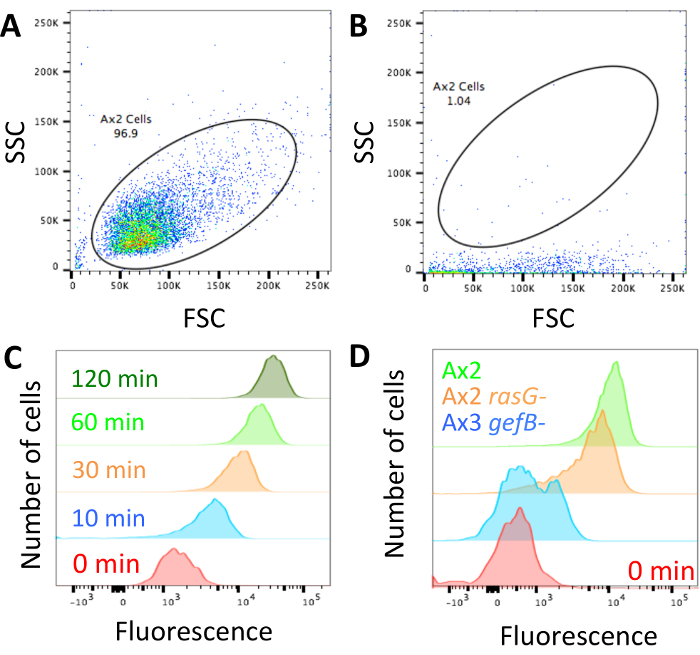
图 2:流式细胞仪的设置及代表性数据。(A) 应设置细胞的前向散射(FSC)和侧向散射(SSC)图谱,以便于清晰区分细胞。图中展示了 Ax2 细胞应有的典型形态。(B) 如果流式细胞仪发生堵塞(如此例所示),细胞的侧向散射信号会非常低。此时激光无法正常激发荧光染料,必须在继续实验前排除堵塞。仪器堵塞期间获得的任何数据均应舍弃。(C) 荧光信号的设置应确保 0 分钟摄取样品的荧光强度较低,并随着细胞在荧光培养基中孵育时间的延长而升高,如此例引自 Williams & Kay 201824 所示。(D) 细胞在 TRITC 葡聚糖中孵育 1 小时后的示例:具有正常巨胞饮作用的细胞(Ax2,绿色)、巨胞饮作用减弱的细胞(Ax2 rasG-,HM172614,橙色)以及巨胞饮作用完全丧失的细胞(Ax3 gefB-,HM177628,蓝色)。请点击此处查看该图的放大版本。
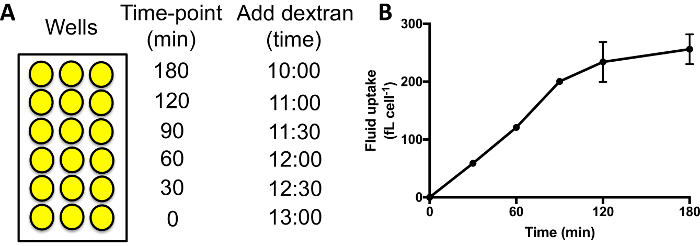
图3:在96孔板中进行流体摄取的时间进程实验。(A) 应依次向每组样品中添加葡聚糖,并确保所有样品的添加结束时间相同。随后洗涤孔板,消化细胞并利用流式细胞术检测内化荧光强度。此处展示了葡聚糖添加时间的示例。(B) 在96孔板中进行的Ax2细胞流体摄取时间进程实验结果。数据来源于Williams & Kay 201824,误差条表示三次独立实验的标准误差。请点击此处查看该图的放大版本。
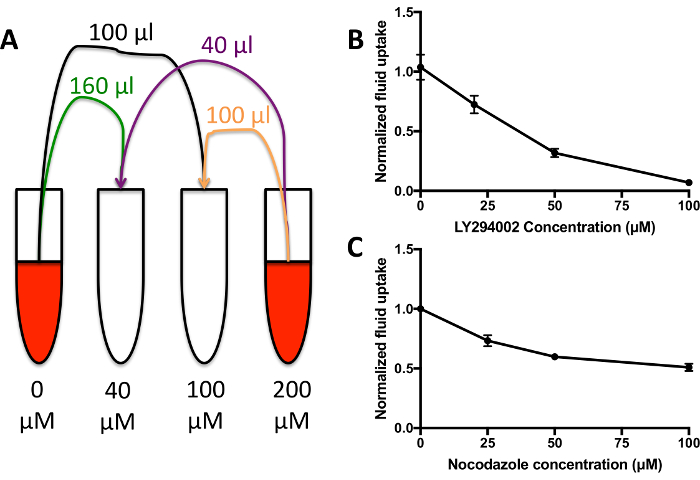
图 4:流体摄取剂量反应曲线。(A) 将目标化合物(本例中为PI3K抑制剂LY294002)加入含有1 mg/mL TRITC-葡聚糖的HL5培养基中,使其浓度为所需最终最高浓度的两倍。再与仅含溶剂的HL5生长培养基(含1 mg/mL葡聚糖)按不同比例混合,为每种条件制备200 µL培养基的系列稀释液。正常加入孔板中孵育1小时,随后洗涤并测定细胞内化荧光强度。(B) Ax2细胞在含LY294002培养基(来自A)中孵育后的流体摄取剂量反应曲线。改编自Williams & Kay 201824。流体摄取量以未处理对照组为基准进行归一化。误差棒表示三次独立实验的标准误差。(C) Ax2细胞在含诺考达唑培养基中孵育后的流体摄取剂量反应曲线。改编自Williams & Kay 201824。流体摄取量以未处理对照组为基准进行归一化。误差棒表示三次独立实验的标准误差。 请点击此处查看该图的放大版本。
讨论
与其他评估流体摄取的方法相比,细胞洗涤法通量较低 原位 以及使用叠氮化钠脱离细胞是本方法中的关键步骤,可实现对大胞饮作用、膜摄取或吞噬作用的高通量检测 盘基网柄菌由于细胞附着在表面而培养基未附着,因此可先弃去周围的培养基,再将细胞浸入缓冲液中洗涤并再次弃去液体,此过程中细胞仍保持附着状态。叠氮化钠可耗尽细胞内的ATP并使膜去极化30随后用于解离细胞,同时在不影响细胞活力的情况下抑制胞吐作用24.
尽管使用流式细胞术快速准确地测量盘基网柄菌(Dictyostelium)的大胞饮作用可高效评估液体摄取量,但若要阐明特定菌株或条件下液体摄取发生变化的原因,仍需借助显微镜进行进一步研究24。还应注意的是,以往发表的研究结果在某些情况下显示,突变菌株在固体表面培养(如本实验所述)或在振荡悬浮培养(如标准方案所述)时,其液体摄取量存在差异31。使用本方法可能导致在极少数情况下遗漏明显的液体摄取缺陷。此外,在测量吞噬作用时,只能使用低浓度的颗粒。该技术所能测定的吞噬作用最大速率远低于实际最大值,尽管仍可用于检测不同菌株和条件之间在吞噬作用上的相关差异24。若要确定吞噬作用的最大速率,必须采用另一种方案在振荡悬浮培养条件下进行摄取测量27。已吞噬微珠的细胞侧向散射增强,因此在设置流式细胞仪时应相应地进行校正。
流式细胞术可用于测量哺乳动物细胞的液体摄取32,但与其他内吞途径相比,液体相摄取的比例高于在Dictyostelium中观察到的情况,这令人担忧。此外,通常使用37 °C的胰蛋白酶将细胞解离,这可能导致已内化的葡聚糖进一步进行内吞作用。冰冻的叠氮化钠不会使巨噬细胞从表面脱落(Williams,未发表观察),因此在未经进一步优化的情况下,该技术不适用于哺乳动物细胞。
高通量测量巨胞饮作用有望用于快速、低成本地筛选抑制剂、基因突变或基因敲降对巨胞饮作用的影响 盘基网柄菌 细胞。突变体应始终仅与其直接亲本进行比较。如果读者事先没有特定偏好 盘基网柄菌 菌株,非无菌系菌株如 DdB 或 NC4 更为 "野生型" 比无菌菌株更具可操作性,并且可像无菌菌株一样被有效操控33否则,Ax2 菌株是基因组重复最少的无菌菌株34,而许多Ax4菌株是Talin A基因敲除株,应尽可能避免使用23大多数先前发表的菌株可从 Dicty Stock Center 订购35.
该技术使得研究不同条件、抑制剂和突变对巨胞饮作用的影响具备了比以往更广泛的探究可能性 盘基网柄菌.
披露
作者声明无利益冲突。
致谢
我们感谢英国医学研究理事会为RRK提供的核心资金(U105115237)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| LSR_II 流式细胞仪 | BD Biosciences | - | 其他流式细胞仪也可实现此功能,例如 BD 公司的 LSRFortessa |
| TRITC-葡聚糖(155 kDa) | Sigma-Aldrich | T1287 | 其他不可淬灭的葡聚糖及其他分子量也可使用 |
| HL5 培养基 | Formedium | HLGCFG | |
| 96 孔组织培养板 | Corning | 3596 | 任何平底、经组织培养处理的 96 孔板均可使用 |
| 硫酸二氢链霉素 | Sigma-Aldrich | PHR1517 | |
| 氨苄青霉素钠 | Formdium | AMP50 | |
| 硫酸卡那霉素 | Sigma-Aldrich | 60615 | |
| 叠氮化钠 | VWR | 103694M | |
| 硫酸镁水合物 | VWR | 25169.295 | |
| 二水合氯化钙 | VWR | 1.02382.0250 | |
| 磷酸二氢钾 | VWR | 1.04877.1000 | |
| 磷酸氢二钾 | VWR | 1.05104.1000 | |
| 荧光分光光度计 | Perkin-Elmer | LS 50 B | |
| FM1-43 | Thermofisher | T35356 | |
| Fluoresbrite YG-羧基微球 1.00 µm | Polysciences | 15702-10 | |
| Fluoresbrite YG-羧基微球 1.50 µm | Polysciences | 09719-10 | |
| Fluoresbrite YG-羧基微球 1.75 µm | Polysciences | 17687-5 | |
| Fluoresbrite YG-羧基微球 2.00 µm | Polysciences | 09847-5 | |
| Texas Red E. coli 生物颗粒 | Thermofisher | E2863 | |
| Flow-set 荧光微球 | Beckman Coulter | 6607007 | 校准微珠 |
| SM 琼脂 | Formedium | SMACFG | |
| 0.22 µm 注射器滤器 | Elkay 实验室产品 | E25-PS22-50S | |
| 10 mL 注射器 | Becton Dickinson | 302188 | |
| 圆底聚苯乙烯管 | Corning | 352058 | 使用可适配流式细胞仪的管子 |
| 70 µm 细胞筛 | Falcon | 352350 | |
| 50 mL 离心管 | Sarstedt | 62.547.004 | |
| 多通道重复移液器 | Eppendorf | M4-SK | |
| 5 mL 多通道重复移液器吸头 | Eppendorf | 30089650 | |
| DMSO | Sigma-Aldrich | D2650-100ML | |
| LY294002 | Cayman Chemical Company | 70920 | |
| 诺考达唑 | Sigma-Aldrich | M1404-2MG |
参考文献
- Bloomfield, G., Kay, R. R. Uses and abuses of macropinocytosis. Journal of Cell Science. 129 (14), 2697-2705 (2016).
- Sallusto, F., Cella, M., Danieli, C., Lanzavecchia, A. Dendritic cells use macropinocytosis and the mannose receptor to concentrate macromolecules in the major histocompatibility complex class II compartment: downregulation by cytokines and bacterial products. Journal of Experimental Medicine. 182 (2), 389-400 (1995).
- Hardt, W. D., Chen, L. M., Schuebel, K. E., Bustelo, X. R., Galan, J. E. S. typhimurium encodes an activator of Rho GTPases that induces membrane ruffling and nuclear responses in host cells. Cell. 93 (5), 815-826 (1998).
- Commisso, C., et al. Macropinocytosis of protein is an amino acid supply route in Ras-transformed cells. Nature. 497 (7451), 633-637 (2013).
- Munch, C., O'Brien, J., Bertolotti, A. Prion-like propagation of mutant superoxide dismutase-1 misfolding in neuronal cells. Proceedings of the National Academy of Sciences of the United States of America. 108 (9), 3548-3553 (2011).
- Hacker, U., Albrecht, R., Maniak, M. Fluid-phase uptake by macropinocytosis in Dictyostelium. Journal of Cell Science. 110, 105-112 (1997).
- Dowrick, P., Kenworthy, P., McCann, B., Warn, R. Circular ruffle formation and closure lead to macropinocytosis in hepatocyte growth factor/scatter factor-treated cells. European Journal of Cell Biology. 61 (1), 44-53 (1993).
- Buczynski, G., et al. Inactivation of two Dictyostelium discoideum genes, DdPIK1 and DdPIK2, encoding proteins related to mammalian phosphatidylinositide 3-kinases, results in defects in endocytosis, lysosome to postlysosome transport, and actin cytoskeleton organization. Journal of Cell Biology. 136, 1271-1286 (1997).
- Araki, N., Johnson, M. T., Swanson, J. A. A role for phosphoinositide 3-kinase in the completion of macropinocytosis and phagocytosis by macrophages. Journal of Cell Biology. 135 (5), 1249-1260 (1996).
- Araki, N., Egami, Y., Watanabe, Y., Hatae, T. Phosphoinositide metabolism during membrane ruffling and macropinosome formation in EGF-stimulated A431 cells. Experimental Cell Research. 313 (7), 1496-1507 (2007).
- Clark, J., et al. Dictyostelium uses ether-linked inositol phospholipids for intracellular signalling. The EMBO Journal. 33 (19), 2188-2200 (2014).
- Hoeller, O., et al. Two distinct functions for PI3-kinases in macropinocytosis. Journal of Cell Science. 126, 4296-4307 (2013).
- Bar-Sagi, D., Feramisco, J. R. Induction of membrane ruffling and fluid-phase pinocytosis in quiescent fibroblasts by ras proteins. Science. 233 (4768), 1061-1068 (1986).
- Veltman, D. M., et al. A plasma membrane template for macropinocytic cups. Elife. 5, e20085(2016).
- West, M. A., Prescott, A. R., Eskelinen, E. L., Ridley, A. J., Watts, C. Rac is required for constitutive macropinocytosis by dendritic cells but does not control its downregulation. Current Biology. 10 (14), 839-848 (2000).
- West, M. A., Bretscher, M. S., Watts, C. Distinct endocytotic pathways in epidermal growth factor-stimulated human carcinoma A431 cells. Journal of Cell Biology. 109, 2731-2739 (1989).
- Canton, J., et al. Calcium-sensing receptors signal constitutive macropinocytosis and facilitate the uptake of NOD2 ligands in macrophages. Nature Communications. 7, 11284(2016).
- Commisso, C., Flinn, R. J., Bar-Sagi, D. Determining the macropinocytic index of cells through a quantitative image-based assay. Nature Protocols. 9 (1), 182-192 (2014).
- Clarke, M., Kohler, J., Heuser, J., Gerisch, G. Endosome fusion and microtubule-based dynamics in the early endocytic pathway of Dictyostelium. Traffic. 3, 791-800 (2002).
- Pacitto, R., Gaeta, I., Swanson, J. A., Yoshida, S. CXCL12-induced macropinocytosis modulates two distinct pathways to activate mTORC1 in macrophages. Journal of Leukocyte Biology. 101 (3), 683-692 (2017).
- Rivero, F., Maniak, M. Quantitative and microscopic methods for studying the endocytic pathway. Methods in Molecular Biology. , 423-438 (2006).
- Bacon, R. A., Cohen, C. J., Lewin, D. A., Mellman, I. Dictyostelium discoideum mutants with temperature-sensitive defects in endocytosis. Journal of Cell Biology. 127, 387-399 (1994).
- Basu, S., Fey, P., Jimenez-Morales, D., Dodson, R. J., Chisholm, R. L. dictyBase 2015: Expanding data and annotations in a new software environment. Genesis. 53 (8), 523-534 (2015).
- Williams, T. D., Kay, R. R. The physiological regulation of macropinocytosis during Dictyostelium growth and development. Journal of Cell Science. 131 (6), (2018).
- Tsujioka, M., et al. Overlapping functions of the two talin homologues in Dictyostelium. Eukaryotic Cell. 7 (5), 906-916 (2008).
- Aguado-Velasco, C., Bretscher, M. S. Circulation of the plasma membrane in Dictyostelium. Molecular Biology of the Cell. 10, 4419-4427 (1999).
- Sattler, N., Monroy, R., Soldati, T. Quantitative analysis of phagocytosis and phagosome maturation. Methods in Molecular Biology. 983, 383-402 (2013).
- Wilkins, A., Chubb, J., Insall, R. H. A novel Dictyostelium RasGEF is required for normal endocytosis, cell motility and multicellular development. Current Biology. 10, 1427-1437 (2000).
- Thomason, P. A., King, J. S., Insall, R. H. Mroh1, a lysosomal regulator localized by WASH-generated actin. Journal of Cell Science. 130 (10), 1785-1795 (2017).
- van Duijn, B., Vogelzang, S. A., Ypey, D. L., van der Molen, L. G., van Haastert, P. J. M. Normal chemotaxis in Dictyostelium discoideum cells with a depolarized plasma membrane potential. Journal of Cell Science. 95, 177-183 (1990).
- Novak, K. D., Peterson, M. D., Reedy, M. C., Titus, M. A. Dictyostelium myosin I double mutants exhibit conditional defects in pinocytosis. Journal of Cell Biology. 131, 1205-1221 (1995).
- Mercer, J., Helenius, A. Vaccinia virus uses macropinocytosis and apoptotic mimicry to enter host cells. Science. 320 (5875), 531-535 (2008).
- Paschke, P., et al. Rapid and efficient genetic engineering of both wild type and axenic strains of Dictyostelium discoideum. PLoS One. 13 (5), e0196809(2018).
- Bloomfield, G., Tanaka, Y., Skelton, J., Ivens, A., Kay, R. R. Widespread duplications in the genomes of laboratory stocks of Dictyostelium discoideum. Genome Biology. 9 (4), R75(2008).
- Fey, P., Dodson, R. J., Basu, S., Chisholm, R. L. One stop shop for everything Dictyostelium: dictyBase and the Dicty Stock Center in 2012. Methods in Molecular Biology. 983, 59-92 (2013).
重印与许可
