本文介绍一种从拟南芥(Arabidopsis)叶片中分离完整叶绿体及其三个主要亚区室(被膜、基质和类囊体)的方法,该方法结合了差速离心、连续Percoll梯度离心和不连续蔗糖梯度离心。该方法可用于通过免疫印迹和蛋白质组学手段进行蛋白质的亚叶绿体及亚细胞定位研究。
本文内容
摘要
摘要
叶绿体是植物细胞的主要组成部分。这类质体具有多种关键功能,例如碳、硫和氮的同化以及重要代谢物的合成。这些细胞器包含以下三个关键亚区室:被膜由双层膜构成,包裹整个细胞器,调控质体与其他细胞区室之间的物质交换;基质是叶绿体的可溶相,是二氧化碳转化为碳水化合物的主要场所;类囊体膜是内部膜系统,由基粒(扁平压缩的囊状结构)和基质类囊体(较松散的结构)组成,是进行放氧型光合作用的部位。本实验方案逐步描述了利用差速离心和Percoll梯度分离完整叶绿体所需的纯化步骤。 拟南芥,以及利用蔗糖梯度将其分离为三个亚区室(即, 被膜、基质和类囊体)。本方案还提供了如何利用各叶绿体亚区室相关标记蛋白来评估这些组分纯度的操作说明。本文所述方法不仅适用于通过免疫印迹进行蛋白质的亚质体定位,也适用于亚细胞和亚质体蛋白质组学及其他相关研究。
引言
叶绿体是植物细胞的主要组成部分。它们起源于一种蓝细菌祖先,该祖先在进化过程中经历了内共生,并最终演化为一种细胞器1,2。这类细胞器包含三个主要区室(图1)。被膜系统由包围细胞器的内膜和外膜组成。这种双层膜系统含有多种参与脂质和色素代谢的酶,主要负责调控质体与细胞质之间的物质交换。它包含多种转运系统,可介导细胞核编码蛋白的输入,以及细胞质与叶绿体之间离子和代谢物的交换,从而调节植物细胞的重要代谢功能3,4。基质是叶绿体的可溶性相,其中含有卡尔文循环(CO2同化)相关的酶、多种代谢物(包括氨基酸和维生素)的合成酶,以及质体的转录和翻译机制。类囊体膜是一种高度组织化的内部膜网络,光合作用的光反应在此进行。因此,叶绿体是多种重要代谢途径发生的关键场所5。
为了阐明调控叶绿体动态与生理功能的新机制,确定叶绿体蛋白的亚叶绿体定位对于支持靶向研究至关重要,这有助于更深入理解模式生物中蛋白质的功能6为了获得这些蛋白质真实的亚叶绿体定位,因此必须从高度纯化的亚叶绿体组分(被膜、基质和类囊体)开始。在此背景下,本实验方案的目的是从完整叶绿体中进行纯化 拟南芥 利用差速离心和连续Percoll梯度分离叶绿体,并通过不连续蔗糖梯度将其分馏为三个亚区室(即, 被膜、基质和类囊体)。本文所述方法还提供了利用各叶绿体亚区室相关标记蛋白来评估纯化后亚细胞器组分纯度的操作指南。该方案对于通过免疫印迹技术进行蛋白质的亚质体定位,以及利用基于质谱(MS)的蛋白质组学方法对纯化组分进行后续分析具有重要价值。
方案
1. 缓冲液、储备液和梯度的制备
- 配制以下储存液,可在 4 °C 下保存长达 6 个月。
- 配制 1 L 三(羟甲基)甲基甘氨酸(Tricine)缓冲液(1 M,pH 8.4)和 Tricine 缓冲液(1 M,pH 7.6)。通过加入 KOH 颗粒调节 pH。
- 配制 1 L 乙二胺四乙酸(EDTA,0.5 M,pH 8)和 3-(N-吗啉代)丙磺酸(MOPS)缓冲液(1 M,pH 7.8)。通过加入 NaOH 颗粒调节 pH。
- 配制 50 mL 氯化镁(MgCl2)溶液(1 M)。
- 配制 50 mL 蛋白酶抑制剂溶液:异丙醇配制的苯甲基磺酰氟(PMSF,100 mM)、盐酸苄胺(100 mM)和 ε-氨基己酸(50 mM)。
注意:PMSF 和氨基己酸在 4 °C 下可于溶液中稳定保存数月,而盐酸苄胺溶液应保存于 -20 °C。
- 在实验前一天配制以下溶液,并将所有溶液置于 4 °C 保存。
- 配制 4 L 研磨介质(pH 8.4),含 Tricine-KOH(20 mM,pH 8.4)、山梨醇(0.4 M)、EDTA(10 mM,pH 8)和 NaHCO3(10 mM)。通过加入 NaOH 颗粒调节 pH。使用前加入牛血清白蛋白(BSA)至终浓度 0.1%(w/v),充分混匀。
- 配制 500 mL 洗涤介质(2 倍浓度,pH 7.6),含 Tricine-KOH(20 mM,pH 7.6)、山梨醇(0.8 M)、MgCl2(5 mM)和 EDTA(2.5 mM)。通过加入 NaOH 颗粒调节 pH。在 Percoll 梯度溶液配制完成后,将其稀释以获得 1 倍浓度的洗涤介质(1 x)。
- 通过将 Percoll 与 2 倍浓度洗涤介质等体积混合,配制 200 mL 用于叶绿体纯化的 Percoll 梯度溶液,得到终浓度为 50%(v/v)Percoll / 0.4 M 山梨醇的溶液。
- 通过将 MOPS(10 mM,pH 7.8)、MgCl2(4 mM)与不同浓度的蔗糖(0.3 M、0.6 M 和 0.93 M)混合,配制 50 mL 用于叶绿体分级分离的蔗糖溶液。
- 在开始实验前,配制以下梯度和缓冲液。
- 通过在 4 °C 下以 38,700 × g 离心 55 分钟,制备六管 Percoll 梯度(每管含 30 mL 50% Percoll / 0.4 M 山梨醇)。关闭离心机刹车,以防止梯度混合。离心后,将含有预成型梯度的离心管置于冷室中保存,直至使用。
- 制备四管蔗糖梯度,每管由以下三层蔗糖溶液组成:底部为 3 mL 0.93 M 蔗糖,中间为 2.5 mL 0.6 M 蔗糖,顶部为 2 mL 0.3 M 蔗糖。使用蠕动泵小心逐层叠加,从底部 0.93 M 开始,至顶部 0.3 M 结束。
- 配制 50 mL 用于叶绿体裂解的低渗介质,含 MOPS(10 mM,pH 7.8)、MgCl2(4 mM)、PMSF(1 mM,用异丙醇配制)、盐酸苄胺(1 mM)和 ε-氨基己酸(0.5 mM)。将该缓冲液置于冰上保存,直至使用。
- 配制 50 mL 膜洗涤缓冲液,含 MOPS(10 mM,pH 7.8)、PMSF(1 mM)、盐酸苄胺(1 mM)和 ε-氨基己酸(0.5 mM)。将该缓冲液置于冰上保存,直至使用。
2. 培养与收获 拟南芥 叶片
- 用于生长 拟南芥 植物,准备4个大型塑料盘(总面积为0.5至1) m2的 拟南芥 通过播种30株植物 每盘播种量为 mg。培养 拟南芥 植物在12小时光照/12小时黑暗循环条件下培养5周,光照强度为150 μM,昼温23 °C,夜温18 °C m-2 s-1.
- 实验前将植物置于黑暗且低温的房间(4 °C)中过夜,以减少叶绿体中淀粉颗粒的含量。
- 预先称量一个1 L烧杯,然后将其置于冰上,再开始采集叶片材料。
- 收获 拟南芥 通过避免使用土壤(堆肥)来获取叶片。重新称量烧杯并记录组织重量。
注意:四个托盘预计可获得400至500克叶片材料。 - 在低温室中,使用2 L研磨缓冲液(使用前加入BSA),以高速在搅拌器中匀浆叶片,重复三次,每次2秒。
- 在低温房间中,使用四层纱布和一层尼龙滤布过滤匀浆。轻轻挤压纱布/尼龙滤布内的匀浆叶片,以充分提取全部液体。
- 将搅拌杯中剩余的组织回收,进行第二次提取。使用2 L研磨液和新的4-5层纱布(在冷室中)重复步骤2.5和2.6。
3. 使用差速离心法纯化粗制叶绿体
- 将粗制细胞提取物均分至六个500 mL的瓶子中,离心前将瓶子置于冰上。一旦达到最高速度(2,070 × g),立即开始离心,持续2分钟(最大加速度和最大刹车,4 °C)。
- 轻柔地弃去上清液。
- 使用水泵吸除残留的上清液,并将含有浓缩粗制叶绿体的沉淀物保持在冰上。
- 用毛笔或弯头塑料刮勺,加入少量洗涤液(1×)(合并后的叶绿体悬浮液最终体积 = 36 mL),轻柔重悬沉淀。每个瓶子使用10 mL移液器加入3 mL洗涤液。
注意:请勿使用尖端过细的移液器,以免破坏叶绿体。也可用剃刀片将移液器蓝色吸头的尖端剪去,以形成较大的开口。 - 使用10 mL移液器将重悬的叶绿体收集至一个离心管中。轻轻颠倒混匀管内液体,以获得均匀的悬浮液,随后用于加载至Percoll梯度中。
4. 连续 Percoll 梯度中完整叶绿体的纯化
- 使用10 mL移液管将6 mL叶绿体悬浮液缓慢加至六个Percoll梯度的上层,避免叶绿体破裂。
- 使用摆桶转子在13,300 × g、4 °C条件下离心10分钟。
注意:加速度应缓慢,关闭刹车(或设置为慢速减速),以防止Percoll梯度混合。 - 使用水泵吸除含有破碎叶绿体和完整线粒体的上层相,然后用10 mL移液管收集下层相中完整的叶绿体(宽而深绿色的条带)。注意避免将位于管底的细胞核和细胞碎片与完整叶绿体一同吸出(图2A)。
- 用洗涤缓冲液(1×)将完整叶绿体悬浮液稀释3–4倍。一旦达到最高速度(2,070 × g,4 °C),立即离心2分钟(最大加速度,开启刹车)。
- 小心弃去上清液。
- 使用水泵彻底吸除残留的上清液,将浓缩的完整叶绿体沉淀置于冰上保存。
- 在进行叶绿体裂解前,保留约1 mL完整叶绿体组分于洗涤液(1×)中,用于后续的十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)和蛋白质印迹分析。另取少量完整叶绿体用于测定蛋白浓度。将完整叶绿体组分保存于液氮中,以备后续实验使用。
5. 使用低渗缓冲液裂解完整叶绿体并利用不连续蔗糖梯度纯化叶绿体亚组分
- 通过将沉淀重悬于含有蛋白酶抑制剂的低渗缓冲液中,裂解纯化的完整叶绿体(最终体积不应超过12 mL)。
注意:从本步骤开始,可使用带细尖吸头的移液器(蓝色吸头),因为叶绿体完整性已不再重要(可反复吹打叶绿体悬液,直至沉淀完全重悬)。拟南芥(Arabidopsis)叶绿体非常脆弱(例如与豌豆叶绿体相比),在低渗缓冲液中孵育后几乎立即发生裂解。 - 使用蠕动泵,将3 mL裂解后的叶绿体溶液缓慢加至每个预先形成的蔗糖梯度顶部。
- 将梯度样品在超速离心机中于70,000 × g、4 °C条件下离心1小时。离心前使用低渗缓冲液对离心管进行配平。
- 小心吸取梯度上层相(每个梯度取3 mL)以回收可溶性基质蛋白(图2B)。取部分样品用于测定蛋白浓度7。将基质蛋白分装后储存于液氮中,用于后续实验。
- 使用水泵吸除每个梯度的剩余上层相,直至到达黄色条带。
- 用移液器收集黄色条带(即叶绿体外膜组分)(每个梯度约1 mL)。将所有外膜组分合并至同一离心管中。
- 使用水泵去除每个梯度中黄色条带以下至类囊体沉淀之间的剩余液体相。
6. 类囊体和包膜系统的洗涤与浓缩
- 用少量(2 mL)膜洗涤缓冲液(1×)(含蛋白酶抑制剂)重悬类囊体沉淀(绿色沉淀)。
- 将外膜和类囊体悬液用膜洗涤介质稀释3-4倍(调节体积至10 mL),在110,000 × g、4 °C条件下超速离心1小时。离心前使用膜洗涤缓冲液对离心管进行配平。
- 使用水泵小心吸除上清液。
- 向外膜沉淀中加入约100 µL膜洗涤缓冲液(含蛋白酶抑制剂)。取部分样品用于测定蛋白浓度7。将纯化的外膜组分在液氮中保存。
- 用3 mL膜洗涤缓冲液(含蛋白酶抑制剂)重悬类囊体沉淀。取部分样品用于测定蛋白浓度7。将类囊体膜组分在液氮中保存。
结果
纯化叶绿体及其亚细胞区室的连续操作步骤总结如下 图2Percoll 梯度图 2A)可区分完整叶绿体与破碎的叶绿体及线粒体(位于梯度上层)或细胞核与细胞碎片(位于梯度下层)。通过低渗休克破裂经Percoll纯化的细胞器后,将所得组分在蔗糖梯度中进行分离(图2B)。基质(叶绿体的可溶性部分)漂浮在蔗糖梯度的表面。轻的外膜囊泡在0.6/0.93 M蔗糖界面处形成一条清晰的黄色条带并被收集。最重的类囊体膜囊泡则聚集在离心管底部。在回收、洗涤并浓缩两种膜组分后,对蛋白质进行定量,并通过SDS-PAGE分析所有四个组分的蛋白质组成。图2C)。各泳道按等量蛋白质上样(每个纯化组分20 µg)。鉴于叶绿体中包膜蛋白仅占1%,而来自基质或类囊体的蛋白质各占50%,这往往会高估纯化包膜制备物受到其他叶绿体亚区室交叉污染的程度。然而,该方法可检测包膜组分中极微量的交叉污染蛋白。各区室的标志物(即, 丰富的蛋白质)在评估组分间交叉污染方面非常有帮助。实际上,类囊体和被膜膜组分中应仅含有极少量的核酮糖-1,5-二磷酸羧化酶/加氧酶大亚基(RBCL),该蛋白是基质中最丰富的蛋白质(50 kDa)。由于完整叶绿体在破裂后会丢失这种基质蛋白,因此可通过检测该蛋白的存在与否来区分破裂与完整的叶绿体。8光捕获复合体蛋白(LHCP)是分子量为25 kDa的丰富类囊体组分,其在被膜膜中的污染应极少(低于3%)9最后,磷酸丙糖转运蛋白(TPT)是一种30-kDa的蛋白质,由于其高度富集,仅在纯化的被膜组分中可见即, 与完整叶绿体提取物相比,包膜组分中的含量富集了50至100倍。根据此处所述方法,通过蛋白质印迹分析证实,叶绿体亚区室之间的交叉污染通常较少。图 2D) 利用针对三个亚区室已知标志物的抗体:来自基质的可溶性酮酸还原异构酶(KARI)、来自叶绿体被膜的铜离子ATP酶(HMA1)以及来自类囊体膜的捕光复合体蛋白(LHCP)。可通过免疫印迹和质谱分析两种方法对这三个亚区室之间的交叉污染进行定量。9尽管基质通常不会被被膜或类囊体组分污染,但纯化的被膜组分中含有3%的类囊体蛋白以及高达10%的基质蛋白。基质蛋白对类囊体膜的污染程度较低(低于1%),但类囊体中可能含有高达3%的被膜膜蛋白。因此,本方法不仅在确定叶绿体蛋白真实亚细胞器定位方面具有关键作用,还可有效避免因组分间交叉污染而导致的亚细胞器定位错误结论。
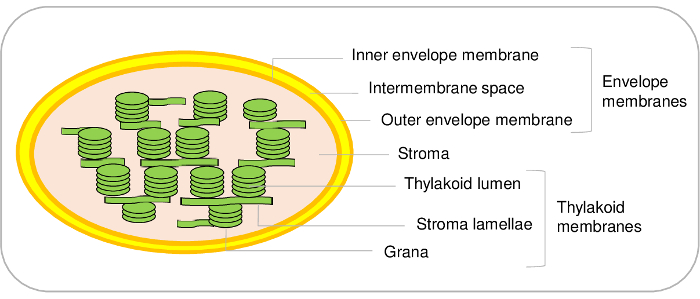
图1:叶绿体亚区室的代表性示意图。 请点击此处查看此图的放大版本。
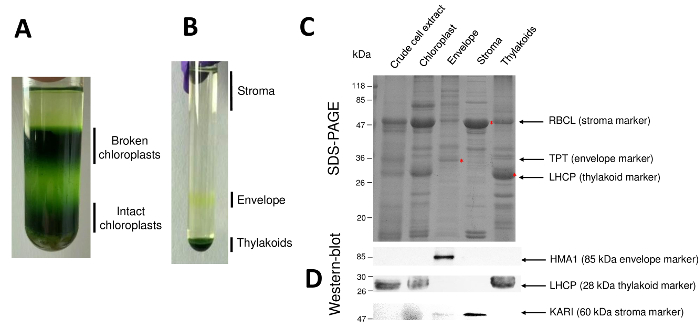
图 2:利用Percoll和蔗糖梯度纯化完整叶绿体及其三个主要亚区室。 A. Percoll梯度用于分离破碎与完整的叶绿体。B. 蔗糖梯度用于分离基质、被膜和类囊体组分。C. 来自完整叶绿体及其三个主要亚区室的代表性SDS-PAGE蛋白图谱,可显示各亚区室中丰富的标志蛋白。每道上样量为10 µg蛋白。分子量标志物:RBCL,RuBisCO的大亚基(基质标志物);TPT,磷酸/磷酸丙糖转运蛋白(被膜标志物);LHCP,捕光复合体蛋白(类囊体标志物)。D. Western印迹实验,用于检测各亚区室的特异性标志物(使用特异性抗体):叶绿体被膜铜离子ATP酶HMA110、类囊体膜上的捕光复合体蛋白LHCP11,以及基质中的酮酸还原异构酶KARI9。请点击此处查看该图的放大版本。
讨论
本文旨在详细说明用于纯化叶绿体(及其亚细胞区室)的逐步操作流程 拟南芥自近二十年前其完整基因组序列公布以及大量插入突变体资源向科研社区公开以来 拟南芥 现已被广泛接受为模式植物。然而,尽管该植物非常适合遗传学研究,植物科学家仍需为其发展相应的生物化学和生理学研究工具。已有方法可从菠菜等经典生物化学模式植物的叶片中分离出具有光合作用活性的叶绿体12 或豌豆13 因此需要进行调整。首个描述纯化的方案 拟南芥 叶绿体于1998年发表14,就在释放之前 拟南芥 基因组序列。几年后,出现了分离的简单方法 拟南芥 与旨在分析的叶绿体相容 体外 纯化细胞器中蛋白质的导入15,16然而,这些方法无法同时实现高纯度和保持所纯化叶绿体的光合作用活性。最近17建立了一种快速方法,该方法依赖于Percoll梯度的使用,能够保留拟南芥起始叶片中测得的光合速率的近90%。
本方案可用于纯化 拟南芥 叶绿体的纯度极高。事实上,对其他细胞区室污染物的免疫检测表明,所纯化的细胞器不含线粒体和质膜标志物。9,10该方案也适用于从多种材料中纯化叶绿体 拟南芥 生态型18,如哥伦比亚(Col)或瓦西里耶夫斯基亚(WS) 即, 用于基因组或表达序列标签(ESTs)测序项目的生态型,同时也用于产生T-DNA插入突变体 拟南芥换句话说,当需要进行蛋白质组学研究时,本方案适用于这两种参考生态型 拟南芥最后,采用本方案获得的叶绿体产量与从菠菜或豌豆叶片开始提取时获得的产量相似(即, 3%,该数值是通过比较Percoll纯化所得叶绿体中的叶绿素含量与起始叶片中总叶绿素含量而测定的。就蛋白质而言,当从500克5周龄植株中纯化细胞器时,叶绿体蛋白的产量接近50 mg 拟南芥 叶片
为了获得如此高的产量(以及保持叶绿体完整性),在使用本方案时需特别注意若干步骤。拟南芥的叶绿体是一种极为脆弱的结构(例如豌豆叶绿体则无此问题)。因此,在纯化过程中必须格外小心,以避免细胞器发生大规模破裂。叶绿体中淀粉颗粒的数量和大小对于制备完整叶绿体至关重要。事实上,在初始差速离心步骤中,旨在浓缩粗制叶绿体组分时,含有大淀粉粒的叶绿体通常会破裂12。因此,实验前应将植物置于黑暗且低温(4 °C)环境中过夜,以减少淀粉含量。
新使用本方案的研究人员可能会倾向于从较大量的叶片材料开始(来自老龄植株的大型莲座叶) 拟南芥 使用较大叶片的植株)以提高纯化叶绿体的回收率。然而,根据我们的经验,从幼嫩叶片(5周龄)开始是兼顾产量、纯度和所纯化细胞器完整性的最佳折中方案。事实上,过老的叶片富含酚类化合物,已被证明会对叶绿体的完整性产生负面影响。19.
最后,初始提取步骤(组织研磨)是另一个关键步骤。匀浆过程必须控制在几秒钟内。如上所述,新手可能会倾向于延长匀浆时间,以期显著提高细胞器的纯化得率。然而,尽管延长匀浆时间确实能从叶片中释放出更多物质,但粗提细胞提取物中破裂的叶绿体比例会迅速增加。由于介质中破裂叶绿体与完整叶绿体的比例过高,后续的纯化步骤(在Percoll梯度中分离)将受到严重影响,导致纯化得率意外降低。
已有特定的细胞器纯化方案,使得一系列基于高通量蛋白质组学的实验得以在叶绿体样品上开展。这些数据已公开于多个公共数据库中。6从而为该领域的生物学家提供了多种叶绿体蛋白精确的亚细胞(以及亚质体)定位信息。这一点对于被膜蛋白尤为显著,因为在这些分析之前,被膜蛋白的身份和定位大多未知;尽管被膜仅占叶绿体蛋白总量的1%–2%,是叶绿体中的次要组分,却在叶绿体代谢和生物发生中发挥关键作用。5,20. 利用本文所述方案,我们近期分析了叶绿体三个主要区室的组成 拟南芥 (即, 基质、类囊体和被膜系统9基于半定量蛋白质组学方法(谱图计数),我们能够评估数百种蛋白质在这三种叶绿体区室中的分布情况。
虽然本方案能够用于纯化叶绿体的三个主要区室 拟南芥,还可以区分叶绿体中的其他亚区室。事实上,包膜系统由内包膜和外包膜组成(图1)。然而,据我们所知,目前尚无一种方法可纯化自内膜和外膜 拟南芥 叶绿体仍有待确定。可从菠菜中纯化内膜和外膜包被21 或豌豆22 叶绿体。其主要限制是 拟南芥 主要源于起始材料的量有限。从500 g的起始材料开始 拟南芥 叶片(这已经需要1 m)2 在生长室中培养的表面培养物仅能纯化出100 µg的包膜蛋白。相比之下,从市场上获取5–10 kg的菠菜叶片则更为便捷,可用来纯化大量叶绿体8 最终从该材料中获得3至10 mg的包膜蛋白。
类囊体亚区室的情况也是如此。实际上,类囊体由光膜囊泡(基质片层)和致密结构(基粒)组成(图1)。已有特定的实验方案可用于区分拟南芥(Arabidopsis)中的这两个区室23,24。同样,基于定量蛋白质组学分析,我们近期对存在于这两个亚区室中的蛋白质进行了系统鉴定24。结合对文献的深入分析,这些方法有助于验证或提出数百种类囊体蛋白在质体内部亚定位的假设。然而,需要注意的是,在类囊体弯曲边缘还存在额外的膜微区。这些与类囊体膜永久性结合的脂蛋白亚区室,即质体小球,含有特定的一组蛋白质25。因此,使用本实验方案无法将这些特定蛋白质与其他类囊体组分区分开来。
一些真正的(已知的)被膜、基质或类囊体组分仍缺失于已检测到的蛋白质列表中。结合靶向的生物化学和免疫学分析,质谱灵敏度的持续提升将有助于重新审视叶绿体内容,以获得其各个亚区室组成的完整图谱。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到了法国国家农业研究院(INRA)植物生物学与育种部门以及Labex GRAL(ANR-10-LABX-49-01)联合授予IB的博士研究生奖学金资助。我们还要感谢ANR项目ANR-15-IDEX-02,感谢巴黎巴斯德研究所(IBPC Paris)的Olivier Vallon博士提供针对LHCP的抗体,以及格勒诺布尔LCVP实验室的Renaud Dumas博士提供针对KARI的抗体。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Percoll | GE Healthcare | 17089101 | |
| Tricine | Roth | 6977.2 | |
| 山梨醇 | Roth | 6213.1 | |
| 乙二胺四乙酸(EDTA) | Promega | H5032 | |
| NaHCO3 | Roth | 8551.1 | |
| 牛血清白蛋白(BSA) | Roth | 8076.5 | |
| MgCl2 | Roth | 2189.1 | |
| 苯甲基磺酰氟(PMSF) | Sigma | P7626 | |
| 苄脒 | Sigma | B6506 | |
| ε-氨基己酸 | Fluka | 21530 | |
| 3-(N-吗啉代)丙磺酸(MOPS) | Roth | 6979.3 | |
| 蔗糖 | Roth | 9286.2 | |
| 丙烯酰胺储备液:30%(w/v)丙烯酰胺,0.8%(w/v)双丙烯酰胺 | Roth | 3029.1 | |
| Tris | Fisher | BP152-5 | |
| 十二烷基硫酸钠(SDS) | Roth | 1057.1 | |
| 四甲基乙二胺(TEMED) | Sigma | T-8133 | |
| 过硫酸铵(APS) | Roth | 9592.1 | |
| 甘油 | Roth | 3783.1 | |
| 溴酚蓝 | USB | US12370 | |
| 甘氨酸 | Roth | 3908.3 | |
| 凝胶染色液 | Clini-sciences | GEN-QC-STAIN | |
| 乙醇 | CARLO ERBA | 528151 | |
| NaCl | Euromedex | 1112-A | |
| Triton X-100 | Promega | H5141 | |
| 脱脂奶粉 | Régilait | ||
| HCl | Fisher | H/1150/PB15 | |
| KOH 颗粒 | Sigma | 1.05012 | |
| NaOH 颗粒 | CARLO ERBA | 480507 | |
| 抗 HMA1 抗体 | Seigneurin-Berny et al, 2006 | 使用稀释比例为 1:1000 | |
| 抗 KARI 抗体 | Ferro et al, 2010 | 使用稀释比例为 1:1000 | |
| 抗 LHCP 抗体 | Vallon et al, 1991 | 使用稀释比例为 1:25,000 | |
| 对香豆酸 | Sigma | C-9008 | |
| 鲁米诺(3-氨基邻苯二甲酰肼) | Fluka | 9253 | |
| 二甲基亚砜(DMSO) | Sigma | D5879 | |
| 大型(30 cm × 45 cm)塑料容器 | Puteaux | 162135 | |
| A. thaliana 种子 | 每个容器约需 30 mg 种子 | ||
| 培养土 "Floragard" | Puteaux | 16311770 | |
| 生长室 | 12 小时光照周期,温度设定为 23°C(白天)/ 18°C(夜间),光照强度为 150 μmol/m2/s | ||
| 棉布或纱布 | Raffin | 70116 | 80 cm 见方 |
| 尼龙筛网,孔径 50 μm | Tripette et Renaud, Sailly Saillisel | 孔径 50 μm | |
| 电动搅拌器,三档变速,容量 1 加仑(4 L) | Waring Blender | ||
| 固定角转子 JLA-10.500(6 × 500 mL 塑料瓶) | Beckman Coulter | ||
| Beckman JA-20 转子 | Beckman Coulter | ||
| JA-20(6 × 50 mL 聚丙烯管) | Sorvall instruments | ||
| 摆动吊篮转子 JS-13.1(6 × 50 mL 聚碳酸酯管) | Beckman Coulter | ||
| SW 41 Ti 转子(6 × 13.2 mL 超透明管) | Beckman Coulter | ||
| SW 41 Ti 转子管(13.2 mL 超透明管) | Beckman Coulter | ||
| 超速离心机(Beckman L7) | Beckman Coulter | ||
| 离心机(Beckman JSE-06D18) | Beckman Coulter | ||
| 微型离心机 | Eppendorf 5415D 或同等型号 | ||
| 水泵通过塑料管连接巴斯德移液管 | |||
| 硝酸纤维素膜 | BA85, Schleicher and Schuell | ||
| 滤纸 | 3MM, Whatman, Maidstone | ||
| 液氮 | |||
| 蠕动泵 | Gilson | ||
| 蛋白电泳装置,含蛋白电泳分离所需的各种配件(梳子、玻璃板和灌胶装置) | Bio-Rad Protean 3 或同等型号 | ||
| 蛋白质向硝酸纤维素膜转移系统 | Bio-Rad Protean 3 或同等型号 |
参考文献
- Zimorski, V., Ku, C., Martin, W. F., Gould, S. B. Endosymbiotic theory for organelle origins. Current Opinion in Microbiology. 22, 38-48 (2014).
- Gould, S. B., Waller, R. F., McFadden, G. I. Plastid evolution. Annual Review of Plant Biology. 59, 491-517 (2008).
- Linka, N., Weber, A. P. Intracellular metabolite transporters in plants. Molecular Plant. 3 (1), 21-53 (2010).
- Block, M. A., Douce, R., Joyard, J., Rolland, N. Chloroplast envelope membranes: a dynamic interface between plastids and the cytosol. Photosynthesis Research. 92 (2), 225-244 (2007).
- Rolland, N., et al. The biosynthetic capacities of the plastids and integration between cytoplasmic and chloroplast processes. Annual Review of Genetics. 46, 233-264 (2012).
- Agrawal, G. K., et al. Plant organelle proteomics: collaborating for optimal cell function. Mass Spectrometry Reviews. 30 (5), 772-853 (2011).
- Chua, N. -H. [40] Electrophoretic analysis of chloroplast proteins. Methods in Enzymology. 69, 434-446 (1980).
- Seigneurin-Berny, D., Salvi, D., Joyard, J., Rolland, N. Purification of intact chloroplasts from Arabidopsis and spinach leaves by isopycnic centrifugation. Current Protocols in Cell Biology. , Chapter 3 Unit 3 30 (2008).
- Ferro, M., et al. AT_CHLORO, a comprehensive chloroplast proteome database with subplastidial localization and curated information on envelope proteins. Molecular & Cell Proteomics. 9 (6), 1063-1084 (2010).
- Seigneurin-Berny, D., et al. HMA1, a new Cu-ATPase of the chloroplast envelope, is essential for growth under adverse light conditions. Journal of Biological Chemistry. 281 (5), 2882-2892 (2006).
- Vallon, O., et al. Lateral redistribution of cytochrome b6/f complexes along thylakoid membranes upon state transitions. Proceedings of the National Academy of Sciences of the United States of America. 88 (18), 8262-8266 (1991).
- Douce, R. J. J. Purification of the chloroplast. Methods in Chloroplast Molecular Biology. Edelman, M., Hallick, R. B., Chua, N. -H. , Elsevier Science Publishers BV. Amsterdam. 239-256 (1982).
- Cerovic, Z. G., Plesnicar, M. An improved procedure for the isolation of intact chloroplasts of high photosynthetic capacity. Biochemical Journal. 223 (2), 543-545 (1984).
- Kunst, L. Preparation of physiologically active chloroplasts from Arabidopsis. Methods in Molecular Biology. 82, 43-48 (1998).
- Aronsson, H., Jarvis, P. A simple method for isolating import-competent Arabidopsis chloroplasts. FEBS Letters. 529 (2-3), 215-220 (2002).
- Ling, Q., Jarvis, P. Analysis of Protein Import into Chloroplasts Isolated from Stressed Plants. Journal of Visualized Experiments. (117), (2016).
- Seigneurin-Berny, D., Salvi, D., Dorne, A. J., Joyard, J., Rolland, N. Percoll-purified and photosynthetically active chloroplasts from Arabidopsis thaliana leaves. Plant Physiology and Biochemistry. 46 (11), 951-955 (2008).
- Salvi, D., Rolland, N., Joyard, J., Ferro, M. Purification and proteomic analysis of chloroplasts and their sub-organellar compartments. Methods in Molecular Biology. 432, 19-36 (2008).
- Walker, D. The use of the oxygen electrode and fluorescence probes in simple measurements of photosynthesis. , Oxygraphics Ltd, University of Sheffield. South Yorkshire, UK. (1990).
- Jarvis, P., Lopez-Juez, E. Biogenesis and homeostasis of chloroplasts and other plastids. Nature Reviews Molecular Cell Biology. 14 (12), 787-802 (2013).
- Block, M. A., Dorne, A. J., Joyard, J., Douce, R. Preparation and characterization of membrane fractions enriched in outer and inner envelope membranes from spinach chloroplasts. II. Biochemical characterization. Journal of Biological Chemistry. 258 (21), 13281-13286 (1983).
- Soll, J. Phosphoproteins and protein-kinase activity in isolated envelopes of pea (Pisum sativum L.) chloroplasts. Planta. 166 (3), 394-400 (1985).
- Moyet, L., Salvi, D., Tomizioli, M., Seigneurin-Berny, D., Rolland, N. Preparation of Membrane Fractions (Envelope, Thylakoids, Grana, and Stroma Lamellae) from Arabidopsis Chloroplasts for Quantitative Proteomic Investigations and Other Studies. Methods in Molecular Biology. 1696, 117-136 (2018).
- Tomizioli, M., et al. Deciphering thylakoid sub-compartments using a mass spectrometry-based approach. Molecular & Cellular Proteomics. 13 (8), 2147-2167 (2014).
- Spicher, L., Kessler, F. Unexpected roles of plastoglobules (plastid lipid droplets) in vitamin K1 and E metabolism. Current Opinion in Plant Biology. 25, 123-129 (2015).
重印与许可
标签
