两栖动物生物学的研究为了解多个分类群生物的生殖、生理、胚胎学和发育过程提供了重要信息。本文全面介绍了可用于研究两栖动物卵巢调控与监测的各种方法学。
本文内容
摘要
摘要
两栖动物的卵巢调控与监测需要采用多方面的综合方法。目前已有多种应用技术可成功诱导繁殖行为,并获取用于生理学或分子生物学研究的配子和胚胎。两栖动物占脊椎动物研究总量的四分之一至三分之一,在此背景下尤其值得关注的是,它们为科学界理解生殖过程和胚胎发育提供了重要知识。然而,这些知识大多来源于少数物种。近年来,全球两栖动物种群数量急剧下降,促使保护工作者不得不加强干预措施。为应对灭绝风险而不断建立的圈养种群恢复计划和保育种群,使得现有的科研成果和临床应用对于人工饲养条件下两栖动物的生存与繁殖变得极为宝贵。任何圈养种群的成功都依赖于其健康状况、繁殖能力,以及产生具有最广泛遗传多样性的可存活后代的能力。因此,对研究人员和兽医而言,监测并控制卵巢发育与健康状况至关重要。本文重点介绍可用于监测两栖动物卵巢功能,并在适当或必要时对其进行调控的各种辅助生殖技术。理想情况下,应通过科学合理的圈养管理来减少繁殖与健康问题的发生,但与所有动物一样,健康问题和生殖系统病理状况仍不可避免。非侵入性技术包括行为评估、肉眼观察与触诊、形态测量学指标测定以计算体况指数,以及超声成像。侵入性技术则包括激素注射、采血和外科手术。根据具体应用需求和目标物种的不同,卵巢功能的控制可通过多种方式实现。
引言
两栖动物长期以来被众多研究领域公认为重要的生物学和医学模型。通过对特定物种(如Xenopus laevis和X. tropicalis 、豹蛙(Lithobates(曾归类为Rana)pipiens) 以及墨西哥钝口螈(Ambystoma mexicanum))的研究所获得的数据,已被应用于包括人类在内的多种其他脊椎动物物种的研究中 。从这些及其他两栖动物研究中发展出的兽医护理、饲养管理以及辅助生殖技术,为圈养条件下珍稀种群的有效照护、维持与可持续繁育提供了重要支持1,2,3,4。
人们对结合使用就地保护和迁地保护策略以扭转许多濒危两栖动物物种灭绝趋势的兴趣日益增加1,2本文提供了目前可用于监测和调控无尾目模式物种两栖动物卵巢功能的方法学。 和尾状核. 此外,还介绍了针对卵滞留这一常见生殖系统病理的现有技术。
与许多分类群一样,两栖动物的卵巢调控涉及环境与生理之间一系列高度同步的相互作用。温度和光周期(称为近端信号)由眼睛和大脑解码,并迅速转化为基因、激素和昼夜节律过程(终极信号)3,4。本文所述用于监测和控制卵巢功能的方法包括侵入性和非侵入性技术。机构动物护理与使用委员会(IACUC)对研究和教学的要求将非侵入性技术定义为不会引起明显或任何身体疼痛或精神痛苦、且无需使用镇痛药物的技术5。此处,非侵入性技术包括视觉检查与触诊、行为观察、形态测量评估以及超声检查。相反,采血、激素给药以及手术(卵巢切除术和滞留卵子的取出)则被归类为侵入性技术,因为这些操作可能引起一定程度的疼痛或不适,并需要麻醉或术后药物治疗。
对于大多数圈养两栖动物而言,无创性卵巢监测技术可轻松融入日常护理程序中。根据物种不同,通过简单的目视检查即可判断卵巢怀卵情况(如玻璃蛙)。在其他情况下,触诊可能有助于判断雌性是否怀卵。目前已有多种体况指数(BCI),如体重、吻肛长(SUL)、吻肛长(SVL)和标准质量指数(SMI),可用于预测是否存在卵子4,6,7,8,9。然而,在结果解读时应谨慎,因为大多数指数未考虑年龄、体型或身体组成(例如滞留水分与卵巢质量或脂肪含量)6。通过超声检查可实现明确的生殖诊断,并更深入地了解卵子发育情况及卵巢周期的分期4,7。超声检查还可用于确认和监测生殖系统病理变化及相关生理状况4, 8。
除了提供健康状况信息外,采血还可用于测定生殖激素。如果激素谱分析是最终目标,则必须避免可能干扰系统性类固醇数据的应激相关影响。尽管这是一种潜在的强大监测工具,但目前尚无研究证明任何两栖动物物种对外源性激素给药存在内在的内分泌反应。血液可安全地从多个部位采集;在蛙类中,包括腹腹部静脉、舌下血管丛、股静脉和心脏9, 10。在有尾目动物中,血液则从尾腹静脉采集。在为两栖动物患者选择采血技术时,需考虑侵入程度、所需固定程度、是否需要麻醉、目标器官的脆弱性以及动物体型等因素。本文将介绍由 Forzan 等人最初描述的从蛙类面部上颌静脉或肌皮静脉采血的技术9。
卵巢调控具有物种特异性,因此激素处理方案应进行测试并优化。除季节性及其相关的循环激素环境外,卵巢调控还可能与年龄、圈养时间以及反复激素给药的暴露密切相关,但目前文献中关于这些因素的信息十分有限。11,12,13采用激素疗法诱导繁殖行为、配子生成、成熟及产卵已成为解决圈养条件下常见繁殖问题的常用方法4,8,14,15,16由于控制脊椎动物繁殖的机制高度保守,许多在其他分类群中治疗性使用的激素、神经肽以及市售药物也可在多种两栖动物物种中可靠地应用。表1促性腺激素释放激素(GnRH)和人绒毛膜促性腺激素(hCG)(或其变体,即PMSG和eCG)17, 18,单独或联合使用,已广泛应用于两栖动物圈养繁殖项目中,包括:南落基山脉北方(Anaxyrus boreas boreas)4,19,20;蟾蜍,暗色地鼠蛙, Rana sevosa (Langhorne 等,未发表)7;墨西哥湾水狗, 泥螈属 beyeri20;怀俄明蟾蜍, Anaxyrus baxteri18;牛蛙, Rana catesbiana21;美洲蟾蜍, Anaxyrus americanus22;林蛙, Lymnodyaster tasmaniensis23;波多黎各呱呱蛙, Eleutherodactylus coqui24;非洲爪蟾, 非洲爪蟾25;贡氏小蟾蜍, Pseudophryne guentheri26;北方豹蛙, Lithobates pipiens;阿根廷角蛙, 华丽角蛙 克劳威尔角蛙, C. cranwelli; 美洲地蛙 Odontophrynus americanus27; 和火蝾螈(Salamandra)228类固醇激素(如孕酮,P4)在无尾目动物中的相关报道较少,但在某些物种中已显示出良好的促排卵和产卵效果。16,18,29前列腺素(尤其是前列腺素F₂α(PGF2α)与皮质类固醇共同参与排卵过程30,31,32,34 在排卵期达到高水平31.
在体外研究中,PGF2α 是诱导排卵的有效物质31,而在体内则可诱导Rana muscosa排出滞留的卵子4,30,32。垂体提取物同样能有效诱导排卵15,16,34;然而,由于存在生物安全方面的顾虑以及传播疾病的风险,这一方法在圈养繁殖种群中的应用常受到限制35。
本文最后一部分详细介绍了手术操作,并提供了扩展卵巢研究或辅助解决生殖系统病理问题的替代方法。在两栖动物中,卵巢切除术最常用于获取卵母细胞以进行胚胎学研究。然而,当其他方法失败时,该手术也可用于治疗滞留卵子的问题。尽管该手术具有侵入性,需要完全麻醉并进行切口以暴露卵块,但并不需要实施安乐死。此外,经过部分卵巢切除术后,动物可以完全康复,并在术后继续保持生殖活性8,36。
下述方案概述了无尾目和有尾目动物卵巢控制与监测的侵入性和非侵入性方法。用于展示无尾目技术的具体物种包括R. mucosa和X. laevis。Necturus maculosus、N. beyeri、N. alabamensis和A. mexicanum则是用于描述有尾目相关技术所涉及的物种。
方案
蝾螈实验程序已获得辛辛那提动物园批准 & 中国科学院植物园(CZBG)机构动物护理与使用委员会(IACUC)方案 11-106、13-110、14-133 和 15-138。所有蛙类和蟾蜍操作程序均经圣地亚哥动物园全球组织(SDZG)机构动物护理与使用委员会(IACUC)批准,方案编号为:15-001、16-005 和 18-003。
动物的护理和治疗已获得国家自然历史博物馆(巴黎)(法国国家自然历史博物馆-植物园动物园(MNHN))伦理委员会批准,符合机构和国家指南(基因工程委员会、地方兽医服务局、欧盟指令2010/63/EU),并依据用于实验和其他科学目的的脊椎动物欧洲公约第C75-05-01-2号许可决定。本研究中使用的所有方案均在参考编号68-037下获得批准。
1. 非侵入性卵巢监测技术
- 目视检查与触诊
- 以下列三种方式之一固定雌性无尾目动物。
- 用无名指和小指固定蛙或蟾蜍的四肢,用食指和中指支撑蛙体背部(腹部),拇指支撑腹面(图1A)。
- 用惯用手握住蛙或蟾蜍,拇指置于其腹部,其余手指固定动物背部。用非惯用手触诊动物腹部,检查是否存在皮下凹凸不平(图1B)。
- 将蛙或蟾蜍的腹部置于手掌上,前肢搭在食指上,拇指置于其上背部。
- 由于有尾目动物在自然状态下完全水生,可通过以下两种方法之一进行目视检查。
- 将动物转移至一个单独的4 L容器中,容器内装有养殖水。手持容器(盖子固定),用手电筒照射其底部,以观察是否存在卵。
- 使用MS222(0.5 g/L;三卡因甲磺酸盐,用0.5 M NaHCO3缓冲)进行麻醉。诱导完成后,将动物翻转至仰卧位并检查腹部。
- 以下列三种方式之一固定雌性无尾目动物。
- 形态测量评估
- 无尾目
注:无需麻醉。- 使用卡尺测量动物从口尖沿身体中线至尾尖的距离,以获得SUL和SVL(图2A、B)。
- 将塑料容器在电子精密天平上去皮归零。将动物放入已去皮的容器中称重(图2C)。
- 对于较大的动物(如牛蛙)或野外称重时,使用悬挂式秤(图2D)。
- 与许多无尾目物种类似,可通过体型较大以及手部无婚垫(拇指垫)来区分R. muscosa成年雌性与雄性(图3)。
- 通过以下公式计算体况指数,作为整体健康状况的基本评估:
弗尔顿指数:K = 质量 ÷ 长度3
注:弗尔顿指数使用与质量和长度相关的体积维度平衡,其中3为等距关联质量和长度的缩放指数。
- 有尾目
- 在将未麻醉动物放入袋中前,先用空袋在秤上归零。注意避免引入过多水分(图2D),并迅速操作,因为动物在被束缚时会因应激而分泌黏液。
- 将个体固定于可密封塑料袋底部或另一个可容纳展开卡尺的塑料容器中,保持直线姿势,以获取成年个体的测量数据。
- 使用卡尺测量体长(图2E)。
- 测量有尾目动物从吻尖至尾尖(SVL)的长度,以监测生长情况。
- 无尾目
- 行为观察
- 实时直接观察动物,或使用摄像机记录其行为。
- 记录动物的观察结果,对行为进行分类并构建行为谱(图4)。
- 分类繁殖行为
注:图4展示了一种在无尾目动物中观察到的繁殖行为类型。
- 超声检查
注:本实验推荐使用的超声探头为7.5 mHz线性探头或多功能(10-6 mHz)微凸探头,适用于Necturus;对于R. muscosa,建议使用10 MHz探头及水溶性无盐凝胶。对蝾螈进行超声检查可能需要麻醉(参见第1.5节操作说明)。- 无尾目
- 由两人协作对R. muscosa进行超声检查(图5A)。
- 第一人:用惯用手固定动物,并在其腹部涂抹水溶性无盐凝胶。
- 第二人(超声操作员):用惯用手持10 MHz探头,将其接触腹部,确保探头与凝胶之间充分接触。
- 从腋下稍下方开始向动物腹部中线中心滑动,以完整观察整个卵巢。
- 超声操作员:用非惯用手冻结画面并捕获所需图像。
- 根据该属已建立的分级系统对卵巢周期阶段进行分类4(表2,图5B-F)。
- 操作结束后,用清水彻底冲洗动物体表残留的凝胶。
- 有尾目
- 将未麻醉的Necturus转移至装有2 L养殖水的4 L矩形容器中。
- 通过关闭室内灯光和/或用手遮盖动物头部,以减少动物活动。
- 将探头置于距体壁1-2 cm处。
- 在前肢水平的腹侧中线定位心脏,然后将探头向远端移动,检查卵巢组织7。
- 根据该属已建立的分级系统对雌性个体进行分类4(图6A、B、C)。
- 在动物身体与探头呈一定角度(即非直线,而是轻微弧形;图6B)时捕获图像,以准确测量中晚期 gravid 阶段的卵。否则,滤泡重叠将难以区分单个卵的大小。
- 无尾目
- 麻醉诱导与恢复
- 无尾目
- 如前所述,使用MS222(0.5 g/L;三卡因甲磺酸盐,用0.5 M NaHCO3缓冲)进行麻醉。
- 以翻正反射作为判断动物麻醉程度的主要指标。翻正反射完全消失表明动物已进入深度麻醉状态。
- 一旦翻正反射消失,立即将动物从基于水浴的麻醉剂(MS-222)中取出。
- 将动物放置于湿润(使用不含麻醉剂的去氯水)的毛巾上。
- 确保在整个手术过程中保持动物体表湿润。
- 对小型两栖动物使用红色橡胶导管、无套囊管或传统带套囊气管插管(不充气套囊)进行插管。
- 提供低流量氧气(0.5-0.75 L/min),并加入0.5-1%异氟烷。
- 操作结束后停止异氟烷,但继续供氧1分钟。
- 拔管后,用不含麻醉剂的去氯水彻底冲洗动物2分钟。
- 将动物置于少量去氯水中或湿润的毛巾上。
- 通过轻拉后肢使其伸展来评估动物恢复情况。任何肢体的收缩反应均提示存在屈肌反射。
- 监测其他恢复指标,如喉部呼吸(喉部运动)和翻正反射。
- 当所有反射均已恢复,且心率和呼吸频率恢复至麻醉前水平时,认为两栖动物已完全恢复。
- 有尾目
- 在4 L矩形水箱中,使用MS222(0.5 g/L三卡因甲磺酸盐,用0.5 M NaHCO3缓冲)对Necturus和Ambystoma进行麻醉(MS222)。
- 将一个气石(1英寸)和气泵放入水箱,并开启至恒定气流,以提供充足氧气。
- 当肢体功能和翻正反射消失后,将动物从基于水浴的麻醉剂(MS-222)中取出,并置于湿润(使用不含麻醉剂的去氯水)的毛巾上。
- 使用装有养殖水的挤压瓶保持皮肤和鳃的湿润。
- 恢复时,小心地将动物腹侧朝下放入装有2 L养殖水并配有气石的4 L塑料容器中。
注:恢复过程始于鳃闪动,随后是尾部运动并向前推进,最终恢复四肢的功能性运动。 - 将动物放回原始饲养水箱,并在接下来的24小时内密切监测。
注:其他两栖动物麻醉方法也存在,详见Wright和Whitaker8。
- 无尾目
2. 卵巢侵入性监测与控制技术
注意:本方案改编自 Forzán 等人10。
- 用惯用手握住青蛙,并用无菌擦拭巾或纱布将青蛙面部采血侧蘸干。
- 将面部擦干,以避免血液在皮肤上过度扩散。
- 将针头(26 G 1/2" 和 27 G 1/2")斜面向上插入皮肤,进针位置为眼周隆起皮肤与上颌脊交汇处所形成的三角形顶点(黄色轮廓)(图7A),以接近vena facialis,靠近vena orbitalis后方。
- 在右眼下方、上颌脊上方穿刺面部静脉,进针点始于眼正中线后方1-2 mm处(图7A)。
注意:对于体型较小的青蛙(体重低于20 g),应将进针点移至更靠近眼正中线下方的位置。 - 将微毛细管向下倾斜,利用重力促使血液流入管中。穿刺后血液应立即流出(图7B,C)。
- 一旦出现血液流出,立即将微毛细管尖端置于穿刺部位,采集1-2整管血液,并将毛细管放入合适的收集容器中(图7B,C)。
- 如果血液流出不畅或血量极少,可轻微调整针头位置,或将针头插入面部另一侧。
- 用纱布紧压穿刺部位至少20秒,以止血。
- 将青蛙离开水环境放置10分钟,确认穿刺部位未重新开放。
- 每只青蛙采样时均应使用新的针头和新的微毛细管。
3. 激素诱导
- 激素制备
- 在使用前立即准备激素注射液,以确保最大效果。
- 从表1列出的选项中选择一种激素。
- 根据体重以 µL 或 mL/g 为单位确定待注射激素的浓度16。
- 将激素溶于以下任一溶剂中:水、磷酸盐缓冲液(PBS)、两栖类林格氏液(SARS)或生理盐水。
- 对于体重为30–70 g的蛙,注射体积不得超过200 µL;对于体重为80–110 g的蛙,注射体积不得超过300 µL(个人观察)16。
- 在对体重为10–100 g的动物进行激素给药时,为正确固定动物,请采用1.1节中描述的任一合适的固定方法。
- 无尾类
- 根据个体体重(g/体重)计算所需浓度。
- 在给药前,用所选的无菌稀释液重新配制。
- 注射前确保注射器内无气泡残留。
- 用非惯用手牢固固定动物,用惯用手进行注射。
- 根据激素的具体要求进行注射。无尾类中最常见的注射方式为皮下、腹腔或肌肉注射(图8)。
- 腹腔注射应位于腹部下部或靠近后肢的背部体侧下段(图9)。
- 肌肉注射应优先选择后肢部位。
- 有尾类(Necturus)
- 按照上述按体重克数计算的方法,将所选激素用无菌水重新配制。
- 对于Necturus,使用1.7–2.3 µg GnRH/g体重的剂量。
- 将Necturus从麻醉室中取出,置于覆盖手术巾的45°斜面上。
- 使动物头部朝下放置。
- 从腹部后象限(后肢后方)以15–20°角进针。注意避免将空气引入注射器中。
- 使用胰岛素注射器和27–30 G针头进行腹腔注射(IP)。
- 使用胰岛素注射器和27–30 G针头注射激素。
4. 手术
- 常规外科准备与操作
- 为维持无菌操作,使用透明无菌塑料巾隔离手术区域。通过保持周围皮肤湿润以减少蒸发。
- 将接触动物皮肤的任何材料用无菌水润湿。使用15号或11号手术刀片进行皮肤切口。
注:可结合使用冷刀、电外科或半导体激光。在轻度出血操作中,可通过电凝或半导体激光实现止血。 - 使用带棉头的探针或涂抹器,对小血管施加局部压力,以便监测出血量。
- 在处理狭小局限空间时,使用带棉头的探针或涂抹器替代标准纱布块。
- 对体重小于1 kg的动物进行手术时,使用显微器械(如眼科器械),其尖端应细小精细。
- 使用可自行固定的塑料拉钩(例如Lone Star拉钩),以适应不同大小的切口。
- 使用眼睑拉钩牵开体腔切口。
- 在对较小动物进行手术时,必要处应使用放大设备。
注:两栖动物接受任何外科手术均需给予镇痛。手术过程中未充分给予镇痛与正常功能恢复延迟相关。此外,镇痛可增强麻醉药物的效果(表3)34。
- 无尾目动物
- 按照步骤1.5.1所述方法麻醉X. laevis后,将动物置于仰卧位(图10A,C)。
- 以无菌湿纱布蘸取稀释的聚维酮碘溶液(1/10),在手术区域擦拭10-15秒,或使用0.75%氯己定溶液处理手术部位至少10分钟,以完成手术区域的无菌准备35。
- 在躯干中部(肩部与泄殖腔之间)做一3 mm长的旁正中皮肤切口,使用15号或11号手术刀一次果断切割,形成整齐切口。
注:也可使用半导体激光进行皮肤切口。 - 提起腹膜,使用15号或11号手术刀小心切开并分离(图10B,D)。
- 使用眼睑拉钩(或其他合适器械)牵开体腔切口。
- 切除部分卵团,无需结扎任何血管。
- 行完全卵巢切除术时,通过电凝或半导体激光烧灼周围血管(图11)。
- 使用单股缝线,采用间断外翻缝合方式关闭腹腔切口。
- 有尾目动物
- 麻醉 A. mexicanum后,将其置于右侧卧位,左后肢自然贴于尾基部。
- 以无菌湿纱布蘸取稀释的聚维酮碘溶液(1:10),在手术区域擦拭10-15秒,完成手术区域的无菌准备。或使用浸有0.75%氯己定溶液的无菌纱布覆盖手术部位,术前至少保留10分钟(图12A)36, 37。
- 在肩部与后肢之间画一条线,将身体分为三个相等部分(图12B)。
- 在第二与第三部分之间确定切口位置。
- 夹住下方肌肉并将其从体腔脏器上抬起。
- 轻柔地将小型止血钳穿过体腔肌层进入体腔。
- 使用眼睑拉钩(或其他合适材料)牵开体腔切口(图12C)。
- 行完全卵巢切除术时,通过电凝或半导体激光烧灼周围血管(图12D)。
- 使用单股缝线,采用间断外翻缝合方式关闭腹腔切口。
结果
形态测量学与繁殖
两栖动物雌性生殖状态的观察因物种而异。最有效的方法是超声成像;然而,某些物种的皮肤可能具有不同程度的透明性(图13A、B、C)。当皮肤呈半透明状态时,例如在N. alabamensis和N. maculosus中所观察到的,通过肉眼观察通常可以清晰地区分怀卵雌体与非怀卵雌体(图13A、B);或者如玻璃蛙所示,皮肤完全透明(图13C)。然而,N. beyeri腹部具有深色斑点的皮肤色素沉着,使得无法通过此方法进行评估。在R. muscosa中,皮肤虽不透明,但怀卵雌体与刚产卵雌体之间仍可察觉明显差异:刚产卵个体的皮肤松弛,体型显得更瘦(黄线),而怀卵雌体则更为饱满(蓝线)(图13D)。随着经验积累,操作人员可逐渐熟悉大型雌体与怀卵雌体之间的区别,但确认是否处于怀卵阶段仍需依赖超声检查。两栖动物的体重指数可通过多种公式计算,但其作为繁殖预测工具的有效性尚存争议。以R. muscosa为例,Fulton指数与健康状况及生殖状态之间的相关性仍不明确。
生殖行为与超声检查
我们的结果展示了如何表征生殖行为 R. muscosa 用于产卵预测(图4)。持续时间从数小时到数周不等的多个阶段包括求偶阶段,即雄性主动追逐雌性(图 4A),雄性会爬到雌性背上并紧紧抱住,这一行为称为抱对(图 4B)。一旦形成抱对,雌雄个体会保持抱对状态长达1至5周,并在此期间表现出除抱对外的其他行为。抱对是一种非常活跃的行为,包括雄性以轻柔的泵压方式挤压雌性(图4C);雌性个体四处移动,并开始间歇性地表现出倒立行为(图 4D,E);接近产卵时,雌性会以倒立姿势依靠在可附着卵的表面上,此时雄性会剧烈地挤压雌性的腹部(在这种情况下,还可以观察到雌性从腋下向下朝泄殖腔方向摩擦其腹部,这可能是通过机械方式将卵推向输卵管的一种行为)。图4F,G).
本研究说明了超声技术如何提供信息,以确定雌性R. muscosa和Necturus的生殖状态。R. muscosa中呈现了四个发育阶段(图5C、D、E、F),Necturus中也具有类似的特征4(图6A、B、C)。此外,残留卵子可能未能排出,导致卵子滞留(图5G、图15A、B)。第1阶段显示产卵后卵巢的状态,此时卵泡难以观察(图5C)。第2阶段表现为卵巢内散在出现回声点(白色斑点)(图5D)。第2和第3阶段表现为更大、更圆的回声点,中心较暗,代表含有卵黄的中至大型卵泡(图5E、F)。2013年至2017年期间,每月对圈养雌性Necturus进行超声检查。每次检查时,根据该属建立的生殖标准对个体进行分级评分(表2)。每年发育新卵子的雌性比例平均为88.2 ± 3.01%(表5)。尽管卵子发育率较高,但产卵并不一定发生(图16)。大多数完成产卵的雌性会排出全部卵子,而部分个体仅排出所发育卵子的一部分。那些卵子滞留并伴随体腔积液的R. muscosa和Necturus雌性,外观上表现为明显肿大,并在皮肤上出现红色斑块,符合血管破裂的特征(图14A、B)。体液潴留的程度可通过超声进一步评估(图15B)。在两个物种中,滞留的卵子发生闭锁或呈现更强的回声特征(图14C、D,图15A)。
激素给药
根据注射类型和深度的不同,针头的角度和刺入深度也会有所变化。对于大多数注射而言,在对诸如 R. muscosa 但穿刺角度会有所不同。前列腺素注射需要以一定角度进行肌肉内(im)针头插入 90°,注入后肢 R. muscosa 而腹腔(ip)注射的深度与肌内注射相似,注射部位位于体腔区域的 45° (图10)。与对照组相比,给予激素处理的雌性个体注射Amphiplex后,其产卵数量并未显著增加(P = 0.547),在发生卵裂的胚胎数量(P = 0.673)或发育至蝌蚪阶段的胚胎数量(P = 0.629)方面也未观察到显著差异(表4)。总体而言,产卵雌虫的比例从2011年的80%下降至2014年的28%。2015年产卵雌虫数量显著高于2013年(P = 0.0002)、2013年(P = 0.0001)和2014年(P = 0.0026),但与2011年相比差异不显著(P = 0.0885),这再次表明该物种雌性可能并非每年繁殖,且激素处理方案仍需优化。对于 R. muscosa 出现卵滞留症状的雌性个体,采用肌肉注射 PGF2α 在5只注射的雌性个体中,有1只的前列腺素F(PGF)诱导退化卵排出的成功率为60%。然而,在注射的5只雌性中,有1只2α 不足以引起完全排出,一些卵子会残留在雌性体内直至下一个繁殖季节。十七 泥螈属 雌性个体接受促黄体生成素释放激素(LHRH/GnRH)处理,另有13只接受无菌水假注射作为对照(表5。总共七名女性 泥螈属 (n = 4) alabamensis,n = 2 beyeri,n = 1 maculosus) 随后产下了11窝完整的卵,这些卵归属于促性腺激素释放激素(GnRH)处理组(n = 6)和对照组(n = 5)个体。三只雌性个体(n = 2 beyeri,n = 1 maculosus产下五个部分卵块(图13)。这种现象似乎与外源性激素处理无关,因为3只对照雌性个体同样产下了部分卵块。表5)。产卵发生在五年内的37天时间段内(3/31-5/7)表5)。LHRH/GnRH处理组雌性(41 ± 13.08%,范围17-67%)与对照组雌性(66.75 ± 11.79%,范围50-100%)之间的产卵率无显著差异(P = 0.194)。LHRH/GnRH处理的雌性在注射后平均7.44 ± 1.41天(范围3-13天)开始产卵。鉴于该物种完全水生的特性,且在无麻醉状态下无法进行人工固定,因此在实施腹腔内激素注射前,必须确保动物达到适当的镇静水平(镇静操作说明见第3.2节)。
血液采集、麻醉与手术
本文中的采血技术源自 Forzan 等人 2013 年的研究10,已被证明是一种对 R. muscosa 进行采血的有效方法,具有侵入性小、应激反应低的优点。使用微 hematocrit 毛细管,每 70 µL 全血可采集约 35–45 µl 的血浆或血清(图 7)。在 R. muscosa 中,每 10 g 体重的蛙类最多可采集 1 支完整的 microhematocrit 毛细管血液,体重 40 g 及以上的蛙类每只最多可采集 4 支毛细管。该采血量为保守值,即每 100 g 体重采集 0.7 mL,相当于每 100 g 体重 1.0 mL 最大推荐值的 70%(改编自 Allender 和 Fry,2008)13。
两栖动物的麻醉和手术报道较少,但需要注意的是,不同物种之间的麻醉剂量和效果存在显著差异。Bombina orientalis 就是一个例子,即使使用高剂量(1 g/L),MS222 的麻醉效果仍然非常微弱;而在北方蟾蜍 Anaxyrus boreas boreas 中,1 g/L 的剂量则起效迅速(数分钟内)且作用时间长(3小时以上)(Calatayud,个人观察)。对于 R. muscosa,麻醉所需剂量与 A. boreas boreas 报道的相似,且麻醉效果和恢复时间也相近。通常情况下,两栖动物在麻醉前无需禁食,因为即使在全身麻醉状态下,其喉部仍保持紧密闭合。然而,如果确有必要,特别是当麻醉操作涉及体腔手术时,可在麻醉前24小时对动物进行禁食处理。
在手术过程中,翻正反射是判断动物是否进入麻醉状态的主要指标。翻正反射是指动物被置于仰卧位后,能够自行恢复至正常体位的能力及其难易程度。该反射的消失提示动物已达到浅麻醉阶段。而手术麻醉深度则以撤退反射的消失为标志,即轻拉肢体使其伸直时,动物不再具备将其回缩的能力。7生殖手术没有显著的障碍,两栖类动物患者通常愈合良好,且对失血的耐受能力超过高等脊椎动物。手术应迅速进行,从开始到结束大约持续15分钟。各步骤的时间安排大致如下: <初始切口用时1分钟 <2 分钟用于剖腹术和牵开器插入, < 每卵巢分离耗时2-3分钟 <血管缝合或电凝及皮肤缝合各需1分钟 < 4分钟。使用MS222方案进行手术后的总恢复时间约为45分钟,但该时间可能因物种而异。在 A. boreas boreas 和 R. muscosa 恢复时间可能更长,可达1–2小时。进行手术时,必须注意避免刺破肺部、胃肠道或膨胀的膀胱,同时避免损伤大体可见的腺体、淋巴心及血管,尤其是腹侧正中静脉。根据季节不同,较大的脂肪体可能会影响其他器官的观察。当动物明显清醒后,其对肢体刺激的反应,例如后肢受到轻柔牵拉时出现抵抗,或眼周区域受到刺激时出现眨眼(个人观察),可归类为退避反应。翻正反射以及包括退避反射和喉部运动在内的其他恢复指标,是判断动物恢复状态的重要依据。
| 给药方式 | ||||||||||
| 通用名称 | 物种 | 激素 | 操作方法 | 引物化合物 | 报道的引物剂量 | 引物剂量次数 | 时间(给予促排卵剂量前的小时数) | 用于最终促排卵/产卵的给药化合物 | 剂量 | 参考文献 |
| 波多黎各冠状蟾蜍 | Peltophryne lemur | GnRH & hCG | 腹腔注射 | hCG | 1.5 IU/g | 2 | hCG - 48 | GnRH; hCG; GnRHa + hCG | 0.2 µg; 4 IU; 0.5 µg + 4 IU | Calatayud 等,未发表 |
| 山区黄腿蛙 | Rana muscosa | Amphiplex, Lut | 腹腔注射 | GnRHa (des-Gly10, D- Ala6, Pro-NHEt9-GnRH) | 0.4 µg/g | 1 | 24 | GnRH + MET | 1 x 0.4 µg/g + 10 µg/g | Calatayud 等, 2018 |
| PGF2α | 肌内注射 | PGF2α | 5 ng/g | 1 | 48 | PGF2α | 5 ng/g | |||
| 南落基山脉寒带蟾蜍 | Anaxyrus boreas boreas | hCG, GnRH | 腹腔注射 | hCG | 3.7 IU/g | 2 | 96, 24 | hCG + GnRHa | 13.5 IU/g + 0.4 µg/g | Calatayud 等, 2015 |
| 北方蟋蟀蛙 | Acris crepitan | Amphiplex | 加入水中(10 mL) | 无 | 无 | 0 | na | GnRH + MET | 0.17 µg + 0.42 µg / µl | Snyder 等, 2012 |
| 北方豹蛙 | Lithobates pipiens | Amphiplex | 腹腔注射 | 无 | 无 | 0 | 24 | GnRH + MET | 1 x 0.4 µg/g + 10 µg/g | Trudeau 等, 2010 |
| 阿根廷角蛙 | Ceratophyrs ornata | Amphiplex | 腹腔注射 | 无 | 无 | 0 | 24 | GnRH + MET | 1 x 0.4 µg/g + 10 µg/g | |
| 克兰韦尔角蛙 | Ceratophrys cranwelli | Amphiplex | 腹腔注射 | 无 | 无 | 0 | 24 | GnRH + MET | 1 x 0.4 µg/g + 10 µg/g | |
| 美洲地蛙 | Odontophrynus americanus | Amphiplex | 腹腔注射 | 无 | 无 | 0 | 24 | GnRH + MET | 1 x 0.4 µg/g + 10 µg/g | |
| 暗色地鼠蛙 | Rana sevosa | hCG, GnRH | 腹腔注射 | hCG | 3.7 IU/g | 2 | 96 , 24 | GnRH + hCG | 1 x 0.4 µg/g + 13.5 IU/g | Graham 等, 2018 |
| 普通科伊蛙 | Eleutherodactylus coqui | 鱼类、鸟类、哺乳动物及 GnRH (D-Ala, des-Gly, eth LHRH), hCG | 皮下注射 | mLHRH; aLHR; fLHRH; GnRHa; hCG | 无 | 0 | na | mLHRH; aLHR; fLHRH; GnRHa; hCG | 7µg, 33µg; 28µg; 7µg, 20µg; 5, 10, 15, 20 µg; 165 IU | Michael 等 2004 |
| 冈瑟短头蟾 | Pseudophryne guentheri | GnRH | GnRHa | 0.4 µg/g | 1 | 26 | GnRHa 带或不带引物 | 0.4 µg/g | Silla 2010 | |
| 科罗博瑞蛙 | Pseudophryne corroboree | Lucrin | 皮下注射 | Lucrin | 1 µg | 1 | 26 | Lucrin | 5 µg | Byrne & Silla, 2010 |
| 北方科罗博瑞蛙 | Pseudophryne pengilleyi | GnRHa GnRH (D-Ala, des-Gly, eth LHRH) | 经皮注射 | 无 | 无 | 0 | na | GnRHa | 0.5 -2.0 µg/g | Silla 等, 2017 |
| 墨西哥湾海岸水狗 | Necturus beyeri | [des-Gly10, D- Ala6]-LhRH-RH 乙胺醋酸盐水合物 | 腹腔注射 | 无 | 无 | 0 | na | LHRH | 100 µg / 500 µL | Stoops 等, 2014 |
| 南方钟蛙 / 咆哮草蛙 | Litoria raniformis | des-Gly10, D- Ala6-[LHRH] | 皮下注射 | 无 | 无 | 0 | na | des-Gly10, D- Ala6-[LHRH] | 50 µg | Mann 等, 2010 |
| 福勒蟾蜍 | Anaxyrus fowleri | GnRH, hCG, P4 | 腹腔注射 | hCG | 3.7 IU/g | Browne 等, 2006 | ||||
| 墨西哥钝口螈(墨西哥蝾螈) | Ambystoma mexicanum | 卵泡刺激素 | 肌内注射 | 无 | 无 | 0 | na | FSH | 400IU | Trottier 和 Armstrong, 1974 |
| 非洲爪蟾 | Xenopus laevis | hCG & P4 | 加入水中;腹腔注射 | PMSG, hCG | Marcec , 2016 | |||||
| 虎纹蝾螈 | Ambystoma tigrinum | hCG, LH | ||||||||
| 怀俄明蟾蜍 | Anaxyrus baxteri | hCG, GnRHa, P4 | 腹腔注射 | hCG + GnRHa | 100 IU + 0.8 µg | 1 | 72 | hCG + GnRHa | 100 IU + 0.8 µg | Browne 等, 2006 |
| 北方豹蛙 | Lithobates pipiens | 垂体提取物 (PE), P4, 睾酮 (T), 皮质酮 [C], Amphiplex, 多潘立酮 (D) | 皮下注射, 腹腔注射 | 无 | 无 | 0 | na | PE, PE+T, PE+P4, PE+C; Amphiplex, GnRH + D | ~100 IU (LHRH) in 1 mL; PE+0.002µg/µL; PE+0.01mg/50mL; PE+0.1mg/50mL; 0.4 µg/g + 10 µg/g; 0.4 µg/g + D | Wright, 1961; Fort, 2000; Trudeau 等, 2013 |
| 地蛙 | Lymnodynastes tasmeniensis | 垂体提取物, hCG, GnRHa, PZ | 腹腔注射 | GnRHa | 0.9-1.2µg/g + PZ 10 µg/g | 1 | 20 | PE; PE + hCG; GnRH + PZ | PE vol; PE vol + 100 IU hCG; GnRH (0.9-1.2µg/g) + PZ (10µg/g) | Clulow 等, 2018 |
| 绿金钟蛙 | Litoia aurea | GnRH | 腹腔注射 | GnRHa | 10 µg | 1 | 72 | GnRHa + hCG | 20 µg + 300 IU | Clulow 等, 2018 |
| 大斑蛙 | Mixophyes fasciolatus | hCG & PMSG | 皮下注射 | PMSG, hCG | 50 IU & 25 IU; 1x100 IU | 2; 2 | PMSG-144 & 96; hCG-24 | hCG | 100IU | Clulow 等, 2012 |
| 更多激素方案及物种信息请参见 Wright 和 Whitaker, 2001 | ||||||||||
表1:文献报道的两栖动物物种及其经测试的部分外源激素。 人绒毛膜促性腺激素(hCG);促性腺激素释放激素(GnRH);黄体生成素释放激素(LHRH);字母 m、a 和 f 分别代表“哺乳动物”、“鸟类”和“鱼类”;孕马血清促性腺激素(PMSG);孕酮(P4);卵泡刺激素(FSH);垂体提取物(PE);睾酮(T);皮质酮(C)。所列多巴胺拮抗剂包括:多潘立酮(D);匹莫齐特(P);甲氧氯普胺(MET)。Amphiplex 是指由 GnRH 和甲氧氯普胺组成的化合物27。Lucrin 是一种市售的 GnRH 激动剂,其活性成分为醋酸亮丙瑞林。4,7,17,18,19,20,26,27,38,39,40,41,42,43,44,45
| 等级 | 生殖状态 | 描述 |
| 0 | 非妊娠 | 不可见卵。 |
| 1 | 早期妊娠 | 可见卵(大小为1-2mm),卵周围无明显回声线。 |
| 2 | 中期妊娠 | 卵大小为2-3mm,每个卵周围可见明显回声线。 |
| 3 | 晚期妊娠 | 卵大小为4-5mm,回声线仍可见,卵的无回声外观显著增强。 |
| 4 | 滞留卵 | 卵内部结构中存在不同程度的回声物质,呈不规则形态。部分可能变得高度回声,并伴有体腔内液体潴留。 |
表2:通过超声检查对圈养雌性钝口螈属(Necturus)和Rana muscosa的生殖状态进行评分所采用的分级系统。
| 药物 | 剂量与给药途径 | 备注 - 参考文献 |
| Buprenorphin | 50 mg/Kg(腹腔注射) | 中国台湾东部红斑蝾螈(Notophthalmus viridescens)的实验研究。手术前应给予镇痛剂。(Koeller, 2009) |
| Butorphanol | 1 – 10 mg/Kg(肌内注射或腹腔注射) | 存在多种特异性反应。建议从1 mg/kg开始使用。 |
| Butorphanol | 0.5 mg/L(药浴) | 中国台湾东部红斑蝾螈(Notophthalmus viridescens)的实验研究。(Koeller, 2009) |
| Fentanyl | 1 mg/kg | 镇痛作用持续时间 > 4 小时,可被纳洛酮拮抗(Stevens, 1997) |
| Meloxicam | 0.1 至 0.2 mg/kg(肌内注射) | (Minter, 2011) |
表3:两栖动物镇痛方案。
| Rana muscosa | ||
| 年份 | 2014 | 2015 |
| 雌性数量 | 18 | 18 |
| 卵发育率 | 61% | 94% |
| 对照组雌性 | 4 | 6 |
| Amphiplex处理雌性 | 4 | 7 |
| Amphiplex处理至产卵的平均天数 | 10.5 | 10.9 |
| 产卵率(Amphiplex处理组) | 22.20% | 33.33% |
| 产卵率(对照组) | 22.20% | 38.88% |
表4:2014年和2015年接受amphiplex处理与对照组圈养雌性Rana muscosa繁殖参数的比较。
| Necturus sp. | |||||
| 年份 | 1 | 2 | 3 | 4 | 5 |
| 雌性数量 | 6* | 7 | 7* | 7* | 7* |
| 卵发育率 | 83% | 100% | 86% | 86% | 86% |
| 雌性LHRH处理组 | 3 | 5 | 3 | 6 | 0 |
| 雌性对照组 | 2 | 2 | 3 | 0 | 6 |
| LHRH处理后至产卵天数 | 5 | 7 | 5.5(范围 3 - 8) | 13 | n/a |
| 产卵率(LHRH处理组) | 60% | 20% | 67% | 17% | n/a |
| 产卵率(对照组) | 50% | 50% | 100% | n/a | 67% |
| * n=1 雌性个体无卵发育 | |||||
表5:促性腺激素释放激素(LHRH)对生殖参数的比较(GnRH)处理组和对照组 (无菌水) 圈养雌性 美洲大鲵 在五年期间来自三个物种 (2012-2017).
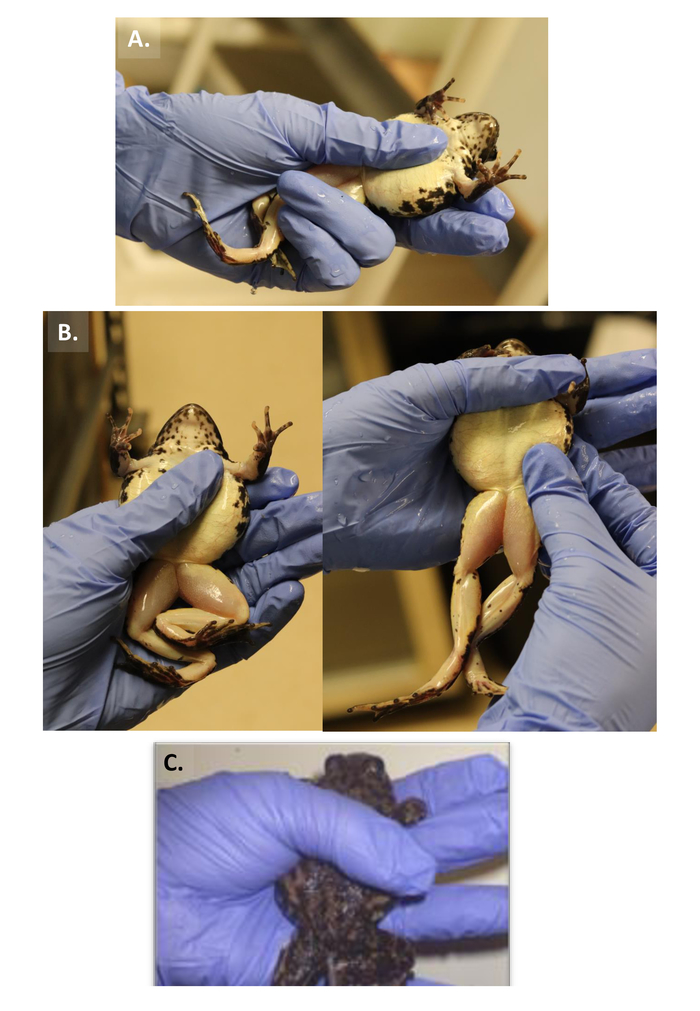
图 1:三种持握青蛙的方法。(A)方法一。(B)方法二。(C)方法三。请点击此处查看该图的放大版本。

图 2:形态测量评估。(A, B)SVL/SUL(C, D)在 R. muscosa 和 D. Necturus 中的体重。(E)使用卡尺进行尺寸测量。请点击此处查看此图的放大版本。
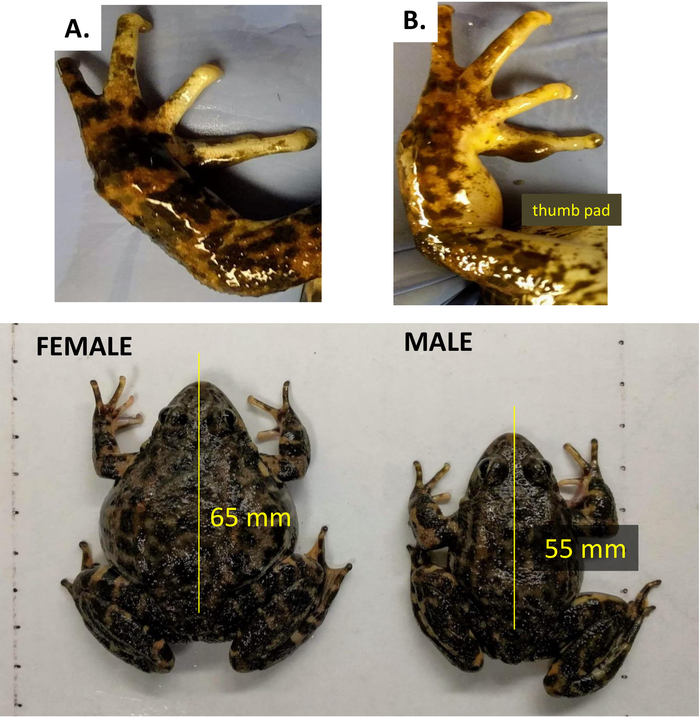
图3:成年R. muscosa雄性个体通过婚垫的存在与雌性区分性别二态性。(A)雌性(B)雄性。下图显示了雄性与雌性的体长对比。请点击此处查看此图的放大版本。

图 4:R. muscosa 产卵前繁殖行为的特征描述(A)求偶。(B)抱对。(C)抱对过程中雄性挤压雌性。(D, E)抱对后雌性呈倒立姿势。(F, G)腹部收缩及产卵过程。请点击此处查看该图的放大版本。
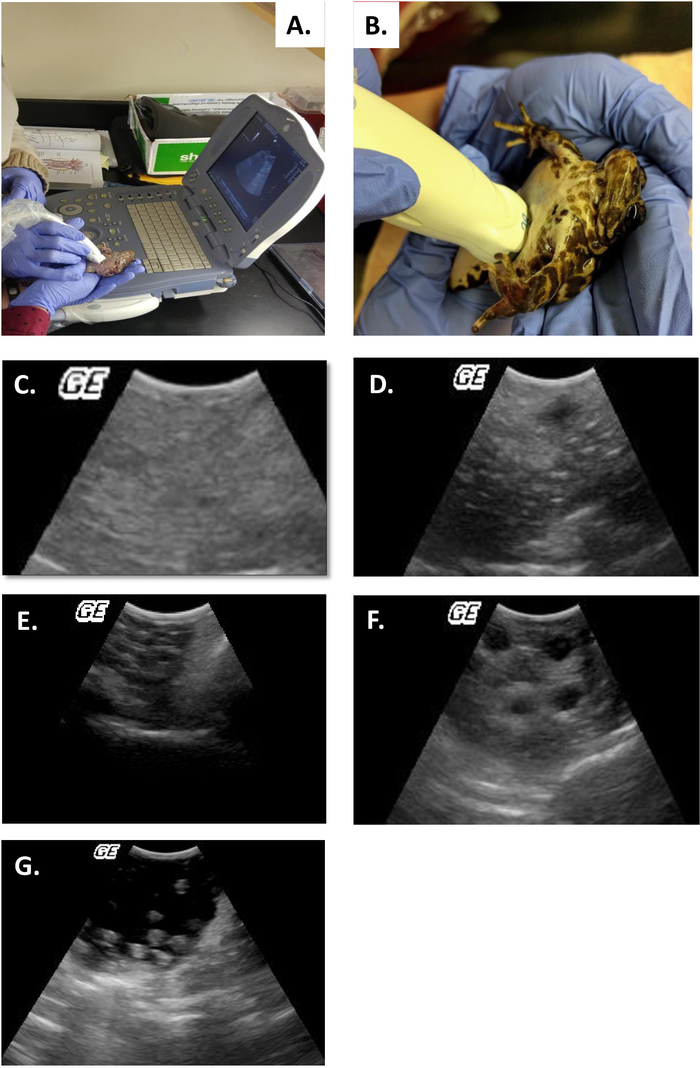
图 5:对R. muscosa A-B个体进行超声检查,其生殖状态根据发育阶段确定4。(A, B)对Rana muscosa进行超声检查。(C)0级。(D)1级。(E)2级。(F)3级。(G)4级(已排卵并滞留卵子)。请点击此处查看此图的放大版本。
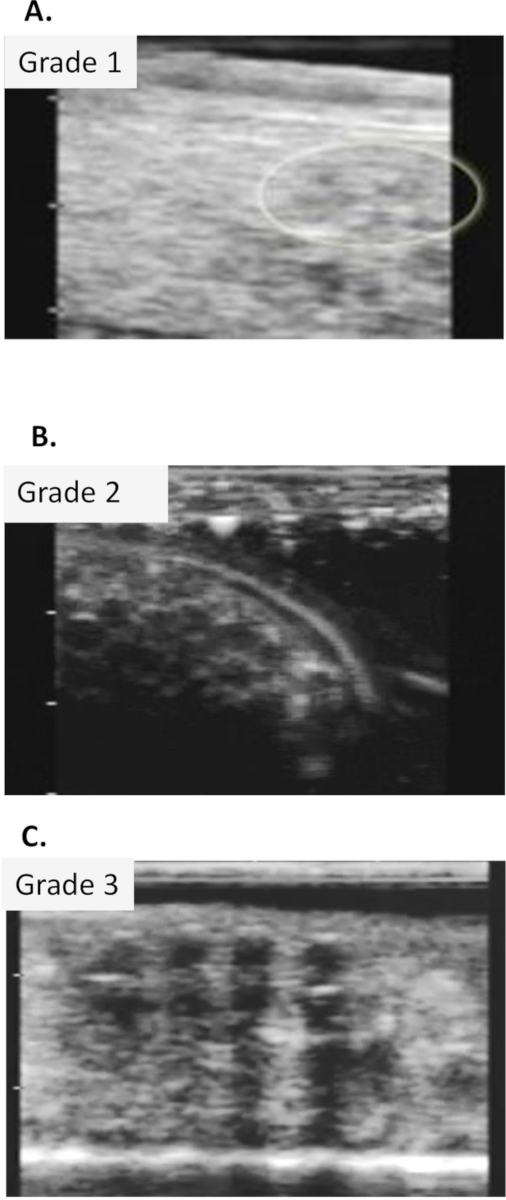
图6:Necturus的超声图像。(A)1级。(B)2级。(C)3级卵。 请点击此处查看此图的放大版本。
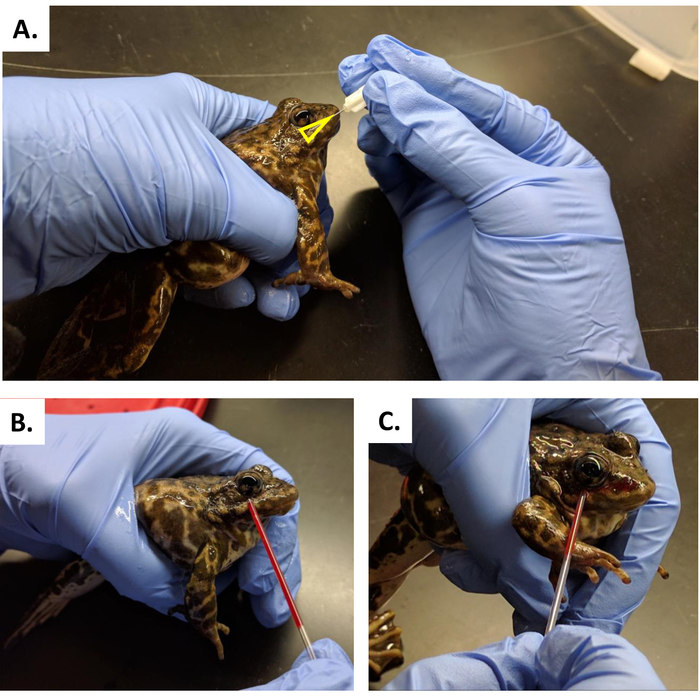
图7:R. muscosa 的血液采集。(A)通过穿刺眼眶后静脉(面静脉)采集血液,穿刺位置位于下颌线上方、眼眶中部。(B, C)血液释放至皮肤表面,用肝素化毛细管收集。请点击此处查看该图的放大版本。
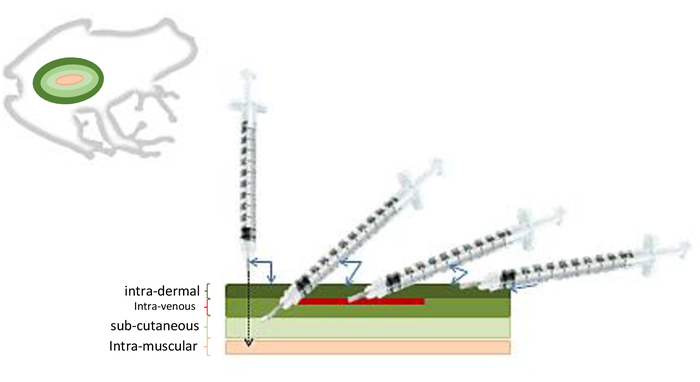
图8:两栖动物的注射方法。根据注射类型的深度不同,针头的角度和刺入深度也会有所变化。请点击此处查看该图的放大版本。

图9:R. muscosa 的激素注射。 通过激素处理诱导产卵 Rana muscosa 经腹腔注射amphiplex的雌性个体。卵巢位于体腔内 请点击此处以查看此图的放大版本。
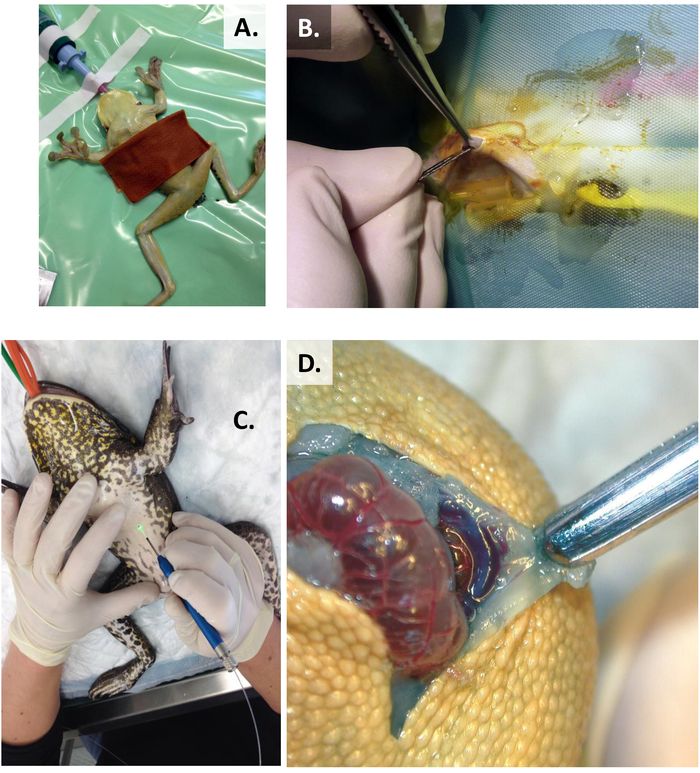
图10:手术前准备。(A)使用稀释聚维酮碘溶液(1/10)对Trachycephalus resinifictrix的手术区域进行无菌准备。(B)在Xenopus laevis上进行的清洁手术刀切口,或(C)激光二极管皮肤切口,Lithobates catesbeianus。(D)避免损伤腹侧正中静脉,Trachycephalus resinifictrix。 请点击此处查看此图的放大版本。
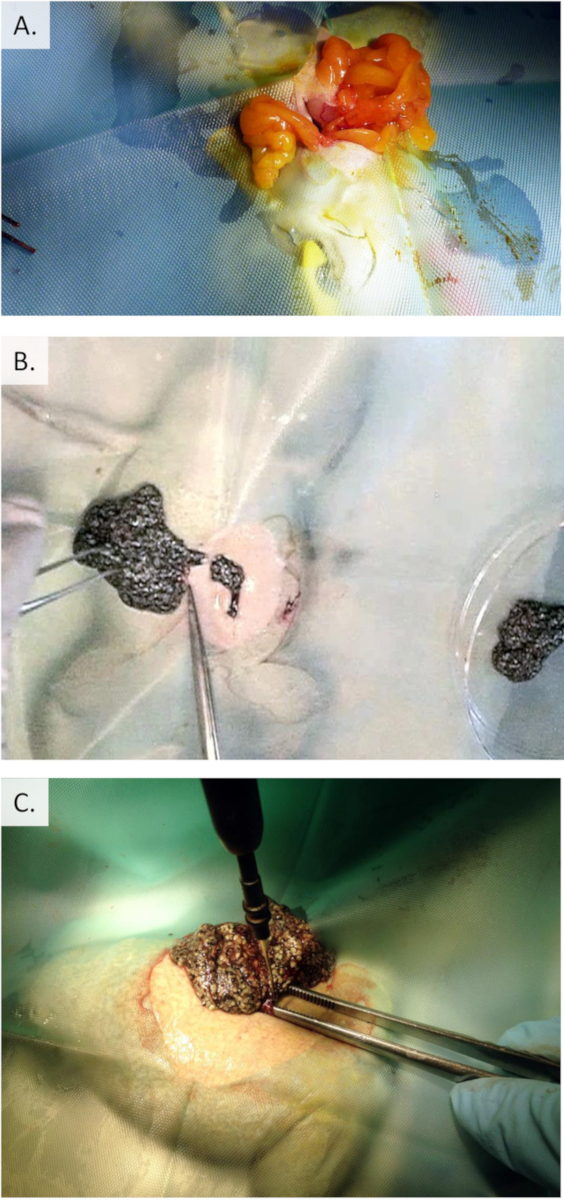
图11:非洲爪蟾的卵巢切除术。(A)暴露并移开较大的脂肪体,以显露卵团。(B)切除部分卵团,无需结扎任何血管。(C)通过电凝法烧灼周围血管,完成卵巢切除。 请点击此处查看该图的放大版本。
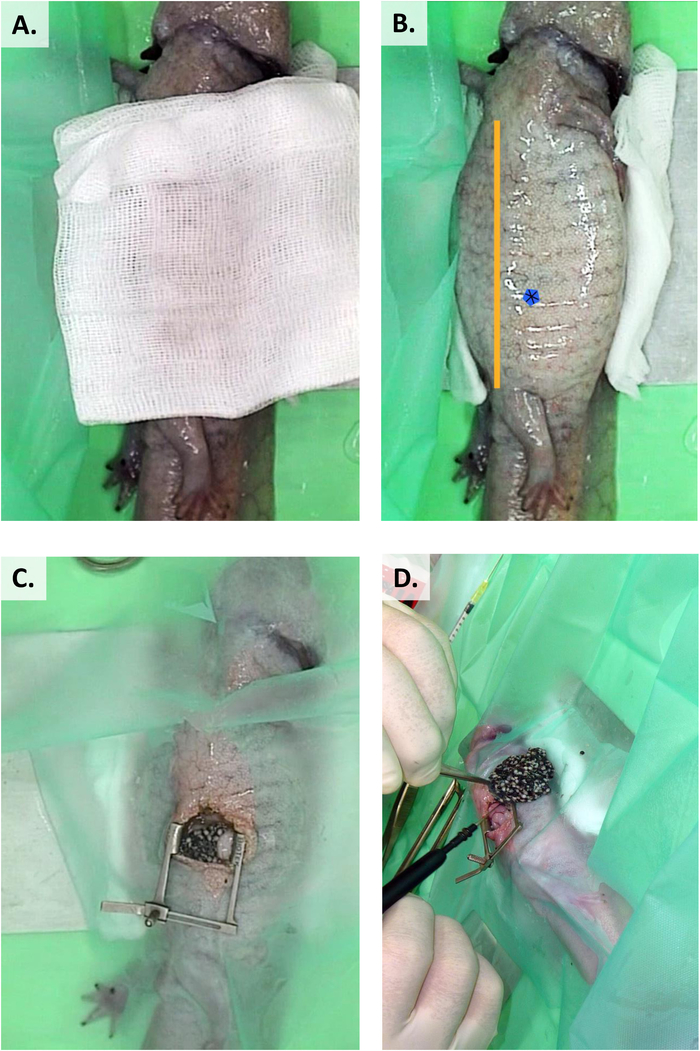
图12:A. mexicanum 的术前准备与卵巢切除术。(A)用无菌纱布浸润0.75%氯己定溶液后涂抹于手术部位。(B)在肩部与后肢之间的连线将动物分为三个相等部分,蓝色标记处为切口位置。(C)使用眼睑拉钩牵开体腔切口。(D)为完成卵巢切除,需用电灼法凝固周围血管。请点击此处查看该图的放大版本。
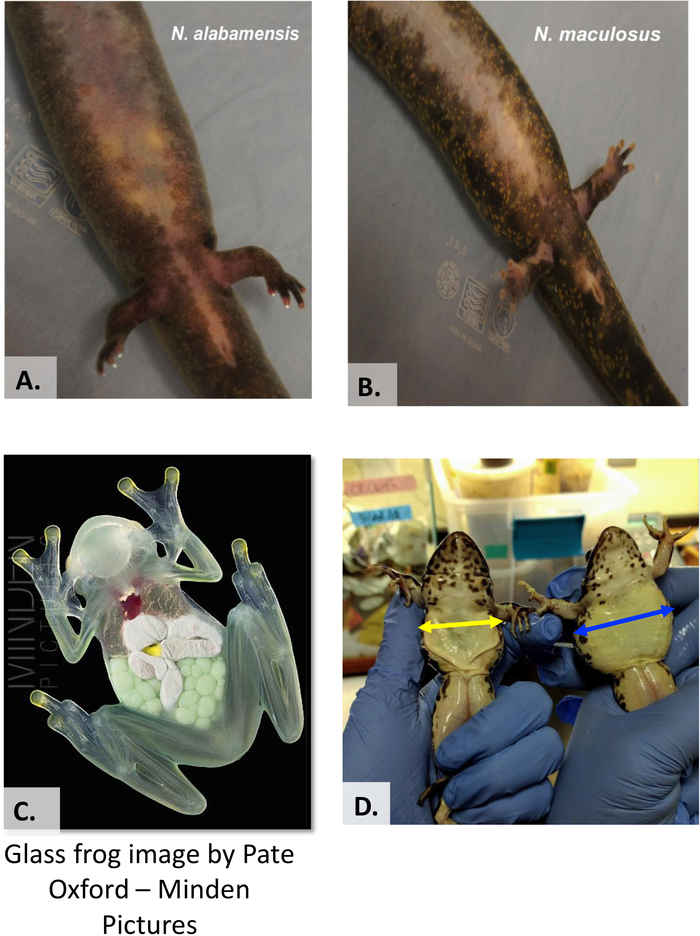
图13:生殖阶段的视觉评估。 (A, B)通过半透明皮肤对生殖阶段进行视觉评估,Necturus。(C)透明皮肤,Hyalinobatrachium(玻璃蛙)。(D)R. muscosa在产卵前(右侧,蓝线)和产卵后(左侧,黄线)的视觉评估。 请点击此处查看该图的放大版本。
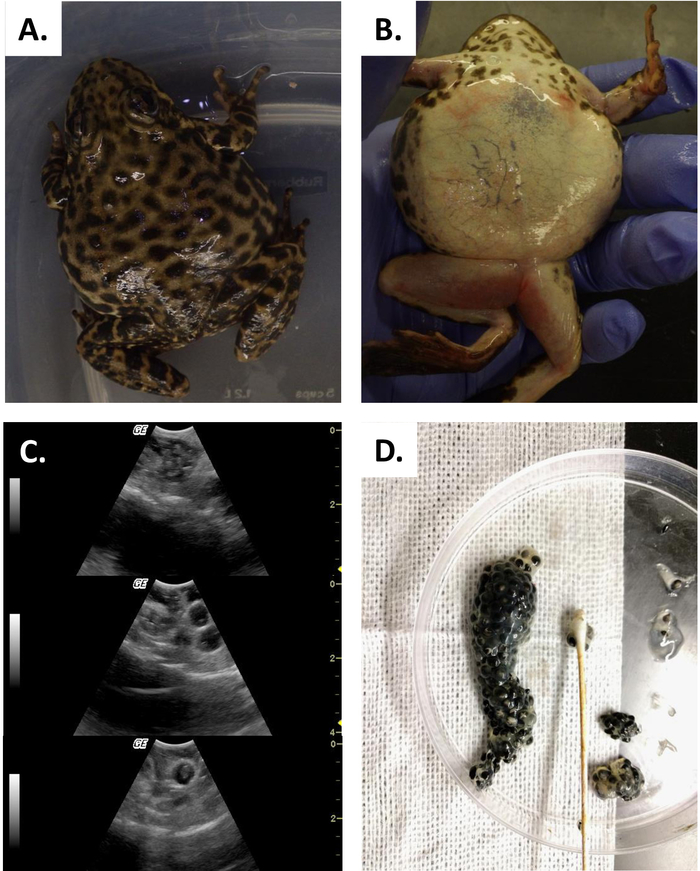
图14:卵滞留。(A, B)严重卵滞留的雌性Rana muscosa。(C)超声图像显示陈旧性退化的卵(上部)以及已排卵但滞留在体腔内的较大卵(中、下部图像)。(D)通过人工挤压法取出的滞留卵。请点击此处查看该图的高清版本。
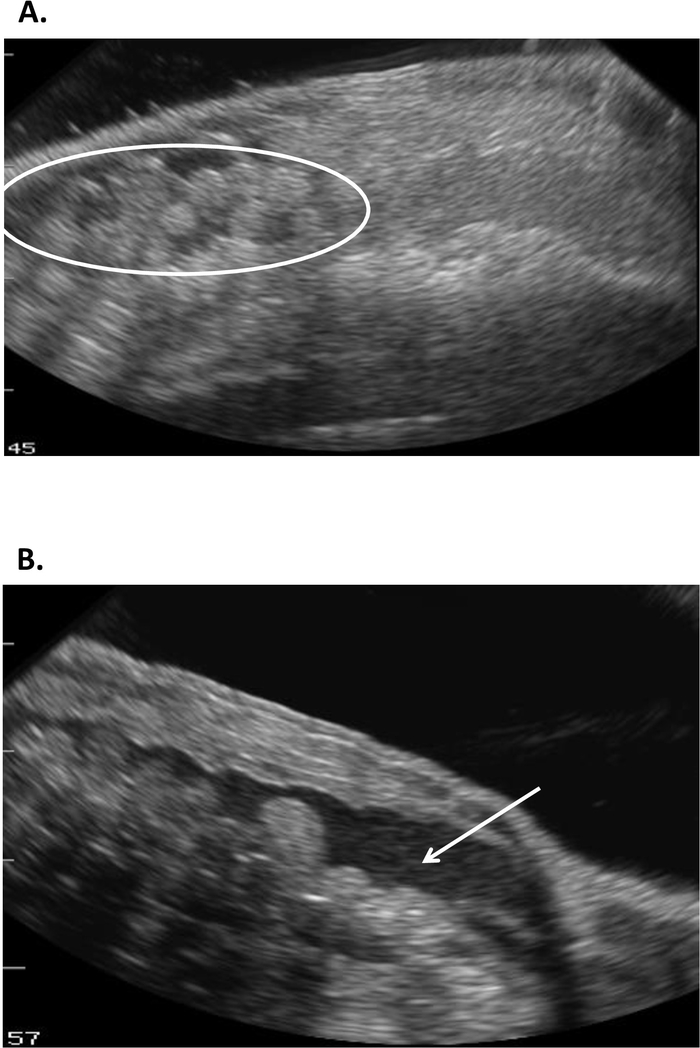
图15:Necturus体内滞留虫卵的超声图像,显示(A)虫卵回声增强(圆圈),并与(B)体腔内液体潴留相关(箭头)。请点击此处查看该图的放大版本。
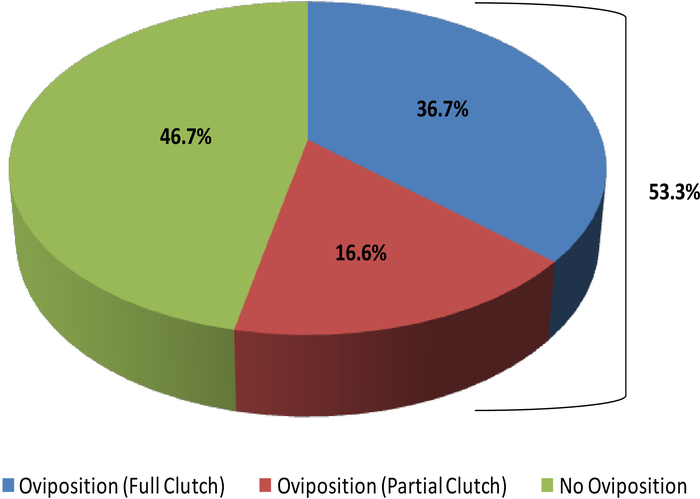
图16:圈养雌性Necturus产下完整或部分卵块的百分比(2013–2017年),以及未产卵个体的比例。 请点击此处查看该图的高清版本。
讨论
直接操作、视觉观察和形态测量提供了非侵入性技术,是判断雌性繁殖阶段的首要评估标准。然而,本研究表明,通过触诊并不总能可靠地识别怀卵卵巢。根据物种的不同,怀卵卵巢有时可通过动物腹侧半透明(图13A、B)或完全透明的皮肤在视觉上被观察到(图13C)。完成产卵的雌性个体在外观上可能表现出与怀卵雌性明显的差异(例如皮肤松弛,体重减少高达30%,图13D)。在繁殖期间,雄性和雌性会表现出某些行为,这些行为可提供有关排卵和产卵临近程度的信息。以R. muscosa为例,雌性接近产卵的征兆首先表现为雌性做出倒立动作。
将超声技术应用于 无尾目和有尾目动物,可诊断其是否怀卵,以及产卵是否伴随成熟卵子的完全或部分释放。因此,该方法能够更全面、准确地评估繁殖状态,而不受限于依赖腹部皮肤透明度或不同两栖动物物种间表皮一致性的可视化技术来判断怀卵/非怀卵状态。超声检查操作相对简便,对动物造成的应激较小(图5 和 图13),可用于表征繁殖周期并确定 繁殖状态4。熟悉目标物种的特征至关重要;然而,本研究表明,Necturus 和 R. muscosa 在其繁殖模式中具有共同的发育特征,因而可采用相似的繁殖阶段分类方法(图5)。通过该技术,目前已有证据表明,圈养条件下的 Necturus 和 R. muscosa 卵子发育水平较高,且这两个物种均呈现季节性繁殖模式。尽管这些现象的具体原因尚不明确,仍需进一步研究,但若未使用超声技术,诸如卵子滞留和部分产卵等卵巢功能异常情况将难以被发现。未来该技术的应用将用于判断雌性个体在特定年份是否适合作为繁殖对象,以及产卵是否完全。
一种有效的血液采集方案(例如在R. muscosa中所采用的方案),在尽量减少动物应激的同时,非常适合用于研究圈养及野外捕获的无尾目动物的激素谱型(Calatayud,未发表)。迄今为止,尚无关于圈养R. muscosa全年激素谱型的公开信息,因此也无法了解激素如何影响其健康与繁殖。此外,已有证据表明该物种的雌性个体可能并非每年繁殖,因此激素谱型分析将成为追踪卵巢周期的另一种手段。结合超声检查,激素分析或可更准确地预测哪些雌性个体即将进入产卵期。此外,在过去一年中,已在圈养的R. muscosa种群中记录到两例间性个体。同时,在部分年龄较大的建群雌性个体中观察到拇指垫的发育。目前正对此现象进行调查,初步结果提示其可能与睾酮水平的变化有关(Calatayud,未发表)。明确不同年龄雌性个体的激素周期将有助于我们理解为何部分雌性会发育出通常与雄性相关的第二性征,以及此类现象是否在老龄种群中具有可预期性。
外源性激素治疗已被用于克服圈养两栖动物中常见的生殖功能障碍。然而,在本研究中的R. muscosa和Necturus种群中,分别在2年和5年的时间内,均未检测到经激素处理的雌性与对照组雌性在产卵行为上存在显著差异。这可能表明所采用的激素给药方案、剂量、诱导程序及激素组合对该物种并不适宜。对个体雌性繁殖史的进一步分析表明,R. muscosa可能并非每年繁殖一次,这也可解释在处理雌性中未观察到激素效应的原因。由于每年均有相当比例的雌性持续跳过繁殖期,了解该物种的自然史有助于判断是否需要使用外源性激素以及何时使用最为有效。本文所述的操作程序可应用于多种物种(表1),适用于体重从5 g到150 g的无尾类动物;体型更大的动物可能需要不同规格的注射器和针头。注射部位因激素种类而异,有些激素需进行肌肉内、腹腔内、皮下或皮内注射(图7)。
以摘除卵巢为目的的外科手术是多种两栖动物中获取卵母细胞用于胚胎学研究的常用方法。在种群控制以及诸如卵滞留等医学问题的情况下,也可能需要进行卵巢切除术。对于出于研究目的而实施的部分卵巢切除术(即卵母细胞采集),手术必须确保动物仍保留生殖能力。研究表明,PGF2α 在解决雌性R. muscosa卵滞留问题方面具有一定潜力。在若干个体中,PGF2α 可诱导先前滞留的卵子完全排出,但在其他个体中仅实现部分排出,仍需通过人工挤压方式清除全部卵子。尽管PGF2α可能作为R. muscosa卵滞留的非手术替代方案,但其对其他两栖动物类似病理状况的疗效仍需针对不同物种进行验证。当无尾目或有尾目动物必须接受外科干预时,在实施切口前必须确保动物已达到充分的麻醉深度。需要具备敏锐的观察能力,以评估和监测本研究中所述各分类群正常的诱导麻醉及恢复反应。一旦熟悉特定解剖结构、合适的手术入路、止血方法、轻柔的组织操作以及充分的术后管理,生殖系统手术将不会构成难以克服的障碍。
披露
作者无任何利益冲突需要披露。
致谢
Natalie Calatayud 感谢 Barbara Durrant 博士在超声技术方面的培训与协助,并感谢 Exploradora de Immuebles, S.A. (EISA) 为我在 SDZG 的研究助理职位提供经济资助。感谢 Kylie Cane 博士对稿件提出的修改意见,以及各位匿名审稿专家(无论他们是谁)的宝贵建议。感谢 Jonathan Dain,2018 年夏季研究员,圣迭戈动物园保护研究所,提供了照片(图 1A、B)。Monica Stoops 对动物园与水族馆协会保护捐赠基金以及迪士尼全球保护基金表示感谢,这些基金为建立人工饲养的Necturus种群提供了资金支持。此外,两栖动物倡导者 Iris de la Motte 女士的私人捐赠也为本研究提供了资助。特此感谢 Christopher DeChant 先生和 Mark Campbell 博士为本研究作出的重要贡献。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| GE logiq Book XP 和 8C-RS 探头 4e10 MHz GE Medical Systems | GE medical systems | GE logiq Book XP | 超声 |
| Aloka 500 7.5mHz 线性或 IBEX 多频(10-6mHz)微凸探头 | GE medical systems | 8C-RS (10 MHz) | 超声探头 |
| BD 一次性 U-100 胰岛素注射器(28-29 G 针头) | Mettler Electronics Corp CA | Sonigel | 超声耦合剂(水溶性,无盐) |
| 激素 | |||
| 促性腺激素释放激素 | BACHEM | 4012028 | 同义词: [Des-Gly10, D-Ala6, Pro-NHEt9]-GnRH 醋酸盐 缩写: GnRH |
| 黄体生成素释放激素 | BACHEM, Sigma-Aldrich | 4033013; L1898 | 同义词: Pyr-His-Trp-Ser-Tyr-Gly-Leu-Arg-Pro-Gly-NH2 醋酸盐; [D-Ala6}-LHRH 醋酸盐水合物 缩写: LHRH |
| 人绒毛膜促性腺激素 | BACHEM, Sigma-Aldrich | 4030270, 4018894; C1063, CG5, CG10 | 同义词: 绒毛膜促性腺激素-β (109-145)(109-119);Choriogonin, HCG (2,500IU, 5,000IU, 10,000IU) 缩写: hCG |
| 前列腺素 2α | Sigma-Aldrich | P40424; | 同义词: (5Z,9α,11α,13E,15S)-9,11,15-三羟基前列腺-5,13-二烯酸三盐,PGF2α−Tris; 缩写: PGF2α |
| 卵泡刺激素 | Sigma-Aldrich | F4021, F8174 | 同义词: 猪源、羊源 缩写: FSH |
| 孕酮 | Sigma-Aldrich | 46665; P7556 | 同义词: Vetranal;P4 水溶性 缩写: P4 |
| 垂体提取物 | na | 同义词: 查阅相关文献以确认两栖动物物种来源 缩写: PE | |
| 孕马血清促性腺激素 | Prospec; Lee Biosolutions; Sigma-Aldrich | HOR-272; 493-10; 9002-70-4 | 同义词: 孕马血清促性腺激素 缩写: PMSG |
| 甲氧氯普胺 | Sigma-Aldrich | M0763 | 同义词: 4-氨基-5-氯-N-[2-(二乙氨基)乙基]-2-甲氧基苯甲酰胺,甲氧氯普胺 缩写: MET |
| Lucrin | BACHEM; Sigma-Aldrich | 4033014; L0399 | 同义词: 醋酸亮丙瑞林 缩写: Lucrin |
| Lutalyse | Pfizer | 同义词: PGF2α - 地诺前列酮三甲胺 缩写: Lut | |
| 匹莫齐特 | Sigma-Aldrich | P1793 | 同义词: 1-[1-[4,4-双(4-氟苯基)丁基]-4-哌啶基]-1,3-二氢-2H-苯并咪唑-2-酮 缩写: PZ |
| Amphiplex | 见上文 | 同义词: 促性腺激素释放激素 + 甲氧氯普胺 缩写: GnRH + MET | |
| Ovopel | Ovopel | na | 同义词: GnRHa + 多巴胺受体拮抗剂(每公斤给予 1 粒药丸) 缩写: Ovo |
| Ovaprim | Pentair aquatic eco-systems | Ova10 | 同义词: 鲑鱼促性腺激素 + 多潘立酮 缩写: Ova |
| 多潘立酮 | Sigma-Aldrich | D122 | 同义词: 4-(5-氯-2-氧代-1-苯并咪唑啉基)-1-[3-(2-氧代苯并咪唑啉基)丙基]哌啶 缩写: DOM |
参考文献
- Conde, D. A., Flesness, N., Colchero, F., Jones, O. R., Scheuerlein, A. An emerging role of zoos to conserve biodiversity. Science. 331 (6023), 1390-1391 (2011).
- Conde, D. A., et al. Zoos through the Lens of the IUCN Red List: A Global Metapopulation Approach to Support Conservation Breeding Programs. PLoS ONE. 8 (12), e80311(2013).
- Morrison, C., Hero, J. -M. Geographic variation in life-history characteristics of amphibians: a review. Journal of Animal Ecology. 72 (2), 270-279 (2003).
- Calatayud, N. E., Stoops, M., Durrant, B. S. Ovarian control and monitoring in amphibians. Theriogenology. , 70-81 (2018).
- National Research Council. Institutional Animal Care and Use Committee Guidebook. , (2010).
- Peig, J., Green, A. J. New perspectives for estimating body condition from mass/length data: the scaled mass index as an alternative method. Oikos. 118 (12), 1883-1891 (2009).
- Graham, K. M., Langhorne, C. J., Vance, C. K., Willard, S. T., Kouba, A. J. Ultrasound imaging improves hormone therapy strategies for induction of ovulation and in vitro fertilization in the endangered dusky gopher frog (Lithobates sevosa). Conservation Physiology. 6 (1), coy020(2018).
- Wright, K. M., Whitaker, B. R. Amphibian Medicine and Captive Husbandry. , Krieger Publishing Company. (2001).
- Forzán, M. J., Vanderstichel, R. V., Ogbuah, C. T., Barta, J. R., Smith, T. G. Blood collection from the facial (maxillary)/musculo-cutaneous vein in true frogs (family Ranidae). Journal of Wildlife Diseases. 48 (1), 176-180 (2012).
- Allender, M. C., Fry, M. M. Amphibian hematology. Veterinary Clinics of North America: Exotic Animal Practice. 11 (3), 463-480 (2008).
- Green, S. L., Parker, J., Davis, C., Bouley, D. M. Ovarian hyperstimulation syndrome in gonadotropin-treated laboratory South African clawed frogs (Xenopus laevis). Journal of the American Association for Laboratory Animal Science. 46 (3), 64-67 (2007).
- Jorgensen, C. B. External and internal control of patterns of feeding, growth and gonadal function in a temperate zone anuran, the toad Bufo bufo. Journal of Zoology. 210 (2), 211-241 (1986).
- Jørgensen, C. B. Growth and reproduction. Environmental Physiology of the Amphibians. , 439-466 (1992).
- Vu, M., Trudeau, V. L. Neuroendocrine control of spawning in amphibians and its practical applications. General and Comparative Endocrinology. 234, 28-39 (2016).
- Clulow, J., Trudeau, V. L., Kouba, A. J. Amphibian declines in the twenty-first century: why we need assisted reproductive technologies. Reproductive Sciences in Animal Conservation. , 275-316 (2014).
- Kouba, A., et al. Assisted reproductive technologies (ART) for amphibians. Amphibian Husbandry Resource Guide. 2, 60-118 (2012).
- Clulow, J., et al. Optimisation of an oviposition protocol employing human chorionic and pregnant mare serum gonadotropins in the Barred Frog Mixophyes fasciolatus (Myobatrachidae). Reproductive Biology and Endocrinology. 10 (1), 60(2012).
- Browne, R. K., Seratt, J., Vance, C., Kouba, A. Hormonal priming, induction of ovulation and in-vitro fertilization of the endangered Wyoming toad (Bufo baxteri). Reproductive Biology and Endocrinology. 4 (1), 34(2006).
- Calatayud, N. E., et al. A hormone priming regimen and hibernation affect oviposition in the boreal toad (Anaxyrus boreas boreas). Theriogenology. 84 (4), 600-607 (2015).
- Stoops, M. A., Campbell, M. K., Dechant, C. J. Successful captive breeding of Necturus beyeri through manipulation of environmental cues and exogenous hormone administration: a model for endangered Necturus. Herpetological Review. 45 (2), 251-256 (2014).
- Mc Creery, B. R., Licht, P. Induced ovulation and changes in pituitary responsiveness to continuous infusion of gonadotropin-releasing hormone during the ovarian cycle in the bullfrog, Rana catesbeiana. Biology of Reproduction. 29 (4), 863-871 (1983).
- Johnson, C. J., Vance, C. K., Roth, T. L., Kouba, A. J. Oviposition and ultrasound monitoring of American toads (Bufo americanus) treated with exogenous hormones. Proceedings of the American Association of Zoo Veterinarians. 299, 301(2002).
- Herbert, D. Studies of assisted reproduction in the spotted grass frog Limnodynastes tasmaniensis: ovulation, early development and microinjection (ICSI). , (2004).
- Michael, S. F., Buckley, C., Toro, E., Estrada, A. R., Vincent, S. Induced ovulation and egg deposition in the direct developing anuran Eleutherodactylus coqui. Reproductive Biology and Endocrinology. 2, 6(2004).
- Ogawa, A., Dake, J., Iwashina, Y., Tokumoto, T. Induction of ovulation in Xenopus without hCG injection: the effect of adding steroids into the aquatic environment. Reproductive Biology and Endocrinology. 9 (1), 11(2011).
- Silla, A. J. Effects of luteinizing hormone-releasing hormone and arginine-vasotocin on the sperm-release response of Günther’s Toadlet, Pseudophryne guentheri. Reproductive Biology and Endocrinology. 8 (1), 139(2010).
- Trudeau, V. L., et al. Hormonal induction of spawning in 4 species of frogs by coinjection with a gonadotropin-releasing hormone agonist and a dopamine antagonist. Reproductive Biology and Endocrinology. 8 (1), 36(2010).
- Krause, E. T., von Engelhardt, N., Steinfartz, S., Trosien, R., Caspers, B. A. Ultrasonography as a minimally invasive method to assess pregnancy in the fire salamanders (Salamandra salamandra). Salamandra. 49, 211-214 (2013).
- Browne, R. K., Li, H., Seratt, J., Kouba, A. Progesterone improves the number and quality of hormone induced Fowler toad (Bufo fowleri) oocytes. Reproductive Biology and Endocrinology. 4 (1), 3(2006).
- Bramucci, M., et al. Different modulation of steroidogenesis and prostaglandin production in frog ovary in vitro by ACE and ANG II. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology. 273 (6), R2089-R2096 (1997).
- Gobbetti, A., Zerani, M. Possible roles for prostaglandins E2 and F2α in seasonal changes in ovarian steroidogenesis in the frog (Rana esculenta). Journal of Reproduction and Fertility. 98 (1), 27-32 (1993).
- Gobbetti, A., Zerani, M., Carnevali, O., Botte, V. Prostaglandin F2α in female water frog, Rana esculenta: Plasma levels during the annual cycle and effects of exogenous PGF2α on circulating sex hormones. General and Comparative Endocrinology. 80 (2), 175-180 (1990).
- Guillette, L. J. Jr, Dubois, D. H., Cree, A. Prostaglandins, oviducal function, and parturient behavior in nonmammalian vertebrates. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology. 260 (5), R854-R861 (1991).
- Clulow, J., Mahony, M., Browne, R., Pomering, M., Clark, A. Applications of assisted reproductive technologies (ART) to endangered anuran amphibians. Declines and Disappearances of Australian Frogs'. Campbell, A. , 219-225 (1999).
- Browne, R. K., Wolfram, K., García, G., Bagaturov, M. F., Pereboom, Z. Zoo-based amphibian research and conservation breeding programs. Amphibian and Reptile Conservation. 5 (3), 1-14 (2011).
- Chai, N. Surgery in amphibians. Veterinary Clinics: Exotic Animal Practice. 19 (1), 77-95 (2016).
- Gentz, E. J. Medicine and surgery of amphibians. Ilar Journal. 48 (3), 255-259 (2007).
- Snyder, W. E., Trudeau, V. L., Loskutoff, N. M. 168 a noninvasive, transdermal absorption approach for exogenous hormone induction of spawning in the northern cricket frog, Acris crepitans: a model for small, endangered amphibians. Reproduction, Fertility and Development. 25 (1), 232-233 (2012).
- Kouba, A. J., et al. Emerging trends for biobanking amphibian genetic resources: the hope, reality and challenges for the next decade. Biological Conservation. 164, 10-21 (2013).
- Michael, S. F., Buckley, C., Toro, E., Estrada, A. R., Vincent, S. Induced ovulation and egg deposition in the direct developing anuran Eleutherodactylus coqui. Reproductive Biology and Endocrinology. 2 (1), 6(2004).
- Fort, D. J. Frog reproduction and development study 2000 rana pipiens reproduction and development study. , Environmental Protection Agency. (2003).
- Clulow, J., et al. Differential success in obtaining gametes between male and female Australian temperate frogs by hormonal review: A Review. General and Comparative Endocrinology. 265, 141-148 (2018).
- Trottier, T. M., Armstrong, J. B. Diploid gynogenesis in the Mexican axolotl. Genetics. 83 (4), 783-792 (1976).
- Marcec, R. M. Development of assisted reproductive technologies for endangered North American salamanders. , Mississippi State University. (2016).
- Wright, M. L. Melatonin, diel rhythms, and metamorphosis in anuran amphibians. General and Comparative Endocrinology. 4, (2002).
重印与许可
