我们介绍了一种荧光检测方法,用于证明 Lucifer Yellow(LY)是一种可靠的标志物,可用于测定人脑微血管内皮细胞 D3 系(hCMEC/D3)单层细胞的表观旁细胞通透性,该细胞模型是人血脑屏障的体外模型。我们利用该检测方法确定了培养的 hCMEC/D3 细胞形成融合单层的动态过程。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
血脑屏障(BBB)由内皮细胞构成,形成系统循环与大脑之间的屏障,以阻止非必需离子和有毒物质的交换。紧密连接(TJ)有效封闭单层细胞间的旁细胞间隙,从而形成完整的屏障。本研究描述了一种基于荧光素(LY)的荧光检测方法,可用于测定其表观通透系数(Papp),进而用于评估hCMEC/D3单层细胞融合过程中紧密连接屏障完整性的形成动力学。我们进一步展示了该检测方法的另一用途,即评估转染细胞中紧密连接的功能完整性。LY的Papp检测结果显示,在Transwell体系中接种的hCMEC/D3细胞在培养7天后能有效限制LY的旁细胞转运。作为该检测方法的附加应用,我们还证明了DNA纳米颗粒转染不会改变hCMEC/D3单层细胞中LY的旁细胞转运。
引言
血脑屏障(BBB)是一种保护性屏障,可限制血浆成分进入脑组织,主要由脑血管内皮细胞及周细胞等支持细胞构成。BBB 的主要功能是作为屏障,封闭外周血液与中枢神经系统(CNS)之间的通路,以维持神经微环境的稳态1,2。脑毛细血管内皮细胞通过形成细胞间紧密连接(TJs)有效封闭了旁细胞通路1。该保护性屏障允许葡萄糖和部分营养物质进入脑组织,同时阻止大多数离子、有毒物质和药物穿过这一紧密屏障。除了保护作用外,BBB 的天然屏障功能也给靶向中枢神经系统的药物递送系统的开发带来了严峻挑战。
血脑屏障(BBB)的体外细胞培养模型是研究其生物学特性以及理解药物治疗对紧密连接屏障完整性影响的有力工具。我们采用人脑微血管内皮细胞系(hCMEC/D3)作为体外模型,因其是公认的人脑内皮细胞模型3,并能重现人血脑屏障的多种功能。hCMEC/D3是目前最常用的体外血脑屏障建模细胞系之一4,5,6,7,8,9。尽管其跨内皮电阻(TEER)值相对较低——这是衡量屏障紧密性的一个指标——但该细胞系仍保留了脑内皮细胞的大部分形态和功能特性,即使在无胶质细胞共培养的单层培养条件下亦如此6,7。hCMEC/D3细胞系可表达多种血脑屏障标志物,包括主动转运蛋白和受体,并在传代至约第35代前不会去分化为不稳定表型6,7,9,10,11。hCMEC/D3细胞系作为体外血脑屏障模型最显著的特征是其形成紧密连接的能力5,9,11,12。值得注意的是,尽管在许多研究中干细胞来源的血脑屏障模型相比hCMEC/D3细胞系表现出更高的通透性,并且确实表达某些血脑屏障标志物,但其尚未发展成为最常用的血脑屏障细胞模型13。更重要的是,干细胞来源的血脑屏障模型仍需明确其可维持稳定血脑屏障表型的最大传代次数14。
通常采用三种主要方法来评估紧密连接(TJ)屏障的完整性,包括跨上皮电阻(TEER)的测定、小分子亲水性示踪剂(如蔗糖、菊粉、Lucifer Yellow等)的表观渗透系数(Papp)测定,以及对已知TJ分子标志物(如claudin-5、ZO-1、occludin等)进行免疫荧光染色5。TEER是一种相对简单且定量的方法,用于测量培养在多孔膜基底上的细胞单层的电学电阻5。然而,TEER值可能受到多种实验变量的影响,例如培养基的组成和测量仪器的类型。这些因素的综合作用可能导致hCMEC/D3细胞系在培养2至21天后TEER值分布范围较广,从2到1150 Ω cm2不等13。免疫荧光染色是一种通过抗体标记目标蛋白来直观检测TJ蛋白存在的方法。然而,该方法涉及一系列实验步骤,包括细胞固定和通透处理,可能引入实验假象,且荧光信号可能随时间衰减。上述因素可能导致主观误差,影响数据质量。
本研究的主要目的是介绍一种基于荧光素异硫氰酸盐(LY)的表观通透性测定方法,用于确定培养的 hCMEC/D3 细胞形成融合单层的动态过程。尽管其他先进的体外血脑屏障(BBB)系统(如共培养系统、微流控系统)在生理相关性方面更接近真实情况,且屏障功能显著改善15,16,17,但 hCMEC/D3 细胞的 transwell 培养体系仍是一种简单可靠的模型,可用于评估紧密连接(TJ)形成的动力学,并快速筛选不同药物制剂对屏障功能的影响。通常情况下,hCMEC/D3 单层细胞对多种亲水性溶质的 Papp 值具有一致性。例如,在不同的体外 BBB 模型中,报道的多种小分子质量溶质(如蔗糖、甘露醇、LY 等)的 Papp 值均在 10-4 cm/min 数量级5,18,19,20。在我们的实验设置中,脑微血管内皮细胞被接种于经胶原蛋白包被的微孔膜上,以促进细胞贴附和单层结构的形成,从而模拟体内屏障。将 LY 加入顶端侧后,预期其通过细胞间的紧密连接穿过屏障,并在基底外侧侧积累。基底外侧侧中较高的 LY 浓度表明屏障尚未成熟或功能未完全建立,而较低的浓度则反映由于功能性紧密连接的存在限制了物质转运,表明已形成成熟的屏障。
LY 是一种亲水性染料,具有明显的激发/发射峰,可避免使用放射性标记的示踪分子(如蔗糖、甘露醇或菊粉)。因此,可通过LY的荧光值直接计算其跨血脑屏障单层细胞的旁细胞通透性。此外,与生物医学领域中许多商用染料(如荧光素21)因斯托克斯位移较小而受限相比,LY的斯托克斯位移约为108 nm,具有足够的光谱分离度,从而使LY的荧光数据成为测定旁细胞通透性的可靠读数。我们采用蛋白质印迹法(Western blotting)作为正交技术,以展示培养过程中紧密连接标志蛋白ZO-1表达水平的变化。通过蛋白质印迹法检测到的ZO-1表达用于补充LY的Papp数据,结合两者结果表明,LY的Papp值的变化反映了单层细胞的形成过程,并伴随着紧密连接标志蛋白ZO-1表达水平的逐步升高。
如前所述,本研究的核心目标是展示一种荧光素黄(LY)检测方法,作为一种简单技术,用于监测具有功能性紧密连接的融合单层的形成。然而,为了进一步展示所建立检测方法的额外用途,我们测定了转染了DNA纳米颗粒的hCMEC/D3单层细胞中LY的表观渗透系数(Papp)。核酸可通过带正电荷的聚合物基团与带负电荷的核酸磷酸基团之间的静电相互作用,凝聚成直径为100–200 nm的聚电解质纳米颗粒22,23。在本研究中,我们将这些复合物称为DNA纳米颗粒(DNA NPs)。尽管我们的目的是转染细胞并表达目标蛋白,但我们必须确保hCMEC/D3单层细胞的屏障特性未受到破坏。我们的数据表明,标准的4小时荧光素酶基因转染程序并未显著改变LY的通透性,从而证明了LY Papp检测在评估紧密连接屏障完整性变化方面的实用性。
访问受限。请登录或开始试用以查看此内容。
方案
1. 人脑微血管内皮细胞 hCMEC/D3 的常规培养
- 冻存细胞的复苏
注意:所有细胞培养的维持和实验均在无菌生物安全柜内进行。培养基、添加剂和试剂均购买无菌产品,或通过使用 0.22 µm 膜滤器过滤灭菌,以防止微生物污染。- 在组织培养瓶(75 cm2 生长面积;以下简称 T75)中加入 8.5 mL 胶原蛋白溶液(0.15 mg/mL),置于培养箱(37 °C,5% CO2)中孵育 1 h。
- 移除胶原蛋白溶液,并用无菌磷酸盐缓冲液(PBS)轻轻洗涤培养瓶。向瓶中加入 15 mL 完全培养基,并在 CO2 培养箱中放置 15 min。
注意:完全培养基(终浓度)包含内皮细胞生长基础培养基-2(500 mL),并添加胎牛血清(5%)、青霉素-链霉素(1%)、氢化可的松(1.4 µM)、抗坏血酸(5 µg/mL)、化学成分明确的脂质浓缩液(1/100)、HEPES(10 mM)和碱性成纤维细胞生长因子(1 ng/mL)。 - 从液氮罐中取出一支冻存的 hCMEC/D3 细胞冻存管,迅速在 37 °C 水浴中融化(< 1 min)。
- 当仅剩微小冰晶可见时,迅速吸出并转移细胞至含有预温培养基的培养瓶中。轻轻摇晃培养瓶,使细胞与培养基充分混匀。
- 将培养瓶放回培养箱(37 °C,5% CO2),2 h 后在光学显微镜下观察细胞,确保细胞已贴壁。
- 待细胞贴壁后,移除旧的培养基,并加入 10 mL 新鲜预温的培养基,以替换旧培养基中的二甲基亚砜24。
- 24 h 后,在光学显微镜下检查细胞,观察纺锤形细胞形态,并更换为预温的新鲜培养基。
- 细胞培养的维持
- 每隔一天补充一次培养基,直至细胞达到 100% 汇合。在更换旧培养基前后均需在显微镜下检查细胞。将培养瓶从培养箱中取出,在相差显微镜下观察 hCMEC/D3 细胞,确保其状态良好。
注意:大多数细胞应贴附于培养瓶底部,呈纺锤形形态,有时可见细胞膜周围有轻微折光现象。培养基应透明(无浑浊),呈粉橙色。 - 从培养瓶中移除旧培养基,并向瓶中转移 10 mL 预温的新鲜培养基。
注意:应将培养基加至培养瓶的上侧,避免直接加在细胞表面,以防影响细胞贴壁。 - 将培养瓶恢复水平位置,轻轻晃动数次,并在放回培养箱(37 °C,5% CO2)前在显微镜下检查 hCMEC/D3 细胞。
- 每次操作细胞前后,均应在倒置光学显微镜下观察细胞,包括常规培养和实验期间。在实验记录本中记录细胞数量或形态的任何明显变化。
- 每隔一天补充一次培养基,直至细胞达到 100% 汇合。在更换旧培养基前后均需在显微镜下检查细胞。将培养瓶从培养箱中取出,在相差显微镜下观察 hCMEC/D3 细胞,确保其状态良好。
- 细胞传代
- 在培养箱(37 °C,5% CO2)中,用 8.5 mL 胶原蛋白溶液孵育新的 T75 培养瓶 1 h。
- 移除胶原蛋白溶液,并用无菌 PBS 轻轻洗涤培养瓶。向新培养瓶中加入 10 mL 预温的 hCMEC/D3 培养基,并将培养瓶放回培养箱(37 °C,5% CO2)。
- 从培养箱中取出培养瓶,在相差显微镜下观察 hCMEC/D3 细胞,检查细胞是否达到 100% 汇合。
- 移除含细胞的培养瓶中的 hCMEC/D3 培养基,并用 10 mL PBS 洗涤细胞。
注意:培养基中添加的胎牛血清(FBS)含有蛋白酶抑制剂,如 α1-抗胰蛋白酶和 α2-巨球蛋白,这些成分会抑制胰蛋白酶消化过程。因此,必须用 PBS 洗涤细胞以去除残留的 FBS,防止胰蛋白酶消化过程受抑制。 - 加入 1 mL 含 0.02% EDTA 的 0.25% 胰蛋白酶溶液,在培养箱(37 °C,5% CO2)中消化 2–5 min(可轻轻敲击培养瓶侧面以促进细胞脱落)。
注意:细胞在胰蛋白酶/EDTA 中的处理时间不得超过 6 min。 - 加入 10 mL 预温的 hCMEC/D3 培养基以终止消化,并通过反复吹打使 hCMEC/D3 细胞重悬。然后将全部细胞悬液转移至 15 mL 离心管中。
- 从 15 mL 离心管中取 1 mL 细胞悬液转移至含有预温新鲜培养基的新培养瓶中(按 1:10 比例传代),并将新培养瓶放回培养箱。
注意:在转移至新培养瓶前,需反复吹打细胞悬液数次,以减少细胞浓度梯度。
2. 细胞铺板
- 将带有微孔膜的组织培养小室(孔径:0.4 µm,材质:聚对苯二甲酸乙二醇酯(PET))放入24孔培养板中。
- 在每个组织培养小室内加入400 µL I型胶原蛋白溶液(浓度:0.15 mg/mL),置于CO2培养箱中孵育1小时(37 °C,5% CO2)。轻轻摇动24孔板,使胶原蛋白溶液在组织培养小室的微孔膜上均匀铺展。
- 移除胶原蛋白溶液,并用0.4 mL的1×PBS缓冲液轻轻洗涤微孔膜。
- 在细胞培养小室内接种hCMEC/D3细胞,密度为50,000个细胞/cm2(在500 µL培养基中加入15,000个细胞)。
注意:为尽量减少每个组织培养小室中细胞数量的差异,在将细胞加入小室前,需用10 mL移液器重新混悬细胞悬液。 - 将装有组织培养装置的24孔板放入培养箱(37 °C,5% CO2)中,以促进细胞贴壁和增殖。
- 继续孵育7天,使细胞达到100%汇合度。每隔一天更换一次生长培养基,并向组织培养小室中转移0.5 mL预热的新鲜培养基。
- 在12孔板、48孔板和96孔板上重复上述接种步骤(步骤2.2–2.6)。使用12孔板进行Western blot检测,以分析ZO-1表达水平的变化;使用48孔板进行DNA纳米颗粒转染;使用96孔板进行ATP检测,以评估转染后细胞的活力。
3. 细胞生长动力学。
- 以每平方厘米50,000个细胞的密度接种细胞2 置于胶原蛋白包被的24孔组织培养板中。
- 在实验的每一天,移除培养基,并用 PBS 缓冲液轻轻洗涤细胞两次 500 µL 1× PBS。然后,加入 30 µL 含0.02% EDTA的0.25%胰蛋白酶溶液,将培养板置于培养箱中孵育约2-5分钟(37 °C,5% CO2).
注意:单层细胞逐渐融合可能影响细胞脱落的程度,因此有必要按此处说明增加胰蛋白酶/EDTA的用量。 30 µL 接种后1-5天 60 µL 接种后6-7天 100 µL 接种后8-10天。 - 添加以下其中之一 470 µL, 440 µL 或 400 µL 根据步骤3.2中加入的胰蛋白酶/EDTA溶液的体积,确定生长培养基的用量以进行准备 500 µL 每孔加入细胞悬液。
- 通过反复吹打每孔中的液体数次使细胞悬浮,并在显微镜下观察,确保所有细胞均已悬浮于生长培养基中。若反复吹打后仍有部分细胞贴附于培养板底部,可使用塑料细胞刮轻轻刮取,以促进细胞脱落。
- 从细胞悬液中取出 0.1 mL 500 µL 将第3.3步中的细胞悬液加入1.5 mL离心管中,然后向细胞悬液中加入0.1 mL 0.4%台盼蓝溶液,充分混匀。
- 用70%异丙醇清洁血细胞计数板。加入 20 µL 在V型槽的每侧各加入3.5步骤中的混合液,并在显微镜下定位16个方格。将这16个方格视为一个计数区。在血细胞计数板每侧随机选取两个计数区,计数其中所有存活的非蓝色细胞。
注意:呈蓝色的细胞不计入计数, <在所有时间点,均有1%的细胞呈蓝色染色。 - 计算细胞密度(cells/cm2)根据以下公式计算。
平均细胞数/网格 =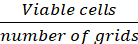 (公式1)
稀释倍数= (公式2)
细胞密度(活细胞数/cm²)2) =

(公式3)
公式 1-3。 活细胞数为在每个方格中计数的细胞数量,方格数对应显微镜下观察到的方格数目,细胞悬液与0.4%台盼蓝混合液体积为步骤3.5中制备的体积,移除的细胞悬液体积为从其中移除的体积 500 µL 第3.5步中的细胞悬液,每孔细胞悬液的体积为 500 µL 第3.3步的细胞悬液,组织培养板的生长区域为24孔板中单个孔的生长区域。
4. 荧光黄表观通透性(LY Papp)检测
- 为测定接种后每一天的 LY Papp,从步骤 4.3 开始操作。为测定转染的 hCMEC/D3 细胞中的 Papp,将 8.3 µL 转染试剂(图 1)与 50 µL 完全培养基混合,孵育 4 小时。转染试剂的配方详见第 5 节。
- 4 小时转染后,用无菌 1× PBS 缓冲液轻柔清洗顶端侧两次,以去除残留的转染混合物。清洗后残留不同体积的 PBS 缓冲液可能影响顶端侧 LY 的浓度。务必确保组织培养小室中残留的 PBS 缓冲液被完全清除。小心吸除残留试剂和培养基,以尽量减少细胞脱落。
注意:在测定 hCMEC/D3 细胞每日表观渗透系数(Papp)时,跳过此步骤。 - 移除培养基,并在基底外侧加入 1.5 mL 预热(37 °C)的转运缓冲液(25 mM HEPES、145 mM NaCl、3 mM KCl、1 mM CaCl2、0.5 mM MgCl2、1 mM NaH2PO4、5 mM 葡萄糖,pH 7.4)。
注意:所有基底外侧隔室中的转运缓冲液体积应保持一致,以确保渗透系数计算的准确性。 - 在每个 Transwell 小室的顶端侧加入 58.3 µL 的 20 µM LY 溶液。保留 50 µL 的 20 µM LY 溶液用于荧光测定。在完全清除顶端侧残留 PBS 缓冲液后,应尽快加入 LY 溶液,以避免 hCMEC/D3 细胞干燥。确保顶端侧 LY 溶液的体积准确。
注意:为尽量减少 LY 荧光强度的衰减,应限制光照。LY 粉末重悬后,溶液应于 4 °C 避光保存。 - 在旋转平板摇床中孵育(37 °C,100 rpm)60 分钟。然后,从每个顶端隔室中取出 30 µL LY 样品。随后将 20 µM LY 原液和顶端侧样品转移至预先标记的试管中,并用转运缓冲液稀释 10 倍。
注意:必须稀释 20 µM LY 原液和顶端侧样品,因为这些样品的高荧光强度可能超出荧光微孔板读板仪的检测范围,甚至造成检测器损坏。 - 从每个基底外侧隔室中取出 500 µL 样品,并转移至预先标记的试管中。
注意:在指定时间点从不同的 Transwell 小室中取样。时间点为接种后第 1 天至第 10 天的每一天。 - 配制一系列 LY 标准品用于标准曲线(39.00 nM、78.13 nM、156.25 nM、312 nM、625 nM、1250 nM、2500 nM)。
- 将每种标准品(设复孔)、顶端侧和基底外侧样品各 100 µL 加入黑色 96 孔板的各孔中(图 1)。
注意:黑色孔板可吸收光线,减少背景荧光和孔间荧光串扰。 - 使用荧光微孔板读板仪(设定参数:激发波长 428 nm,发射波长 536 nm)测定 LY 荧光强度,以计算 Papp。本研究采用荧光微孔板读板仪进行检测。
- 按文稿正文所述方法计算 Papp 和 %LY 回收率。
公式 4. 计算 Papp 值的公式。
使用以下公式计算表观渗透系数(Papp)和 %LY 回收率。需注意,Papp 值可根据 LY 的质量25 或浓度进行计算。
 或

VA - 顶端隔室中的体积
VB - 基底外侧隔室中的体积
A - Transwell 小室膜的表面积(0.3 cm2)
MA0 - 顶端隔室中的初始质量
ΔMB/Δt - 基底外侧隔室中质量随时间的变化率
CA0 - 顶端隔室中的初始浓度
ΔCB/Δt - 基底外侧隔室中浓度随时间的变化率。
公式 5. 计算 % LY 回收率的公式。
回收率 (%) =
MAf 为终点时顶端隔室中的质量,MBf 为终点时基底外侧隔室中的质量,MA0 为顶端隔室中的初始质量.26 注意:初始质量根据步骤 4.5 中 20 µM LY 溶液的体积计算得出。本实验始终使用传代次数不超过 35 代的细胞,并独立重复进行四次。
5. 钙离子耗竭
- 从Transwell小室和12孔板中移除培养基,用预热的无钙培养基(Minimum Essential Medium Eagle Spinner (S-MEM) 培养基)轻轻清洗小室的顶端表面及12孔板,以去除Transwell小室和12孔板中的钙离子。
- 向小室中加入500 µL或向12孔板中加入2 mL预热的S-MEM 1x培养基,置于培养箱中(37 °C,5% CO2)孵育24小时。孵育结束后,移除S-MEM 1x培养基,并用预热的1x PBS缓冲液清洗细胞一次。
- 按照第4节中描述的步骤4.4–4.10进行荧光素黄(LY)处理及后续操作。按照第8节中描述的步骤8.1.2–8.2.4进行蛋白质印迹(Western blotting)及后续操作。
6. 转染
- DNA 纳米颗粒(DNA NPs)的制备。
- 将 gWIZ-Luc 质粒的储备液用 10 mM 醋酸钠(NaAc)缓冲液(pH 5.0)稀释,并在室温(RT)下静置 10 分钟。
注意:可在 DNA 浓度为 20–40 µg/mL 的条件下制备主要含有单个 DNA 分子的 DNA 纳米颗粒23。因此,需对 gWIZ-Luc 质粒储备液进行稀释。冷冻的 gWIZ-Luc 质粒储备液需在冰上完全解冻,以最大限度减少温度应激。将稀释后的 DNA 储备液在标准台式涡旋振荡器(旋钮位置设为 3–5)上轻轻涡旋 30 秒。 - 计算所需的 N/P 比值,该比值在此作为反映纳米颗粒组成的数值参数。

方程 6. N/P 比值计算:阳离子聚合物中胺基摩尔数与 DNA 中磷酸基团摩尔数之比。阳离子聚合物质量指配制中所用阳离子聚合物的总称量;(质量/电荷)阳离子聚合物 指阳离子聚合物(聚乙二醇5k-嵌段-聚天冬酰胺,含 48 个二亚乙基三胺侧链(PEG-DET))的分子量除以每个阳离子聚合物所含带电伯胺基数目(48)后的归一化值(mol/mol),本实验所用聚合物该值为 306 Da;DNA 质量指通过体积与浓度(mg/mL)相乘所得的 DNA 总用量;(质量/电荷)DNA 指双链 DNA 每个核苷酸的磷酸基团归一化后的 DNA 分子量(每碱基 325 Da)。
注意:DNA 纳米颗粒制备表(表 1)列出了本实验中测试的不同样品的配方。DNA 纳米颗粒采用快速滴定法制备。将 PEG-DET 聚合物溶液沿管壁加入,同时保持试管处于水平位置。随后将试管转为垂直位置,并立即以最大速度快速涡旋 10 秒。DNA 纳米颗粒在使用前于室温静置 30 分钟。DNA 纳米颗粒给药的经验法则是每约 1 cm2 生长面积使用 0.5 µg DNA。因此,对于每个 Transwell 插件/48 孔板中的每个孔/96 孔板中的每个孔,应制备含 gWIZ-Luc DNA 0.157/0.5/0.195 µg/孔、N/P 比值为 10 的 DNA 纳米颗粒。 - 对于含有指定浓度泊洛沙姆 P84(P84)的样品,将 P84 加入 DNA 纳米颗粒中并涡旋 5 秒。每个样品中 P84 的最终浓度分别为 0.01% 或 0.03%(w/v)。
- 将 gWIZ-Luc 质粒的储备液用 10 mM 醋酸钠(NaAc)缓冲液(pH 5.0)稀释,并在室温(RT)下静置 10 分钟。
- 在 48 孔板体系中进行 DNA 纳米颗粒转染
- 以 50,000 个细胞/cm2 的密度将细胞接种于 48 孔板中,并在培养箱(37 °C,5% CO2)中培养至完全汇合。
- 对于每个处理组,将 25 µL 指定样品(转染制剂)与 150 µL 完全培养基混合,并向每孔加入 175 µL 该混合液。
- 在显微镜下观察 hCMEC/D3 细胞,确保细胞状态良好且在实验时达到 100% 汇合。
- 吸除孔中培养基,并向每孔加入 175 µL 转染混合液。然后将培养板在培养箱(37 °C,5% CO2)中孵育 4 小时。
- 4 小时后,移除转染混合液,并用预热的无菌 1× PBS 缓冲液洗涤 hCMEC/D3 细胞。
注意:为尽量减少洗涤过程中 hCMEC/D3 细胞从培养板/插件表面意外脱落,应小心沿孔壁加入足量无菌 PBS,并清除残留培养基中的纳米颗粒。 - 轻轻摇动培养板数次,小心吸除并弃去 PBS 洗涤液,然后每孔加入 500 µL 预热的 hCMEC/D3 培养基。
- 在显微镜下检查细胞,记录细胞形态及转染可能产生的任何影响。
- 在 37 °C 细胞培养箱中继续孵育 24 小时,以允许荧光素酶的表达。24 小时后,彻底移除培养基,并用预热的 1× PBS 洗涤细胞一次。
- 通过每孔加入 100 µL 冰冷的 1× 荧光素酶细胞裂解试剂,裂解转染后的细胞。
- 为测定荧光素酶蛋白含量,将 20 µL 细胞裂解液与 100 µL 荧光素酶检测缓冲液(20 mM 甘氨酰甘氨酸(pH 8)、1 mM MgCl2、0.1 mM EDTA、3.5 mM DTT、0.5 mM ATP、0.27 mM 辅酶 A)加入 1.5 mL 离心管中。
- 使用单自动进样器的发光仪读取步骤 6.2.10 中所述样品的发光值。
注意:读数前应积分 10 秒的发光信号。 - 按照试剂盒制造商的说明书,使用双辛可宁酸法(BCA 法)试剂盒测定裂解液中总细胞蛋白含量。
- 将荧光素酶基因表达量计算并表示为每单位总细胞蛋白的相对光单位(RLU)。
7. 发光法ATP检测
- 以 50,000 个细胞/cm2 的密度将细胞接种于 96 孔板中,并在培养箱(37 °C,5% CO2)中培养至完全汇合。
- 用 9.7 µL 转染试剂(制备细节见第 6 节)和 58.4 µL 完全培养基对细胞进行转染,转染时间为 4 小时。
- 移除转染混合物,并用预热的 1× PBS 缓冲液轻轻洗涤细胞两次,以彻底去除处理试剂。
注意:残留缓冲液体积不同可能导致 ATP 检测试剂稀释程度不同,从而可能影响数据结果。 - 使用多通道移液器将 75 µL 新鲜预热的培养基与 ATP 检测试剂按 1:1 比例混合。确保所有多通道移液器吸头中的液面高度一致。
- 将培养板置于振荡摇床中,室温下孵育 15 分钟。在加入检测试剂后 15 分钟,将每孔中的 60 µL 溶液转移至白色 96 孔板中。
注意:与透明或黑色板相比,白色板更有利于反射发光信号。 - 在读板前用针头刺破任何气泡。使用化学发光仪进行检测,积分时间为 1 秒。在加入 ATP 检测试剂后 20 分钟内完成读板。由于发光信号具有短暂性和快速衰减的特性,因此不同板之间的检测时间必须严格一致。
- 使用以下公式计算细胞活力百分比(%):(转染细胞的发光值 / 未处理对照细胞的发光值)× 100。
8. 紧密连接蛋白 ZO-1 的 Western 印迹检测
- 细胞裂解与蛋白质提取
注意:所有从细胞中提取蛋白质的步骤均需在 2-8 °C 下进行。- 将细胞以 50,000 个细胞/cm2 的密度接种于胶原蛋白包被的 12 孔组织培养板中。
- 在接种后第 3 天、第 5 天、第 7 天、第 10 天,以及在无钙培养基中预孵育的细胞的第 7 天,移除培养基,并用 2 mL 冰冷的 1× PBS 轻柔洗涤细胞两次。然后,每孔加入 300 µL 冰冷的含 3 µg/mL 抑肽酶的 1× RIPA 裂解缓冲液。
注意:该混合液应现配现用,并置于冰上保存。抑肽酶用于抑制裂解物中存在的蛋白酶,防止目标蛋白降解。 - 经过两次冻融循环(-80 °C)后,使用冰冷的塑料细胞刮刀刮下细胞。将细胞裂解物收集至微量离心管中,随后在 4 °C 下以 200 × g 离心 30 分钟。
- 将上清液转移至洁净的离心管中并置于冰上。使用 BCA 蛋白检测试剂盒,按照制造商提供的操作说明测定裂解物中的总蛋白含量。
- 检测紧密连接蛋白 ZO-1 的 Western 印迹法
- 取含有 40 µg 总蛋白的总匀浆等分试样,加入 1× Laemmli 缓冲液,在 95 °C 下变性 5 分钟,随后在还原性 6–7.5% 十二烷基硫酸钠聚丙烯酰胺凝胶(SDS-PAGE)中进行电泳(堆积胶阶段 90 V,10 分钟;分离胶阶段 120 V)。
注意:加样或加标准品时,应缓慢而小心地将样品加入每一泳道,避免破坏加样孔。 - 使用含 192 mM 甘氨酸、25 mM Tris 碱、10% 甲醇和 0.1% SDS 的 pH 8.5 转膜缓冲液,将分离的蛋白质转移至硝酸纤维素膜上(室温下 75 V,110 分钟)。
注意:切勿用手接触膜。操作膜时应使用经 70% 异丙醇清洗过的塑料镊子。为成功将 ZO-1 蛋白(分子量 200 kDa)转移至膜上,转膜缓冲液 pH 应维持在 8.3–8.5 左右。若缓冲液酸性过强,则无法实现有效转膜。若蛋白预染 Marker 仍残留在凝胶上,可适当延长转膜时间或提高 SDS 浓度。 - 用含 0.1% Tween 20 的 Tris 缓冲盐水(T-TBS)洗涤膜后,使用封闭液(1:1 的 LiCOR-Odyssey 封闭液与 1× Tris 缓冲盐水混合液)在室温下封闭膜 60 分钟。
- 小心将膜切割成两条条带,分别与两种一抗孵育:ZO-1 单克隆抗体(稀释比例 1:900)和甘油醛-3-磷酸脱氢酶(GAPDH)抗体(稀释比例 1:10,000),4 °C 过夜孵育。随后,将 ZO-1 和 GAPDH 对应的膜分别与驴抗小鼠 IgG(稀释比例 1:50,000)孵育。用 T-TBS 洗涤膜后,在 16 位成像仪上使用 700 通道对膜进行成像。
- 取含有 40 µg 总蛋白的总匀浆等分试样,加入 1× Laemmli 缓冲液,在 95 °C 下变性 5 分钟,随后在还原性 6–7.5% 十二烷基硫酸钠聚丙烯酰胺凝胶(SDS-PAGE)中进行电泳(堆积胶阶段 90 V,10 分钟;分离胶阶段 120 V)。
访问受限。请登录或开始试用以查看此内容。
结果
首先,我们确定了培养时间对LY通透性的影响,以分析TJ形成的表观动力学。LY的平均P应用程序 第1至第10天接种后的数值如图所示 图2a. 第1天,平均P应用程序 4.25 × 10⁻⁴ cm/min,并略微下降至 3.32 x 10⁻⁴ cm/min,第2天。平均P应用程序 数值略微增加至 3.93 x 10⁻⁴ 第3天为 cm/min,第6天前波动且无显著变化。P应用程序 数值显著降低至 2.36 x 10⁻⁴ cm/min,第7天与第1天相比,P < 0.05),可能表明屏障变得更加紧密。P应用程序 数值稳定在 2.14 × 10 的范围内-4 和 2.36 x 10⁻⁴ 从第7天到第10天,cm/min,表明屏障已完全形成并具备功能,导致LY的细胞旁转运减少。我...
访问受限。请登录或开始试用以查看此内容。
讨论
血脑屏障(BBB)的关键作用是阻止非必需离子和有毒物质在体循环与大脑之间交换,以维持神经微环境的稳态。BBB的一个特征性特点是毛细血管内皮细胞能够形成紧密连接(TJs),从而有效封闭细胞旁路的物质转运途径。我们展示了荧光素标记的葡聚糖(LY)表观通透系数(Papp)测定法,作为一种定量方法,用于测定培养的hCMEC/D3单层细胞中紧密连接屏障形成的表观动力学。通过Western blot检测ZO-1表达水平,从正交角度验证了LY Papp实验所得数据,下文将对此进行详细讨论。作为该检测方法的进一步应用,我们还证明了DNA纳米颗粒(NP)转染未显著改变LY Papp值,表明该方法适用于在实验体系中检测紧密连接屏障特性的变化。
Western blot 数据显示,ZO-1 表达量在接种后第 3、5、7 天明显增加,在接种后第 10 天略有下降 (图4a)。从 图1可以看...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢美国药学协会2017年新研究者奖、杜肯大学Hunkele罕见疾病奖以及Manickam实验室药学院启动资金提供的财务支持。我们感谢杜肯大学Leak实验室在Western印迹实验方面的协助,并允许我们使用其Odyssey 16位成像系统。我们还要特别感谢Manickam实验室的Kandarp Dave在Western印迹实验中提供的帮助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| hCMEC/D3 细胞系 | Cedarlane Laboratories | 102114.3C-P25 | 人脑微血管内皮细胞系 |
| gWizLuc | Aldevron | 5000-5001 | 编码荧光素酶基因的质粒 DNA |
| 荧光黄 CH 二锂盐 | Invitrogen | 155267 | |
| 带聚对苯二甲酸乙二醇酯(PET)径迹蚀刻膜的 Transwell 小室 | Falcon | 353095 | |
| 组织培养瓶 | Olympus Plastics | 25-207 | |
| 24 孔平底板 | Olympus Plastics | 25-107 | |
| 黑色 96 孔免疫板 | Thermo Scientific | 437111 | |
| S-MEM 1X | Gibco | 1951695 | 旋转式最低必需培养基(S-MEM) |
| EBM-2 | Clonetics | CC-3156 | 内皮细胞基础培养基-2(EBM-2) |
| 1× 磷酸盐缓冲液 | HyClone | SH3025601 | |
| I 型胶原蛋白 | Discovery Labware, Inc. | 354236 | |
| Pierce BCA 蛋白质测定试剂盒 | Thermo Scientific | 23227 | |
| 细胞裂解液 5X 试剂 | Promega | E1531 | |
| 甲虫荧光素钾盐 | Promega | E1601 | |
| SpectraMax i3 | Molecular Devices | 荧光酶标仪 | |
| 台盼蓝溶液,0.4% | Gibco | 15250061 | |
| ZO-1 多克隆抗体 | ThermoFisher | 61-7300 | |
| 抗 GAPDH 抗体 | abcam | ab8245 | |
| Alexa Fluor 680 标记的 AffiniPure 驴抗小鼠 IgG(H+L) | Jackson ImmunoResearch Inc | 128817 | |
| 12 孔平底板 | Olympus Plastics | 25-106 | |
| RIPA 裂解缓冲液(5X) | Alfa Aesar | J62524 | |
| 抑肽酶 | Fisher BioReagents | BP2503-10 | |
| Odyssey CLx 成像系统 | LI-COR Biosciences | 用于扫描 Western 印迹膜 |
参考文献
- Abbott, N. J., Patabendige, A. A., Dolman, D. E., Yusof, S. R., Begley, D. J. Structure and function of the blood-brain barrier. Neurobiology Of Disease. 37 (1), 13-25 (2010).
- Griep, L. M., et al. BBB on chip: microfluidic platform to mechanically and biochemically modulate blood-brain barrier function. Biomedical Microdevices. 15 (1), 145-150 (2013).
- Camos, S., Mallolas, J. Experimental models for assaying microvascular endothelial cell pathophysiology in stroke. Molecules. 15 (12), 9104-9134 (2010).
- Cucullo, L., et al. Immortalized human brain endothelial cells and flow-based vascular modeling: a marriage of convenience for rational neurovascular studies. Journal of Cerebral Blood Flow & Metabolism. 28 (2), 312-328 (2008).
- Wolff, A., Antfolk, M., Brodin, B., Tenje, M. In vitro Blood-Brain Barrier Models-An Overview of Established Models and New Microfluidic Approaches. Journal of Pharmaceutical Sciences. 104 (9), 2727-2746 (2015).
- Weksler, B., Romero, I. A., Couraud, P. O. The hCMEC/D3 cell line as a model of the human blood brain barrier. Fluids and Barriers of the CNS. 10 (1), 16(2013).
- Ohtsuki, S., et al. Quantitative targeted absolute proteomic analysis of transporters, receptors and junction proteins for validation of human cerebral microvascular endothelial cell line hCMEC/D3 as a human blood-brain barrier model. Molecular Pharmaceutics. 10 (1), 289-296 (2013).
- Tornabene, E., Brodin, B. Stroke and Drug Delivery--In vitro Models of the Ischemic Blood-Brain Barrier. Journal of Pharmaceutical Sciences. 105 (2), 398-405 (2016).
- Weksler, B., Romero, I. A., Couraud, P. O. The hCMEC/D3 cell line as a model of the human blood brain barrier. Fluids and Barriers of the CNS. 10 (1), 16(2013).
- Llombart, V., et al. Characterization of secretomes from a human blood brain barrier endothelial cells in-vitro model after ischemia by stable isotope labeling with aminoacids in cell culture (SILAC). Journal of Proteomics. 133, 100-112 (2016).
- Weksler, B. B., et al. Blood-brain barrier-specific properties of a human adult brain endothelial cell line. The FASEB Journal. 19 (13), 1872-1874 (2005).
- Avdeef, A. How well can in vitro brain microcapillary endothelial cell models predict rodent in vivo blood-brain barrier permeability? European Journal of Pharmaceutical Sciences. 43 (3), 109-124 (2011).
- Rahman, N. A., et al. Immortalized endothelial cell lines for in vitro blood-brain barrier models: A systematic review. Brain Research. 1642, 532-545 (2016).
- Cecchelli, R., et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 9 (6), e99733(2014).
- Shao, X., et al. Development of a blood-brain barrier model in a membrane-based microchip for characterization of drug permeability and cytotoxicity for drug screening. Analytica Chimica Acta. 934, 186-193 (2016).
- Walter, F. R., et al. A versatile lab-on-a-chip tool for modeling biological barriers. Sensors and Actuators B: Chemical. 222, 1209-1219 (2016).
- Cecchelli, R., et al. In vitro model for evaluating drug transport across the blood–brain barrier. Advanced Drug Delivery Reviews. 36, (1999).
- Cecchelli, R., et al. Modelling of the blood–brain barrier in drug discovery and development. Nature reviews Drug discovery. 6 (8), 650(2007).
- Reichel, A., Begley, D. J., Abbott, N. J. The Blood-Brain Barrier. , Springer. 307-324 (2003).
- Deli, M. A., Ábrahám, C. S., Kataoka, Y., Niwa, M. Permeability Studies on In vitro Blood–Brain Barrier Models: Physiology, Pathology, and Pharmacology. Cellular and Molecular Neurobiology. 25 (1), 59-127 (2005).
- Ren, T. B., et al. A General Method To Increase Stokes Shift by Introducing Alternating Vibronic Structures. Journal of the American Chemical Society. 140 (24), 7716-7722 (2018).
- Pack, D. W., Hoffman, A. S., Pun, S., Stayton, P. S. Design and development of polymers for gene delivery. Nature Reviews Drug Discovery. 4 (7), 581-593 (2005).
- Oupický, D., Konák, C., Ulbrich, K., Wolfert, M. A., Seymour, L. W. DNA delivery systems based on complexes of DNA with synthetic polycations and their copolymers. Journal of Controlled Release. 65, (2000).
- Couraud, P. O. The hCMEC/D3 CELL LINE: IMMORTALIZED HUMAN CEREBRAL MICROVASCULAR ENDOTHELIAL CELLS As a model of human Blood-Brain Barrier. , Institut Cochin, INSERM U1016. France. (2012).
- Youdim, K. ureshA., A, A. A. aN. J. In vitro trans-monolayer permeability calculations: often forgotten assumptions. research focus reviews. 8, (2003).
- Eigenmann, D. E., Xue, G., Kim, K. S., Moses, A. V., Hamburger, M., Oufir, M. Comparative study of four immortalized human brain capillary endothelial cell lines, hCMEC/D3, hBMEC, TY10, and BB19, and optimization of culture conditions, for an in vitro blood-brain barrier model for drug permeability studies. Fluid and Barriers of the CNS. 10 (33), (2013).
- Hubatsch, I., Ragnarsson, E. G. E., Artursson, P. Determination of drug permeability and prediction of drug absorption in Caco-2 monolayers. Nature Protocols. 2 (9), 2111-2119 (2007).
- Balda, M. S., Anderson, J. M. Two classes of tight junctions are revealed by ZO-1 isoforms. The American Physiological Society. , (1992).
- Brown, R. C., Davis, T. P. Calcium Modulation of Adherens and Tight Junction Function: A Potential Mechanism for Blood-Brain Barrier Disruption After Stroke. Stroke. 33 (6), 1706-1711 (2002).
- Gorodeski, G., Jin, W., Hopfer, U. Extracellular Ca2+ directly regulates tight junctional permeability in the human cervical cell line CaSki. American Journal of Physiology-Cell Physiology. 272 (2), C511-C524 (1997).
- Stuart, R. O., Sun, A., Panichas, M., Hebert, S. C., Brenner, B. M., Nigam, S. K. Critical Role for lntracellular Calcium in Tight Junction Biogenesis. Journal of Cellular Physiology. 159, (1994).
- Tobey, N. A. Calcium-switch technique and junctional permeability in native rabbit esophageal epithelium. American Journal of Physiology-Gastrointestinal and Liver Physiology. , (2004).
- Tobey, N. A., Argote, C. M., Hosseini, S. S., Orlando, R. C. Calcium-switch technique and junctional permeability in native rabbit esophageal epithelium. American Journal of Physiology-Gastrointestinal and Liver Physiology. 286, (2004).
- Posimo, J. M., et al. Viability assays for cells in culture. Journal of visualized experiments : JoVE. (83), e50645(2014).
- Cipolla, M. J., Crete, R., Vitullo, L., Rix, R. D. Transcellular transport as a mechanism of blood-brain barrier disruption during stroke. Frontiers in Bioscience. 9 (3), 777-785 (2004).
- Kreuter, J. Influence of the surface properties on nanoparticle-mediated transport of drugs to the brain. Journal of nanoscience and nanotechnology. 4 (5), 484-488 (2004).
- Markoutsa, E., et al. Uptake and permeability studies of BBB-targeting immunoliposomes using the hCMEC/D3 cell line. European Journal of Pharmaceutics and Biopharmaceutics. 77 (2), 265-274 (2011).
访问受限。请登录或开始试用以查看此内容。
重印与许可
