固相支撑、无蛋白质的双层磷脂膜(DLBM)可转化为复杂的动态脂质纳米管网络,可作为内质网的二维自下而上模型。
本文内容
摘要
摘要
我们提出了一种简便的方法,用于自下而上构建内质网(ER)的结构化细胞器模型。该模型由高度密集的脂质纳米管组成,在形态和动态特性上均类似于真实的内质网。这些网络来源于附着在透明Al2O3基底上的磷脂双层膜片,膜的附着由缓冲液中的Ca2+介导。随后通过BAPTA/EDTA去除Ca2+,导致膜回缩,从而自发形成脂质纳米管网络。该方法仅需磷脂和微加工表面即可简单构建内质网模型,无需添加蛋白质或化学能(例如 GTP或ATP)。与细胞内质网的三维形态不同,该模型为二维结构(尽管纳米管的尺寸、几何形状、结构和动态特性得以保留)。这种独特的体外(in vitro)内质网模型组分简单,易于构建,并可在光学显微镜下直接观察。所形成的结构还可进一步修饰以实现额外功能,例如添加与内质网相关的蛋白质或颗粒,用于研究管状结构间的物质运输现象。本文所述的人工网络是细胞内质网的合适结构模型,因其独特的形态特征已被证实与其生物学功能相关,而关于其管状结构域的形成机制及内部重构过程的细节目前尚未完全阐明。需要注意的是,该方法使用的是 commercially available 但需特殊订购的Al2O3薄膜包被的显微镜盖玻片,因此建议具备微加工设备以进行自主制备。
引言
内质网在生物细胞中执行多种关键任务,包括蛋白质折叠、脂质合成和钙离子调节1,2。内质网的形态与其功能密切相关。它由平面状的片层结构和致密且动态的管状区域共同组成,这些结构持续与细胞骨架相互作用,并不断发生运动和重组。内质网结构所经历的一些重塑过程包括片层与管状结构之间的持续转换、从内质网腔形成囊泡或囊泡与内质网融合、已有管状结构的延伸、回缩、融合以及断裂3。管状网络的特殊结构在能量上是不利的。目前尚未完全阐明内质网生成并维持这种组织结构的通路与机制,以及该结构与其功能之间的关系4,5。
已知当内质网失去其稳态时会发生功能障碍,从而导致内质网应激;这种状态由蛋白质合成增加、错误折叠蛋白积聚或 Ca²⁺ 水平改变所引起。2+ 以及氧化平衡。内质网应激进而会导致细胞器天然形态的改变,特别是通过破坏其网络结构组织。6,7作为应答,细胞会激活修复机制以恢复稳态。修复失败可导致内质网应激诱导的细胞凋亡,进而引发多种代谢性和退行性疾病,如阿尔茨海默病、2型糖尿病、帕金森病、肌萎缩侧索硬化症及其他多种疾病。7,8当前研究聚焦于管状内质网网络的组织结构,多项研究正致力于重建内质网 体外2. 少数现有模型2,9,10 需要蛋白质来启动和维持膜曲率3,11 并帮助细胞器形成其特定形态。显然,能够模拟内质网某些关键结构和组织特征,并可用于开展先进实验研究的模型系统需求迫切。
我们在此介绍一种简便、无需蛋白质/化学能量的动态制备方法 体外 内质网的模型,为研究内质网形态及其相关功能提供了基础平台4. 在该方法中,采用自下而上的方式仅使用少量组分构建内质网(ER)模型,并可将目标分子整合其中以增加复杂性。该网络可模拟内质网的结构与动态行为。此外,平面膜与管状结构之间的可逆转变、管状结构出芽形成囊泡、管融合、滑动及回缩等现象均可被观察到。除作为尚不完全明确的细胞内质网的自下而上模型外,本方案所述的脂质途径构建纳米管网络的方法,亦可适用于研究自组装、纳米流体学、单分子与胶体输运现象、马兰戈尼流(Marangoni flow)及其他相关领域的科研人员。本方法所用的唯一分子构建单元为磷脂。该方案所需实验操作较少,仅需基础实验设备,且便于引入其他组分。
方案
1. 磷脂囊泡悬液的制备
注意:所有被称为 "清洁" 在此方案中,先用异丙醇彻底清洗,再用去离子水清洗,最后用氮气吹干。注意,对于铝基底,不应使用强氧化性酸性试剂(如Piranha溶液)进行处理;该步骤通常用于固体基底上支撑脂质膜的制备方案中。2O3包被的载体
- 在洁净的 10 mL 圆底或倒置梨形玻璃烧瓶中加入:大豆 L-α 磷脂酰胆碱(PC,69% w/w)、1,2-二油酰基-sn-甘油-3-磷脂酰乙醇胺(DOPE,30% w/w)以及任选的脂质偶联荧光染料 [例如,Texas Red 1,2-二十六烷酰基-sn-甘油-3-磷脂酰乙醇胺三乙基铵盐(TR-DHPE,1% w/w)],溶于氯仿中;总脂质质量为 3000 µg,溶于 300 µL 氯仿,最终浓度为 10 mg/mL。
注意:操作含氯仿的化合物时,应使用洁净的玻璃气密性注射器,并配备聚四氟乙烯活塞。
警告:氯仿具有毒性且高度挥发,必须在通风橱内操作,并佩戴相应的个人防护装备。 - 将烧瓶连接至旋转蒸发仪,以 45° 倾斜放置,在 23 °C 水浴中以 24 rpm 转速旋转 6 小时,同时降低气压,以缓慢且完全地去除氯仿。在开始旋转后立即逐步降低压力,每 2 分钟降低 20 kPa,直至达到 20 kPa(150 Torr,80% 真空)。
注意:在制备容器内形成厚度均匀的均质脂质膜是旋转蒸发过程最关键的条件。脂质制备对旋转速度、压力变化速率及最终压力值均敏感,因此必须严格遵循缓慢降压步骤以及最终压力和旋转速度的设定。将烧瓶以 45° 倾斜放置,以确保脱水后的脂质均匀地在烧瓶壁上形成薄膜。转速过快会导致湍流,而转速过慢则因重力作用导致液体在烧瓶底部积聚成厚层。在随后的过夜溶胀过程中,会形成高度不均一的脂质团块,难以在最终超声处理步骤中有效分散,导致所得组分组成不一。在本方法规定的压力和时间范围内操作可确保缓慢脱溶剂。使用氯仿作为溶剂时,压力下降过快会使混合物冷却,导致黏度增加,形成聚集体和不均匀的脂膜。建议采用长达 6 小时的时间,以尽可能彻底地去除溶剂,因为有机溶剂在再水化过程中会重新分配进入脂质材料中。 - 6 小时后,停止旋转,并以每 2 分钟增加 20 kPa 的梯度逐步恢复至 100 kPa 的常压。将烧瓶从旋转蒸发仪上取下,加入 3 mL PBS 和 30 µL 甘油。轻轻摇动烧瓶使甘油溶解。使用气密性玻璃塞密封含有脂质的烧瓶。
注意:甘油用于防止脂质膜完全脱水,并促进双层膜的分离12。使用前应加热以降低其黏度,便于操作。即使加热后的甘油仍不会立即与 PBS 缓冲液混合,需轻轻摇动直至甘油完全溶解。 - 将烧瓶置于 4 °C 冰箱中过夜,以实现脂质膜的再水化和溶胀。
- 次日,在室温(RT,~21 °C)下使用超声水浴以 35 kHz 频率对脂质进行超声处理,直至形成均匀、略显浑浊的脂质悬浮液。
注意:超声处理时间约为 10–30 秒。长时间超声(~1 分钟)会产生热量,不利于囊泡的形成。 - 步骤 1.1–1.5 可得到含有两种囊泡结构的悬浮液:多层囊泡(MLV)和巨型单层囊泡(GUV)(图 1A-1F)。
- 储存时,将脂质悬浮液分装为每份 100 µL,共使用 30 个微量离心管,于 -20 °C 冰箱中保存。
注意:储存前无需使用液氮快速冷冻。本方案可在此处暂停。将脂质悬浮液长时间置于 4 °C 冰箱中会导致脂质裂解,影响膜组成。
2. 底物的制备
注意:以下方案在符合 ISO 14644-1 标准规定的 ISO 8 级洁净室中进行。采用原子层沉积(ALD)技术制备 Al2O3 基底。所指定的工艺参数依赖于仪器,不同型号设备之间可能有所差异。这些参数可作为开发工艺的初始条件。
- 将原子层沉积反应器的温度设定为 200 °C。
- 加载玻璃表面(例如, 将玻璃盖玻片和硅晶圆一同放入样品室,其中硅晶圆后续将用作参考表面,通过椭偏仪测定沉积层的厚度。
注意:玻璃基底开箱即用,沉积前未进行溶剂清洗,仅用氮气冲洗以去除颗粒物。 - 将装载室抽真空至400 Pa(3 torr),然后将样品转移至主反应室,并将其抽真空至200 Pa。
注意:为确保正常沉积,反应器温度必须维持在 200 °C。因此,在样品加载后产生的温度波动需先平衡,再开始沉积。腔室压力应设定为高于反应器压力,以防止前驱体扩散至腔室外。 - 开始沉积原子薄膜。每个循环包括150 ms的三甲基铝脉冲暴露,随后进行1 s吹扫,接着通入H2200毫秒持续时间的O暴露,随后进行1秒的吹扫。
注意:所有设置,包括反应室和反应器压力、循环时长以及吹扫过程,均已自动化,以实现预设的沉积速率。这些参数可能因设备型号不同而有所差异。预设的工艺程序通常由设备供应商或洁净室负责人员配置,并以单位时间内沉积的薄膜厚度形式提供给用户。 - 达到 10 nm 的 Al2O3 在底物上重复该过程100个循环。循环次数取决于沉积速率,而沉积速率可能因不同工艺配方或设备而异。
- 从反应器中取出样品时,首先泄放腔室压力,直至其达到大气压,然后取出样品。
- 将样品置于密封容器中,在室温下保存至使用。
注意:使用前无需进一步清洗。此处可暂停实验方案。
注意:样品 ideally 应在沉积后立即使用。最佳储存方法是将表面置于聚丙烯晶圆载体中,再用符合洁净室标准的塑料袋包裹载体,并在真空密封前用氮气冲洗。目的是避免表面暴露于空气中的污染物。如有必要,表面可在室温下密闭容器中保存,最长不超过 5 天。不建议更长时间储存。对于附近无便捷洁净室条件,或从国外购买或获取表面材料的用户,可通过氧气等离子体或臭氧处理对基底进行再氧化,作为替代方案13.
3. 分子磷脂膜向管状网络的转化
- 解冻脂质悬浮液,取4 µL悬浮液滴加到洁净的玻璃显微镜载片/盖片上。
- 将液滴干燥20分钟。干燥后,液滴会塌缩成一层肉眼可见的扁平圆形脂质膜。
- 用1 mL HEPES缓冲液重悬脂质膜(参见 材料表3 分钟
注意:重悬缓冲液的体积会影响囊泡悬液的密度(单位体积内的囊泡数量),而该密度将直接转移至观察室中。根据观察室的体积和所需的囊泡密度,可将重悬体积调整为0.5–1 mL。洁净的硼硅酸盐载玻片通常可稳定承载数百微升至1.5 mL的液滴而无问题。由于无需移动盖玻片,因此不会引起技术上的困难。在更疏水的 表面,例如SU-8聚合物包被的载玻片,即使1.5 mL也可沉积12.
注意:脂质应新鲜配制,因为复水后的脂质膜在室温下暴露超过20分钟会导致缓冲液蒸发以及先前复水的囊泡部分脱水,从而造成组分不明确。 - 制备观察室:为了通过自动移液器进行缓冲液置换(这是启动内质网转化所必需的),使用了顶部开放的观察室。该观察室由尺寸为1.5 × 1.5 × 0.5 cm的聚二甲基硅氧烷(PDMS)框架构成,粘附于铝2O3 已放置的盖玻片。组装好的观察室结构示意图如下所示 图1G以下步骤用于制备PDMS框架并组装观察室:
- 在冰浴中,将 100 g KOH 与 100 mL 异丙醇加入烧杯中混合。使用磁力搅拌器和磁力搅拌板搅拌 10 小时或更长时间,直至 KOH 完全溶解。
警告:KOH 溶液具有腐蚀性,可能导致皮肤灼伤,因此务必使用适当的个人防护装备进行操作。
注意:KOH 在异丙醇中的溶解度不如在水中高。溶解过程为放热反应。建议在溶解前将 KOH 颗粒研碎,并持续搅拌。 - 将一个玻璃培养皿(直径 6 cm)浸入 KOH 溶液中,在室温下静置过夜。
- 次日,将玻璃培养皿从溶液中取出,放入盛有去离子水的容器中浸泡5分钟,用清水冲洗数次,然后置于80 °C的干燥烘箱中干燥1小时。用氮气流短暂吹扫表面,以确保去除颗粒物。
- 使用塑料注射器将200 µL二甲基二氯硅烷转移至干净的塑料容器(如称量舟)中,以钝化表面并防止与PDMS发生键合。
- 将玻璃培养皿与硅烷一起置于真空干燥器(低真空,约20 kPa)中孵育1小时。
警告:二甲基二氯硅烷有毒,必须在通风橱中操作,并佩戴相应的个人防护装备。 - 等待15分钟,使残留的二甲基二氯硅烷蒸气充分挥发,然后取出培养皿。此时培养皿已完成硅烷化处理,表面呈疏水性。
注意:检验此步骤是否成功的一个快速方法是将一滴水置于硅烷化处理的培养皿表面。与未经处理的玻璃表面相比,水滴与表面的接触角必须明显增大。 - 在250 mL塑料容器(包装中取出的透明塑料杯)中,将10 g硅胶弹性体基础剂与1 g硅胶弹性体固化剂(10:1)混合。使用塑料搅拌棒或塑料刮刀搅拌5分钟。
注意:搅拌时会产生气泡,PDMS 将呈现浅白色。 - 将混合物干燥以除去气体 < 20 kPa,直至所有膨胀的气泡完全塌陷(较高的真空度可加速该过程)。将脱气后的混合物倒入硅烷化处理的培养皿中。
- 65 °C 烘箱中孵育 2 小时。
注意:通过将温度升高,可使固化速度提高一倍 > 95 °C。随着固化温度的升高,材料的刚度增加。 - 将装有固化PDMS的培养皿冷却至室温,然后用刮刀取出PDMS块。
- 使用手术刀将框架切割成适合显微镜载物台开口尺寸和几何形状的大小。对于大多数实验装置,1.5(长)× 1.5(宽)× 0.5(高)cm 的尺寸较为合适。
- 将PDMS框架的光滑面(即之前与培养皿接触的底面)与表面的活性面接触,其中Al2O3 将膜置于表面,轻轻施加压力,使框架与表面相互贴合以确保粘附。
注意:PDMS 框架与 Al 之间的粘附性2O3 底物结合力较弱。接触界面存在气泡可能导致脱离,进而引起缓冲液及相关内容物的泄漏。PDMS框架若在每次使用前后立即用异丙醇冲洗,再用去离子水冲洗,并用氮气吹干,则可多次使用。硅烷化处理的培养皿也可重复使用。
- 在冰浴中,将 100 g KOH 与 100 mL 异丙醇加入烧杯中混合。使用磁力搅拌器和磁力搅拌板搅拌 10 小时或更长时间,直至 KOH 完全溶解。
- 用 Ca 填充观察室2+-HEPES缓冲液(参见 材料表).
注意:包装开封后应立即使用表面。与空气接触会导致污染物吸附,从而逐渐降低表面活性。组装后应立即用缓冲液填充腔室,但不要填满整个腔室体积,以便后续步骤中加入重悬的脂质。 - 将腔室置于共聚焦显微镜载物台上。用塑料巴斯德吸管将重新水化的脂质材料(现为含有巨大囊泡的悬浮液)转移至腔室内。图1A-1G).
- 等待10-20分钟,使囊泡黏附于基底并铺展至表面(图1H-1J).
注意:脂质沉积到表面后立即开始铺展。铺展速率可能因脂质组成、Al2O3 沉积技术(ADL、RF溅射、化学气相沉积) 等等。)、底物的新鲜程度以及缓冲液中的二价阳离子浓度。在破裂扩散性膜片之前,务必完成缓冲液置换。14. - 观察到多个脂质铺展后,使用自动移液器缓慢移除周围的缓冲液,仅保留底部一层薄薄的缓冲液膜。
注意:快速移除缓冲液会扰动表面的脂质结构。 - 通过缓慢向观察室中加入螯合剂-HEPES缓冲液,进行常温缓冲液置换(参见 材料表) 使用自动移液器(图1K).
注意:缓冲液的突然加入会扰动表面的脂质结构。 - 这最后一步产生了动态的纳米管网络,这是由于螯合剂诱导DLBM从MLV脱附并回缩所致4 (图1L-1Y).
4. 显微镜观察
- 使用倒置激光扫描共聚焦显微镜,配备40倍油镜(数值孔径1.3),以400 Hz的扫描频率进行成像。采用白光激光器在595 nm处激发Texas Red DHPE。使用混合光电探测器收集605至700 nm范围内的发射光。
注意:也可选用落射荧光显微镜进行成像。根据可用的光源,选择合适的脂质-染料偶联物。
结果
在方案的第1步中获得并用于整个实验的脂质悬浮液包含两种主要类型的囊泡:多层囊泡(MLV)和巨大单层囊泡(GUV)。图1A-1F展示了初始样品中囊泡的三维激光扫描共聚焦显微图像。图1A-1C分别显示了多层囊泡(脂质沉积物)在xyz、xz和yz平面上的图像。图1D-1F展示了巨大单层囊泡(GUV)的类似视图。GUV的内部缺乏多层结构,为空腔;因此,可用于铺展的脂质材料极为有限。因此,该方法中唯一有效的脂质储存库是MLV。
当脂质悬浮液被转移至含有 Ca 的观察室时2+-HEPES 缓冲液 (图1G),多层脂质体(MLVs)(图1A-1C开始在Al上沉降2O3 表面。接触后,囊泡会黏附到表面,并从每个多层囊泡(MLV)向固体基底扩散形成一个圆形的扁平双层脂质膜(DLBM)。图1H-1J)。MLV 作为脂质库,为持续扩展的 DLBM 提供脂质。相对于固体支撑物,远端(上)双层膜与近端(下)双层膜在圆形边缘的周界处相连,并沿该处进行滚动运动(图1I)。两个双层膜扁平地叠在一起,仅在中间包裹有一薄层液体膜。在铺展过程中,近端膜持续黏附在下方的支撑表面上,而远端膜则被扩张的近端膜边缘在侧向牵引。双层脂质膜(DLBM)的铺展由 Ca²⁺ 介导2+,该物质在邻近膜的脂质头部基团与固体基底之间起到促融合剂的作用4.
如果膜的铺展持续较长时间,膜张力会增加,从而导致膜破裂(图 2A 和 2B)。此后,形成内质网管状结构所必需的膜回缩过程将无法再被诱导。因此,识别已破裂的膜非常重要。由于本实验中使用的脂质带有荧光标记,膜的破裂可被直接观察到。破裂的关键标志是破裂区域荧光强度显著下降(图 2A 和 2B)14。膜破裂是由于远端膜张力升高并继而形成孔洞所致。在荧光显微镜下,破裂区域的荧光发射强度约为未破裂区域(双层脂双层)的一半(单层近端脂双层)14(图 2B)。在孔洞形成过程中,原本位于破裂区域的膜材料会迁移至铺展区域的边缘,从而导致整个区域的面积增大。因此,在膜破裂过程中,也可观察到圆形区域轮廓的快速扩张。
为避免因过度生长导致膜片破裂,当圆形膜片区域直径达到100–200 µm后,应立即使用自动移液器轻柔吸除Ca2+-HEPES缓冲液,仅在表面保留一层薄液膜。随后,向腔室中轻柔加入螯合剂-HEPES缓冲液以启动回缩过程(图1K)。样品完全脱水(图2C)或缓冲液快速更换(图2D和2E)会引起扰动,导致膜片破裂或变形。螯合剂的加入会逐步去除表面与膜之间间隙中的Ca2+。螯合剂-HEPES缓冲液从脂质膜片边缘开始,逐渐渗入双层膜与基底之间的空间。因此,固定位点的解除从圆形膜片的边缘开始,并向内传播(图1K–1Q)。由于去钉扎作用,脂质膜从边缘开始向内脱离并回缩,逐渐向中心的多层囊泡(MLV)方向推进。该回缩过程导致动态形成的脂质管状网络产生新的界面4(图1L–1Y)。部分持续存在的钉扎区域阻止了膜的完全脱离,这些区域成为管化的成核位点,最终形成具有长分支结构的纳米管网络(图1L–1Y)。随着时间推移,持续的去钉扎及脂质纳米管进一步回缩现象可被观察到,这是逐步螯合过程的结果。网络分支的粗化与重排在管状网络的动态行为中起关键作用,其形态类似于光滑内质网(smooth ER)。
图1L-1Y 显示了根据本实验方案获得的纳米管网络的显微图像。图1L 是 图1M 中白色框标记区域的放大图。图1L 和 1M 中连续的亮红色区域为 DLBM 的回缩部分(在 图1M 中以蓝色虚线标出)。图1N 和 1O 中管状网络的显微图像经过反色处理以增强对比度。图1P 和 1Q 描述了在 3 小时 20 分钟内膜区域上管状结构密度的降低过程。管状密度的减少是由于在实验时间段内,DLBM 逐渐从表面脱钉并随之回缩所致。随着时间推移,从固定点脱附的位点数量增加,导致结构重排以及管状结构覆盖面积减少(图1P 和 1Q)。这种管状结构的重排是由悬浮于两个固定点之间的脂质纳米管的表面自由能最小化所驱动的。已有充分研究表明,最小化纳米管表面能的最有效方式是缩短其长度15。因此,当最初将纳米管固定在表面的融合性区域发生脱钉后,纳米管会自发滑动并重新排列,趋向于达到最短长度。这些重排过程导致纳米管对表面的覆盖面积逐渐减小(图1P 和 1Q)。
我们无法直接观察到由 Ca2+ 介导的固定点,但可以通过纳米管出现末端或急剧转向的位置来确定其位置。由于管状结构的取向发生突然改变,这些急剧转向被称为“V-连接”15 或“转向点”(图 1R 和 1X 中的绿色箭头)。终点代表管状结构的终止位置,可防止其回缩(图 1X 中的橙色箭头)。在结构重组过程中,会出现一种能量上有利的管状排布形式,即“Y-连接”或“三通连接”。Y-连接将三条管状结构以彼此约 120° 的夹角连接在一起,从而实现总管长最短。这类 Y-连接不具有终点,而是位于多个纳米管之间,因此未被固定。这是唯一能够发生滑动的 Y-连接类型(蓝色箭头,图 1R)。如 图 1R 和 1S 所示,Y-连接沿一个高度不稳定的交点滑动,会导致其分裂为两个独立的 Y-连接(图 1S 中的蓝色箭头)。叠加在 图 1S 上的白色虚线表示 图 1R 中管状网络片段的轮廓。部分 Y-连接带有末端(图 1T 中的黄色箭头),这些末端会随时间推移逐渐回缩(图 1U)。在 图 1V 和 1W 中,通过解除两条线段交点的固定,并使构成 V 形的一条管回缩,可观察到 V-连接转变为一条单一的直管;相应过程也在 图 1X 和 1Y 中得到展示。
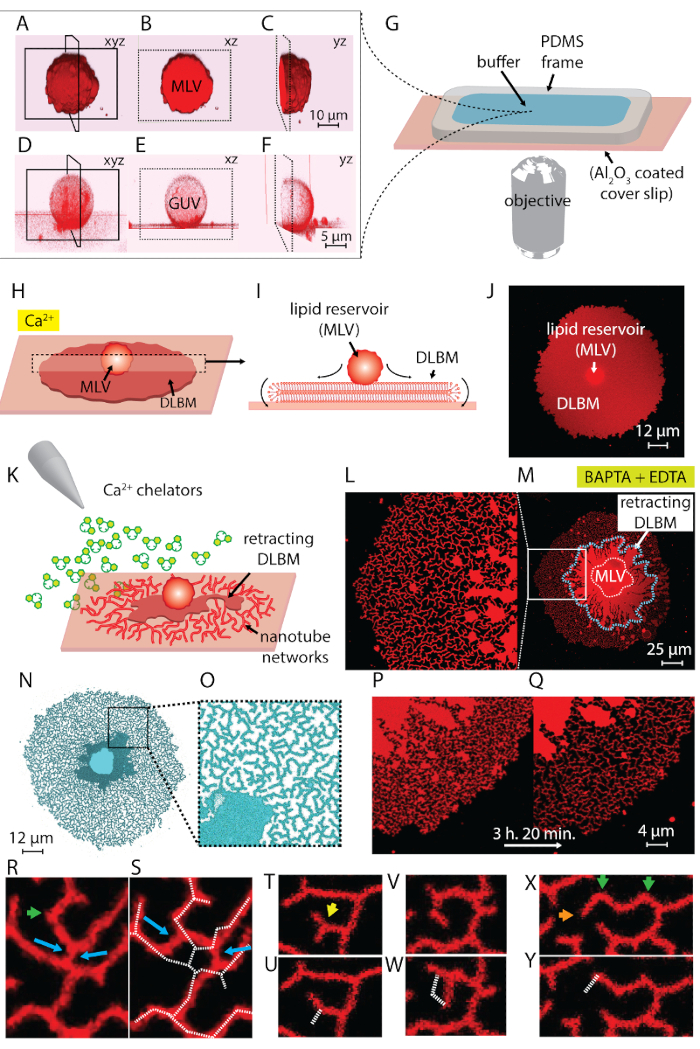
图1:脂质沉积物向类内质网管状网络的转化。 (A–F)初始样品中囊泡的三维激光扫描共聚焦显微图像。(A–C)多层脂质囊泡(MLV,脂质沉积物)在xyz、xz和yz平面上的图像。(D–F)巨大单层脂质囊泡(GUV)的类似视图。GUV的内部为空腔,导致可用于铺展的脂质材料显著受限。因此,该方法适用的有用脂质储库为MLV。(G)观察室的示意图,其安装在倒置显微镜上,缓冲液和脂质被沉积于其上。该腔室由粘附在Al2O3涂层盖玻片上的PDMS框架构成,顶部为开放体积。(H–J)MLV在Ca2+存在下的铺展现象示意图。(H)MLV接触Al2O3表面后,自发铺展形成环形双层脂质膜(DLBM)。(I)DLBM在xz平面的侧视示意图,其边缘发生滚动运动。MLV(直径 = 5–15 µm)与DLBM(厚度 = 10 nm)未按比例绘制。(J)从顶视图观察到的铺展中DLBM的共聚焦显微图像。(K)描述本实验方案的关键步骤:将缓冲液更换为含Ca2+螯合剂的缓冲液,抑制铺展过程,导致DLBM回缩至MLV,并促使脂质纳米管的形成。(L–Y)通过所述方法获得的纳米管网络的显微图像。(L)(M)中标记框区域的放大图。(L和M)中连续的亮红色区域代表DLBM(在M中也以蓝色虚线标出)。(N和O)中的管状网络显微图像经反色处理以增强对比度。(P和Q)显示在3小时20分钟内,膜区域上管状结构密度的降低。(R–Y)典型的管状结构重排过程。(R和S)滑动;(T和U)通过一端回缩,使Y型连接转变为V型连接;(V和W)转角点去锚定,导致V型连接消失;(X和Y)端点回缩。请点击此处查看该图的高清版本。
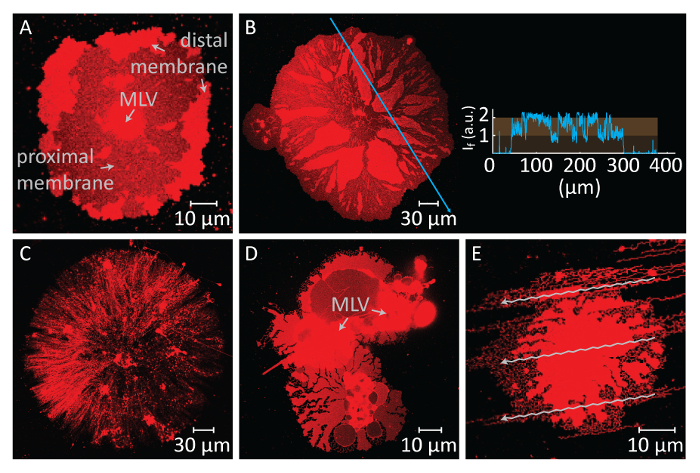
图2:潜在的阴性结果。 (A 和 B)由于缓冲液更换前等待时间过长,导致远端膜破裂。破裂区域暴露出近端膜,在图像中呈现为较暗的区域,与未破裂的远端膜区域形成对比。图 B 插图显示了显微照片中沿蓝色箭头方向的光强分布。膜破裂区域(近端/单层双分子膜可见)的光强约为未破裂区域(远端/双层双分子膜)的一半。(C)观察腔内液体完全移除后形成的干燥脂质斑块。(D 和 E)因缓冲液快速更换导致的膜破坏。 通过 自动移液器。(D) 中,MLV 分裂为两个 MLV,导致脂质斑块呈现非圆形、变形状态。(E) 中,螯合剂-HEPES 缓冲液强力注入所形成的流动方向(箭头)在膜管状结构上得以体现。 请点击此处以查看此图的放大版本。
讨论
在下文讨论中,将描述该实验方案的关键步骤、可能的修改方法以及局限性。第一个关键步骤是观察室的正确组装,因为PDMS框架与Al2O3表面之间的粘附性本质上较弱。如果框架未能与基底良好粘附,则观察室内容物会发生泄漏,导致实验中断。影响表面与框架之间良好密封的主要因素包括:1)重复使用的PDMS框架未彻底清洗;2)框架与基底之间偶尔会夹入气泡。应使用新制备或彻底清洗过的PDMS框架。每次使用前后,均需用异丙醇冲洗框架,随后用去离子水冲洗,并用氮气吹干。Al2O3表面无需预先清洗,因其在洁净室环境中制备,并在使用前一直保存于密封容器中。由于Al2O3具有两性性质,应避免接触强酸或强碱溶液。根据具体实验装置的可及性,也可采用其他设计的观察室。该观察室的重要特性包括:液体样品可通过顶部开口自由接触,以及框架材料对所用溶液和样品具有惰性。观察室的尺寸也是一个重要因素,其容积应能容纳0.5至1 mL的液体。由于所用表面通常为标准尺寸的盖玻片(24 × 60 mm),观察室的体积主要由框架的厚度决定。据我们所知,目前市场上尚无 commercially available 的、尺寸和深度适合本方案常规处理样品体积的间隔垫片。因此,本方案中专门设置了一个部分,详细说明样品室框架的制备与组装过程。
该方案中的另一个关键步骤是缓冲液置换。此步骤中的一个难点是进行置换所需的时间。MLV 与 Al 接触后会发生铺展2O3 底物的破裂是瞬时的,而DLBM的持续扩展会导致其破裂,从而终止实验(图2A,B因此,应持续监测铺展过程,并及时进行缓冲液置换。在脂膜铺展初始阶段后,不应过早进行缓冲液置换,以使膜片有足够时间达到最佳尺寸(直径100–200 µm)。另一方面,膜片在表面持续黏附会导致膜张力升高,进而引发破裂。因此,若不及时中断铺展过程,所有膜片最终都会发生破裂。由于每个膜片的破裂时间各不相同,其具体时间取决于多层脂质体(MLV)的尺寸、内部结构以及其中脂质的可及性。因此,缓冲液置换的时机应选择在未破裂且尺寸达标的膜片占总体大多数的时间点。缓冲液置换步骤中的另一个挑战是缓冲液移除和添加的速率。若置换过程进行得过快,将对最终形成的膜结构产生不利影响。图2C-E)。过量提取 Ca2+-HEPES 缓冲液,若在基底上留下薄层液体膜,会导致膜片干燥并发生不可逆变形(图2C)。即使表面维持了适量的液体,突然加入螯合剂-HEPES缓冲液也会导致膜结构的扰动。 图2D,E 显示流体动力学破坏的膜片典型外观。整体形态学上的破坏并不一定影响最终结构的动态特性(即, 剩余区域的管状重组仍会发生。然而,将难以观察到变形结构上的材料转变。例如,在 图2D,将难以确定DLBM回缩所朝向的MLV方向。
对方案的一种可能修改是所使用的脂质成分。目前主要关注在哺乳动物和酵母内质网组成中占主导地位的磷脂16 (e.g磷脂酰胆碱(PC)、磷脂酰乙醇胺(PE)和磷脂酰肌醇(PI)。最初的实验采用PC和PI的混合物进行4在所呈现的结果中,使用了磷脂酰胆碱(PC)和二油酰磷脂酰乙醇胺(DOPE)以及一种磷脂酰乙醇胺(PE)衍生物的混合物。然而,并非所有任意的脂质组成均能通过本方案形成所获得的管状结构。其他一些经实验研究的脂质混合物包括全心组织提取物、大豆提取物极性组分, E. coli 提取极性脂质,包括不同比例的磷脂酰胆碱(PC)与溶血磷脂酰肌醇(stearoyl-2-hydroxy-sn-glycero-3-phosphoinositol, Lyso-PI)的混合物,以及不同比例的PC-磷脂酰乙醇胺(PE)-磷脂酰肌醇(PI)-磷脂酰丝氨酸(Phosphatidyl serine, PS)混合物。由于管状膜结构具有较高的曲率,需要单个脂分子的特殊排列,因此预期所观察到的现象具有脂质组成特异性。
本方案中应用的另一项改进是表面制备方法。此处采用原子层沉积(ALD)技术制备涂覆有Al2O3的盖玻片,这与最初报道的反应溅射沉积法4有所不同。尽管这表明不同的表面制备方法仍可诱导形成类似内质网(ER)的管状结构,但一个重要的限制因素在于表面材料的特异性。细胞铺展模式和黏附强度高度依赖于表面材料的性质,这些性质会影响诸如静电相互作用、润湿性、疏水性以及表面粗糙度等因素。Al2O3表面提供了最佳的黏附强度,脂质膜既能牢固附着并铺展为双层脂质膜,又可在去除Ca2+离子后脱附并形成管状网络。我们此前在SiO2表面上进行了相同的实验,发现多层脂质囊泡虽能铺展为双层脂质膜,但在加入螯合剂后并未观察到管状网络的形成17。只有在Al2O3或经等离子体刻蚀的Al表面,才可观察到脱附及管状结构的形成18。我们的研究表明,导致该现象的关键参数是表面的zeta电位,其中Al和Al2O3的zeta电位接近于零(mV),而SiO2则显著为负值。硼硅酸盐玻璃的zeta电位与SiO2相似19,因此脂质膜在其表面的黏附同样强烈且不可逆。事实上,多层脂质储库与硼硅酸盐表面接触时通常会立即破裂,形成单层脂质膜20。本方案所需的Al2O3表面目前尚无现成的商业产品。然而,可通过定制方式向专业玻璃和基材制造商订购。强烈建议具备配备薄膜制备设备的洁净室设施。
其他现有的自下而上构建类内质网管状网络的方法2,10 涉及蛋白质以及化学能的输入(例如,GTP 和 ATP)。Rapoport 及同事2 报道了在玻璃盖玻片上形成内质网网络 体外 通过将内质网(ER)中存在的膜弯曲蛋白与磷脂和GTP混合。Bachand 的研究工作 等10 展示了如何利用分子马达和ATP作为能量来源构建此类动态管状网络。本方案无需膜蛋白或有机化合物的水解来提供能量,唯一必需的组分是固体基底和磷脂。无需蛋白质的纯化与提取。就组成分子的简单性而言,该方案提供了最基本的内质网模型。
在建立这一基本的基于脂质的内质网模型后,通过添加与内质网相关的组分以逐步增加其复杂性具有重要意义,因为这能够研究各个组分对系统的独立影响。与真实的内质网网络类似,该模型中的管状结构具有动态特性。标记的膜蛋白或荧光颗粒在管状网络中的结合与迁移,可提供关于膜运动方向的信息。在结构转化过程中,对双层脂质微管(DLBM)及管腔内荧光液体的包裹与监测,以及管腔内容物运输的可能映射,可作为另一研究重点。最后,可通过将网络封装于水凝胶结构中,将本实验方案所获得的二维内质网模型拓展为三维光面内质网模型。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢瑞典查尔姆斯理工大学的 Aldo Jesorka 教授对本文手稿提出的宝贵意见。本工作得到了挪威研究理事会(Forskningsrådet)项目资助 274433、奥斯陆大学生命科学交叉环境计划、瑞典研究理事会(Vetenskapsrådet)项目资助 2015-04561,以及挪威分子医学中心提供的启动资金的支持。 & 奥斯陆大学数学与自然科学学院
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 mL 梨形烧瓶 | Lenz Laborglasinstrumente | 3.0314.13 | 用于配制脂质混合物 |
| 5 mL 玻璃注射器(货号) | Hamilton | P/N81520 | 用于将氯仿转移至烧杯 |
| 定制大接头 22 号针头 | Hamilton | 7748-18 | 与第 3 行所述注射器配套的可拆卸针头 |
| Hamilton 250 µL 玻璃注射器 | Hamilton | 7639-01 | 用于将氯仿中的脂质转移至烧瓶 |
| 大接头 22 号针头 | Hamilton | 7780-03 | 与第 5 行所述注射器配套的可拆卸针头 |
| Hamilton 50 µL 玻璃注射器 | Hamilton | 7637-01 | 用于将荧光标记脂质转移至烧瓶 |
| 小接头 22 号针头 | Hamilton | 7770-01 | 与第 7 行所述注射器配套的可拆卸针头 |
| 无水氯仿(≥99%) | Sigma-Aldrich | 288306 | 用于将脂质混合物体积补足至 300 µL |
| 大豆 L-α 磷脂酰胆碱脂质(Soy PC) | Avanti Polar Lipids Inc | 441601 | 占总组成/混合物 69% 的磷脂组分 |
| 1,2-二油酰基-sn-甘油-3-磷脂酰乙醇胺(DOPE) | Avanti Polar Lipids Inc | 850725 | 占脂质组成/混合物 30% 的磷脂组分 |
| L-α 磷脂酰肌醇脂质(Soy PI) | Avanti Polar Lipids Inc | 840044 | 替代性磷脂组分,占脂质组成/混合物 30%(源自原始文献 Bilal 和 Gözen,Biomaterials Science,2017) |
| 德克萨斯红 1,2-二十六酰基-sn-甘油-3-磷脂酰乙醇胺三乙基铵盐(Texas Red DHPE) | Invitrogen (Thermo Fisher Scientific) | T1395MP | 荧光标记脂质偶联物,占脂质组成/混合物 1% |
| 数字干浴/金属浴 | Thermo Fischer | 88870006 | 用于加热甘油以降低其黏度 |
| 分子生物学用甘油(≥99%) | Sigma Life Science | G5516 | 用于脂质制备 |
| PBS 缓冲液 (pH=7.8);下表第 17–21 行为组分 | 用于制备脂质悬浮液 | ||
| TRIZMA 碱,一级标准品及缓冲剂(≥99%) | Sigma Life Science | T1503 | 用于制备 PBS 缓冲液 |
| 磷酸三钾,试剂级(≥98%)(K3PO4) | Sigma-Aldrich | P5629 | PBS 缓冲液组分 |
| 七水合硫酸镁,BioUltra(≥99.5%)KT(MgSO4·7H2O) | Sigma Life Science | 63138 | PBS 缓冲液组分 |
| 磷酸二氢钾,无水,自由流动,Redi-Dri,ACS 级(KH2PO4) | Sigma-Aldrich | 795488 | PBS 缓冲液组分 |
| 乙二胺四乙酸二钠盐二水合物,ACS 试剂,99.0–101.0%(Na2EDTA) | Sigma-Aldrich | E4884 | PBS 及螯合剂-HEPES 缓冲液组分 |
| 超声清洗器 USC-TH | VWR | 142-0084 | 用于再水合脂质的超声处理 |
| 旋转蒸发仪 - Büchi 旋转蒸发仪 R-200 型 | Sigma | Z626797 | 用于蒸发氯仿 |
| 压力计 - 真空调节器 IRV-100 | SMC | IRV10/20 | 用于控制脂质脱水过程中的压力值 |
| HEPES 缓冲液(pH=7.8);下表第 26–27 行为组分 | 用于脂质再水合。成分:10 mM HEPES 含 100 mM NaCl,溶于超纯去离子水 | ||
| HEPES ≥99.5%(滴定法) | Sigma Life Science | H3375 | HEPES 缓冲液组分 |
| 分子生物学用氯化钠,无 DNase、RNase 和蛋白酶检出,≥98%(滴定法)(NaCl) | Sigma Life Science | S3014 | HEPES 缓冲液组分 |
| 钙-HEPES 缓冲液(pH=7.8);有效组分见第 29 行 | 用于脂质铺展。成分:10 mM HEPES,100 mM NaCl,4 mM CaCl2,溶于超纯去离子水 | ||
| 无水氯化钙,BioReagent,适用于昆虫细胞培养和植物细胞培养,≥96.0%(CaCl2) | Sigma Life Science | C5670 | 用于制备钙-HEPES 缓冲液 |
| 螯合剂-HEPES 缓冲液(pH=7.8);有效组分见第 31 行 | 用于促进管状网络的形成。 成分:10 mM HEPES,100 mM NaCl,10 mM EDTA 和 7 mM BAPTA,溶于超纯去离子水 | ||
| 1,2-双(2-氨基苯氧基)乙烷-N,N,N′,N′-四乙酸四钠盐 ≥95%(HPLC)(BAPTA-Na4) | Sigma Life Science | 14513 | 螯合剂-HEPES 缓冲液组分 |
| 氢氧化钠 | Sigma | 30620 | 用于调节缓冲液 pH 的碱性溶液 |
| pH 计 accumet™ AE150 pH | Fisher Scientific | 1544693 | 用于测量所有缓冲液的 pH |
| 玻璃培养皿 | VWR | HECH41042012 | 直径 6 cm,用于制备 PDMS 薄片 |
| 氢氧化钾,ACS 试剂,≥85%,颗粒状(KOH) | Sigma-Aldrich | 221473 | 用于配制 KOH 溶液,以清洗用于制备 PDMS 薄片的玻璃培养皿 |
| 异丙醇,优级纯,99.5% | Antibac AS | 600079 | KOH 溶液组分 |
| 加热干燥箱 - venticell | MMM Medcenter Einrichtungen GmbH | MC000714 | 用于玻璃培养皿硅烷化后的干燥及 PDMS 固化 |
| 二氯二甲基硅烷 ≥99.5% | Sigma-Aldrich | 440272 | 用于硅烷化制备 PDMS 薄片的玻璃培养皿 |
| 真空泵 | Cole-Parmer | EW-79202-05 | 连接至干燥器 |
| Sylgard 184 硅橡胶固化剂 | Dow corning | 24236-10 | 用于配制 PDMS 溶液的试剂套装 |
| Sylgard 184 硅橡胶基础液 | |||
| 一次性手术刀 | Swann-Morton | 11798343 | 用于切割 PDMS |
| 盖玻片 | Menzel -Gläser | MEZ102460 | 24×60 mm。用于沉积 Al2O3 薄膜 |
| 原子层沉积系统 | Beneq | TFS200(型号) | 用于在显微镜盖玻片上沉积 Al2O3 薄膜的原子层沉积系统 |
| 椭偏仪 | J.A. Woollan Co. | Alpha-SE(型号) | 用于表征玻璃表面沉积薄膜厚度的系统 |
| 激光扫描共聚焦显微镜 | Leica Microsystems | Leica TCS SP8 X | 用于实验观察的显微镜 |
| 40 倍物镜,1.3 数值孔径 | Leica Microsystems | 1550635 | 用于实验观察 |
| 白光激光光源 | Leica Microsystems | Leica TCS SP8 X | 用于激发膜荧光染料 |
参考文献
- Chen, S., Novick, P., Ferro-Novick, S. ER structure and function. Current Opinion in Cell Biology. 25 (4), 428-433 (2013).
- Powers, R. E., Wang, S., Liu, T. Y., Rapoport, T. A. Reconstitution of the tubular endoplasmic reticulum network with purified components. Nature. 543 (7644), 257-260 (2017).
- Pendin, D., McNew, J. A., Daga, A. Balancing ER dynamics: Shaping, bending, severing, and mending membranes. Current Opinion in Cell Biology. 23 (4), 435-442 (2011).
- Bilal, T., Gözen, I. Formation and dynamics of endoplasmic reticulum-like lipid nanotube networks. Biomaterials Science. 5 (7), 1256-1264 (2017).
- Shibata, Y., et al. Mechanisms determining the morphology of the peripheral ER. Cell. 143 (5), 774-788 (2010).
- Ozcan, L., Tabas, I. Role of endoplasmic reticulum stress in metabolic disease and other disorders. Annual Review of Medicine. 63, 317-328 (2012).
- Yamanaka, T., Nukina, N. ER dynamics and derangement in neurological diseases. Frontiers in Neuroscience. 12, (2018).
- Taalab, Y. M., et al. Mechanisms of disordered neurodegenerative function: Concepts and facts about the different roles of the protein kinase RNA-like endoplasmic reticulum kinase (PERK). Reviews in the Neurosciences. , (2018).
- Shemesh, T., et al. A model for the generation and interconversion of ER morphologies. Proceedings of the National Academy of Sciences of the United States of America. 111 (49), 5243-5251 (2014).
- Bouxsein, N. F., Carroll-Portillo, A., Bachand, M., Sasaki, D. Y., Bachand, G. D. A continuous network of lipid nanotubes fabricated from the gliding motility of kinesin powered microtubule filaments. Langmuir. 29 (9), 2992-2999 (2013).
- Sackmann, E. Endoplasmatic reticulum shaping by generic mechanisms and protein-induced spontaneous curvature. Advances in Colloid and Interface Science. 208, 153-160 (2014).
- Jesorka, A., et al. Generation of phospholipid vesicle-nanotube networks and transport of molecules therein. Nature Protocols. 6, 791(2011).
- Hook, D. A., Olhausen, J. A., Krim, J., Dugger, M. T. Evaluation of Oxygen Plasma and UV Ozone Methods for Cleaning of Occluded Areas in MEMS Devices. Journal of Microelectromechanical Systems. 19 (6), 1292-1298 (2010).
- Gözen, I., et al. Fractal avalanche ruptures in biological membranes. Nature Materials. 9 (11), 908-912 (2010).
- Lobovkina, T., Dommersnes, P., Joanny, J. -F., Hurtig, J., Orwar, O. Zipper Dynamics of Surfactant Nanotube Y Junctions. Phys Rev Lett. 97, (2006).
- van Meer, G., Voelker, D. R., Feigenson, G. W. Membrane lipids: where they are and how they behave. Nature Reviews Molecular Cell Biology. 9 (2), 112-124 (2008).
- Gözen, I., et al. Repair of large area pores in supported double bilayers. Soft Matter. 9 (10), 2787-2792 (2013).
- Gözen, I., et al. Thermal migration of molecular lipid films as a contactless fabrication strategy for lipid nanotube networks. Lab on a Chip. 13 (19), 3822-3826 (2013).
- Sides, P. J., Hoggard, J. D. Measurement of the Zeta Potential of Planar Solid Surfaces by Means of a Rotating Disk. Langmuir. 20 (26), 11493-11498 (2004).
- Nissen, J., Jacobs, K., Rädler, J. O. Interface Dynamics of Lipid Membrane Spreading on Solid Surfaces. Physical Review Letters. 86 (9), 1904-1907 (2001).
重印与许可
