本方法学论文通过检测每100个巢房中的胎粪数量,评估社会性黄蜂蜂群的生产力,以估算黄蜂产生的成虫总数。相关视频介绍了寻找Vespula属黄蜂巢穴的方法,该方法由业余黄蜂观察爱好者开发。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
对于黄蜂科(Vespinae)的黄蜂,通常通过统计幼虫巢室的数量来估算群体生产力。本文介绍了一种改进的方法,使研究人员能够更准确地估算成虫产出数量,即通过统计每个巢脾中每100个巢室内的蜕膜物数量(黄蜂幼虫化蛹为成虫时在巢室内留下的粪便)。该方法可在群体崩溃前或崩溃后应用即,在活跃或非活跃的巢穴中)。本文还描述了如何寻找野生 Vespula 黄蜂群体通过 "标记" 使用日本中部地区当地人传统采用的方法(如相关视频所示),通过诱饵吸引马蜂并追踪采集马蜂的个体。 Vespula 所述追踪方法具有多项优势:当采集蜂在返回蜂巢途中丢失时,易于从丢失位置重新开始追踪;同时,由于标记的蜂常在巢口丢失标记物,因此易于精确定位蜂巢位置。这些用于评估蜂群生产力和采集蜂巢的方法,对于研究社会性胡蜂的研究人员具有重要价值。
引言
人们认为,每个物种都会在众多可能的生存与繁殖策略中发展出一种最优策略。在自然选择过程中,具有能够最大化个体繁殖成功率性状的个体,将为下一代留下更多的后代(和基因)。因此,个体所产生的后代数量可作为其相对进化适合度的一个指标。在特定的生态背景下,通过比较不同行为策略所产生的后代数量,研究人员可据此预测最有利于优化适合度的策略1。
社会性膜翅目昆虫(如黄蜂、蜜蜂和蚂蚁)具有三种不同的品级系统,分别为工蜂(不育雌性)、蜂后(雌蜂)和雄蜂1在社会性膜翅目昆虫中,只有新产生的雌性繁殖个体(蚁后)和雄性个体才被计入适合度。由于工蚁不育,其数量并不直接贡献于适合度。另一方面,能够产生更高群体生产力的蚁后(例如拥有更多巢室总数或更重的巢)被认为具有更高的适合度,而不论其实际产生的新蚁后和雄性个体数量如何(参见, 例如,Tibbetts 和 Reeve2 和 Mattila 与 Seeley3)。一般来说,准确统计社会性膜翅目昆虫群体所产生的后代数量是困难的。事实上,许多社会性昆虫的蜂后寿命超过1年(例如,切叶蚁蚁后可以存活 >20年4 并且蜂王可以存活8年5此外,即使在一些一年生的属中,一只蜂后在数周或数月内也可能产生数千个具有繁殖能力的后代 黄蜂 和 Vespula6,7,8此外,工蚁的寿命比其蚁后短,且工蚁常在远离巢穴的地方死亡。因此,即使能够准确统计某一时刻巢穴内所有成年个体的数量,该统计结果也无法准确反映所繁殖后代的数量。因此,后代数量通常根据巢穴的大小、巢内工蚁的数量或某一时刻巢穴的重量进行粗略估算。3,9,10幼虫细胞的数量可能导致后代产量被高估,因为部分细胞可能为空。同样,该方法也可能导致后代产量被低估,因为含有工蜂幼虫的小型巢房可能产生两到三代幼虫6,7,11.
本研究的首要目标是提供一种改进的方法,用于估算黄蜂群体的繁殖力,即所产生的成虫数量。山根和山根提出,估算一个群体所产生后代数量的最佳方法是统计巢穴中的蜕膜数量12。蜕膜是由幼虫的表皮、肠道及其内容物组成的粪粒,当幼虫化蛹时会遗留在其巢室中(图1A)。每张巢脾所产生的蜕膜总数通过将巢室总数乘以每个巢室的平均蜕膜数来计算。一个巢室内常有多层蜕膜,每一层蜕膜表明有个体在该巢室内成功化蛹6,11(图1B)。在估算每个巢室的平均蜕膜数时,若检查的巢室数量较少(样本量小),标准误(SE)会增大,从而导致每张巢脾蜕膜总数的误差高于大样本情况下的误差。均值的标准误(SEM)是衡量样本均值围绕总体均值离散程度的指标。因此,在本研究中,我重点关注每个巢室蜕膜数的SEM,以便从样本均值(每个巢室的平均蜕膜数)推断总体(所产生的成虫数量)。本研究试图确定需要多少样本才能使每个巢室的SE低于0.05。为此,利用每张巢脾蜕膜数量的实际数据进行数值模拟,以确定在设定的0.05 SE范围内,准确估算该值所需的最小样本量(包括工蜂巢脾和蜂后巢脾)。
黄蜂属蜂群生活在隐蔽的巢穴中(地下或空中),巢穴由多个水平蜂房组成,自上而下依次建造6,7,11细胞的平均尺寸从第一张(顶部)蜂巢到最后一张(底部)蜂巢逐渐增大。在底部的蜂巢中,细胞的平均尺寸出现突然增大的变化。这些较宽的蜂巢细胞用于新蜂王的发育。因此,对蜂群生产力的更准确估计(即,当考虑工蜂巢房(小巢房)和蜂王巢房(大巢房)中粪茧总数时,可获得所产个体数量。为了估算蜂群水平的适合度,研究人员可估算所产生的蜂王数量,并仅关注蜂王巢房中的粪茧。至于雄性生殖个体,其可在工蜂巢房或蜂王巢房中培育,具体取决于物种。因此,除雄性具有第三种独特巢房尺寸的物种外,估算蜂群的雄性产量可能较为困难。13 (例如, Dolichovespula arenaria).
本研究的第二个目标是介绍一种在野外定位野生胡蜂科蜂群并将其移植到实验室巢箱中的实用技术。尽管一些研究人员通过害虫防治电话求助获取蜂巢(即,人们将其报告为害虫14,15),这种方法并不总是可行或理想。研究人员可能需要在害虫防治人员不工作的野外或人类居住区收集蜂巢,或者为了更灵活地在特定时间获取蜂巢而开展研究。有趣的是,日本中部山区的居民传统上会采集并饲养胡蜂(Vespula shidai, Vespula flaviceps,以及 Vespula vulgaris) 作为食物。因此,这些黄蜂的采集与人工饲养技术在这些地区已相当成熟。17.
本文还总结了用于饲养的实验方法 Vespula 黄蜂。本研究的实验生物为 V. shidai一种社会性地面筑巢黄蜂,分布于西亚和日本。 V. shidai 在日本所有的胡蜂中,其蜂巢规模为最大,每个蜂巢拥有 8,000 至 12,000 个巢室,最多可达 33,400 个巢室14,18. 工蚁 V. shidai 平均湿重为 67.62 ± 9.56 mg。雄性通常在工蜂巢房中培育;相比之下,新蜂王则在特制的、较宽的蜂王巢房中培育。14.
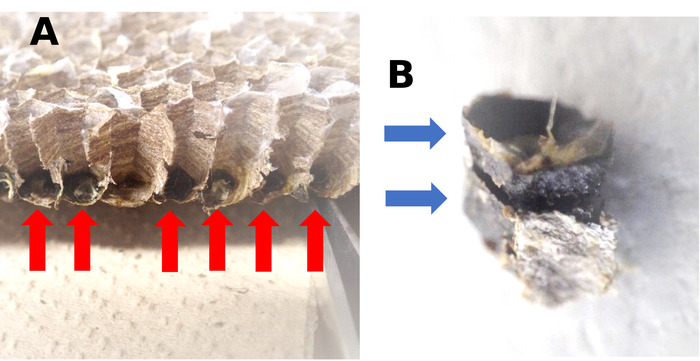
图1:幼虫巢室中的胎粪。(A)Vespula shidai 蜂巢的横截面。胎粪由红色箭头指示。(B)两处胎粪呈层状排列。每个蓝色箭头指示一处胎粪。请点击此处查看此图的高清版本。
访问受限。请登录或开始试用以查看此内容。
方案
1. 菌落生产力的评估
- 每巢房产细胞数量的估算
- 逐一将蜂巢分开,用镊子清除巢脾上的所有成年胡蜂,并将各巢房内的幼虫和蛹全部取出。
- 使用成像软件测量每个梳状结构中随机选取的10个细胞的面积例如,Image J 版本 1.48,参见 http://imagej.nih.gov/ij/)
- 使用刻度参照物拍摄照片,确保所有细胞均从正上方被完整拍摄。
- 根据标尺的实际长度,将所有测量长度转换为像素。
- 测量10个细胞的面积(以像素为单位),并将其转换为实际面积。
- 计算工蜂房和蜂王房的平均面积。
- 通过将每个巢脾的面积除以每个巢脾的平均巢房面积,估算工蜂房和蜂王房的数量。
- 通过计数胎粪数量评估菌落生产力
- 通过小心拆解蜂巢并检查粪便斑点,统计每100个蜂房中粪便斑点的数量。
注:此处确定该细胞数量已足够(每个细胞的胎粪颗粒数的标准误在 0.05 以内,参见代表性结果部分)。胎粪可能在细胞内凝固成两层或多层图1). - 计算这100个细胞中每个细胞的平均胎粪数量。
- 计算每巢的胎粪总数即,由估算的巢房中细胞数量及该巢脾每个细胞的平均蜜露量推算出的个体数量和群体生产力。
- 通过小心拆解蜂巢并检查粪便斑点,统计每100个蜂房中粪便斑点的数量。
2. 寻找Vespula 巢穴
- 诱捕
- 将约10 g的乌贼、淡水鱼或鸡心切成小块,悬挂于树杈上,高度以手可轻易触及为宜(图2).
- 沿着一条样线放置这些诱饵(例如,沿着穿过森林的道路或沿河设置50至100个观测点,每两个观测点之间至少相距5米。
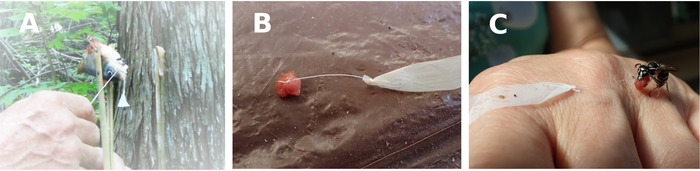
图2:为黄蜂提供带有标记的肉饵。(A)用绑在木棍末端的肉块诱引黄蜂。(B)将肉块用细线系在塑料标记上。(C)黄蜂抓住系在标记上的肉块。此类“带标记”饵料可提高飞行觅食者的可见性。图B和C的照片由Fumihiro Sato拍摄。请点击此处查看该图的放大版本。
- 为胡蜂提供“带标记的”诱饵
- 标记物的制作与附着
- 使用美工刀将塑料(聚乙烯)袋切割成宽 3 - 5 mm、长 15 cm 的条状。
- 在竹签或细枝上准备 1.5 mm3 的鸡心或乌贼肉(肉饵直径可为 1 - 2 mm,对于 V. shidai 工蜂而言质量应小于 15 mg;图 2)。
- 将细线系在标记物(塑料条,质量小于 10 mg)上,再将细线系在肉饵上,使标记物与肉饵之间的距离不超过 3 mm(此称为“带标记的”诱饵)。将结上方多余的线剪去。
注意:应使用极细的聚酯线,通常为缝纫机所用。
- 向胡蜂呈现肉饵
注意:最有效的方法是追踪那些离开后 4 分钟内反复返回诱饵点的胡蜂,因为取走诱饵后迅速返回的个体其巢穴通常较近。- 当胡蜂咬住诱饵时,在每只胡蜂的胸部涂上独特的标记,以便个体识别(建议使用水性记号笔,参见材料表)。
- 向胡蜂呈现带标记的诱饵时,当其咬住诱饵,应将标记物(带线的塑料条)从胡蜂下方穿过,调整方向,使标记物和细线从胸部下方穿过并位于腹部之下。
- 追踪已标记的胡蜂
- 在开始追踪前,收走周围区域的诱饵,使返回的胡蜂更可能回到同一位置。
注意:追踪已标记胡蜂时,最好由两人或以上的小组协作完成。至少一人留守在样线上的诱饵点,继续向觅食胡蜂提供带标记的诱饵,其余人员则负责追踪已标记个体。当多个胡蜂被同一诱饵吸引时,仅标记并追踪朝相同方向飞行的个体。 - 追踪携带带标记诱饵的胡蜂。
- 当被追踪的胡蜂在飞往巢穴途中某处降落时,用长棍(树枝)或钓鱼竿轻轻挑起胡蜂,并观察直至其重新起飞。
注意:操作需轻柔,切勿击打静止的胡蜂,否则其会丢弃诱饵并飞离。 - 当胡蜂在再次飞回巢穴前正在重塑新的肉团时,如有必要,重新调整标记物位置。
注意:胡蜂有时会降落并咬断细线,从而将标记物从肉饵上移除。若此情况频繁发生,可缩短标记物长度以增强觅食蜂的飞行能力。 - 若在追踪过程中胡蜂脱离视线,应等待其返回样线上的诱饵点后再继续追踪。此次可在胡蜂咬住新诱饵时,手持诱饵棒(连同胡蜂)将其转移至其上次脱离追踪的位置。
注意:觅食中的胡蜂不易主动放弃诱饵,若操作轻柔则不会蜇人。因此,可通过握住标记物将携带带标记诱饵的胡蜂移动至所需位置,而不会导致胡蜂逃脱。
- 在开始追踪前,收走周围区域的诱饵,使返回的胡蜂更可能回到同一位置。
- 标记物的制作与附着
3. 巢穴转移
- 运输箱的结构
- 制作不同尺寸的巢箱,长度和宽度为 10 至 20 cm,高度也为 10 至 20 cm,以适应不同大小的蜂巢。
注意:此尺寸的箱子足以容纳日本中部地区 7 月中旬至 8 月中旬采集的V. shidai幼小蜂巢。应根据每个物种在不同生长阶段的蜂巢大小,分别制作相应的运输箱。 - 制作竹制网格,并将其固定在箱内底部上方约 2 cm 处,以便于将蜂巢稳妥地放置在运输箱中。
- 在运输箱底部铺上报纸,并将其粘贴在一块木质的可拆卸底板上(图3)。
注意:当运输箱被放入巢箱后,报纸将允许马蜂在运输箱下方咀嚼并继续建造新的巢脾(见第 3.2 节)。
- 制作不同尺寸的巢箱,长度和宽度为 10 至 20 cm,高度也为 10 至 20 cm,以适应不同大小的蜂巢。
- 蜂巢的挖掘
- 在完全暴露蜂巢之前
注意:请穿戴防护服,以避免遭到保卫蜂巢的马蜂蜇伤。- 一旦发现马蜂巢,即可开始挖掘。
- 用力踩踏蜂巢周围的地面约 10 至 20 分钟,使进出蜂巢的工蜂留在巢内以保护蜂巢,从而尽可能多地收集工蜂。
注意:若马蜂持续停留在巢外,建议改用昆虫网捕捉。尽管踩踏法对V. flaviceps、V. shidai 和 V. vulgaris 有效,但其他种类的工蜂可能会攻击踩踏者。若出现此类情况,应跳过此步骤。 - 将光源直接照射蜂巢入口,以确定巢道的走向。同时,用手指确认巢孔的方向,并轻柔地清除蜂巢周围的土壤。
- 在完全暴露蜂巢之后
- 当整个蜂巢暴露后,铺开一块布,将蜂巢放置其上,以防止马蜂逃入蜂巢下方的土壤中。
- 将挖掘出的蜂巢放入木质(运输)箱中,以便运往实验室(图3);然后用树枝和报纸覆盖蜂巢。运输时,蜂巢顶部应保持暴露,不被覆盖。
- 将运输箱置于布上静置 5 至 10 分钟,直至马蜂趋于平静。
- 用昆虫网收集周围区域的马蜂,并与蜂巢一同运往实验室。
注意:作为替代采集方法,可在挖掘前通过向蜂巢扇入赛璐珞烟雾或乙醚,使巢内个体麻醉。
- 在完全暴露蜂巢之前
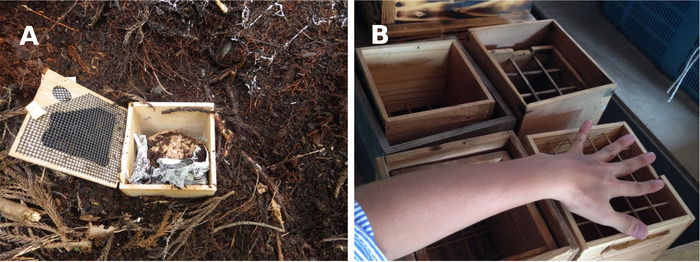
图3:携带箱。(A)用于运送野外采集的蚁巢样本的箱子。(B)箱底放置竹制网格。右侧图像中的两个箱子为倒置状态。请点击此处查看该图的放大版本。
4. 黄蜂属(Vespula)的饲养
- 蜂箱结构
注:蜂箱由木材制成,用于饲养V. shidai,其长、宽各为50 cm,高为70 cm(在自然环境中,成熟蜂巢直径约为40 cm)。应根据所饲养蜂种的巢穴大小制作相应的蜂箱。- 在蜂箱上设置一个出入口(通常位于箱体上部),以便胡蜂离巢觅食。
- 用采集蜂巢地点的同类土壤填充蜂箱约三分之一的体积。
- 在蜂箱入口处安装网眼为1.5 cm2的金属网,防止其他胡蜂(如捕食性种类Vespa mandarinia和Vespa simillima)侵入。
- 在蜂箱内放置两根可承托运输箱的木条(图4)。
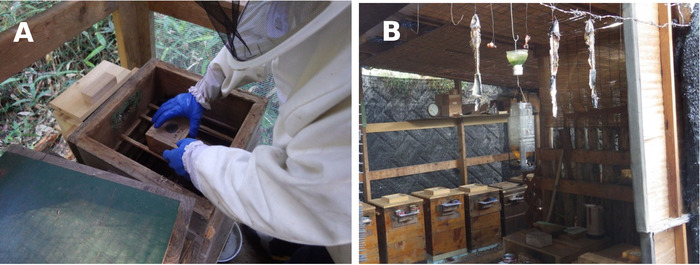
图 4:实验室设置。 (A)将运蜂箱放入用于长期研究的蜂巢箱中。在将运蜂箱置入蜂巢箱之前,需先移除运蜂箱底部的木板,仅保留报纸覆盖蜂巢底部。(B)一排悬挂于金属丝线上的蜂巢箱,配有食物资源。请点击此处查看该图的放大版本。
- 将携带箱移植到蜂巢箱中
- 在采集的蜂巢中饲养胡蜂时,将蜂巢箱置于干燥处(即,避免雨淋的地方)。
- 取下携带箱底部的木板,并将其放入蜂巢箱中,用于长期研究(图4)。
注意:胡蜂常会咬破覆盖在携带箱底部的报纸,从而可能从破孔中逃出并造成蜇伤风险。因此,在移植蜂巢时应穿戴防护服。
- 喂养胡蜂
- 在距离蜂巢箱约3 m处放置多种类型的肉类(鱿鱼、淡水鱼、鸡胸肉或鸡心)以及一份蜂蜜与水按1:3比例配制的溶液。
- 提供足够满足1天取食需求的食物量。每天补充新鲜食物(胡蜂亚科不采集陈旧或腐烂的肉类)。
访问受限。请登录或开始试用以查看此内容。
结果
本研究的一个目标是确定需要多少样本才能获得每个细胞含胎粪数目的标准误(SEM)小于0.05。本研究中,蜂房的平均巢房尺寸为 <20 mm2 被定义为工蜂巢房,而较大的巢房则被定义为蜂王巢房。我统计了蜂王巢房和工蜂巢房的巢房数量(本研究中,从五个蜂群中各选取六个蜂王巢房和六个工蜂巢房进行统计) V. shidai 菌落)。每个蜂房中的实际细胞数量由这些数据估算得出 通过 外推法表1).
| ID | 状态 | 采集日期 | 面积 (mm2) |
访问受限。请登录或开始试用以查看此内容。
讨论
蜜蜂、蚂蚁和胡蜂的群体生产力以往是通过巢穴中的工蜂数量和巢房数量,或巢穴重量来估算的3,9,10。本研究表明,通过估算胎粪(meconia)的数量可更准确地反映群体所产个体的总数(即,作为群体生产力的更佳指标)。事实上,研究发现,无论是工蜂巢房还是蜂王巢房,其胎粪数量均为巢房内幼虫巢房数的0.53至1.96倍。这些结果量化了仅依据巢脾上巢房数量来判断所产工蜂和蜂王数量时可能存在的不准确性。尽管统计巢穴中胎粪数量更为耗时费力,但似乎能更精确地评估群体生产力。然而,在本研究中,尚未评估胎粪数量在多大程度上能准确代表所产个体的实际数量。
本文展示了如何计算一个 V. shidai 应基于巢穴中胎粪数量的样本数据,采用自助模拟法(bootstrap simulation approach)评估种群生产力,并据此检查蜂巢。根据模拟结果,每张巢脾的工蜂房和蜂王房各调查100...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者谨向高桥克之、小林博生、佐藤文博、小五庄太、早川俊宏和今井久树,感谢他们传授传统的胡蜂捕猎方法。作者特别感谢Kevin J. Loope和Davide Santoro对稿件的仔细校对。作者感谢安倍正人、冈田泰一、小林雄一郎、岛田正一和土田浩二提供的有益讨论。作者感谢清水悠也和藤冈春奈在评估蜂群生产力方面提供的技术支持。作者感谢Tsukechi黑蜂俱乐部对视频拍摄的支持。作者感谢三位匿名审稿人对本文早期版本提出的宝贵意见。本研究部分得到了武田科学振兴财团、藤原自然史财团、长野县科学振兴会资助、下中纪念财团、宝生物和谐基金以及Come on UP有限公司“梦想计划”项目的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乌贼 | 任意 | 新鲜/用作诱饵 | |
| 白鲦鱼 | 任意 | 新鲜/用作诱饵 | |
| 鸡心 | 任意 | 新鲜/用作诱饵 | |
| 塑料袋(聚乙烯) | 任意 | 用作旗帜 | |
| 竹签 | 任意 | ||
| 工业缝纫线 | FUJIX Ltd. | King polyester, No.100 | |
| 油漆记号笔 | Mitsubishi pencil | UNI, POSCA, PC5M | |
| 钓鱼竿 | ANY | ||
| 携带箱 | 由木材制成 | ||
| 巢箱 | 由木材制成 |
参考文献
- Davies, N. B., Krebs, J. R., West, S. A. An introduction to Behavioural Ecology. , John Wiley & Sons. (2012).
- Tibbetts, E. A., Reeve, H. K. Benefits of foundress associations in the paper wasp Polistes dominulus: increased productivity and survival, but no assurance of fitness returns. Behavioural Ecology. 14, 510-514 (2003).
- Mattila, H. R., Seeley, T. D. Genetic Diversity in Honey Bee colonies Enhances Productivity and Fitness. Science. 317, 362(2007).
- Weber, N. A. Gardening Ants, the Attines. American Philosophical Society. , Philadelphia, PA. (1972).
- Baer, B., Schmid-Hempel, P. Sperm influences female hibernation success, survival and fitness in the bumble-bee Bombus terrestris. Proceedings: Biological Science. 272 (1560), 319-323 (2005).
- Spradbery, J. P. Wasps. An Account of the Biology and Natural History of Social and Solitary Wasps, with Particular Reference to Those of the British Isles. , Sidwick & Jackson Ltd. (1973).
- Matsuura, M., Yamane, S. Comparative Ethology of the Vespine Wasps. , Hokkaido University Press. Sapporo, Japan. in Japanese (1984).
- Greene, A. Production schedules of vespine wasps: an empirical test of the bang-bang optimization model. Journal of Kansas Entomological Society. 57 (4), 545-568 (1984).
- Cole, B. J. Multiple mating and the evolution of social behavior in the Hymenoptera. Behavior Ecology Sociobiology. 12, 191-201 (1983).
- Goodisman, M. A. D., Kovacs, J. L., Hoffman, E. A. The significance of multiple mating in the social wasps Vespula maculifrons. Evolution. 61 (9), 2260-2267 (2007).
- Greene, A. Dolichovespula and Vespula. The Social Biology of Wasps. Ross, K. G., Matthews, R. W. , Cornell University Press. Ithaca, NY. 263-305 (1991).
- Yamane, S., Yamane, S. Investigating methods of dead vespine nests (Hymenoptera, Vespidae) (Methods of taxonomic and bio-sociological studies on social wasps. II). Teaching Materials for Biology. 12, in Japanese 18-39 (1975).
- Loope, K. J. Matricide and queen sex allocation in a yellowjacket wasp. The Science of Nature. 103 (57), 1-11 (2016).
- Matsuura, M. Social Wasps of Japan in Color. , Hokkaido University Press. Sapporo, Japan. in Japanese (1995).
- Foster, K. R., Ratnieks, F. L. W., Gyllenstrand, N., Thoren, P. A. Colony kin structure and male production in Dolichovespula wasps. Molecular Ecology. 10 (4), 1003-1010 (2001).
- Loope, K. J., Chien, C., Juhl, M. Colony size is linked to paternity frequency and paternity skew in yellowjacket wasps and hornets. BMC Evolutionary Biology. 14 (1), 1-12 (2014).
- Nonaka, K. Cultural and commercial roles of edible wasps in Japan. Forest Insects as Food: Humans Bite Back. Proceedings of a workshop on Asia-Pacific resources and their potential for development. , Chiang Mai, Thailand. 123-130 (2010).
- Yamane, S. The unique ecology of Vespula shidai amamiana and the origin of distribution. Ecological Society of Japan. Biodiversity of the Nansei Islands, its formation and conservation. Funakoshi, K. , in Japanese (2015).
- R: The R Project for Statistical Computing. , Available from: https://www.R-project.org/ (2018).
- Saga, T., Kanai, M., Shimada, M., Okada, Y. Mutual intra- and interspecific social parasitism between parapatric sister species of Vespula wasps. Insectes Sociaux. 64 (1), 95-101 (2017).
- Van Huis, A., et al. Edible insects: future prospects for food and feed security. , Food and Agriculture Organization of the United Nations. Rome, Italy. (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
