本实验方案结合了眼动追踪和扫视前视觉敏感性的评估,采用双重任务范式,包括自由选择扫视任务和视觉分辨任务,以研究在精确扫视和平均扫视之前的视觉空间注意的分配情况。
本文内容
摘要
摘要
本实验方案旨在研究视觉注意是否必然被分配到眼跳终点。为此,我们通过眼动追踪记录了人类被试在执行眼跳任务时的眼球位置,并评估了眼跳准备期间多个位置上的视觉朝向辨别能力。重要的是,本方案并未采用单一眼跳目标范式(在此范式中,眼跳终点通常与目标位置大致重合),而是呈现两个相邻的眼跳目标,从而在大量试验中实现了眼跳目标位置与眼跳终点之间的显著空间分离。该范式使我们能够比较在精确眼跳(落点位于其中一个眼跳目标处)和平均眼跳(落点位于两个目标之间的中间位置)的眼跳终点处,眼跳前的视觉辨别能力。我们观察到,在精确眼跳的终点处视觉敏感性出现选择性增强,而在平均眼跳的终点处则未见此现象。相反,在执行平均眼跳之前,两个目标位置处的视觉敏感性均得到同等程度的增强,提示平均眼跳的产生源于眼跳目标之间未解决的注意选择。这些结果基于对眼跳前视觉敏感性的直接测量,而非其他方案中常用于得出类似结论的眼跳反应时间,从而反对了视觉注意与眼跳编程之间存在强制性耦合的观点。尽管本方案为在行为层面研究视觉注意与眼跳运动之间的关系提供了有用的框架,但它也可与电生理测量方法结合,以进一步深入理解神经元层面的机制。
引言
越来越多的证据表明,眼动控制与注意控制之间存在紧密耦合。具有重要影响的注意的前运动理论1,2对这种耦合关系提出了尤为严格的观点,认为视觉注意的隐蔽转移对应于眼跳程序的启动,但并未实际执行眼跳。事实上,通过功能磁共振成像(fMRI)已识别出注意与眼动控制共享的神经相关机制3,并且对 额叶眼动区(FEF)和上丘(SC)进行亚阈值微刺激,可在行为和电生理水平上均观测到在受刺激运动野位置处的注意增强效应,即使并未诱发任何眼动4,5,6,7。心理物理学实验还进一步揭示,在眼动准备期间,视觉注意会持续地转移到眼跳目标位置8,9。然而,神经层面的分离现象10,11,12,以及一些观察结果表明,眼跳准备并不必然伴随相应的注意转移13,14,15,16,这些都对眼跳编程与视觉空间注意之间是否存在强制性耦合提出了质疑。
本研究在行为层面上重新探讨了注意力与眼动编程之间的耦合特性,采用了一种包含自由选择扫视任务和视觉分辨任务的双重任务范式。关键在于,在一半的试验中,呈现了两个呈30°角距离的扫视目标,从而引发显著的全局效应17,18,19,20,表现为大量扫视落点位于两个目标之间的中间位置(即平均扫视)。由于我们在扫视起始前随机地在24个等距位置中的一个(包括两个扫视目标位置、它们之间的中间位置以及21个控制位置)短暂呈现一个分辨目标,因此能够评估并比较在扫视目标与扫视终点空间位置一致(准确扫视)或不一致(平均扫视)时,扫视前视觉注意力的空间分配情况。
为了检验视觉注意是否是眼动编程的必然结果,从而总是向扫视终点转移,我们分析了所有24个位置的视觉敏感性随扫视落点方向的变化情况。虽然准确的扫视伴随着其终点处视觉敏感性的稳定预增强,但在平均扫视的终点并未发现此类增强。这种分离现象排除了在行为层面上视觉注意必然与执行的眼动程序耦合的可能性,提示注意控制与眼动控制在某些皮层或皮层下处理阶段是可分离的。重要的是,我们在平均扫视发生前的两个扫视目标位置均观察到相等的视觉敏感性增强,表明全局效应源于扫视启动前尚未解决的扫视目标选择过程。
方案
本方案根据慕尼黑路德维希-马克西米利安大学规定的伦理要求制定,并已获得该部门伦理委员会的批准。
1. 参与者
- 招募足够数量的视觉正常或矫正视力正常的健康初试参与者,且无神经或精神系统疾病。根据类似且近期的研究方案,建议招募10名参与者21,22。
注意: 本研究共招募了13名参与者(年龄20–28岁,女性7人,右眼优势眼12人,含1名作者),其中3名参与者因在所有测试位置上的朝向辨别表现均处于随机水平而被排除在最终分析之外。
2. 实验设置
- 在安静且光线较暗的房间内进行实验,实验过程需由熟悉眼动追踪及其他所有实验组件的资深实验人员监督。
- 准备实验装置,包括一台计算机、一个阴极射线管(CRT)显示器、一个标准键盘、两个扬声器和一个眼动仪(见材料表)。
- 使用合适的软件对实验进行序列化和控制(见材料表)。编写可在该软件上运行的脚本,以便为每位参与者自动加载并启动实验(https://github.com/mszinte/CompAttExo)。确保脚本编码了所有必要的实验参数,并实现了刺激呈现以及行为和眼动数据的采集。
- 在垂直刷新率不低于120 Hz的CRT屏幕上显示所有视觉刺激。通过实验屏幕的伽马线性化确保视觉Gabor刺激的正确显示。
- 通过标准键盘上的左箭头键和右箭头键评估参与者对辨别目标方向(逆时针或顺时针)的判断。
- 当参与者手动反应错误时,通过扬声器提供听觉反馈。
3. 眼动追踪
- 通过眼动仪以至少 1 kHz 的采样率全程记录参与者优势眼的注视情况。
- 要求参与者舒适地坐在椅子上,将下巴置于下颌托上,并将前额靠在固定杆上,以在实验过程中限制头部移动 。 individually 调整椅子、下颌托和前额杆的高度,使参与者的眼睛与实验显示器中心对齐。
- 个体眼动仪校准
- 在每个实验区块(持续时间:约 10 分钟)开始前,以及在必要时(例如发生明显头部移动并导致估计注视点偏移后),执行一次校准程序,以确保能够在 1° 半径范围内准确追踪参与者的注视位置。
注意:此处我们采用 13 点校准程序,以准确估计被追踪眼在不同注视方向下的特征性光反射(瞳孔与角膜反射)。- 要求参与者用眼睛跟随屏幕上不同位置移动的光点,以估计其注视位置。
- 重复执行该程序,将光点旋转 30°,并将测量得到的注视位置与估计的注视位置进行比较,以验证初始校准的准确性。若校准阶段后估计的注视位置与验证阶段测量的注视位置之间的平均差异小于 1°,则可认为校准准确。
- 当参与者反复出现偏离注视的情况时,应重复校准程序,以确保整个实验过程中具有高追踪精度。
- 在每个实验区块(持续时间:约 10 分钟)开始前,以及在必要时(例如发生明显头部移动并导致估计注视点偏移后),执行一次校准程序,以确保能够在 1° 半径范围内准确追踪参与者的注视位置。
- 实验过程中,在每个试次开始时监控参与者是否正确注视屏幕中心。仅当注视点在中央注视目标周围 2° 半径范围内持续至少 200 ms 时,才开始该试次。
4. 说明
- 向参与者提供清晰的任务说明。在每次实验开始时,以书面文字形式至少呈现一次任务说明,并附上试验时间进程的可视化图示。鼓励参与者仔细阅读说明,并向实验者提出尚未明确的问题。
注意: 每个实验区块开始前向参与者展示的说明内容如图1所示。- 指导参与者在每次试验开始时注视屏幕中央。
- 告知参与者屏幕上将出现24个闪烁的干扰刺激流,其中两个将由白色边框标记,这些边框可能短暂闪烁,或持续显示直至试验结束。
- 要求参与者自主选择其中一个被标记的干扰刺激流,并快速执行眼跳至其中心位置。强调参与者应在线索出现后,尽快且准确地移动视线。
- 告知参与者,在试验过程中的某一短暂时段内,一个倾斜的Gabor刺激将随机出现在24个干扰刺激流中的某一个位置。
- 要求参与者通过按压键盘上的右箭头或左箭头键,手动报告倾斜Gabor刺激相对于垂直方向是顺时针还是逆时针旋转。说明若对倾斜Gabor刺激的方向判断错误,将播放提示音。
5. 实验设计、刺激材料与试验时间序列
- 确保将实验分成至少两个不同日期的实验阶段,以保证参与者在整个实验过程中的注意力集中。在单次实验阶段内,应提示参与者在连续的实验组块之间短暂休息。
注意: 该实验共包含24个区组,每个区组包括290次在线正确试验(即所有未发生注视中断、且在眼跳目标出现后50至350毫秒之间发生眼跳起始的试验;错误试验将在区组结束时重复进行),总时长约为5小时。 - 预先明确设定刺激特征(颜色、亮度和大小)、刺激呈现时间以及观察距离,以确保达到所需的刺激视角大小。尽管视觉刺激的大多数特征(如大小、亮度和对比度)可根据预实验结果针对特定实验目的进行调整,但精确的刺激时序对于评估眼跳前时间窗内的视觉注意至关重要。
- 刺激与试验时序
- 将所有刺激呈现在灰色背景(约19.5 cd/m²)上2)背景,以尽量减少视觉和屏幕残留效应。
注意: 实验步骤的可视化展示可参见 图2. - 呈现一个黑色的注视点(FT,约 0 cd/m²)作为固定刺激2)和白色(约 57 cd/m²)2) "靶心" (0.4°半径)在试验开始时位于屏幕中心。在扫视目标出现的同时,从屏幕上移除注视目标。
- 在试验开始时,于注视点目标周围10°半径处均匀呈现24个干扰流(DS)。使用动态刺激,每25 ms(40 Hz)在垂直方向的Gabor图斑之间交替切换(空间频率:2.5 cpd;对比度:100%;每次刷新干扰流时随机选择相位;高斯窗标准差:1.1°;平均亮度:~28.5 cd/m²)2以及一个高斯像素噪声掩模(由宽度约为0.22°的像素构成,具有与Gabor刺激相同的 Gaussian 包络)。
注意: 闪烁噪声的使用有助于最小化由静态刺激通常伴随的突然出现所引起的注意捕获,从而在没有伴随选择性注意分配的情况下降低辨别目标的可检测性。21. - 在注视目标出现后300至600毫秒之间(以约8毫秒的屏幕刷新率为步长),呈现两个扫视目标(ST)1 和 ST2) 呈现为灰色圆圈(约 39 cd/m²)2;1.1° 半径;0.2° 宽度)包围两个随机选择的干扰流。确保在每次试验中随机变化扫视目标出现的时间,以避免参与者形成预测性扫视执行模式。
- 在不同试验中,以30°或90°的角距离随机呈现两个扫视目标。
- 随机呈现扫视目标,持续时间为 50 ms(瞬时提示条件:tST)1+2)或直至试验结束(持续提示条件:cST1+2在各次试验间。
- 在24个干扰流中的一个随机呈现辨别目标(DT),呈现时间为扫视目标出现后75至175毫秒之间。将辨别目标——一个相对于垂直方向顺时针或逆时针倾斜12°的倾斜Gabor斑块——显示25毫秒,以替换随机选定的干扰流中的垂直Gabor斑块。选择辨别目标呈现的时间窗口,以最大化辨别目标结束发生在扫视启动之前的试验数量。
注意: 辨别目标所应用的倾斜角度水平是通过预实验确定的,旨在使受试者在被注意的位置上的视觉辨别表现高于随机水平。该倾斜角度水平通常可以调整,但实验者应首先测试受试者是否至少能够在提示位置正确辨别目标角度。 - 在扫视目标出现后500毫秒,清除屏幕上的所有刺激,仅保留灰色背景。
- 等待参与者通过键盘按键指示辨别目标的朝向(按左箭头键表示逆时针朝向,按右箭头键表示顺时针朝向),当参与者报告的辨别目标朝向错误时,播放反馈提示音。一旦参与者做出手动反应,自动启动下一次试验。
- 将所有刺激呈现在灰色背景(约19.5 cd/m²)上2)背景,以尽量减少视觉和屏幕残留效应。
6. 数据预处理与分析
- 在进行最终数据分析之前,先对记录的眼动数据进行预处理。仅包含那些受试者在注视目标周围2°半径范围内保持注视、未眨眼,并且发起的眼跳落点位于注视目标7°至13°之间(即指令眼跳幅度的±30%以内)的试验。为确保任何视觉敏感度的测量均在眼跳前时间窗内完成,仅纳入判别目标偏移发生在眼跳起始之前的试验。
注意:眼动数据预处理后,最终分析共纳入了全部试验的75.7%。 - 为将数据按判别目标相对于眼跳目标位置的关系进行分析,需对每次试验的刺激构型进行旋转,使眼跳目标位置在刺激流轨道的几何角度0°两侧对称对齐。
- 根据眼跳落点方向对试验进行分组。为此,将整个刺激流轨道划分为24个相等的15°(±7.5°)角扇区,每个扇区以干扰刺激流为中心,并合并指向相同扇区的眼跳试验。
- 将视觉敏感度定义为:d' = z(击中率) − z(虚报率)。将对顺时针判别目标的顺时针反应计为击中,对逆时针判别目标的顺时针反应计为虚报(反之亦然)。在转换为d'之前,将判别表现值为100%和0%的情况分别替换为99%和1%。将低于随机水平(50%或d' = 0)的判别表现值转换为负d'值。
结果
此处仅展示部分核心的代表性结果,完整的结果可参见我们近期的发表文章23。需要注意的是,数据分析主要未考虑眼跳目标呈现时长的影响(即瞬时提示与持续提示条件在最终分析中被合并)。在进行统计比较时,我们从单个受试者均值的分布中抽取了10,000个自举样本(有放回抽样),并根据自举样本间差异的分布计算双尾p值。
眼跳起始和终止的检测基于注视速度的分布24。我们采用连续20个眼位采样点的移动平均值,当眼球速度超过或低于该移动平均值的中位数达3个标准差(SD)且持续至少20 ms时,即判定为眼跳起始或终止。矫正性眼跳定义为在离线选定的主要眼跳序列之后发生的眼球运动,仅当其落点位于注视目标周围7°至13°范围内,且在主要眼跳序列发生后的前500 ms内启动、并在受试者手动反应之前发起时,才纳入相应的矫正性眼跳分析。
在进行最终数据分析之前,数据经过了旋转处理(参见6.2节)。因此,在数据旋转后,最逆时针方向的眼跳目标ST1在90°和30°条件下分别始终表示为+45°/+15°,两个眼跳目标之间的中间位置BTW在90°和30°条件下均表示为0°,最顺时针方向的眼跳目标ST2在90°和30°条件下分别表示为-45°/-15°,以上角度均相对于0°角而言。在90°和30°条件下,除ST1、ST2和BTW以外的位置均被视为控制位置(CTRL)。
本方案使我们能够基于记录的眼动数据,评估在两个以不同角度距离呈现的扫视目标之间发生眼动竞争时所产生的扫视反应。正如预期,90°(图3A 和 3C)与30°(图3B 和 3D)条件下的扫视终点分布存在显著差异。在90°条件下,观察到大多数扫视准确指向其中一个扫视目标,其中41.0% ± 1.0%的扫视终点落在包含最逆时针方向扫视目标ST1的扇形区域,41.8% ± 1.9%落在包含最顺时针方向扫视目标ST2的扇形区域内(图3C)。相比之下,在30°条件下,受试者执行了大量平均化扫视。在此条件下,33.6% ± 2.4%的扫视终点落在两个扫视目标之间的中间扇形区域(BTW),29.95% ± 1.6%落在包含ST1的扇形区域,32.0% ± 1.8%落在包含ST2的扇形区域内(图3D)。
此外,通过对分布在视野内全部24个位置的视觉敏感度进行评估,我们得以详细分析眼动规划过程中注意力的空间分布。总体而言,在综合考虑各个方向的扫视后,我们观察到在两个扫视目标位置的视觉敏感度相对于控制位置CTRL(即除ST以外所有位置的平均值)表现出选择性增强1,ST2以及BTW)在两者中 90° (ST1:d' = 2.2 ± 0.3 对照 CTRL:d' = 0.3 ± 0.1, p < 0.0001;ST2:d' = 2.2 ± 0.4,相较于对照组, p < 0.0001;ST1 与 ST 对比2, p = 0.8964; 图 4A)和 30 ° (ST1:d' = 2.2 ± 0.3 对照 CTRL:d' = 0.3 ± 0.1, p < 0.0001;ST2:d' = 2.1 ± 0.3,相较于对照组, p < 0.0001;ST1 与 ST 对比2, p = 0.6026; 图4B)条件下,中间位置的视觉敏感度显著低于扫视目标位置(BTW:d' = 0.6 ± 0.2 对比 ST1, p < 0.0001;BTW 与 ST 对比2, p < 0.0001; 图4B),但与对照组位点相比略有增加 30° 条件(BTW 与 CTRL 比较) p = 0.0010).
为了厘清视觉注意是否必然被分配到眼跳终点位置,我们分析了所有位置的视觉敏感度随眼跳落点方向的变化情况(参见方案中的步骤6.3)。关键在于,本实验方案在30°条件下的特定眼跳落点分布,使得我们能够在相同视觉输入条件下,分析与空间上不同终点相关的眼跳发生前视觉注意的分配情况。更具体而言,通过在眼跳平均化之前分析视觉敏感度,我们可以判断即使眼跳终点在空间上不与眼跳目标重合时,注意是否仍会向眼跳终点转移。我们发现,在90°(ST1+2 眼跳发生:d' = 3.0 ± 0.4 对比 ST1+2 无眼跳:d' = 1.7 ± 0.4,p < 0.0001;图4E)和30°(ST1+2 眼跳发生:d' = 2.7 ± 0.4 对比 ST1+2 无眼跳:d' = 2.0 ± 0.3,p = 0.0080;图4F)条件下,准确眼跳终点处的视觉敏感度均显著增强。相反,在平均化眼跳发生前,眼跳终点处的视觉敏感度并未增强,反而略有降低(BTW 眼跳发生:d' = 0.4 ± 0.2 对比 BTW 无眼跳:d' = 0.7 ± 0.2,p < 0.0001;图4F)。因此,视觉注意并不会必然地转移到即将发生的眼跳终点。有趣的是,在平均化眼跳发生时,两个相邻眼跳目标位置的视觉敏感度提升程度相等(ST1:d' = 2.2 ± 0.4 对比 ST2:d' = 2.2 ± 0.4,p = 0.8402;图4D),这表明在平均化眼跳启动之前,眼跳目标之间的注意选择尚未明确完成。
为了进一步评估在产生平均眼跳之前注意力选择的潜在相关性,我们根据矫正性眼跳的落点方向对数据进行了分析,矫正性眼跳在发生平均眼跳后常可观察到。我们未观察到在平均眼跳之后发生的矫正性眼跳终点处存在显著优势(矫正性眼跳指向 ST1+2:d' = 2.8 ± 0.5,与未指向 ST1+2 的矫正性眼跳相比:d' = 2.5 ± 0.8,p = 0.68300;图 5C),该结果支持了在平均眼跳发生前注意力选择尚未完成的解释。
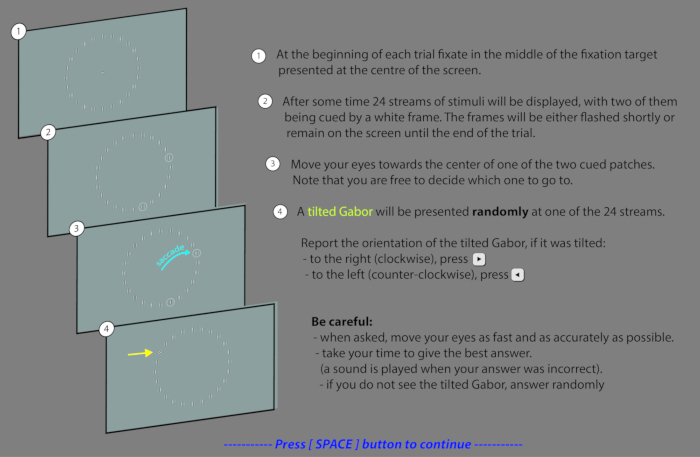
图1:向参与者展示的实验说明。 每个实验区段开始时向参与者呈现的实验说明示意图。请点击此处查看该图的放大版本。
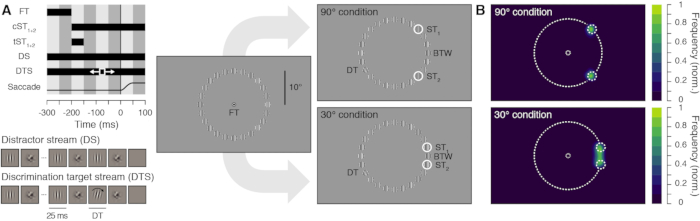
图 2:实验流程及标准化扫视落点频率图。(A)刺激时序与显示。受试者需从注视目标(FT)向两个潜在扫视目标(ST1 和 ST2)之一发起扫视,这两个目标同时呈现在两个随机选择的刺激序列上,目标间夹角为 90°(上图)或 30°(下图)。扫视目标可为持续呈现(cST1+2)或瞬时呈现(tST1+2)。刺激序列可为干扰物序列(DS),由交替的垂直Gabor和掩蔽图案组成(40 Hz),或为辨别目标序列(DTS),其中在扫视目标出现后 75 至 175 ms 内随机呈现一个短暂的辨别目标(DT,25 ms),即顺时针或逆时针倾斜的Gabor。受试者需向其中一个扫视目标进行扫视,并报告随机出现在24个刺激序列位置之一的辨别目标的朝向。请注意,图中所绘刺激为增强可视性而示意性绘制,实际刺激与图中所示刺激序列一致。(B)在 90°(上图)和 30°(下图)条件下(合并了瞬时与持续扫视目标呈现条件),参与者(n = 10)的标准化扫视落点频率图的平均结果。本图改编自 Wollenberg 等(2018)23。请点击此处查看此图的放大版本。
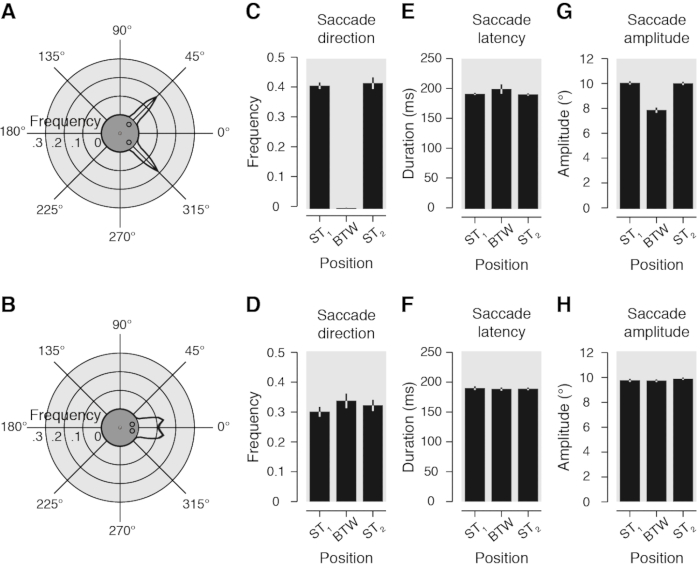
图3: 扫视眼动参数 (A-B圆形图显示了眼跳落点方向的平均频率分布,按均匀分布的角度扇区进行分组 5°,在该 90° (A)和 30° 条件(B)。刺激构型被旋转,以使两个扫视目标相对于几何角度零对称排列(见中央插图)。 (C-D柱状图显示了以24个等距角度扇区为单位、按扫视落点方向分组的试验频率平均值 15°数据展示了三个感兴趣位置(ST)的结果1,BTW 和 ST2)在 90° (C)和 30° 条件(D)。E-H平均扫视潜伏期(E,F)和幅度(G,H),针对相同三个感兴趣位置所观察到的结果 90° (E,G)和 30° 条件(F,H)。所有数据均显示,无论扫视目标呈现的持续时间(持续或瞬时)。浅灰色区域和误差条表示标准误(SEM)。极坐标图中的黑线及相应的浅灰色区域表示数据点之间的线性插值。该图已重印自 Wollenberg 等(2018)23. 请点击此处以查看此图的放大版本。
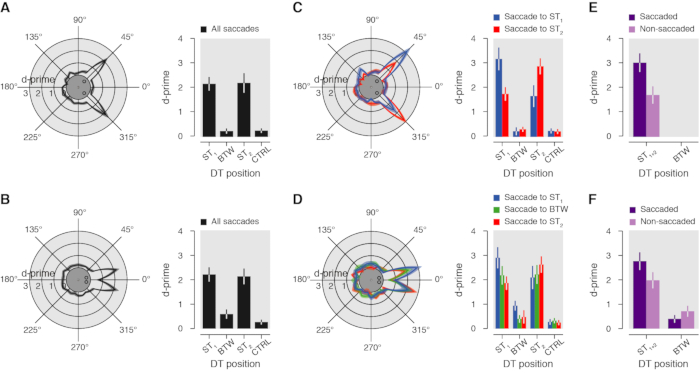
图 4:视觉敏感度。(A-B)圆形图显示了在 90°(A)和 30° 条件下,视觉敏感度(d')随 DT 位置的变化情况,结果取所有观察到的扫视方向的平均值,且不考虑扫视目标的持续时间。柱状图展示了四个感兴趣位置(ST1、BTW、ST2、CTRL)的视觉敏感度。(C-D)在 90°(C)和 30° 条件下,视觉敏感度随 DT 位置相对于扫视落点方向的变化情况,结果同样不考虑扫视目标的持续时间(蓝色:扫视至 ST1;绿色:扫视至 BTW;红色:扫视至 ST2)。对于每个扫视方向,我们计算了每个辨别目标位置的平均敏感度。例如,蓝色线表示扫视朝向 ST1 时的视觉敏感度,此时辨别目标位于 ST1(极坐标图中 +15°)、BTW(相对于 ST1 逆时针 15°;极坐标图中 0°)或 ST2(相对于 ST1 逆时针 30°;极坐标图中 +345°),其余类推。(E-F)柱状图展示了在 90°(E)和 30°(F)条件下,DT 出现在扫视目标位置(紫色:例如 DT 在 ST1 且扫视至 ST1)和非扫视目标位置(浅紫色:例如 DT 在 ST1 但扫视至 ST2 或 BTW)时的敏感度。图示约定同图 3。本图经 Wollenberg 等(2018)23 重新发表。请点击此处查看此图的放大版本。

图5:纠正性扫视眼动。 (A) 圆形图显示了在发生平均化扫视后,纠正性扫视落点方向的平均频率分布。B柱状图展示了在三种感兴趣位置(ST)下,校正性扫视着陆方向相对于平均扫视的试验频率的平均值1,BTW 和 ST2). (C) 柱状图展示了在所有执行了平均化扫视试验中,视觉敏感度随首次纠正性扫视方向的变化情况。紫色柱表示纠正性扫视指向DT出现位置的试验中的视觉敏感度(例如,DT出现在ST位置)1 向ST的纠正性扫视1)。浅紫色条形表示矫正性扫视指向与双目标(DT)出现位置不同的试验中的视觉敏感度(例如,DT 出现在 ST)1 向ST的纠正性扫视2 或 BTW)。约定与下文相同 图3-4该图已获重印自 Wollenberg 等(2018)23. 请点击此处以查看此图的放大版本。
讨论
本实验方案采用在自由选择扫视任务中同时评估注视行为和扫视前视觉敏感性的方法。这使我们能够分析在行为层面上,视觉注意是否确实必然与眼动程序相耦合,从而系统性地部署于扫视终点。在半数试验中,两个扫视目标以较近距离(30°)呈现 ,我们观察到一种明显的全局效应,表现为扫视落点分布同时包含准确扫视和平均扫视。为了推断视觉注意与扫视终点之间的空间耦合关系,我们分析并比较了不同位置的视觉敏感性,其分析依据为扫视落点方向。尽管我们在准确扫视的终点观察到视觉敏感性持续且选择性增强,但在平均扫视的终点并未发现视觉敏感性的增强。相反,在执行平均扫视之前,两个扫视目标位置的视觉敏感性均得到同等程度的促进,提示平均扫视的产生源于扫视目标之间未完全解决的注意选择。因此,我们的结果表明,视觉注意并不必然部署于所执行眼动程序的终点。对校正性扫视的分析进一步证实了这一解释:在平均扫视前,两个扫视目标位置的视觉敏感性均匀分布,且该分布并不随校正性扫视的方向而系统性变化。在此方面,我们的数据与Zirnsak等人提出的一个近期模型25一致,该模型假设目标选择过程是随时间逐步建立的。
重要的是,我们的实验方案在多个方面不同于其他报告注意与眼跳分离现象的行为学研究。尽管一些研究基于眼跳反应时间得出结论14,15,16,我们则采用了视觉空间注意的直接测量指标,即在眼跳准备期间的视觉敏感度。本方案中使用的特定参数有效复现了经典的眼跳前注意转移效应8,9,表现为准确眼跳终点位置视觉敏感度的一致性增强。因此,该方案能够可靠地检测出与眼跳准备相关的视觉注意的系统性调制。这是有效解释眼跳前注意效应的重要前提,尤其是解释在平均眼跳终点处未观察到注意增强的现象。
本方案的一个核心且独特的方面是将辨别目标随机呈现在不同位置。通过这种方式,我们能够对整个视野范围内的视觉敏感度进行采样,从而不仅能够确定在眼跳终点处注意力是否得到增强,还能进一步研究该区域周围(包括邻近位置)注意力的分布情况。在对眼跳进行平均处理之前,我们观察到注意力在两个眼跳目标位置上的离散分布(局限于约2.6°以内,即我们相邻两个刺激之间的距离),这一结果与早期观点相矛盾;早期观点认为眼跳的平均化可能反映了对视觉场景的粗略加工17,而我们的发现支持 局部视觉信息加工的增强,而非全局加工的增强。此外,辨别目标的随机呈现使得其位置对参与者而言完全不可预测。因此,本方案在整体上促进了视觉注意力在视野范围内的均匀分布,特别是在执行辨别任务时。我们认为这一事实对于任何与眼跳准备相关的注意力效应及其结论具有重要意义。
然而,由于在自然视觉中通常不会在试图分辨整个视野内刺激的同时进行眼动,因此本实验方案所获得的结果不能无限制地解释日常生活中的眼动行为。此外,眼动任务不可避免地通过眼跳目标提示对注意力的分配产生了偏向。眼跳目标不仅引入了相关的眼动目标,还提供了显著的外部线索,很可能吸引了注意力。因此,中间位置的视觉分辨能力可能因两侧眼跳目标引起的某种掩蔽效应而普遍下降。为了降低眼跳目标对中间位置分辨能力的影响,并评估潜在的掩蔽效应,我们决定在一半的试验中仅短暂呈现眼跳目标(50 ms),而非持续呈现至试验结束。因此,尽管两种提示条件下眼跳目标位置均出现了视觉起始信号,但在短暂提示条件下,眼跳目标总是在分辨目标出现之前消失。虽然大多数结果在两种提示条件下高度一致,因此在最终分析中进行了合并,但我们确实观察到连续提示条件相对于短暂提示条件存在掩蔽效应的迹象。总体而言,无论眼跳方向如何,连续提示条件下的中间位置视觉敏感度均略低于短暂提示条件。鉴于短暂眼跳目标提示似乎能在有效诱发平均眼跳的同时最小化对中间位置的掩蔽,未来采用类似本实验方案的研究应考虑使用短暂的目标提示方式。然而,尽管我们已努力通过短暂提示来减小掩蔽效应,但仍不能排除短暂提示仍可能引入前向掩蔽效应,从而在一定程度上导致中间位置分辨能力较差的可能性。
综上所述,本实验方案能够直接探讨视觉注意与眼动编程之间的耦合关系,并在行为层面上揭示视觉注意与平均眼跳终点之间存在显著的空间分离。我们的研究结果不支持运动前注意理论所提出的视觉注意与眼动编程之间存在强制性耦合的观点。未来的研究应采用包含对额叶眼动区(FEF)和上丘(SC)等脑区同步神经生理记录的实验范式,以进一步阐明视觉注意与眼动编程之间的耦合机制。
披露
作者声明不存在任何竞争利益。
致谢
本研究得到了德国研究基金会向 H.D. 提供的资助(DE336/5-1 和 RTG 2175 "情境中的感知及其神经基础")以及向 M.S. 提供的资助(SZ343/1),并获得了欧盟“玛丽·斯克沃多夫斯卡-居里行动”个人奖学金项目对 M.S. 的支持(704537)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 计算机 | Apple iMac(美国加利福尼亚州库比蒂诺) | ||
| CRT显示屏 | Sony GDM F900(东京,日本) | 24 英寸屏幕,空间分辨率为 1024 x 640 像素 120 Hz 的垂直刷新率 | |
| 眼动仪 | EyeLink 1000 台式安装架(SR Research,Osgoode,Ontario,加拿大) | 以1 kHz的采样频率运行 | |
| 软件 | Matlab(The MathWorks,Natick,MA)/ 工具箱:Psychophysics Toolbox、EyeLink |
参考文献
- Rizzolatti, G., Riggio, L., Dascola, I., Umiltá, C. Reorienting attention across the horizontal and vertical meridians: evidence in favor of a premotor theory of attention. Neuropsychologia. 25 (1), 31-40 (1997).
- Rizzolatti, G., Riggio, L., Sheliga, B. M. Space and selective attention. Attention and performance XV. 15, 231-265 (1994).
- Corbetta, M. Frontoparietal cortical networks for directing attention and the eye to visual locations: Identical, independent, or overlapping neural systems? Proceedings of the National Academy of Sciences. 95, 831-838 (1998).
- Müller, J. R., Philiastides, M. G., Newsome, W. T. Microstimulation of the superior colliculus focuses attention without moving the eyes. Proceedings of the National Academy of Sciences. 102 (3), 524-529 (2005).
- McPeek, R. M., Keller, E. L. Deficits in saccade target selection after inactivation of superior colliculus. Nature nueroscience. 7 (7), 757(2004).
- Moore, T., Armstrong, K. M. Selective gating of visual signals by microstimulation of frontal cortex. Nature. 421, 370(2003).
- Moore, T., Fallah, M. Microstimulation of the frontal eye field and its effects on covert spatial attention. Journal of neurophysiology. 91 (1), 152-162 (2004).
- Kowler, E., Anderson, E., Dosher, B., Blaser, E. The role of attention in the programming of saccades. Vision research. 35 (13), 1897-1916 (1995).
- Deubel, H., Schneider, W. X. Saccade target selection and object recognition: Evidence for a common attentional mechanism. Vision research. 36, 1827-1837 (1996).
- Thompson, K. G., Biscoe, K. L., Sato, T. R. Neuronal basis of covert spatial attention in the frontal eye field. Journal of Neuroscience. 25 (41), 9479-9487 (2005).
- Ignashchenkova, A., Dicke, P. W., Haarmeier, T., Thier, P. Neuron-specific contribution of the superior colliculus to overt and covert shifts of attention. Nature nueroscience. 7 (1), 56(2004).
- Gregoriou, G. G., Gotts, S. J., Desimone, R. Cell-type-specific synchronization of neural activity in FEF with V4 during attention. Neuron. 73 (3), 581-594 (2012).
- Born, S., Mottet, I., Kerzel, D. Presaccadic perceptual facilitation effects depend on saccade execution: Evidence from the stop-signal paradigm. Journal of Vision. 14 (3), 7-7 (2014).
- Belopolsky, A. V., Theeuwes, J. Updating the premotor theory: the allocation of attention is not always accompanied by saccade preparation. Journal of Experimental Psychology: Human Perception and Performance. 38 (4), 902(2012).
- Hunt, A. R., Kingstone, A. Covert and overt voluntary attention: linked or independent? Cognitive Brain Research. 18 (1), 102-105 (2003).
- Smith, D. T., Schenk, T., Rorden, C. Saccade preparation is required for exogenous attention but not endogenous attention or IOR. Journal of Experimental Psychology: Human Perception and Performance. 38 (6), 1438(2012).
- Findlay, J. M. Global visual processing for saccadic eye movements. Vision research. 22, 1033-1045 (1982).
- Coren, S., Hoenig, P. Effect of non-target stimuli upon length of voluntary saccades. Perceptual and motor skills. 34 (2), 499-508 (1972).
- Van der Stigchel, S., Nijboer, T. C. The global effect: what determines where the eyes land? Journal of Eye Movement Research. 4 (2), (2011).
- Vitu, F. About the global effect and the critical role of retinal eccentricity: Implications for eye movements in reading. Journal of Eye Movement Research. 2 (3), (2008).
- Hanning, N., Deubel, H., Szinte, M. Sensitivity measures of visuospatial attention. Journal of Vision. 17 (10), 673-673 (2017).
- Van der Stigchel, S., De Vries, J. P. There is no attentional global effect: Attentional shifts are independent of the saccade endpoint. Journal of vision. 15, 17-17 (2015).
- Wollenberg, L., Deubel, H., Szinte, M. Visual attention is not deployed at the endpoint of averaging saccades. PLoS biology. 16 (6), e2006548(2018).
- Engbert, R., Mergenthaler, K. Microsaccades are triggered by low retinal image slip. Proceedings of the National Academy of Sciences. 103 (18), 7192-7197 (2006).
- Zirnsak, M., Beuth, F., Hamker, F. H. Split of spatial attention as predicted by a systems-level model of visual attention. European Journal of Neuroscience. 33 (11), 2035-2045 (2011).
重印与许可
