本方案展示了使用环状烯烃共聚物注塑成型的分区化微流控芯片培养由人类干细胞分化而来的神经元。这些芯片为预组装设计,相较于传统的聚二甲基硅氧烷(poly(dimethylsiloxane))分区装置更易于使用。文中描述了多种常见的实验范式,包括病毒标记、流体隔离、轴突切断以及免疫染色。
本文内容
摘要
摘要
使用微流控装置对培养的神经元进行区室化已成为神经科学领域的标准方法。本方案展示了如何使用预先组装的环烯烃共聚物(COC)多区室芯片,对人源干细胞分化的神经元进行区室化培养。这些COC芯片的外形尺寸与标准显微镜载玻片相同,同样适用于高分辨率显微成像。在芯片内,人源神经干细胞(NSCs)被分化为谷氨酸能神经元,并维持培养5周,足以使这些神经元发育出突触和树突棘。此外,我们还展示了利用此类多区室芯片进行的多种常见实验操作,包括病毒标记、微环境构建、轴突切断以及免疫细胞化学染色。
引言
人干细胞分化的神经元(hSC-神经元)在生物学研究中的应用日益广泛。这些神经元可来源于人体组织,对转化医学研究具有重要意义,包括创伤性脑损伤以及阿尔茨海默病等神经退行性疾病的机制研究。因此,亟需开发能够改进并促进hSC-神经元研究的工具。
为了研究神经元独特的极性形态,许多研究人员使用多区室微流控装置1,2,3,4,5,6,7,8,9,10,11。这些装置能够对具有独特亚细胞通路的长投射神经元进行测量和操控。多区室微流控装置由两个平行的微流控区室组成,二者之间通过引导轴突生长的微沟槽相连接。将神经元或神经干细胞(NSCs)接种至胞体-树突区室后,数分钟内即可贴附于区室表面底部。分化后的神经元会生长并将其轴突/突起通过微沟槽区域延伸至相邻且独立的轴突区室中。过去,这些装置 exclusively 采用聚二甲基硅氧烷(PDMS)复制模塑技术制备。PDMS 装置存在诸多先前已描述的缺点12,包括持续的疏水性,以及必须在使用前立即组装到玻璃盖玻片上。预组装的注塑芯片克服了这些缺点中的大部分,并已实现商业化销售(参见材料表)12。这些芯片的区室永久性地具备亲水性,整个芯片由光学透明的环烯烃共聚物(COC)注塑成型制成。
本方案展示了如何利用该COC芯片将人神经干细胞(NSCs)分化为兴奋性神经元,并分离及流体隔离其长的神经突起。本实验中,神经元由美国国立卫生研究院(NIH)批准的H9干细胞分化而来。类似的方法也可用于分化人诱导性多能干细胞。
方案
注意:图1A、B 展示了预组装COC芯片的示意图,包括主通道或腔室、孔、微沟槽的位置。这种分室芯片可在各腔室内建立独立的流体微环境,如食用染料的隔离所示(图1C)。预组装多腔室芯片的制备方案见Nagendran等人的文献第1节12。
1. hSC神经元多区室芯片的包被
注意:图2A 展示了包被步骤的总体流程。
- 将多聚-L-鸟氨酸溶解于细胞培养级蒸馏水中,配制成每片芯片 20 µg/mL 的工作液,每片芯片需 600 µL。
- 吸除芯片制备后残留在孔中的 PBS。吸液时,确保移液枪头远离通道开口。
注意:微流控通道在整个操作过程中必须始终保持充满液体状态。仅可吸除孔中的液体,不得从通道/腔室中吸液。 - 向右上孔中加入 150 µL 多聚-L-鸟氨酸工作液。等待 90 秒,或直至液体开始填充右下孔。随后向右下孔中加入 150 µL 培养基,并等待 5 分钟,使液体通过微沟槽。
- 向左上孔中加入 150 µL 培养基。等待 90 秒后,再向左下孔中加入 150 µL 培养基。用封口膜包裹芯片支架,于 4 °C 过夜放置。
注意:也可将芯片及其支架置于 37 °C 下孵育 1 小时。 - 从孔中吸除培养基,确保移液枪头远离通道开口。向右上孔中加入 150 µL 无菌水。等待 90 秒后,再向右下孔中加入 150 µL 无菌水。等待 5 分钟,使液体通过微沟槽。
- 向左上孔中加入 150 µL 无菌水,等待 90 秒后,再向左下孔中加入 150 µL 无菌水。
- 重复步骤 1.5–1.6。
- 将层粘连蛋白在 2 °C 至 8 °C 条件下缓慢解冻,并配制成 10 µg/mL 的工作液。
- 向右上孔中加入 150 µL 层粘连蛋白工作液。等待 90 秒,或直至液体开始填充右下孔。用移液器向右下孔中加入 150 µL 液体。等待 5 分钟,使层粘连蛋白通过微沟槽。
- 向左上孔中加入 150 µL 层粘连蛋白溶液。等待 90 秒后,再向左下孔中加入 150 µL。将芯片置于其支架中,在 37 °C 下孵育 2 小时。
- 用不含 Ca2+ 和 Mg2+ 的 PBS 冲洗芯片。向右上孔中加入 150 µL PBS。等待 90 秒,或直至液体开始填充右下孔。向右下孔中加入 150 µL PBS,并等待 5 分钟,使 PBS 通过微沟槽。
- 向左上孔中加入 150 µL PBS。90 秒后,向左下孔中加入 150 µL PBS。
- 从芯片中吸除 PBS,然后用 NSC 培养基冲洗芯片 (参见 材料表)。向右上孔中加入 150 µL 培养基。90 秒后,或当液体通过右侧通道进入右下孔时,向右下孔中加入 150 µL 培养基。等待 5 分钟,使培养基流经微沟槽。
- 向左上孔中加入 150 µL 培养基,再向左下孔中加入 150 µL 培养基。将芯片置于 37 °C、5% CO2 的培养箱中孵育,以预处理芯片,直至准备接种神经干细胞(NSCs)。
注意:如需要,芯片可预处理过夜。
2. 将NSCs接种至多区室芯片中
注意:本实验方案使用的是商业购买的神经干细胞(NSCs),不同于我们此前发表的研究,后者起始于人胚胎干细胞5在此方案中,神经干细胞直接接种于塑料芯片中,并在其中分化为神经元。细胞可作为神经干细胞(未分化状态)增殖至多2代,并可储存于液氮中的冻存管内2 以供后续使用。本方案使用储存在液氮中的NSC小瓶2 传代1或2次后。 图2B 展示了涂层步骤的概览。
- 根据制造商说明解冻神经干细胞(NSCs)。
注意:本操作适用于H9来源的神经干细胞。其他细胞系需要优化细胞密度。 - 使用血细胞计数板计数细胞浓度,并用NSC培养基调整至每毫升7 × 10⁶个细胞的浓度。
- 从芯片的每个孔中吸除培养基。避免吸除主通道中的培养基。
- 将5 µL细胞悬液加入右上孔,随后将5 µL加入右下孔(共70,000个细胞)。确保将细胞悬液滴加至主通道开口处。使用显微镜检查细胞是否已进入通道。静置5分钟,使细胞贴附在芯片底部。
注意:可使用一个或两个腔室进行细胞接种。 - 向右上孔加入约150 µL NSC培养基,然后向右下孔加入150 µL。左侧操作相同。在适宜的加湿容器中,于5% CO2、37 °C条件下培养。
- 48小时后,吸除各孔中的NSC培养基,更换为神经分化培养基,即在每个上孔和每个下孔中加入150 µL。
- 在适宜的加湿容器中,于5% CO2、37 °C培养箱内培养神经元。
注意:应每隔2–3天更换一次培养基。由于芯片中使用的液体体积较小,即使在加湿的培养箱中,蒸发也可能显著影响细胞活力。建议使用合适的辅助容器以提供额外湿度,用于芯片上细胞的长期培养(参见 材料表)。
3. 芯片内对人源干细胞神经元进行病毒荧光标记
注意:可使用多种病毒在芯片内标记神经元。以下说明描述了G蛋白缺失的狂犬病病毒-mCherry或-eGFP病毒的使用方法。具有潜在感染性的材料必须根据适用的规则和法规进行操作,且可能需要额外的培训以及机构批准。
- 将每张芯片约 400 µL 新鲜的神经分化培养基预热至 37 °C。
- 从轴突室的一个孔中移除 50 µL 培养基至离心管中,然后向该管中加入 100,000 个单位的改造狂犬病毒。
注意:含有病毒的移液枪头和离心管应妥善处理。 - 将轴突室中剩余的神经分化培养基移除并放入离心管中,于 37 °C 保存。
注意:确保微通道内始终保持液体充满状态。 - 将 50 µL 病毒溶液与 150 µL 预热的培养基混合。用移液器将 100 µL 加入轴突室的一个孔中,另 100 µL 加入另一个轴突室的孔中。在 37 °C 培养箱中孵育 2 小时。
注意:轴突室与胞体室之间的体积差异有助于在感染/孵育期间使病毒保留在轴突室中。 - 吸出并妥善处理含病毒的培养基。
警告:切勿移除封闭微流控通道内的液体。 - 轻柔地向一个轴突室孔中加入 75 µL 新鲜培养基,使培养基流经通道进入另一个轴突室孔。
- 从轴突室中移除培养基并妥善处理。
- 重复步骤 3.6 和 3.7。
- 用之前保存的培养基重新填充轴突室。如有需要,额外加入 50 µL 新鲜培养基,然后将芯片放回培养箱。额外添加的新鲜培养基用于补偿液体转移和过程中蒸发造成的损失。
注意:使用这些改造的狂犬病毒后,通常在 48 小时至 8 天内可观察到明显的荧光标记,之后由于病毒毒性,被感染的神经元通常会发生细胞死亡。神经元成像可按照其他标准培养平台(例如玻璃底培养皿)的方法进行,但需特别注意维持足够的湿度以防止蒸发损失。
4. 芯片内的流体隔离、轴突切断和免疫染色
- 按照 Nagendran 等人12所述的方法,使用芯片进行流体隔离、轴突切断和免疫染色。
结果
在芯片中使用分化培养基培养一周(7-10天)后,神经干细胞分化为神经元,神经突起延伸进入轴突区(图3)。在芯片内部,神经元附着并均匀分布在胞体区。相比之下,在PDMS装置中,加入分化培养基仅5天后神经元即开始成簇或聚集,导致细胞健康状况受损,如图3B(第13天放大图像)所示。芯片中的神经元形态健康,轴突成束分布。健康的神经元可在芯片中维持培养4-5周。
为了观察神经元成熟和树突棘发育,于第29天将改良的狂犬病毒递送至轴突区室,通过逆向标记将神经元(包括树突棘)表达mCherry荧光蛋白。感染狂犬病毒4天后,延伸轴突进入轴突区室的神经元表达mCherry。分化第33天的神经元显示出树突棘的形成(图4)。树突棘的可视化表明,在芯片内分化的神经干细胞来源的神经元形成了成熟的突触。
多区室芯片还可与免疫细胞化学结合,用于观察蛋白质的细胞定位。在分化培养基中培养神经元26天后,对兴奋性突触标志物vGlut1进行标记,图5)。这些结果表明,病毒标记的神经元与 vGlut1 共定位图 5E) 和神经元特异性标志物 β-tubulin III(图5F-H).
通过使用 Alexa Fluor 488 肼(一种小分子量荧光染料),还证明了可创建仅作用于轴突的独立微环境(图6)。
轴突损伤研究通常在分隔式装置中进行。本研究利用预组装的 COC 芯片进行了一项原理验证实验,以选择性地损伤分化神经元的轴突(图 7)。实验结果与硅基分隔式装置的结果相当6,13,14。

图1:预组装的环烯烃共聚物(COC)多区室微流控芯片。(A)芯片示意图,标明了上部和下部小室。芯片尺寸为75 mm × 25 mm,与标准显微镜载玻片尺寸相同。(B)放大区域,显示分隔通道的微通道和微沟槽结构。更多细节见Nagendran等人的研究12。(C)本照片展示了使用食用染料在每个区室内创建隔离的微环境。整幅图已从12中转载。请点击此处查看此图的放大版本。
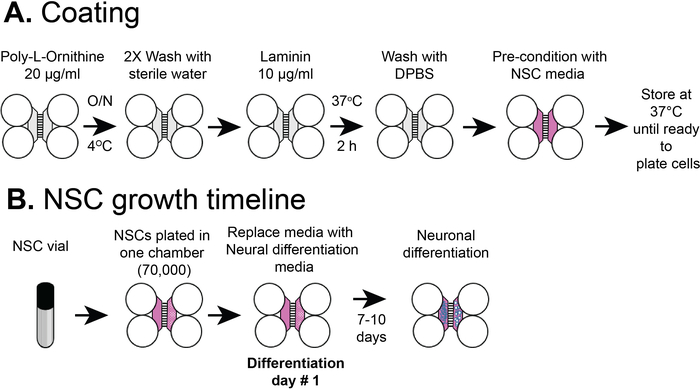
图2:塑料分隔芯片的包被及神经干细胞接种时间线。 (A)塑料多区室芯片先用预包被液处理,随后依次使用多聚-L-鸟氨酸和层粘连蛋白包被,最后用神经干细胞培养基进行预平衡。(B)将神经干细胞以每区室7 × 10⁴个细胞的密度接种至芯片的体细胞区室中。细胞在神经干细胞培养基中培养24小时后,更换为神经分化培养基。分化后的神经元可在分化后7–10天内观察到。请点击此处查看该图的放大版本。

图3:芯片与PDMS装置中hSC-神经元生长的比较。(A)塑料多区室芯片中分化后第13天培养的hSC-神经元的相差图像。(B)图(A)白框内区域的hSC-神经元放大图像(左),以及PDMS装置中相应区域(右)。hSC-神经元在芯片中贴附良好,而在基于PDMS的装置中则形成聚集的神经元簇。结果代表两次独立实验。 请点击此处查看该图的高清版本。
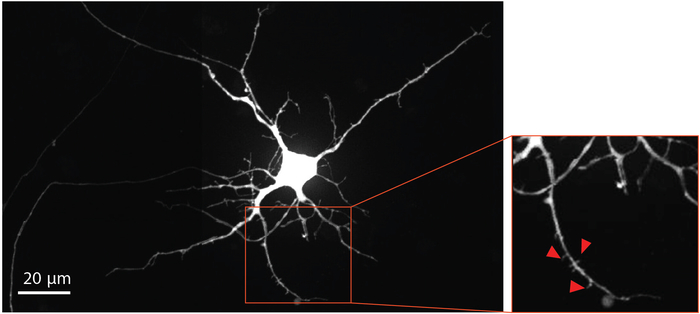
图 4:人源 NSC 分化的神经元显示树突棘形态。 在芯片内培养至第33天分化期的逆向标记 mCherry 神经元。红色框选的放大区域突出显示了树突棘的存在,这为成熟谷氨酸能突触的形成提供了证据。红色箭头指向树突棘。 请点击此处查看该图的放大版本。
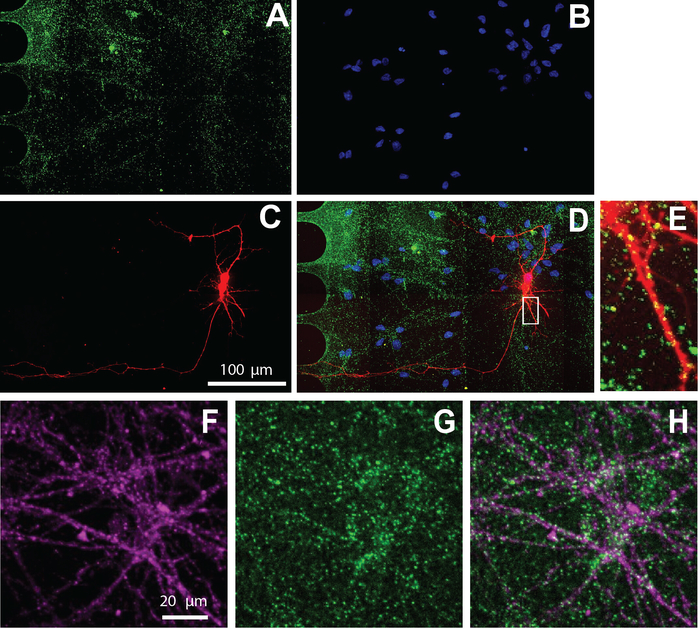
图 5:芯片中培养的人神经干细胞分化神经元表现出兴奋性突触。在分化第26天进行免疫染色。神经元成像在胞体区室中进行。A)vGlut1(绿色)和(B)DAPI(蓝色)免疫标记。(C)使用改造的狂犬病毒逆行标记的mCherry标记神经元(红色)。(D)(A–C)荧光显微图像的合并图。(E)树突棘和vGlut1阳性斑点与mCherry阳性树突共定位,显示自(D)中放大区域。(F)神经元特异性标志物β-tubulin III(品红色)和(G)vGlut1(绿色)的免疫荧光显微图像。(H)β-tubulin III与vGlut1的叠加图。请点击此处查看该图的放大版本。
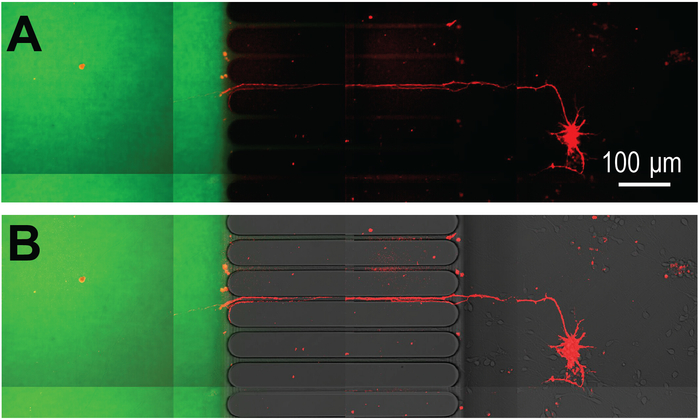
图 6:经病毒转导表达 mCherry 的神经元向预组装 COC 芯片内建立的轴突局部微环境延伸突起。(A)表达 mCherry 标记的神经元通过芯片中的微沟道向独立的轴突区室延伸轴突。使用 Alexa Fluor 488 肼可视化轴突区室的隔离情况。神经元成像分别在分化第 26 天以及感染改造狂犬病毒后第 3 天进行。(B)将(A)中的荧光图像与微分干涉差(DIC)图像合并。注意微沟道的位置。请点击此处查看该图的放大版本。
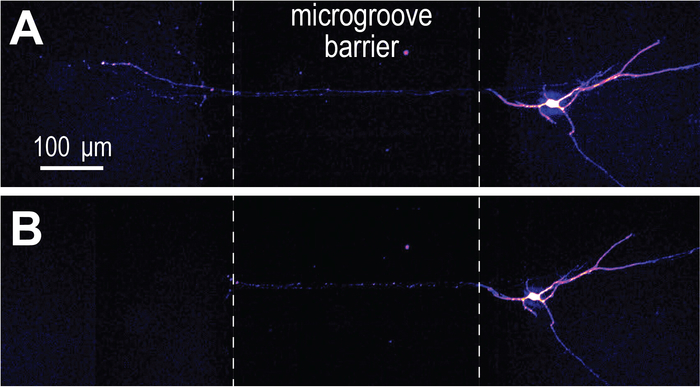
图 7:在 COC 多区室芯片内进行的轴突切断操作。 (A)分化第 33 天的 mCherry 标记神经元在轴突切断前的成像结果。采用“火焰”颜色查找表。 (B)轴突切断后立即成像,显示轴突已被完全切断。 请点击此处查看该图的放大版本。
| 塑料多室芯片 | PDMS多室装置 |
| 分离轴突 | 分离轴突 |
| 建立微环境 | 建立微环境 |
| 轴突切断神经元 | 轴突切断神经元 |
| 光学透明 | 光学透明 |
| 兼容高分辨率成像 | 兼容高分辨率成像 |
| 兼容荧光显微镜 | 兼容荧光显微镜 |
| 完全预组装 | 需将装置组装到基底上 |
| 健康轴突 >21 天 | 健康轴突 >14 天 |
| 亲水性培养表面 | 疏水性 |
| 气体不透过 | 气体可透过 |
| 圆润的微沟道和通道 | 直线型微沟道 |
| 不兼容激光消融 | 当PDMS腔室组装在特殊兼容激光消融的载玻片上时,可用于激光消融 |
| 装置无法改动以移除顶部 | 顶部可拆卸,便于在微沟道内进行染色 |
| 不兼容矿物油基浸油(硅基浸油无影响) | 兼容矿物油基浸油 |
| 对小分子和有机溶剂不透过 | 会吸收小分子和有机溶剂 |
| 芯片无泄漏问题 | 使用多聚-L-鸟氨酸和层粘连蛋白包被会导致装置出现泄漏 |
| 在测试的细胞密度下,分化后的神经元保持均匀分布(>4周) | 在测试的细胞密度下,分化后的神经元在培养3-4天后开始聚集 |
表1:用于培养神经元的多区室COC芯片与硅胶装置的比较
讨论
预组装的多区室COC芯片是一种易于使用的区室化平台,可用于将人神经干细胞(NSCs)长期分化并维持为神经元(>4周)。在本方案中,我们展示了将人神经干细胞分化为谷氨酸能神经元、逆行标记神经元、进行免疫细胞化学染色、观察树突棘形态以及实施轴突切断的操作。这些芯片适用于高分辨率成像,且COC材料无自发荧光12。
COC多区室芯片在功能上等同于基于硅胶的区室化装置,其优缺点如前所述12。表1比较了用于培养人干细胞来源神经元(hSC-神经元)的多区室COC芯片与硅胶装置。COC区室化芯片提供了更佳的亲水表面,有利于干细胞在长期培养过程中的贴附与维持。基于聚二甲基硅氧烷(PDMS)的装置需要组装并固定在玻璃盖玻片上。PDMS装置的疏水特性会导致干细胞聚集5,这不仅在细胞水平成像时带来困难,而且在更换培养基过程中因细胞聚集体移动而更易造成物理损伤。塑料芯片克服了这些挑战。与PDMS不同,COC材料对气体不透过,因此通道内滞留或形成的气泡必须由使用者手动去除。预包被溶液可降低气泡在通道中滞留的可能性,该溶液包含乙醇及其他成分。先前发表的在这些塑料芯片中培养小鼠神经元的实验方案提供了关于向芯片中加样细胞和培养基的更多技术细节12。神经干细胞(NSCs)比小鼠神经元更为脆弱,因此操作时需更加轻柔。此外,在接种前通过轻柔吹打使干细胞充分混匀也至关重要。
利用体外分化的人类干细胞获得的神经元在医学和研究中正变得越来越普遍。这些神经元对于多种中枢神经系统疾病的科研和临床应用具有重要意义,包括神经退行性疾病和创伤性脑损伤。这些神经元在特性上与人类胎儿神经元非常相似15。未来,有望从干细胞生成适当年龄阶段的神经元,以模拟与年龄相关的神经元功能,并将其与这些区室化装置结合使用。这些装置将有助于研究影响轴突健康和功能的疾病,例如自闭症谱系障碍患者神经元中的轴突缺陷,以及损伤后的轴突再生16,17。
披露
S.P. 和 T.N. 声明不存在竞争性经济利益。V.P. 是 Xona Microfluidics, LLC 的员工。J.H. 是 Xona Microfluidics, LLC 的成员。A.M.T. 是微流控室/芯片(美国专利号:US 7419822 B2,欧洲专利号:EPO 2719756 B1)的发明人,同时也是 Xona Microfluidics, LLC 的成员。
致谢
作者感谢Xona Microfluidics, LLC、美国国家心理健康研究所(R42 MH097377)以及国家神经疾病和中风研究所(R41 NS108895,P30 NS045892)提供的支持。本内容仅由作者负责,不代表美国国立卫生研究院的官方观点。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Alexa Fluor 肼 488 | ThermoFisher Scientific | A10436 | |
| Alexa Fluor 二抗 | ThermoFisher Scientific | 1:1000 | |
| 抗β-微管蛋白III | 鸟类 | TUJ | 1:1000 |
| 抗vGAT抗体 | 突触系统 | 131 003 | 1:1000 |
| 抗vGlut1抗体 | NeuroMab | 75-066 | 克隆 N28/9,1:100 |
| 完全神经干细胞培养基: | |||
| REC HU EGF 10 UG BIOSOURCE (TM) | ThermoFisher Scientific | PHG0314 | 20 ng/mL |
| REC HU FGF BASIC 10 UG BIOSOURCE (TM) | ThermoFisher Scientific | PHG0024 | 20 ng/mL |
| GlutaMAX 补充剂(100X) | ThermoFisher Scientific | 35050061 | 2 mM |
| KnockOut DMEM/F-12 | ThermoFisher Scientific | 12660012 | |
| StemPro神经补充剂 | ThermoFisher Scientific | A1050801 | 2% |
| 落射荧光成像系统 | EVOS 荧光成像系统 | AMF4300 | 10倍物镜 |
| 氟化乙烯丙烯膜 | American Durafilm | 50A | 0.5 mil 厚度 |
| Fluoromount G | ThermoFisher Scientific | 00-4958-02 | |
| Gibco 不含钙和镁的DPBS | ThermoFisher Scientific | 14190144 | |
| GIBCO 人 NSC(H9)试剂盒 COMBO 试剂盒 | Gibco | N7800200 | |
| Gibco 层粘连蛋白 | ThermoFisher Scientific | 23017015 | |
| 玻璃巴斯德吸管 | Sigma-Aldrich | CLS7095D5X SIGMA | 5.75 英寸长度 |
| H9来源的人神经干细胞 1E6 细胞/瓶;1 毫升 | ThermoFisher Scientific | 510088 | |
| hibernate-E 培养基 | ThermoFisher Scientific | A1247601 | |
| 培养箱,5% CO₂2 37 °C | |||
| 激光扫描共聚焦成像系统 | Olympus | FV3000RS | 30x 硅油物镜 |
| 改造的狂犬病毒 | 索尔克生物研究所 | G缺失型狂犬病病毒-eGFP | 需要材料转让协议 |
| Mr. Frosty | ThermoFisher Scientific | 5100-0001 | |
| 神经分化培养基 | 每 100 mL。 | ||
| 抗生素-抗真菌素(100x) | ThermoFisher Scientific | 15240112 | 1 mL(100倍) |
| 抗坏血酸 | Sigma Aldrich | A8960 | 200 mM |
| BDNF | ThermoFisher Scientific | PHC7074 | 40 ng/mL |
| Gibco B27 Plus 补充剂(50X) | FisherScientific | A3582801 | 2 mL(50倍) |
| Gibco CultureOne 补充剂 (100X) | FisherScientific | A3320201 | 1 mL(100倍浓缩) |
| Gibco Neurobasal Plus 培养基 | FisherScientific | A3582901 | |
| StemPro Accutase 细胞解离试剂 | ThermoFisher Scientific | A1110501 | |
| Taylor Wharton 液氮杜瓦瓶 | FisherScientific | 20HCB11M | |
| Triton X-100 | ThermoFisher Scientific | 28314 | |
| XC 预包被 | Xona Microfluidics, LLC | XC预包被 | 随 XonaChips 提供 |
| XonaChip | Xona Microfluidics, LLC | XC450 | 450 µ微米长度的微沟屏障 |
| 加湿托盘 | Xona Microfluidics, LLC | 加湿器托盘 |
参考文献
- Taylor, A. M., Wu, J., Tai, H. C., Schuman, E. M. Axonal translation of beta-catenin regulates synaptic vesicle dynamics. The Journal of Neuroscience. 33 (13), 5584-5589 (2013).
- Virlogeux, A., et al. Reconstituting Corticostriatal Network on-a-Chip Reveals the Contribution of the Presynaptic Compartment to Huntington’s Disease. Cell Reports. 22 (1), 110-122 (2018).
- Neto, E., et al. Compartmentalized Microfluidic Platforms: The Unrivaled Breakthrough of In Vitro Tools for Neurobiological Research. The Journal of Neuroscience. 36 (46), 11573-11584 (2016).
- Pinto, M. J., et al. The proteasome controls presynaptic differentiation through modulation of an on-site pool of polyubiquitinated conjugates. The Journal of Cell Biology. 212 (7), 789-801 (2016).
- Bigler, R. L., Kamande, J. W., Dumitru, R., Niedringhaus, M., Taylor, A. M. Messenger RNAs localized to distal projections of human stem cell derived neurons. Scientific Reports. 7 (1), 611(2017).
- Nagendran, T., et al. Distal axotomy enhances retrograde presynaptic excitability onto injured pyramidal neurons via trans-synaptic signaling. Nature Communications. 8 (1), 625(2017).
- Van Laar, V. S., et al. Evidence for compartmentalized axonal mitochondrial biogenesis: Mitochondrial DNA replication increases in distal axons as an early response to Parkinson's disease-relevant stress. The Journal of Neuroscience. , (2018).
- del Río, J. A., Ferrer, I., Gavín, R. Role of cellular prion protein in interneuronal amyloid transmission. Progress in Neurobiology. 165-167, 87-102 (2018).
- Jia, L., et al. MiR-34a Regulates Axonal Growth of Dorsal Root Ganglia Neurons by Targeting FOXP2 and VAT1 in Postnatal and Adult Mouse. Molecular Neurobiology. , (2018).
- Taylor, A. M., Dieterich, D. C., Ito, H. T., Kim, S. A., Schuman, E. M. Microfluidic local perfusion chambers for the visualization and manipulation of synapses. Neuron. 66 (1), 57-68 (2010).
- Menon, S., et al. The E3 Ubiquitin Ligase TRIM9 Is a Filopodia Off Switch Required for Netrin-Dependent Axon Guidance. Developmental cell. 35 (6), 698-712 (2015).
- Nagendran, T., Poole, V., Harris, J., Taylor, A. M. Use of Pre-Assembled Plastic Microfluidic Chips for Compartmentalizing Primary Murine Neurons. Journal of visualized experiments : JoVE. (141), (2018).
- Taylor, A. M., et al. A microfluidic culture platform for CNS axonal injury, regeneration and transport. Nature Methods. 2 (8), 599-605 (2005).
- Taylor, A. M., et al. Axonal mRNA in uninjured and regenerating cortical mammalian axons. The Journal of Neuroscience. 29 (15), 4697-4707 (2009).
- Oh, J. H., Jung, C. R., Lee, M. O., Kim, J., Son, M. Y. Comparative analysis of human embryonic stem cellderived neural stem cells as an in vitro human model. International Journal of Molecular Medicine. 41 (2), 783-790 (2018).
- Lazar, M., Miles, L. M., Babb, J. S., Donaldson, J. B. Axonal deficits in young adults with High Functioning Autism and their impact on processing speed. Neuroimage Clinical. 4, 417-425 (2014).
- DePaul, M. A., Lin, C. Y., Silver, J., Lee, Y. S. Combinatory repair strategy to promote axon regeneration and functional recovery after chronic spinal cord injury. Scientific Reports. 7 (1), 9018(2017).
重印与许可
