三维单分子定位显微技术被用于研究活体细菌细胞中荧光标记蛋白的空间位置和运动轨迹。本文所述的实验与数据分析方案基于整合的单分子轨迹,确定胞质蛋白的主要扩散行为。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
单分子定位显微镜能够在生理相关环境中,以数十纳米的空间分辨率和毫秒级的时间分辨率探测活细胞中单个分子的位置与运动。这些特性使单分子定位显微镜非常适合研究分子水平的生物学功能。本文展示了一套整合的实验方案,用于获取、处理与分析单分子追踪数据,以提取目标蛋白可能表现出的不同扩散状态。该信息可用于量化活细胞中分子复合物的形成。我们详细描述了一种基于相机的三维单分子定位实验方法,以及后续生成单个分子运动轨迹的数据处理步骤。随后,利用数值分析框架对这些轨迹进行分析,以提取荧光标记分子的主要扩散状态及其相对丰度。该分析框架基于在任意细胞几何形状空间限制下的细胞内布朗扩散轨迹的随机模拟。根据模拟生成的轨迹,以与实验图像相同的方式生成并分析原始单分子图像。通过这种方式,将实验中难以校准的精度与准确度限制显式地纳入分析流程中。通过使用模拟分布的线性组合对实验值的分布进行拟合,确定主要扩散状态的扩散系数及其相对群体比例。我们通过解析一种蛋白在细菌病原体细胞质中形成同源和异源寡聚复合物时表现出的不同扩散状态,展示了本方案的有效性。
引言
研究生物分子的扩散行为有助于揭示其生物学功能。基于荧光显微镜的技术已成为在细胞原生环境中观察生物分子的有力工具。光漂白后荧光恢复(FRAP)和荧光相关光谱(FCS)1可提供系综平均的扩散行为信息。相比之下,单分子定位显微镜能够以高空间和时间分辨率观测单个荧光标记的分子2,3,4。观测单个分子具有优势,因为目标蛋白可能处于不同的扩散状态。例如,当大肠杆菌(Escherichia coli)中的转录调节因子CueR在细胞质中自由扩散,或结合到DNA序列上并在测量时间尺度上被固定时,会呈现出两种易于区分的扩散状态5。单分子追踪技术可直接观测这些不同状态,且无需复杂的分析即可分辨它们。然而,当不同扩散状态之间的扩散速率较为接近时,分辨多个扩散状态及其群体比例将变得更加困难。例如,由于扩散系数对分子尺寸的依赖性,蛋白质的不同寡聚化状态会表现为不同的扩散状态6,7,8,9,10。此类情况需要在数据采集、处理与分析方面采用整合性的方法。
影响细胞质分子扩散速率的一个关键因素是细胞边界对扩散的限制作用。细菌细胞边界对分子运动的限制会导致测得的细胞质分子扩散速率比在无限制空间中发生相同运动时显得更慢。对于扩散非常缓慢的分子,由于与边界的碰撞极少,细胞限制效应可忽略不计。在这种情况下,可能通过使用基于布朗运动(随机扩散)方程的分析模型拟合分子位移分布 r 或表观扩散系数 D*,从而准确解析出扩散状态11,12,13。然而,对于快速扩散的细胞质分子,由于扩散分子会频繁碰撞细胞边界,实验测得的分布不再符合无限制布朗运动所得到的分布。因此,必须考虑限制效应,才能准确确定荧光标记分子的无限制扩散系数。近年来已发展出多种方法,用于在分析或半分析层面上5,14,15,16,或通过布朗扩散的蒙特卡洛数值模拟6,10,16,17,18,19来校正限制效应。
本文提供了一种整合的实验方案,用于采集和分析单分子定位显微镜数据,特别侧重于单分子追踪。本方案的最终目标是解析在此情况下呈杆状的细菌细胞内荧光标记的胞质蛋白的扩散状态。我们的工作基于先前的一项单分子追踪方案,在该方案中,通过扩散分析证明DNA聚合酶PolI存在DNA结合态与非结合态20。本文中,我们将单分子追踪分析扩展至三维测量,并开展更贴近实际的计算模拟,以同时解析并量化细胞内共存的多种扩散状态。数据采集使用自行搭建的三维超分辨率荧光显微镜完成,该系统通过双螺旋点扩散函数(DHPSF)成像实现对荧光发射体三维位置的测定21,22。原始单分子图像通过自主编写的软件处理,提取出单分子的三维定位信息,并进一步整合为单分子轨迹。数千条轨迹被合并以生成表观扩散系数的分布图。最后一步,将实验获得的分布与通过蒙特卡洛模拟在受限体积内布朗运动所生成的数值分布进行拟合。我们将该方案应用于解析活体Yersinia enterocolitica中III型分泌系统蛋白YscQ的扩散状态。由于本方案具有模块化特性,因此可广泛适用于任意细胞几何形态下的各类单分子或单颗粒追踪实验。
访问受限。请登录或开始试用以查看此内容。
方案
1. 双螺旋点扩散函数校准
注意:本节及后续章节中描述的图像均使用自行搭建的倒置荧光显微镜获取,具体装置详见Rocha等人的研究23。该方法同样适用于其他专为单分子定位与示踪显微技术设计的显微镜系统2,3,4。本文所述图像采集与数据处理所用全部软件均可获取(https://github.com/GahlmannLab2014/Single-Molecule-Tracking-Analysis.git)。
- 制备琼脂糖垫以将样品固定在玻璃盖玻片上,用于显微镜观察。
- 向5 mL M2G缓冲液(4.9 mM Na2HPO4,3.1 mM KH2PO4,7.5 mM NH4Cl, 0.5 mM MgSO₄4, 10 µM FeSO4,0.5 mM CaCl2 以及0.2%葡萄糖)。微波加热数秒,直至所有琼脂糖溶解。切勿使溶液沸腾。
- 让琼脂糖溶液冷却几分钟(2-3 分钟)。
- 移液器 600 µL 将琼脂糖溶液滴加到一块盖玻片(22 mm × 22 mm)上,轻轻将另一块盖玻片覆盖在琼脂糖上,从而在两块盖玻片之间形成一层薄的(约0.5 mm)琼脂糖凝胶垫。
- 让琼脂糖垫静置约20分钟以凝固。
- 轻轻分开玻璃盖玻片,琼脂糖垫将附着在其中一片上。
- 使用剃须刀片将琼脂糖垫切成四个大小相等的方形区域。每个方形区域可用于一个样品。
- 移液器 1.5 µL 将荧光微球溶液滴加到一个琼脂糖垫上。微球溶液是将原液用M2G稀释1/100000制备而成(参见 材料表).
- 将琼脂糖垫翻转并置于已用臭氧清洗机清洁30 min的玻璃盖玻片上。选择该清洗时间是为了去除附着在盖玻片上的任何荧光分子。
- 将样品盖玻片安装到倒置荧光显微镜的样品托上,并使用胶带或弹簧加载的样品夹固定。
- 在显微镜物镜上滴加一滴镜油。
- 将样品台放置在显微镜上并固定。
- 启动图形用户界面(GUI)以控制显微镜的相机、样品台和激发激光器。此处使用基于 MATLAB 编写的自定义软件进行仪器控制补充图1).
- 启动相机软件 HCImage Live。在 捕获 标签下的选项卡 相机控制 切片,将曝光时间设为 0.03 s。单击 活体 开始摄像头的实时传输。
- 单击以打开激光器 打开 514 nm 激光器 在图形用户界面中,激发载样垫上的荧光微球,并以实时流模式通过相机观察荧光发射(即数据不保存至磁盘)。
- 通过点击图形用户界面(GUI)中“微定位载物台”部分的“XY-Pos”箭头,调整显微镜载物台的X和Y位置,使至少一个荧光微珠位于视场中心(FOV)。可通过点击箭头下方的下拉框来更改步长大小。
- 通过单击调整显微镜载物台的Z轴位置 Z轴位置 箭头位于下方 纳米定位平台 图形用户界面的该部分。将荧光微球的双螺旋点扩散函数(DHPSF)的方向设置为垂直方向。此垂直方向定义为Z校准的起始点。可通过点击箭头下方的下拉框来更改步长。
- 在HCImage Live中,于 捕获 | 触发模式、速度与配准,将触发模式从 内部 到 外部电平触发这将允许 MATLAB 图形用户界面控制相机。
- 下 序列 | 扫描设置,更改帧计数的数量为 1200. 单击标有“保存位置”的按钮以选择保存的目标文件夹 …最后点击 开始帧计数的数量设置为 1200 以便对每个Z轴位置的120个步骤各采集10帧图像。
- 在起始Z位置上下各30步(每步50 nm)范围内扫描,每个步骤使用0.03 s曝光时间采集10帧图像。点击以启动自动程序 GO 在……之下 Z轴校准 图形用户界面的一个部分。
注意:此处也可调整校准参数,包括步长、步数、相机曝光时间以及每步的帧数。约105 使用0.03 s的曝光时间,可在单帧图像中从荧光微球获取光子,实现约1 nm的x,y,z定位精度。 - 单击以关闭激光照明 关闭515 nm激光器 在图形用户界面中。在HCImage Live中,于 捕获 | 触发模式、速度与配准,将触发模式改回 内部. 在……之下 序列 | 扫描设置 将帧数更改为200。通过点击标有“保存位置”的按钮选择保存目标文件夹 …. 点击 开始 以0.03 s的曝光时间采集200帧暗场图像。
注意:即使没有光线照射到探测器上,每个像素也会输出一个正值(称作暗偏移值),且不同像素间的暗偏移值可能略有差异。暗偏移值可能随时间发生变化。因此,每次校准都需要采集暗场图像。 - 使用 Easy-DHPSF 软件通过双高斯模型拟合 DHPSF24 以获得 X 和 Y 珠的位置,以及角度与Z轴的校准曲线。
- 在 MATLAB 中启动 Easy-DHPSF 软件。在 设置,设定 通道 到 G 并设置 拟合方法 到 使用DG模型的MLE. G 指的是绿色通道相机,因为用于数据采集的荧光蛋白会发出绿色波长的荧光。 使用DG模型的MLE 指采用双高斯模型的最大似然估计。
注意:像素大小和转换增益取决于具体的光学装置,可能需要进行调整。 - 在……之下 校准 DHPSF 部分,点击 运行. 点击 好的 在随后弹出的窗口中保留默认设置。
- 选择在步骤1.13-1.14中保存的图像堆栈。接着,选择在步骤1.15中保存的具有暗背景的图像堆栈。最后,选择在步骤1.14期间自动保存的.txt文件。该文件包含扫描过程中载物台的Z轴位置信息。
- 在下一个弹出窗口中,如果视野未使用整个相机芯片,则输入芯片上的起始x0和y0位置;否则,输入x0 = 1和y0 = 1。此信息可在HCImage Live中找到 分箱与子阵列 部分。
- 在下一个窗口中,调整并移动荧光微珠图像上出现的方框,使其大小约为 100 x 100 像素,并将方框中心对准单个荧光 DHPSF 信号。然后双击以继续。
注意:所选的 DHPSF 应与其他 DHPSF 信号分离,且理想情况下应为最亮的微珠。 - 点击DHPSF信号中心,即两个叶状结构之间,然后按下 输入. 下一个窗口将显示所选DHPSF的放大视图。更准确地说,通过单击来选择DHPSF中心的位置。
注意:程序随后将拟合 DHPSF,并显示原始图像及拟合得到的重构图像。程序还将输出 Z 校准对应的模板图像,这些图像是不同 Z 位置处 DHPSF 截面的图像。这些模板图像将在后续用于实验数据的拟合。程序会输出每一帧中估计的 X、Y 和 Z 位置。在一个对准良好的光学系统中,随着 Z 位置的变化,X 和 Y 应几乎不变(偏差约 ~30 nm)。如果输出的变化超过 30 nm,则位于成像系统傅里叶平面的相位掩模(图1),应重新调整并对步骤1.9-1.16重复操作。 - 通过单击保存 Easy-DHPSF GUI 保存 GUI 左上角的图标。之后可通过点击该图标加载 加载 图形用户界面中的图标。
注意:每次实验当天都应进行Z轴校准程序,以补偿因温度波动或机械振动可能导致的显微镜对准变化。
- 在 MATLAB 中启动 Easy-DHPSF 软件。在 设置,设定 通道 到 G 并设置 拟合方法 到 使用DG模型的MLE. G 指的是绿色通道相机,因为用于数据采集的荧光蛋白会发出绿色波长的荧光。 使用DG模型的MLE 指采用双高斯模型的最大似然估计。
2. 细菌培养物的制备
- 准备支持细菌细胞生长的培养基。对于Y. enterocolitica,使用含有萘啶酸(35 µg/mL)和2,6-二氨基庚二酸(80 µg/mL)的5 mL BHI(脑心浸液)肉汤。此处使用的Y. enterocolitica菌株中,蛋白YscQ与荧光蛋白eYFP标记融合23。
- 从冷冻保存菌种或平板培养物中接种培养基。
- 在28 °C条件下振荡培养过夜。
- 取少量饱和过夜培养物(约250 µL),用新鲜培养基稀释至5 mL。
- 在28 °C条件下振荡培养60–90分钟。
- 诱导荧光融合蛋白的表达。对于Y. enterocolitica,将细胞置于37 °C水浴振荡器中进行热激,以诱导yop调控子的表达。
- 继续在37 °C条件下振荡孵育细胞3小时。
- 取1 mL培养物在室温下以5,000 x g离心3分钟,弃去上清液。
- 用1 mL M2G培养基将沉淀洗涤3次。
- 将沉淀的细菌重新悬浮于约250 µL的M2G培养基中。
- 加入荧光微珠作为定位标记物。荧光微珠溶液应适当稀释,使在显微镜下观察时每个视野(FOV)仅含1–2个微珠。
- 轻轻吹打或涡旋悬浮液,以分散聚集的细胞。
- 取1.5 µL悬浮液滴加到由M2G制备的1.5–2%琼脂糖垫上。
- 将琼脂糖垫翻转并置于经臭氧清洁的显微镜盖玻片上。盖玻片应置于臭氧清洁仪中处理30分钟,以降低其自身荧光背景。
3. 数据采集
- 将样品盖玻片安装到倒置荧光显微镜的样品 holder 上,并使用胶带或弹簧加载的样品夹固定。
- 在显微镜物镜上滴加一滴浸油,然后将样品 holder 放置到显微镜上并固定到位。
- 启动图形用户界面(GUI)以控制显微镜的相机、样品载物台和激发激光器。此处使用基于 MATLAB 自主编写的软件进行仪器控制。
- 启动相机软件 HCImage Live。在 Camera Control 部分的 Capture 选项卡中,将曝光时间设置为 0.025 s。点击 Live 以开始相机的实时成像。
- 通过点击 GUI 中 Micro-Positioning Stage 部分的 XY-Pos 箭头,调节显微镜载物台的 X 和 Y 位置,扫描样品以找到细菌细胞密度适中的视野(FOV)。
注意:为最大化数据通量,细胞密度应尽可能高,但避免细胞重叠或接触。视野中还应至少包含一个荧光微球,用作定位标记物,最好将其置于视野的角落。 - 通过点击 GUI 中 Nano-Positioning Stage 部分的 Z-Pos 箭头,调节显微镜载物台的 Z 位置,使荧光微球的 DHPSF 叶瓣呈垂直状态。
- 在 Sequence | Scan Settings 中,将帧数更改为 20,000。点击标有 … 的按钮选择保存目标文件夹。最后点击 Start,以 0.025 s 的短曝光时间采集最多 20,000 帧图像。eYFP 的光致闪烁通过 514 nm 高强度激发光启动19,25。
注意:此处焦平面处的激光强度约为 350 W/cm2,用于初始漂白及后续单个 EYFP 分子的成像。成像过程中未使用紫外波长对 eYFP 分子进行光活化。每个细菌细胞中最多应仅有一个单分子信号。若初始单分子信号密度过高,应继续照射直至发生足够的光漂白后再开始数据采集。 - 在 GUI 中点击 Close 515 nm laser 关闭激光照明。使用相同的曝光时间采集 200 帧暗场图像。
- 在 GUI 中勾选 Thorlabs LED 旁边的复选框,并点击 Toggle Mirror Up。此操作将光路从荧光通道切换至相差通道。
- 启动数据采集软件 IC Capture 2.4,该软件控制相差通道中的相机。按下 Start/Stop Live Display 按钮以查看相机的实时图像。点击 Capture | Save Image 采集当前视野中细胞的相差图像。
- 对其他视野重复步骤 3.5–3.10。此处采集了来自十个不同视野中约 500 个细菌细胞的数据,以增加可用于分析的单分子轨迹数量。
警告:长时间固定在琼脂糖垫上的细胞可能表现出与新鲜制备样品不同的行为。此外,琼脂糖垫可能随时间失去完整性,从而对数据质量产生不利影响。通常,每个样品载玻片最多使用 3 个视野(在显微镜上约 30 分钟)。
4. 数据处理
注意:在 MATLAB 中使用 Easy-DHPSF 软件的改进版本24对相机原始帧进行分析,以提取单分子定位信息。Easy-DHPSF 特别用于拟合双螺旋点扩散函数(DHPSF)在单分子成像中的定位。已对该软件进行自定义修改,以实现基于最大似然估计(MLE)的拟合算法,该算法可考虑现代 sCMOS 相机的像素依赖性噪声特性26。此外,还修改了软件以支持 HCImage Live 程序输出的图像文件类型(.dcimg)。有关该软件及各个步骤的更详细说明,请参见 Lew 等人24的研究。
- 在 MATLAB 中启动 Easy-DHPSF 图形用户界面(补充图 2)。加载步骤 1.16.8 中保存的文件。
- 确定步骤 1.16.7 输出的 7 个模板各自的阈值
- 在 校准单分子识别 部分,点击 运行。在接下来出现的两个弹窗中点击 确定,以保留默认设置。
- 当系统提示时,打开包含第一个视场(FOV)数据的图像堆栈。
- 选择一小段帧范围用于模板匹配。通常使用第 1001 至 2000 帧,以避免前几百帧中信号密集重叠的情况。在接下来的弹窗中点击 确定 以保留默认设置。在下一个窗口中提示输入序列日志文件时,点击 取消。
- 打开步骤 3.8 中保存的具有暗背景的图像堆栈。在接下来的弹窗中点击“确定”,以将背景估计参数保持默认设置。默认设置为使用中值滤波器27,覆盖当前帧前后共 100 个连续相机帧来估计背景。
- 在下一个窗口中,调整叠加在图像上的方框大小,使其覆盖整个视场,然后双击继续。
- 通过在图像上点击多个点创建多边形来定义感兴趣区域。感兴趣区域应尽可能覆盖整个视场,同时确保图像中任何荧光微珠(非常明亮的物体)不位于多边形内部,然后双击继续。
注:软件将尝试将模板与图像进行匹配,并显示一个标出可能匹配位置的图像。 - 当软件停止运行后,会将找到的模板匹配结果保存为多张图像,并在预定义文件夹中显示相应的阈值。较高的阈值表示更佳的匹配效果。针对每个模板编号,检查示例匹配结果,并确定能够显示 DHPSF 图像的最低阈值。在 Easy-DHPSF 图形用户界面的 校准单分子识别 部分输入这 7 个模板各自的阈值。
注:程序会尝试自动选择并输入阈值,但这些自动选择通常不可靠,需手动检查。阈值的选择应确保极少遗漏真实的单分子信号,同时使拟合过程中假阳性候选信号的数量在计算上可管理。 - 再次点击左上角的 保存 图标,保存 Easy-DHPSF 图形用户界面设置。
- 拟合视场中的荧光微珠,用作定位标记(fiducial marker)
- 在 Easy-DHPSF 图形用户界面的 追踪定位标记 部分,点击 运行。在接下来的两个弹窗中点击 确定,以保留默认设置。
- 拖动叠加在图像上的方框,将其居中对准荧光微珠产生的 DHPSF 信号,然后双击。
- 在 DHPSF 信号中心、两个瓣状结构的中点处点击,然后按回车键。在下一个窗口提示输入序列日志文件时,点击 取消。
注:软件将对所有相机帧中的 DHPSF 进行拟合,并显示原始图像和重建图像。当软件完成处理后,将输出图表,展示荧光微珠在整个图像采集期间的 X、Y 和 Z 位置。 - 勾选 使用定位标记 旁边的复选框,并再次点击左上角的保存图标,保存 Easy-DHPSF 图形用户界面设置。
- 使用步骤 4.2 中获得的模板阈值,在所有相机帧中查找并拟合所有局域化信号。
- 在 Easy-DHPSF 图形用户界面的 局域化 DHPSF 单分子 部分,点击 运行。在接下来的弹窗中点击 确定,以保留默认设置。在下一个窗口提示输入序列日志文件时,点击 取消。
注:如果匹配质量高于用户定义的阈值,软件将使用双高斯模型查找并拟合 DHPSF。它将显示原始图像(模板匹配位置用圆圈标出)以及重建的 DHPSF 拟合图像。 - 再次点击左上角的 保存 图标,保存 Easy-DHPSF 图形用户界面设置。
- 在 Easy-DHPSF 图形用户界面的 局域化 DHPSF 单分子 部分,点击 运行。在接下来的弹窗中点击 确定,以保留默认设置。在下一个窗口提示输入序列日志文件时,点击 取消。
- 查看单分子局域化结果,并过滤掉不需要或不可靠的局域化信号
- 在 输出 DHPSF 单分子局域化 部分,点击 过滤输出。
- 在接下来的三个窗口中点击 确定,以对定位标记的 X、Y 和 Z 位置随时间变化进行插值。在大多数情况下,默认选项已足够。如果黑色插值线未能合理反映红色位置线的变化趋势,可在弹窗中调整插值参数。
注:插值线用于校正单分子局域化中的载物台漂移。 - 当系统提示时,打开正在分析的视场对应的相差图像。在接下来的两个弹窗中点击 确定,以保留默认设置。
- 在接下来的两个弹窗中,调整过滤参数值,以设定更严格或更宽松的单分子局域化筛选条件,然后点击 确定。
- 在出现的窗口中,拖动或调整叠加在图像上的方框,以查看所需的感兴趣区域,然后双击继续。
- 将显示单分子局域化的三维重建图像。使用图像工具对重建结果进行操作(旋转、缩放等)。点击 继续,将弹出另一个对话框,询问“是否希望使用不同的参数集重新绘图?”。如果结果满意,点击 否;如果结果不满意,点击 是。
注:结果不理想的原因通常包括相差图像未正确与局域化数据叠加,或初始模板阈值过低导致大量假阳性局域化信号。若选择 是,软件将返回步骤 4.5.4,以便重新定义参数值。若选择 否,结果将被保存。
5. 数据后处理
- 使用MATLAB中自定义编写的软件,裁剪相差图像,仅保留曾在荧光显微镜下成像的细胞所在区域。此步骤是必要的,因为相差图像所覆盖的区域远大于荧光图像。裁剪图像可简化后续步骤。
- 使用 OUFTI 处理相差图像以分割单个细胞28 软件补充图3)
- 在 MATLAB 中初始化 OUFTI。通过点击加载上一步骤中裁剪后的相差图像 加载阶段.
- 点击 文件 选择并命名输出文件的保存位置。
- 选择 独立帧 在……之下 检测与分析 标题
- 点击 加载参数 加载用于细胞检测的参数。参数示例包括可接受的细胞面积、细胞宽度以及细胞分割阈值。
注意:所有这些参数都应根据所使用的特定细胞大小和图像质量进行调整,以最大限度地提高性能。重要的是, 算法 参数应设置为 亚像素 以便精确测量细胞轮廓。 - 点击 此帧 开始细胞分割。处理完成后,细胞轮廓将显示在相衬图像上。
- 使用下方的控件 手动 切片、分割细胞、添加细胞或优化细胞轮廓,以获取在自动分割过程中未能准确分割的细胞轮廓。
- 单击以输出细胞轮廓 保存分析.
- 使用自行编写的 MATLAB 软件,将上一步骤中获得的轮廓与单分子定位结果进行精确叠加。以下子步骤详细说明该软件的操作流程。
- 在弹出窗口中,通过大致估算并点击单分子定位数据与上一步生成的细胞轮廓中相同五个细胞的细胞极位置,手动选择5组控制点对。细胞极的位置可通过在脑海中为属于同一个细胞的单分子定位点绘制凸包,并选取曲率最高的点来大致估计补充图4).
- 使用以下方法生成二维仿射变换函数 cp2tform 在 MATLAB 中使用该函数,生成细胞轮廓与单分子定位的粗略叠加图像。
- 删除包含少于10个定位点的细胞,并移除部分位于视野之外的细胞。在弹出窗口中,通过点击目标细胞轮廓内部手动删除其他不需要的细胞补充图5).
- 利用所有剩余细胞轮廓及其内部的单分子定位点的质心,构建更大一组的控制点对,重新计算二维变换函数,并利用该函数生成细胞轮廓与单分子定位点的最终叠加图像。
- 将位于细胞轮廓边界内的定位点分配给该细胞。丢弃任何不位于任何细胞轮廓边界内的定位点图2a, 补充图6).
6. 单分子示踪
注意:以下部分使用 MATLAB 中编写的自定义软件完成。本节描述该软件执行的步骤。
- 对于分配至同一细胞且位于后续相机帧中的定位点,计算它们之间的欧几里得距离。如果定位点之间的距离小于 2.5 µm 的阈值,则将这些定位点链接,归入同一条单分子轨迹。
注意:必须仅考虑单个细胞内的定位点,以避免相邻细胞中偶然满足空间和时间阈值条件的定位点被错误链接。选择 2.5 µm 作为阈值,是因为一个极快的分子(扩散系数为 30 µm2/s)在曝光时间(0.025 s)内最多可移动的距离再增加 20% 的缓冲范围。 - 舍弃少于 4 个定位点的轨迹。若在一个细胞中同时存在两个或更多定位点(即同时存在两个或多个荧光发射体),则舍弃相应的轨迹。将轨迹长度最小值设为 4 个定位点,可对多个位移距离进行平均,从而更准确地估算扩散系数。
- 通过以下公式计算给定轨迹的均方位移(MSD):
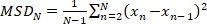 (1)
其中 N 为轨迹中定位点的总数,xn 为分子在时间点 n 的位置。 - 通过以下公式计算表观扩散系数 D*:
 (2)
其中 m = 2 或 3 表示测量的维度,Δt 为相机的曝光时间。
注意:典型的实验总共会产生约 5,000–100,000 条轨迹,从而得到包含相应计数数量的表观扩散系数分布。
7. 限制空间内布朗运动的蒙特卡罗模拟
注意:通过在圆柱形体积内进行布朗运动的蒙特卡洛模拟,构建表观扩散系数分布的模拟文库,输入参数为64个在0.05–20 µm2/s范围内的数值(软件可应要求向作者索取)。选择该范围是为了覆盖先前估计的细菌中荧光(融合)蛋白的扩散系数范围。使用64个扩散系数以充分采样该范围。 本节使用MATLAB编写的自定义软件完成,并描述了该软件自动执行的步骤。此处使用的杆状Y. enterocolitica细胞近似为长度l = 5 µm、直径d = 0.8 µm的圆柱形体积。
- 在圆柱体积内的随机位置启动单个轨迹,并使用 100 ns 的时间间隔模拟其随机(即布朗)扩散步长(时间间隔应远短于相机曝光时间,以便在相机帧期间对位置进行充分采样)。根据输入的 D 值,通过重排公式 2 从相应的高斯分布函数中采样每个位移步长,并将其添加到前一个位置:
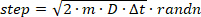 (3)
其中 MATLAB 中的 randn 函数从正态分布中采样一个随机数。如果某一步导致分子位移至圆柱体积之外,则以随机角度将该分子反射回圆柱内部。 - 对于每个时间间隔,生成一个与模拟发射体瞬时 x,y,z 位置相对应的 DHPSF 图像。
- 为匹配实验条件,模拟每定位事件含 1,000 个光子的图像,激光背景为每像素 13 个光子,并加入泊松噪声。此外,添加约每像素 50 个光子的暗偏移和高斯读出噪声(σ ~1.5 个光子),与实验中相机校准测量结果一致。最后,将图像乘以实验测得的 sCMOS 相机像素依赖增益,以获得以探测器计数为单位的图像。
注意:经过上述处理后,最终图像的信噪比约为 2。 - 通过累加在实验数据采集所用曝光时间内模拟的 50 张 DHPSF 图像,生成反映分子位置变化的运动模糊图像。为降低计算开销,仅选择 50 个周期性采样的位置来生成图像(而非在 0.025 秒曝光时间内以 100 ns 采样间隔采样的全部 250,000 个位置)。
注意:模拟轨迹的长度(帧数)应与实验轨迹的平均长度相匹配。本例中,每条轨迹的帧数为 6。
- 为匹配实验条件,模拟每定位事件含 1,000 个光子的图像,激光背景为每像素 13 个光子,并加入泊松噪声。此外,添加约每像素 50 个光子的暗偏移和高斯读出噪声(σ ~1.5 个光子),与实验中相机校准测量结果一致。最后,将图像乘以实验测得的 sCMOS 相机像素依赖增益,以获得以探测器计数为单位的图像。
- 为每个模拟输入扩散系数(共 64 个)生成 5,000 条轨迹。
- 按照 数据处理 部分所述方法分析模拟的相机帧。
- 按照 单分子追踪 部分所述方法将定位结果连接成轨迹。
- 使用 25 阶 B 样条插值对每个模拟分布的累积分布函数(CDF)进行插值。插值后的分布可用于在任意点进行查询。
- 沿 D 轴对所得的 B 样条曲线进行插值(D 为控制模拟发射体运动的真实非受限扩散系数),使用 MATLAB 中的 scatteredInterpolant 函数(指定“natural”插值方法)。由此得到一个连续的二维函数,可查询对应于 0.05–20 µm2/s 范围内任意真实扩散系数值的表观扩散系数分布。
8. 实验表观扩散系数分布拟合
注意:使用上一节生成的模拟分布(受限体积中布朗运动的蒙特卡罗模拟)的线性组合,来拟合实验测得的表观扩散系数分布。本节操作通过使用 MATLAB 编写的自定义软件完成,并描述了该软件自动执行的步骤。有关更多信息和应用实例,请参见 Rocha 等人29。
- 使用 MATLAB 中的 lsqlin 函数,对实验累积分布函数(CDF)进行约束线性最小二乘拟合,拟合所用的模拟 CDF 数组来自第 7 节构建的库。此步骤的输出为一个参数向量,其中包含实验分布中主要扩散状态的扩散系数及其种群比例。
- 将扩散系数值相差在 20% 以内的扩散状态通过基于相对种群比例的加权平均法合并为单一扩散状态。由此得到起始参数向量。
注意:为降低模型复杂度,所有扩散系数低于 0.5 µm2/s 的扩散状态可在后续所有步骤中保持不变。 - 构建包含不同数量扩散状态的试用拟合参数向量数组,扩散状态数量范围从单个状态至用户定义的最大状态数。
- 基于起始参数向量,通过加权平均合并相邻的扩散状态,并将每个扩散状态拆分为两个具有相等种群比例、扩散系数分别比原值高 20% 和低 20% 的新状态。对所有可能的状态合并与拆分情况进行重复操作。
- 使用每个试用参数向量对数据的 5 个独立子集进行非线性最小二乘拟合(使用 MATLAB 中的 fmincon 函数)。通过计算拟合结果与剩余子集对应分布之间的残差平方和来评估拟合质量(数据交叉验证)。
- 将每个试用向量在 5 次独立拟合中的平均残差平方和作为整体拟合质量,确定每种扩散状态数量下拟合质量最优的试用向量。
- 通过识别增加一个额外状态后拟合质量提升不足 5% 的试用向量,确定最优的扩散状态数量。
- 使用该最优试用向量对完整数据集进行非线性最小二乘拟合的初始化。
- 通过对数据进行自助法(bootstrapping)重采样,并使用相同试用向量重新拟合,估计各个参数的误差。
访问受限。请登录或开始试用以查看此内容。
结果
在本文所述实验条件(20,000帧,轨迹长度至少包含4个定位点)下,根据荧光标记融合蛋白的表达水平,每个细胞可产生约200–3,000个定位点,形成10–150条轨迹图 2a,b). 要生成充分采样的表观扩散系数分布,需要大量的轨迹数据。此处采集的视场(FOV)大小约为 55 x 55 µm,每次实验采集10个视野(FOV)。因此,为了获得 >每次实验的5,000条轨迹中,每个视野应至少包含50个细胞。理想情况下,细胞群体应尽可能密集,但细胞之间不得相互接触。若细胞密度过高,则会出现细胞相互接触或重叠的情况,从而难以使用OUFTI成功进行分割。28),如所述 数据后处理分割效果不佳可能导致细胞间的定位和轨迹分配错误。
本文展示了对Y. enterocolitica
访问受限。请登录或开始试用以查看此内容。
讨论
成功应用本方案的一个关键因素是确保单分子信号在空间和时间上彼此充分分离(即信号在空间和时间上需足够稀疏)(补充视频 1)。如果同一时间细胞内存在多个发光分子,则定位结果可能被错误地关联到另一个分子的轨迹上,这一问题被称为“连接问题”30。可通过选择适当的实验条件(如蛋白表达水平和激发激光强度)来避免连接问题。然而,应注意使蛋白表达水平接近野生型,以确保结果具有代表性。本研究中,我们采用在天然启动子控制下的等位基因替换策略,而非化学诱导表达,以保证标记蛋白的天然表达水平。因此,可通过调节激发激光强度(用于 eYFP 闪烁)或激活激光强度(用于光激活荧光探针)来控制活性发光分子在时间上的浓度。另外,当使用化学染料标记并结合 HALO 和 SNAP 标签时31,32,可通过降低染料浓度,直至荧光信号足够稀疏,从而实现单分子追踪33。本方案进一步通过排除同一细胞内同时出现两个或以上定位事件的轨迹,来消...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
感谢Alecia Achimovich和Ting Yan对本文手稿的审阅。感谢弗吉尼亚大学高级研究计算服务组的高级科研人员Ed Hall,他在本研究使用的优化程序设置方面提供了帮助。本研究的资金由弗吉尼亚大学提供。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2,6-二氨基庚二酸 | Chem Impex International | 5411 | 用于培养Y. enterocolitica细胞所必需。 |
| 4f透镜 | Thorlabs | AC508-080-A | f = 80mm,2" |
| 514 nm激光器 | Coherent | Genesis MX514 MTM | 用于荧光激发 |
| 琼脂糖 | Inivtrogen | 16520100 | 用于制备凝胶垫,以在显微镜上固定液态细菌样品。 |
| 氯化铵 | Sigma Aldrich | A9434 | M2G组分。 |
| 带通滤光片 | Chroma | ET510/bp | 激发光路。 |
| 脑心浸液培养基 | Sigma Aldrich | 53286 | Y. enterocolitica的生长培养基。 |
| 氯化钙 | Sigma Aldrich | 223506 | M2G组分。 |
| 相机 | Imaging Source | DMK 23UP031 | 用于相差成像的相机。 |
| 介电相位掩模 | Double Helix, LLC | N/A | 用于产生DHPSF信号。 |
| 磷酸氢二钠 | Sigma Aldrich | 795410 | M2G组分。 |
| 乙二胺四乙酸 | Fisher Scientific | S311-100 | 螯合Ca2+,可诱导III型分泌系统(T3SS)的分泌。 |
| 翻转镜 | Newport | 8892-K | 用于在荧光与相差成像光路之间切换。 |
| 荧光微球 | Invitrogen | F8792 | 荧光微珠,激发/发射波长为540/560 nm,直径40 nm。 |
| 玻璃盖玻片 | VWR | 16004-302 | #1.5,22 mm × 22 mm |
| 葡萄糖 | Chem Impex International | 811 | M2G组分。 |
| 浸油 | Olympus | Z-81025 | 滴加在物镜上使用。 |
| 硫酸亚铁 | Sigma Aldrich | F0518 | M2G组分。 |
| 长通滤光片 | Semrock | LP02-514RU-25 | 发射光路。 |
| 硫酸镁 | Fisher Scientific | S25414A | M2G组分。 |
| 显微镜平台 | Mad City Labs | custom | 倒置显微镜用平台。 |
| 萘啶酸 | Sigma Aldrich | N4382 | 所使用的Y. enterocolitica细胞对萘啶酸具有抗性。 |
| 物镜 | Olympus | 1-U2B991 | 60X,1.4 NA |
| 臭氧清洗仪 | Novascan | PSD-UV4 | 用于消除玻璃盖玻片上的背景荧光。 |
| 磷酸钾 | Sigma Aldrich | 795488 | M2G组分。 |
| 红色LED | Thorlabs | M625L3 | 用于相差成像的样品照明,波长625 nm。 |
| sCMOS相机 | Hamamatsu | ORCA-Flash 4.0 V2 | 用于荧光成像的相机。 |
| 短通滤光片 | Chroma | ET700SP-2P8 | 发射光路。 |
| 管镜 | Thorlabs | AC508-180-A | f=180 mm,2" |
| Yersinia enterocolitica dHOPEMTasd | N/A | N/A | 菌株AD4442,eYFP-YscQ |
| 零级四分之一波片 | Thorlabs | WPQ05M-514 | 激发光路。 |
参考文献
- Kapanidis, A. N., Uphoff, S., Stracy, M. Understanding Protein Mobility in Bacteria by Tracking Single Molecules. Journal of Molecular Biology. , (2018).
- Betzig, E., et al. Imaging intracellular fluorescent proteins at nanometer resolution. Science. 313 (5793), 1642-1645 (2006).
- Hess, S. T., Girirajan, T. P. K., Mason, M. D. Ultra-high resolution imaging by fluorescence photoactivation localization microscopy. Biophysical Journal. 91 (11), 4258-4272 (2006).
- Rust, M. J., Bates, M., Zhuang, X. W. Sub-diffraction-limit imaging by stochastic optical reconstruction microscopy (STORM). Nature Methods. 3 (10), 793-795 (2006).
- Chen, T. Y., et al. Quantifying Multistate Cytoplasmic Molecular Diffusion in Bacterial Cells via Inverse Transform of Confined Displacement Distribution. Journal of Physical Chemistry B. 119 (45), 14451-14459 (2015).
- Mohapatra, S., Choi, H., Ge, X., Sanyal, S., Weisshaar, J. C. Spatial Distribution and Ribosome-Binding Dynamics of EF-P in Live Escherichia coli. mBio. 8 (3), (2017).
- Stracy, M., et al. Single-molecule imaging of UvrA and UvrB recruitment to DNA lesions in living Escherichia coli. Nature Communications. 7, 12568(2016).
- Persson, F., Lindén, M., Unoson, C., Elf, J. Extracting intracellular diffusive states and transition rates from single-molecule tracking data. Nature Methods. 10 (3), 265-269 (2013).
- Bakshi, S., Choi, H., Weisshaar, J. C. The spatial biology of transcription and translation in rapidly growing Escherichia coli. Frontiers in Microbiology. 6, 636(2015).
- Mustafi, M., Weisshaar, J. C. Simultaneous Binding of Multiple EF-Tu Copies to Translating Ribosomes in Live Escherichia coli. mBio. 9 (1), (2018).
- Michalet, X., Berglund, A. J. Optimal diffusion coefficient estimation in single-particle tracking. Physical Review E. 85 (6), (2012).
- Michalet, X. Mean square displacement analysis of single-particle trajectories with localization error: Brownian motion in an isotropic medium. Physical Review E Statistical, Nonlinear, and Soft Matter Physics. 82 (4 Pt 1), 041914(2010).
- Backlund, M. P., Joyner, R., Moerner, W. E. Chromosomal locus tracking with proper accounting of static and dynamic errors. Physical Review E Statistical, Nonlinear, and Soft Matter Physics. 91 (6), 062716(2015).
- Stracy, M., et al. Live-cell superresolution microscopy reveals the organization of RNA polymerase in the bacterial nucleoid. Proceedings of the National Academy of Sciences of the United States of America. 112 (32), E4390-E4399 (2015).
- Plochowietz, A., Farrell, I., Smilansky, Z., Cooperman, B. S., Kapanidis, A. N. In vivo single-RNA tracking shows that most tRNA diffuses freely in live bacteria. Nucleic Acids Research. 45 (2), 926-937 (2017).
- Koo, P. K., Mochrie, S. G. Systems-level approach to uncovering diffusive states and their transitions from single-particle trajectories. Physical Review E. 94 (5-1), 052412(2016).
- Uphoff, S., Reyes-Lamothe, R., Garza de Leon, F., Sherratt, D. J., Kapanidis, A. N. Single-molecule DNA repair in live bacteria. Proceedings of the National Academy of Sciences of the United States of America. 110 (20), 8063-8068 (2013).
- Bakshi, S., Bratton, B. P., Weisshaar, J. C. Subdiffraction-Limit Study of Kaede Diffusion and Spatial Distribution in Live Escherichia coli. Biophysical Journal. 101 (10), 2535-2544 (2011).
- Bakshi, S., Siryaporn, A., Goulian, M., Weisshaar, J. C. Superresolution imaging of ribosomes and RNA polymerase in live Escherichia coli cells. Molecular Microbiology. 85 (1), 21-38 (2012).
- Uphoff, S., Sherratt, D. J., Kapanidis, A. N. Visualizing Protein-DNA Interactions in Live Bacterial Cells Using Photoactivated Single-molecule Tracking. JoVE. (85), e51177(2014).
- Pavani, S. R. P., Piestun, R. Three dimensional tracking of fluorescent microparticles using a photon-limited double-helix response system. Optics Express. 16 (26), 22048-22057 (2008).
- Pavani, S. R. P., et al. Three-dimensional, single-molecule fluorescence imaging beyond the diffraction limit by using a double-helix point spread function. Proceedings of the National Academy of Sciences of the United States of America. 106 (9), 2995-2999 (2009).
- Rocha, J. M., et al. Single-molecule tracking in live Yersinia enterocolitica reveals distinct cytosolic complexes of injectisome subunits. Integrative Biology. 10 (9), 502-515 (2018).
- Lew, M. D., von Diezmann, A. R. S., Moerner, W. E. Easy-DHPSF open-source software for three-dimensional localization of single molecules with precision beyond the optical diffraction limit. Protocol Exchange. , (2013).
- Biteen, J. S., et al. Super-resolution imaging in live Caulobacter crescentus cells using photoswitchable EYFP. Nature Methods. 5 (11), 947-949 (2008).
- Huang, F., et al. Video-rate nanoscopy using sCMOS camera-specific single-molecule localization algorithms. Nature Methods. 10 (7), 653-658 (2013).
- Hoogendoorn, E., et al. The fidelity of stochastic single-molecule super-resolution reconstructions critically depends upon robust background estimation. Scientific Reports. 4, 3854(2014).
- Paintdakhi, A., et al. Oufti: An integrated software package for high-accuracy, high-throughput quantitative microscopy analysis. Molecular microbiology. 99 (4), 767-777 (2016).
- Rocha, J. M., Corbitt, J., Yan, T., Richardson, C., Gahlmann, A. Resolving Cytosolic Diffusive States in Bacteria by Single-Molecule Tracking. bioRxiv. , 483321(2018).
- Lee, A., Tsekouras, K., Calderon, C., Bustamante, C., Presse, S. Unraveling the Thousand Word Picture: An Introduction to Super-Resolution Data Analysis. Chemical Reviews. 117 (11), 7276-7330 (2017).
- Los, G. V., et al. HaloTag: A Novel Protein Labeling Technology for Cell Imaging and Protein Analysis. ACS Chemical Biology. , (2008).
- Gautier, A., et al. An Engineered Protein Tag for Multiprotein Labeling in Living Cells. Chemistry & Biology. 15 (2), 128-136 (2008).
- Bisson-Filho, A. W., et al. Treadmilling by FtsZ filaments drives peptidoglycan synthesis and bacterial cell division. Science. 355 (6326), 739-743 (2017).
- Douglass, K. M., Sieben, C., Archetti, A., Lambert, A., Manley, S. Super-resolution imaging of multiple cells by optimised flat-field epi-illumination. Nature Photonics. 10 (11), 705-708 (2016).
- Zhao, Z., Xin, B., Li, L., Huang, Z. L. High-power homogeneous illumination for super-resolution localization microscopy with large field-of-view. Optics Express. 25 (12), 13382-13395 (2017).
- Yan, T., Richardson, C. J., Zhang, M., Gahlmann, A. Computational Correction of Spatially-Variant Optical Aberrations in 3D Single Molecule Localization Microscopy. bioRxiv. , 504712(2018).
- Gahlmann, A., Moerner, W. E. Exploring bacterial cell biology with single-molecule tracking and super-resolution imaging. Nature Reviews Microbiology. 12 (1), 9-22 (2014).
- Liu, Z., Lavis, L. D., Betzig, E. Imaging live-cell dynamics and structure at the single-molecule level. Mol Cell. 58 (4), 644-659 (2015).
- Berglund, A. J. Statistics of camera-based single-particle tracking. Physical Review E. 82 (1), 011917(2010).
- Parry, B. R., et al. The bacterial cytoplasm has glass-like properties and is fluidized by metabolic activity. Cell. 156 (1-2), 183-194 (2014).
- English, B. P., et al. Single-molecule investigations of the stringent response machinery in living bacterial cells. Proceedings of the National Academy of Sciences of the United States of America. 108 (31), E365-E373 (2011).
- Niu, L. L., Yu, J. Investigating intracellular dynamics of FtsZ cytoskeleton with photoactivation single-molecule tracking. Biophysical Journal. 95 (4), 2009-2016 (2008).
- Coquel, A. S., et al. Localization of protein aggregation in Escherichia coli is governed by diffusion and nucleoid macromolecular crowding effect. PLoS Computational Biology. 9 (4), e1003038(2013).
- Nenninger, A., Mastroianni, G., Mullineaux, C. W. Size Dependence of Protein Diffusion in the Cytoplasm of Escherichia coli. Journal of Bacteriology. 192 (18), 4535-4540 (2010).
- Dix, J. A., Verkman, A. S. Crowding effects on diffusion in solutions and cells. Annual Review of Biophysics. 37, 247-263 (2008).
- Elliott, L. C., Barhoum, M., Harris, J. M., Bohn, P. W. Trajectory analysis of single molecules exhibiting non-brownian motion. Physical Chemistry Chemical Physics. 13 (10), 4326-4334 (2011).
访问受限。请登录或开始试用以查看此内容。
重印与许可
