本文介绍的多位点可变数目串联重复序列分析(MLVA)检测方法可实现对鱼类致病菌Yersinia ruckeri进行低成本、稳定且便携的高分辨率基因分型。该方法从纯培养物出发,通过多重PCR结合毛细管电泳,获得包含十个位点的MLVA图谱,用于后续分析应用。
本文内容
摘要
摘要
Yersinia ruckeri 是全球养殖鲑科鱼类的重要病原体,但长期以来缺乏适用于该细菌流行病学调查(如感染溯源等)的简便工具。因此,本研究开发了一种多座位可变数目串联重复序列分析(MLVA)检测方法,作为一种易于获取且结果明确的高分辨率基因分型工具,用于对分离菌株进行基因型鉴定。在本研究所描述的MLVA检测中,通过将培养的 Y. ruckeri 样本细菌细胞在水中煮沸来提取DNA,随后以上清液作为PCR模板。针对分布在 Y. ruckeri 基因组中十个可变数目串联重复序列(VNTR)位点的引物对,被均等地分配至两个五重PCR反应中,并在相同的扩增循环条件下运行。正向引物标记有三种荧光染料中的其中一种。通过琼脂糖凝胶电泳确认扩增产物后,将PCR产物稀释并进行毛细管电泳。根据所得的电泳图谱,对代表各个VNTR位点的峰进行片段大小测定,并用于在计算机中推算VNTR的重复次数。由此获得的十位数MLVA分型结果随后 用于构建最小生成树,从而通过聚类分析实现流行病学评估。这种以数值型MLVA分型结果形式呈现的高度可共享的数据,可快速在不同实验室之间进行比对,并置于时空背景下进行分析。从培养菌落到完成流行病学评估的整个流程,可在单个工作日之内完成多达48株 Y. ruckeri 分离株的检测。
引言
Yersinia ruckeri 是一种革兰氏阴性细菌,属于耶尔森菌科,可在全球范围内引起养殖鲑科鱼类的耶尔森菌病1。从感染鱼类中可通过多种琼脂培养基进行培养,从而快速诊断该病原体。然而,直到最近,人们对 Y. ruckeri 在全球范围内以及不同生境(如宿主物种等)中的种群结构和流行病学特征仍知之甚少。现有的 Y. ruckeri 血清分型系统存在不一致、相互之间缺乏兼容性,并且流行病学分辨能力较低的问题。已有部分针对该细菌的分子研究,采用了多位点序列分型(MLST)、脉冲场凝胶电泳(PFGE)或全基因组测序(WGS)分析等技术2,3,4,5。然而,MLST 在常规感染溯源中分辨率不足,而 PFGE 实验耗时费力,且实验结果在不同实验室之间难以共享和比较。尽管 WGS 分析可提供接近最高的分辨能力,但其建立和实施需要具备较高的技术与生物信息学能力,目前这些能力仍仅限于相对少数的实验室。
多位点可变数目串联重复序列分析(MLVA)是一种简单且易于获取的分子分型工具,在某些情况下其遗传分辨力几乎可与全基因组测序(WGS)分析相媲美6,7。该技术基于选定的可变数目串联重复序列(VNTR)位点中重复次数的变异,所产生的数据具有高度可转移性,便于将菌株分型结果与在线数据库进行比对,以及在不同实验室之间开展比较。尽管MLST仍是许多细菌病原体流行病学分型的金标准,但越来越多的研究表明MLVA具有显著更高的分辨能力8,9,10。目前已发表多项针对鱼类致病菌的MLVA检测方案,例如Francisella noatunensis、Edwardsiella piscicida和Renibacterium salmoninarum11,12,13。
此处介绍的十位点MLVA方案,最近已成为一项广泛研究的基础 Y. ruckeri 人群研究14,包括从琼脂培养的菌落中提取DNA,进行多重PCR和毛细管电泳(CE),随后进行下游的生物信息学分析。针对每个待检分离株,在相同条件下平行运行两组多重PCR,每组包含五对荧光标记的引物(6FAM、NED或VIC),分别靶向特定的VNTR区域。通过凝胶电泳(GE)验证PCR扩增产物后,将PCR产物稀释,再进行CE分析,并从所得的电泳图文件中确定代表各VNTR位点的峰大小。结合针对CE迁移模式中微小且序列特异性差异的位点特异性校正公式,利用VNTR的CE片段大小推算VNTR重复次数,进而拼接成十位数的MLVA分型谱型。这些谱型作为输入数据用于流行病学评估(例如,通过最小生成树(MST)图进行聚类分析)。
方案
警告:在整个实验过程中,建议穿戴实验服、使用一次性手套,并采用无菌试剂和设备,以无菌操作方式进行所有湿实验步骤。建议在独立的房间(PCR前房间)中配制PCR反应体系,该房间不得用于PCR扩增和/或PCR产物操作(PCR后操作)。所有试剂应按照制造商建议的条件储存。有关所用试剂、仪器和软件的更多详细信息,请参见材料表。
1. 细菌培养与基因组DNA提取
- 在任何合适的琼脂培养基上划线接种 Y. ruckeri 纯培养物(作者使用了5%牛血琼脂),于22 °C培养1-2天,或于15 °C培养3-4天。
- 用接种环从每块琼脂平板上挑取一个具有代表性的单菌落,转移至含有50 µL超纯水的1.5 mL离心管中。悬浮菌体后短暂涡旋振荡,并在100 °C加热块中孵育7分钟。
- 在16 000 x g 条件下离心3分钟,然后用移液器小心将上清液转移至另一个空的1.5 mL离心管中。立即以下清液作为模板DNA进行后续步骤,或将其储存于-20 °C备用。
2. 多重 PCR 体系设置与循环条件
注意:每个多重 PCR 反应(每个 Y. ruckeri 分离株进行两次)应包含 12.5 µL 的 2x Multiplex PCR Plus 预混液、0.1 至 0.2 µM 的每对相应引物(表 1)以及 3 µL 模板 DNA,用无 RNase 水补足至终体积为 25 µL。应尽量减少荧光标记的正向引物暴露于光下的时间(例如,将其储存管用铝箔包裹)。
- 针对两种多重 PCR 检测方法(表 1),根据样本数量,另加一个阳性对照和一个阴性对照,按照上述方法(不含模板 DNA)配制主混合液,并额外预留 10% 的过量体积。将配制好的主混合液在低速下轻轻涡旋振荡。
- 根据样本数量,将每种主混合液分别取 22 µL 加入 PCR 条带或板的各个孔中,然后向每孔加入 3 µL 模板(阳性对照使用经验证的 Y. ruckeri 菌株 DNA,阴性对照使用超纯水)。密封后短暂离心。
- 将所有样本在 PCR 扩增仪上按照以下程序运行:(i) 95 °C 下 5 min;(ii) 30 个循环,每个循环包括 95 °C 下 0.5 min、60 °C 下 1.5 min 和 72 °C 下 1 min;(iii) 68 °C 下 60 min,随后无限期冷却至 4 °C。该程序完成时间少于 3 小时。
3. 通过凝胶电泳确认PCR扩增子
- 根据生产商的建议,配制适量体积的1.5%(w/v)琼脂糖凝胶,使用1×三羟甲基氨基甲烷-硼酸-EDTA(TBE)缓冲液,具体体积应根据待检测的PCR反应数量确定。在倒胶前,每50 µL凝胶溶液中加入5 µL荧光核酸染料,并充分混匀。选择合适的制胶托盘和梳子进行制胶,预留适当数量的加样孔用于DNA分子量标记物。
- 凝胶凝固后,将其浸入GE电泳系统中的1× TBE缓冲液中。将5 µL PCR产物与2 µL上样染料混合后,加入凝胶加样孔中。在空的加样孔中加入5 µL DNA分子量标记物作为参照。
- 以每15 cm长度110 V的电压电泳约1小时,使用基于紫外光的凝胶成像/可视化系统检测是否存在多个(最多五个)代表PCR扩增产物的条带(示例见图1)。电泳结束后弃去凝胶。继续进行下一步操作,或将剩余的PCR产物于4 °C保存,待后续处理。
4. 毛细管电泳设置与运行条件
- 确认PCR扩增产物后,将PCR产物用纯化水按1:10(v/v)稀释。密封、混匀并短暂离心。
- 在通风橱中操作,为每个PCR产物配制适量的混合液,包含9 µL甲酰胺和0.5 µL大小标准品(建议额外准备10%余量)。短暂涡旋混匀后,将9.5 µL分装至适用于所用毛细管电泳(CE)系统的板孔中,再向每孔加入0.5 µL稀释后的PCR产物。密封、混匀并短暂离心。
注意:操作需谨慎。甲酰胺与水混合会生成有毒的甲酸。 - 使用PCR热循环仪,将样品在95 °C下变性3分钟,随后无限期冷却至4 °C。短暂离心后,按照制造商说明将板加载到已校准的CE系统上。
- 根据所选设备及以下参数,使用相应的试剂进行片段分析毛细管电泳:60 °C;1.6 kV下进样5秒(32 V/cm);15 kV下运行32分钟(300 V/cm)。在24根毛细管(50 cm)系统上对24个样品孔进行CE片段分析通常约需50分钟。
5. VNTR 片段长度测定、重复次数计算与 MLVA 分型
注意: 步骤 5.1 描述了使用材料表中所列的特定软件,从电泳图文件中对Y. ruckeri VNTR CE 片段大小进行判读。有关更多细节和故障排除,请参考该软件的使用手册。若使用其他软件,请查阅相应的使用手册。
- 导入毛细管电泳(CE)结果文件(每个 Y. ruckeri 分离株导入两个文件)。将分析方法设置为“微卫星默认”(Microsatellite Default),并在“片段大小标准”(Size Standard)下选择相应的产品选项,然后点击“分析”(Analyze)按钮。通过“片段大小匹配编辑器”(Size Match Editor)验证大小标准片段的正确识别,并修正任何明显错误的分配。
- 选择需读取的样本后,点击显示图谱(Display Plots)按钮,然后按Ctrl+A以查看片段大小测定表(Sizing Table)。在顶部面板中,按住Ctrl键的同时点击代表VNTR扩增子的五个峰(可根据需要使用缩放工具)。
注意:对于每个多重PCR产物,电泳图谱将在所用三种荧光染料之间显示五个峰(参见表1中正向引物的5'端荧光标记以及图2中的两个示例)。 - 按下Ctrl+G对片段大小测定表(Sizing Table)进行筛选,仅显示所选五个峰的特征,并记录每个VNTR位点的CE片段大小(参照表1),用于后续分析。
- 选择需读取的样本后,点击显示图谱(Display Plots)按钮,然后按Ctrl+A以查看片段大小测定表(Sizing Table)。在顶部面板中,按住Ctrl键的同时点击代表VNTR扩增子的五个峰(可根据需要使用缩放工具)。
- 为校正毛细管电泳过程中扩增子迁移模式的偏差,需根据下方提供的公式,结合VNTR的CE片段大小及各特定位点的参数(见表1),计算准确的VNTR重复次数。为提高效率,建议将此过程自动化(例如,使用电子表格模板)。
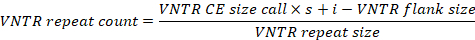
- 将计算得到的VNTR重复次数四舍五入至最接近的整数,并将其连接为十位数字的字符串,每个字符串代表一个 Y. ruckeri 分离株的MLVA分型谱。
6. MLVA 数据的最小生成树聚类分析
注意:步骤6描述了使用材料表中所列的特定软件,基于Y. ruckeri MLVA数据创建MST图谱的方法。有关更多细节和故障排除,请参考该软件的使用手册。若使用其他软件,请查阅相应的使用手册。
- 创建一个新数据库,并选择激活 MLVA 插件。
- 通过选择特征类型数据,然后选择导入字段和特征(根据存储格式进一步子选项),导入Y. ruckeri的 MLVA 谱型及元数据。当系统提示时,根据导入文件的内容指定导入规则:在目标类型列中,将 VNTR 重复次数分类为特征值:VNTR,将其他元数据分类为条目信息:条目信息字段。
注意:为了进行比较和提供背景信息,还可以导入与本 MLVA 方案原始论文一同公开发布的完整数据集14。该研究中分析的大量Y. ruckeri分离株(n = 484)的 MLVA 谱型和元数据可通过以下链接从其补充材料(表 S1 和 S2)获取:https://aem.asm.org/content/84/16/e00730-18/figures-only#fig-data-additional-files - 在实验类型面板中,打开VNTR条目,并将每个 VNTR 位点的最小值和最大值分别设置为0和100。在常规设置下,将小数位数设为0,并在数据类型下选择数字。勾选将缺失值视为零的选项。
- 选择拟用于 MST 聚类分析的已导入样本,然后点击比较面板中的“创建新比较”按钮。
- 如需优化 MST 图的可视化效果,可使用分组面板中的各种选项,将样本分配至不同颜色的组别(例如,依据特定的元数据特征)。
注意:分组也可在后续步骤完成后回溯创建或修改。 - 选择高级聚类分析…和适用于分类数据的 MST,以所选样本生成 MST 图。
- 可根据需要进一步调整 MST 图的可视化呈现方式(例如,添加划分参数、节点/分支标签、交叉连接、图例等)。示例见图 3。
注意:此前基于本方案生成的 MLVA 数据进行 MST 聚类分析时,采用的聚类(克隆复合体)划分阈值为 ≤4/10 个非相同 VNTR 位点,同时隐藏代表 >5/10 个非相同 VNTR 位点的分支连接14。若已导入上述包含 484 个Y. ruckeri MLVA 谱型的数据集,也可将其样本一并纳入 MST 聚类分析(如上所述),以提供全球性和历史性的背景参考。这将有助于识别与已知克隆复合体相关的样本,以及代表尚未描述谱系的样本。根据可用的元数据,可从不同角度分析生成的 MST 图,例如探索与特定特征(地理、宿主、时间等)相关的潜在聚类模式。 - 如有需要,可通过导出图像选项以所需格式导出最终的 MST 图。
- 如需优化 MST 图的可视化效果,可使用分组面板中的各种选项,将样本分配至不同颜色的组别(例如,依据特定的元数据特征)。
结果
按照本文所述进行多重PCR后,典型的凝胶电泳(GE)图像显示了每个PCR反应中多种扩增子的存在,如图1所示。对已验证的PCR产物进行下游毛细管电泳(CE)片段分析后,每个受检的Y. ruckeri分离株将获得两个电泳图谱文件,用于相应VNTR位点的片段大小判定(图2)。通过对484株遗传多样性不同的Y. ruckeri分离株的分析,发现在同一重PCR反应中使用相同荧光染料标记的VNTR位点之间,其扩增子大小范围无重叠(Table 1)14。因此,每个电泳峰均可通过颜色明确识别。
将MLVA谱型及相关元数据导入首选软件后,可按照所述方法构建MST图,以分析材料中任何感兴趣的流行病学模式。有关各软件中可用的其他选项,请参考相应的使用手册。例如,图3展示了利用MST对从挪威五个不同三文鱼养殖场相关鱼类中分离的Y. ruckeri菌株的MLVA谱型进行的比较。
这十个VNTR位点的重复片段大小的一致性及其体外和体内稳定性,已在基于本方案的原始研究中得到验证14。简而言之,研究通过Sanger测序(确定重复片段大小)以及对连续传代后获得的多个分离株进行MLVA分型(体外实验),并对单次疾病暴发中获得的多个分离株进行分型(体内实验)来完成验证。此外,通过检测多年间从持续感染的大西洋鲑淡水养殖场所分离出的多个“实验室菌株”分离株的分型结果,评估了这些位点在环境中的长期稳定性。

图1:凝胶电泳验证多个PCR产物的存在。 该图像证实了所有12个加样泳道中均存在多个PCR扩增子,其中第一泳道为所用DNA Ladder。图中标注了部分Ladder片段的大小,以及各泳道对应的PCR检测方法和菌株(参见Gulla等,201814的表S1)。请点击此处查看此图的放大版本。

图2:显示对应于VNTR扩增片段的峰的电泳图谱。不同VNTR位点的名称已标出,括号内为染料标签(VIC = 绿色;NED = 黑色;6FAM = 蓝色)。两个电泳图谱(上图为PCR检测1,下图为PCR检测2)来自同一次对单个Y. ruckeri分离株的分型结果。橙色峰(LIZ染料)代表所用的大小标准。 请点击此处查看该图的放大版本

图3:用于流行病学评估的最小生成树示例。该图基于从挪威五个不同养殖场(1-5;见图注)患有复发性鲁氏耶尔森菌病的大西洋鲑鱼中分离的Y. ruckeri菌株的MLVA分型结果。可观察到与养殖场来源相关的明显聚类趋势。连接线表示所有涉及≤1/10非相同VNTR位点的可能关联(见图注)。请点击此处查看该图的放大版本。

图4: 显示影子峰和分裂峰的电泳图谱。 在本例中,两者同时出现,但并非总是如此。代表YR1070 VNTR位点的较高且较高的峰可以清晰区分。图谱已放大,仅显示蓝色染料的峰。请点击此处查看该图的放大版本。

表 1:VNTR位点特征。 本研究MLVA方案中针对的十个Y. ruckeri VNTR区域的相关特征。
讨论
本文所述的两种多重PCR在模板DNA质量较差的情况下均表现出较强的稳健性,但在使用DNA浓度过高的模板时,偶尔仍会出现PCR扩增失败的情况。这些问题可通过在PCR前对模板进行稀释而轻松解决。除本文所采用的方法外,也可使用其他DNA提取方法(例如商业试剂盒)。
尽管每个多重PCR反应预期产生五个扩增子,但由于同一反应中某些(不同标记的)VNTR位点的大小范围存在重叠,凝胶电泳(GE)结果并不总是能观察到五条视觉上可区分的条带。最终的PCR延伸时间60分钟可根据需要缩短,但可能会导致后续毛细管电泳(CE)电泳图中出现分裂峰的频率增加(见下文)。值得注意的是,由于GE步骤的目的仅为对PCR扩增子进行定性验证,因此运行时间、电压和/或凝胶配方可根据需要进行调整。如果在GE中观察到特别弱的条带,建议在进行CE之前降低这些样品的稀释倍数。
尽管本文所述的毛细管电泳(CE)方案是在特定的商用毛细管电泳仪上运行的(参见材料表),但不同的CE系统可能具有不同的样品要求,这可能需要对本方案进行某些修改。有关片段分析所需的适当试剂/设备、校准等操作说明,请参考相应CE系统制造商提供的使用手册。 此外,如先前在其他MLVA方案中已有报道,CE过程中观察到的扩增子迁移模式偏移在不同CE系统和/或仪器之间可能存在相对差异15,16。如果这种差异达到影响最终(取整后)VNTR重复次数的程度,则必须重新校准用于确定VNTR重复数的位点特异性变量 s 和 i(表1)。校准方法包括对已知准确序列长度与CE测定长度之间的数据进行线性回归分析,具体方法参见Gulla等(2018)的描述14。
在毛细管电泳(CE)为基础的MLVA分型中,分裂峰和影子峰均为已知的常见假象17,在电泳图谱的片段大小判读过程中可能出现(图4)。对于影子峰应予以忽略;而对于仅相差一个碱基对的分裂峰,则在后续分析中应始终选择较长的峰。此外,某些VNTR位点缺失导致无扩增峰的情况较为罕见,但亦可能发生,此时应将其重复次数记为“0”。若用于DNA提取的起始培养物不纯(即含有不止一种 Y. ruckeri 亚型),毛细管电泳后可能在同一或多个位点观察到多个高度相近的峰。此时必须从单个菌落重新进行二次培养,再提取DNA并重新分型。
如实验方案所述,PCR 的模板 DNA 默认应从纯培养的 Y. ruckeri 中提取。然而,在少数情况下,对经 qPCR 检测为 Y. ruckeri 阳性(Ct 值 < 27)的卵液样本,使用较大量的基因组 DNA(通过商业试剂盒提取)作为模板,无需预先培养,即可成功进行 MLVA 分型。尽管该方法尚未经过广泛测试或验证,但它表明本 MLVA 检测方法具备用于分析复杂生物基质的潜力,这些基质除含有 Y. ruckeri 的 DNA 外,还可能含有多种不同生物的 DNA。
整个MLVA分型流程,从DNA提取到流行病学评估,可在单个工作日内完成。然而,检测样本数量与DNA提取、PCR及毛细管电泳(CE)所需时间呈亚线性关系,因此同时处理多个样本时,该方法在时间效率上具有显著优势。但这种情况同样适用于大多数基于实验室的方法,作为一种流行病学亚型分型工具, Y. ruckeri高分辨率、操作简便和便携性相结合,使该MLVA检测方法优于以往发表的实验方案4,5。此外,它还被用于验证流行病学相关性的局限性 Y. ruckeri 血清型分型14.
通过一项基于MLVA的综合性群体研究,共涉及484例 Y. ruckeri 从多种时空来源和生境(宿主鱼类、环境等)分离获得的菌株,使我们对该重要鱼类病原体的流行病学特征及种群结构的理解显著加深14MLVA分型技术能够追溯数十年来通过鱼类运输等人为活动传播的克隆株,同时也能识别局限于特定地区的菌株。此外,尽管该细菌的某些克隆复合体可明确与特定鱼类宿主(分别为虹鳟和大西洋鲑)的疾病相关,但其他克隆复合体仅从环境来源和/或无临床症状的鱼类样本中分离获得。因此,该方法的应用不仅限于感染溯源,还可能提供潜在相关性的信息,例如 用于疫苗开发、风险评估以及国家生物安全的维护。目前,该工具正在挪威兽医研究所积极用于开展相关调查研究 Y. ruckeri 挪威水产养殖中的诊断
披露
作者无任何利益冲突需要披露。
致谢
本研究由挪威海产品研究基金会(FHF)资助(项目编号:901119 和 901505)。我们谨向在方法开发过程中提供细菌分离株和样品的所有贡献者表示感谢。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 22°C/15°C 培养箱 | 根据需要选择。 | NA | |
| 5' 标记引物,10K PMOL,脱盐,干粉 | Thermo Fisher Scientific | 450007 | 序列及标记信息见表1。用TE缓冲液配制工作浓度分装液。 |
| 琼脂糖,通用型,peqGOLD | VWR | 732-2789P/732-2788 | 用于凝胶电泳。 |
| Avant 3500xL 遗传分析仪 | Thermo Fisher Scientific | A30469 | 用于毛细管电泳片段分析。 |
| BioNumerics7 模块 | Applied Maths | NA | 用于基于MLVA数据生成最小生成树。 |
| 离心机 | 根据需要选择。 | NA | |
| 定制DNA寡核苷酸,25N,脱盐,干粉 | Thermo Fisher Scientific | A15612 | 序列见表1。用TE缓冲液配制工作浓度分装液。 |
| DNA凝胶上样染料(6X) | Thermo Fisher Scientific | R0611 | 凝胶电泳过程中使用的上样染料。 |
| Eppendorf Safe-Lock 离心管,1.5 mL | Eppendorf | 30120086 | DNA提取过程中使用的离心管。 |
| 冷冻柜 | 根据需要选择。 | NA | |
| 通风橱 | 根据需要选择。 | NA | |
| 凝胶电泳系统 | 根据需要选择。 | NA | |
| GelRed 核酸染料,水溶液,10,000X | Biotium | 41003 | 凝胶电泳中使用的荧光核酸染料。 |
| GeneMapper 软件 5 | Thermo Fisher Scientific | 4475073 | 用于读取毛细管电泳的电泳图谱。 |
| GeneRuler 50 bp DNA Marker,即用型 | Thermo Fisher Scientific | SM0373 | 凝胶电泳中使用的DNA Marker。 |
| GeneScan 600 LIZ 染料尺寸标准品 v2.0 | Thermo Fisher Scientific | 4408399 | 毛细管电泳中使用的尺寸标准品。 |
| 加热金属块 | 根据需要选择。 | NA | |
| Hi-Di 去离子甲酰胺 | Thermo Fisher Scientific | 4311320/4440753 | 毛细管电泳中使用的去离子甲酰胺。需配制工作浓度分装液。 |
| Milli-Q 水 | NA | NA | PCR和毛细管电泳中使用的纯化水。标准配方;实验室自制。 |
| Multiplex PCR Plus 试剂盒 | Qiagen | 206151/206152 | |
| PCR热循环仪 | 根据需要选择。 | NA | |
| POP-7 聚合物,适用于3500 Dx/3500xL Dx 遗传分析仪 | Thermo Fisher Scientific | A26077/4393713/4393709 | 毛细管电泳中使用的分离基质。 |
| 纯培养的鲁氏耶尔森菌(Yersinia ruckeri) | NA | NA | 例如冷冻保存或新鲜培养物。 |
| 无RNase水 | Qiagen | NA | 包含于Multiplex PCR Plus 试剂盒中 |
| Tris-硼酸-EDTA (TBE) 缓冲液 | NA | NA | 标准配方;实验室自制。 |
| 胰蛋白胨大豆琼脂/牛血琼脂 | NA | NA | 标准配方;实验室自制。 |
| 基于紫外光的凝胶成像/可视化系统 | 根据需要选择。 | NA | |
| 涡旋振荡器 | 根据需要选择。 | NA |
参考文献
- Barnes, A. C. Enteric redmouth disease (ERM) (Yersinia ruckeri). Fish Diseases and Disorders, Vol 3: Viral, Bacterial and Fungal Infections. 3, 484-511 (2011).
- Barnes, A. C., et al. Whole genome analysis of Yersinia ruckeri isolated over 27 years in Australia and New Zealand reveals geographical endemism over multiple lineages and recent evolution under host selection. Microbial Genomics. 2 (11), 000095(2016).
- Calvez, S., Mangion, C., Douet, D. G., Daniel, P. Pulsed-field gel electrophoresis and multi locus sequence typing for characterizing genotype variability of Yersinia ruckeri isolated from farmed fish in France. Veterinary Research. 46, 73(2015).
- Bastardo, A., Ravelo, C., Romalde, J. L. Multilocus sequence typing reveals high genetic diversity and epidemic population structure for the fish pathogen Yersinia ruckeri. Environmental Microbiology. 14 (8), 1888-1897 (2012).
- Wheeler, R. W., et al. Yersinia ruckeri biotype 2 isolates from mainland Europe and the UK likely represent different clonal groups. Diseases of Aquatic Organisms. 84 (1), 25-33 (2009).
- Eyre, D. W., et al. Comparison of multilocus variable-number tandem-repeat analysis and whole-genome sequencing for investigation of Clostridium difficile transmission. Journal of Clinical Microbiology. 51 (12), 4141-4149 (2013).
- Sun, M., et al. Multiple Locus Variable-Number Tandem-Repeat and Single-Nucleotide Polymorphism-Based Brucella Typing Reveals Multiple Lineages in Brucella melitensis Currently Endemic in China. Frontiers in Veterinary Science. 4, (2017).
- Bouchouicha, R., et al. Comparison of the performances of MLVA vs. the main other typing techniques for Bartonella henselae. Clinical Microbiology and Infection. 15, SUPPL 2 104-105 (2009).
- Dahyot, S., et al. Multiple-Locus Variable Number Tandem Repeat Analysis (MLVA) and Tandem Repeat Sequence Typing (TRST), helpful tools for subtyping Staphylococcus lugdunensis. Scientific Reports. 8 (1), (2018).
- Elberse, K. E. M., Nunes, S., Sá-Leão, R., van der Heide, H. G. J., Schouls, L. M. Multiple-locus variable number tandem repeat analysis for Streptococcus pneumoniae: Comparison with PFGE and MLST. PLoS ONE. 6 (5), (2011).
- Matejusova, I., et al. Multilocus variable-number tandem-repeat genotyping of Renibacterium salmoninarum, a bacterium causing bacterial kidney disease in salmonid fish. BMC microbiology. 13, 285(2013).
- Duodu, S., et al. An improved multiple-locus variable-number of tandem repeat analysis (MLVA) for the fish pathogen Francisella noatunensis using capillary electrophoresis. BMC Veterinary Research. 9, 252(2013).
- Abayneh, T., Colquhoun, D. J., Austin, D., Sørum, H. Multilocus variable number tandem repeat analysis of Edwardsiella piscicida isolates pathogenic to fish. Journal of Fish Diseases. 37 (11), 941-948 (2014).
- Gulla, S., et al. Multilocus variable-number tandem-repeat analysis of Yersinia ruckeri confirms the existence of host specificity, geographic endemism, and anthropogenic dissemination of virulent clones. Applied and Environmental Microbiology. 84 (16), (2018).
- Pasqualotto, A. C., Denning, D. W., Anderson, M. J. A cautionary tale: Lack of consistency in allele sizes between two laboratories for a published multilocus microsatellite typing system. Journal of Clinical Microbiology. 45 (2), 522-528 (2007).
- Lista, F., et al. Genotyping of Bacillus anthracis strains based on automated capillary 25-loci multiple locus variable-number tandem repeats analysis. BMC Microbiology. 6, 33(2006).
- Thermo Fisher Scientific DNA Fragment Analysis by Capillary Electrophoresis. , Available from: https://www.thermofisher.com/content/dam/LifeTech/global/Forms/PDF/fragment-analysis-chemistry-guide.pdf (2014).
重印与许可
