由人诱导性多能干细胞(hiPSC)衍生的肠道类器官为在体外模拟肠道疾病提供了新的研究机会。本文展示了将hiPSC分化为肠道类器官(iHOs)、利用细胞因子刺激这些iHOs,以及将鼠伤寒沙门氏菌(Salmonella Typhimurium)显微注射至iHO腔内的实验方法,从而实现对该病原体上皮侵袭过程的研究。
本文内容
摘要
摘要
肠道类器官(iHO)系统能够利用人诱导性多能干细胞(hiPSCs)生成代表人类肠道上皮层的三维结构,并可在体外培养中维持其生长,为研究肠道上皮对肠道感染的响应机制提供了极具前景的模型。在体内,肠道上皮细胞(IECs)在调节肠道稳态中发挥关键作用,并可能直接抑制病原体,但其具体机制尚未完全阐明。细胞因子白细胞介素-22(IL-22)已被证实参与维持和保护肠道上皮屏障功能,包括在感染时诱导抗菌肽和趋化因子的释放。
我们描述了通过向培养基中添加特定的细胞因子组合,将健康对照组的hiPSCs分化为iHOs,随后将其嵌入基于基底膜基质的前肠培养系统。嵌入后,iHOs在添加了Noggin、R-spondin-1、表皮生长因子(EGF)、CHIR99021、前列腺素E2和Y-27632二盐酸盐一水合物的培养基中培养。通过手动破坏iHO超微结构进行每周传代,可形成出芽状iHOs,部分表现出隐窝/绒毛样结构。所有iHOs均显示出分化的上皮层,包含杯状细胞、肠内分泌细胞、潘氏细胞和极化肠上皮细胞,可通过各细胞亚群特异性标志物的免疫染色、透射电子显微镜(TEM)及定量PCR(qPCR)加以验证。为建立感染模型, 沙门氏菌 enterica 将鼠伤寒沙门菌SL1344(serovar Typhimurium SL1344)显微注射至iHOs腔内,在37 °C孵育90分钟,并采用改良的庆大霉素保护实验检测胞内细菌侵袭水平。部分iHOs在感染前经重组人IL-22(rhIL-22)预处理,以确定该细胞因子是否对细菌侵袭具有保护作用 沙门氏菌 感染
引言
近年来,随着“类器官”模型的发展,宿主与病原体相互作用的研究得到了显著推进,这些模型能够利用多种前体细胞构建出肠道上皮的三维结构。所谓的“原代”类器官可直接由从肠道活检组织中分离的肠道干细胞生成。此外,肠道类器官也可由人诱导多能干细胞(hiPSCs)诱导产生。这一原理同样适用于多种其他组织,目前已有许多研究人员利用胃1、肝2、胰腺3,4、脑5,6、肺7和前列腺8类器官来建立疾病模型。类器官系统具有诸多令人期待的应用前景,包括癌症建模9和药物筛选10,但本文重点探讨将诱导型肠道类器官(iHOs)作为感染模型的应用,以鼠伤寒沙门菌(S. enterica serovar Typhimurium,S. Typhimurium)作为代表性病原体,并以白细胞介素-22(IL-22)预处理作为干预手段。
本研究中用于生成类器官(iHO)的 hiPSCs 为“Kolf2”诱导多能干细胞(iPSCs),来源于一名健康个体,由人类诱导多能干细胞倡议联盟(HipSci;www.hipsci.org)提供,该联盟拥有一个公开可及的、经过特征鉴定的 hiPSC 细胞系参考库11。使用 hiPSCs 作为类器官前体细胞的一个优势在于,目前已有大量来自健康供体的 iPSC 细胞系资源库可供使用,这意味着研究结果可在具有不同遗传背景的多种细胞系中进行验证。此外,若研究人员希望研究特定疾病相关的单核苷酸多态性(SNPs),可利用 CRISPR/Cas9 技术在健康细胞系中引入突变,从而同时获得突变细胞系,并保留等基因型对照细胞系用于比较分析12。根据我们的经验,hiPSC 来源的肠道类器官在尺寸上大于其原代对应物,且在培养中更为稳定,这使得显微注射操作的技术难度降低,并可能允许研究更广泛的病原体。iHOs 可进行深低温保存,我们已将 iHO 培养物连续传代长达一年,以制备实验所需材料。
在体内,肠上皮细胞(IECs)在调节肠道稳态中发挥关键作用,并可能直接抑制病原体,但其具体机制尚不明确。细胞因子 IL-22 已被证实参与维持肠道上皮屏障功能。13 并参与感染时抗菌肽和趋化因子的诱导与分泌14由活化的T细胞(尤其是Th17细胞)以及天然存在的细胞产生 杀伤细胞(NK细胞)并结合由IL-22R1和IL-10R2亚基组成的异源二聚体受体15IL-22 的受体在肠上皮细胞(IECs)上基础性表达,这意味着在iHO模型中,只需将重组人IL-22(rhIL-22)加入培养基中即可实现对类器官的预处理。16类器官系统的一个缺点是缺乏通常由其他免疫细胞类型介导的免疫应答;然而,目前已出现一些模型,尝试将类器官与肠道淋巴细胞共培养,以更真实地模拟这一过程17,18.
使用显微注射系统是模拟iHO模型中感染的关键步骤,因为它能够将病原体直接递送至上皮细胞的顶膜表面,这与体内感染的情况一致。在注入iHO的细菌溶液中加入酚红,可标记已被感染的类器官,从而避免对同一个iHO进行重复注射。作为感染建模载体的类器官应用日益广泛,所涉及的病原体包括 幽门螺杆菌,19 诺如病毒20 轮状病毒21 产志贺毒素 大肠杆菌22,隐孢子虫23,以及寨卡病毒24 已在这些系统中被证实能够存活并复制。该技术可应用于更广泛的病原体,特别是难以培养的生物体(如原生动物)或仅限于感染人类的病原体,以获取关于人类上皮细胞对感染反应的直接信息。
方案
1. 诱导多能干细胞的培养与传代
注意: 此处描述的所有方法均使用商业化的人源细胞系。以下详述的所有组织培养操作均应在II级层流罩中进行。iPSC常规培养于干细胞培养基中(参见材料表),按照制造商说明操作,可实现无需周末换液的连续培养。iPSC可相对容易地从其他iPSC培养体系中适应转换而来。
- 当集落覆盖约80%–90%的培养皿表面时,进行细胞传代。
- 在传代前1小时,通过向组织培养处理的培养皿中加入用杜氏磷酸盐缓冲液(DPBS;不含钙 [Ca] 或镁 [Mg])稀释的10 μg/mL纤连蛋白,制备包被培养皿。包被体积取决于培养皿尺寸,可参考生产商说明书。在此期间,将干细胞培养基恢复至室温(RT)。
- 移除准备传代的iPSCs培养基,并用DPBS(不含Ca或Mg)清洗细胞2次。
- 向培养皿中加入EDTA溶液(见材料表),确保整个表面被覆盖,于室温(RT)孵育 5–8分钟。当iPSC集落中心开始出现空隙时,吸除并弃去EDTA溶液。
- 向孔中加入干细胞培养基,通过轻轻吹打数次使培养基在培养皿表面流动,从而解离iPSCs。iPSCs以细胞团块形式传代,而非单细胞形式,因此需确保EDTA作用时间不过长。将解离下来的iPSCs转移至15 mL锥形管中。
- 吸除预包被培养皿中的纤连蛋白,并替换为干细胞培养基。反复倒置iPSC悬液数次,确保细胞未沉降至锥形管底部,然后加入适量悬液,使细胞在新培养皿中达到1:10的传代比例。可根据iPSC生长速率调整传代比例,不同iPSC细胞系的生长速率可能有所差异。
- 轻轻摇动培养皿使iPSCs均匀分布于表面,随后将其置于37 °C/5% CO2培养箱中。传代后次日对iPSCs进行换液。
2. 从诱导多能干细胞向后肠的分化
- 在第0天,将诱导多能干细胞(iPSCs)接种至经处理的10 cm组织培养皿中,该培养皿已按步骤1.2所述预先包被了玻连蛋白,并加入含激活素A(10 ng/mL)和碱性成纤维细胞生长因子(bFGF;12 ng/mL)的10 mL干细胞培养基。在使用前直接将生长因子加入培养基中;后续所有步骤均需如此操作。
- 在第1天,更换培养基(含激活素A [10 ng/mL] + bFGF [12 ng/mL] 的10 mL干细胞培养基)。
- 在第2天,开始诱导分化,更换为含以下生长因子的10 mL干细胞培养基:激活素A(100 ng/mL)、bFGF(100 ng/mL)、骨形态发生蛋白4(BMP-4;10 ng/mL)、磷脂酰肌醇3-激酶抑制剂LY294002(10 μM)和GSK3抑制剂CHIR99021(3 μM)。
- 在第3天,更换为含激活素A(100 ng/mL)、bFGF(100 ng/mL)、BMP-4(10 ng/mL)和LY294002(10 μM)的10 mL干细胞培养基。该培养基诱导的内胚层特化应在接下来24小时内引起iPSC克隆形态的可见变化。
- 在第4天,更换为10 mL含激活素A(100 ng/mL)和bFGF(100 ng/mL)的RPMI/B27培养基。
注意:RPMI/B27培养基包含500 mL含L-谷氨酰胺补充剂的RPMI培养基(见材料表)、10 mL B27补充剂(50倍浓度,无血清)和5 mL非必需氨基酸。可选:添加5 mL青霉素-链霉素(10,000 U/mL)。使用前需过滤除菌。 - 在第5天,更换为含激活素A(50 ng/mL)的10 mL RPMI/B-27培养基。
- 在第6天,为启动后部内胚层向后肠的模式形成,更换为含CHIR99021(6 μM)和视黄酸(3 μM)的10 mL RPMI/B27培养基。
- 在第7天、第8天和第9天,重复步骤2.7。在此期间,应可见后肠的三维结构逐渐显现,并覆盖培养板表面。
- 在第10天,将获得的后肠结构包埋于基底膜基质中(见材料表)。
3. 肠道后段在基底膜基质中的包埋
- 配制iHO基础培养基(500 mL高级DMEM/F12培养基、10 mL B27添加剂[50倍,无血清]、5 mL N2添加剂[100倍,无血清]、5 mL 1 M 4-(2-羟乙基)-1-哌嗪乙磺酸(HEPES)和5 mL非必需氨基酸[100倍]。可选:加入5 mL青霉素-链霉素溶液[10,000 U/mL];使用前经滤器除菌。参见表1)。
- 从后肠培养板中移除培养基,用不含Ca或Mg的DPBS洗涤1次。向培养板中加入5 mL胶原酶溶液,并在37 °C孵育5分钟。
- 通过将500 mg IV型胶原酶粉末加入400 mL高级DMEM/F12中制备胶原酶溶液。随后加入100 mL血清替代物(参见材料表)、5 mL L-谷氨酰胺(200 mM)和3.5 μL 2-巯基乙醇,轻轻旋转混匀。待胶原酶粉末完全溶解后,对溶液进行滤器除菌。
注意:该溶液可分装后于-20 °C保存,最长可达6个月。
- 通过将500 mg IV型胶原酶粉末加入400 mL高级DMEM/F12中制备胶原酶溶液。随后加入100 mL血清替代物(参见材料表)、5 mL L-谷氨酰胺(200 mM)和3.5 μL 2-巯基乙醇,轻轻旋转混匀。待胶原酶粉末完全溶解后,对溶液进行滤器除菌。
- 加入5 mL iHO基础培养基以终止胶原酶反应,用细胞刮刀刮下后肠细胞,并将后肠细胞悬液收集至15 mL锥形离心管中。
- 在240 × g条件下离心1分钟,吸除上清液。
- 加入10 mL培养基,通过轻柔吹打将后肠组织分散成更小的片段,然后在95 × g条件下再次离心1分钟。
- 用iHO基础培养基重复步骤3.5,洗涤细胞2次。将细胞重悬于少量基础培养基中(约300–500 μL),并将约100 μL该悬液加入1.5 mL基底膜基质中。在此过程中,基底膜基质必须始终置于冰上,因其在室温下会迅速凝固。
- 将24孔板置于37 °C加热板上,每孔点样60 μL。短暂静置使其凝固,并在显微镜下检查细胞密度。
- 如需调整,可逐次向基底膜基质中添加更多后肠细胞悬液,直至达到所需浓度,然后将混合液点样至其余孔中。
- 在37 °C孵育10分钟;随后向24孔板的每孔中加入800 μL含生长因子的iHO基础培养基,各成分终浓度如下(参见表1):500 ng/mL R-脊椎蛋白-1(R-spondin-1)、100 ng/mL Noggin、100 ng/mL表皮生长因子(EGF)、3 μM CHIR99021、2.5 μM前列腺素E2和10 μM Y-27632二盐酸盐一水合物(ROCK抑制剂)。
- 每2–3天更换一次iHO基础培养基,若培养基出现颜色变化则立即更换。初次接种至基底膜基质后,培养7天再进行传代。通常在第3–4天即可观察到明显的球形结构。
- 若仅进行换液操作,则无需添加Y-27632,该成分仅在传代或接种时需要。
4. iHOs 的维持与传代
- 为实现缓慢解冻,在传代前24小时,将所需体积的基底膜基质置于加盖的冰桶中,于4 °C过夜放置。
- 吸除iHOs中的培养基,并向每孔加入500 μL细胞解离液(参见材料表)。于4 °C孵育40–50分钟,直至iHOs漂浮于溶液中。
- 可选步骤:使用生物安全柜内的成像系统,挑选具有理想形态的iHOs(参见材料表)。
- 轻柔地将iHOs/细胞解离液的悬浮液用移液器转移至15 mL锥形管中,尽量避免破坏iHOs结构。静置3–5分钟使iHOs沉降,随后吸除上清液及单个细胞。
- 将iHOs重悬于5 mL iHO基础生长培养基中,轻柔吹打洗涤。以95 × g离心2分钟。
- 在生物安全柜内,将24孔板置于37 °C的板式加热器上预热。
- 吸除上清液,将iHOs重悬于约300–500 μL基础生长培养基中,使用P1000移液器将iHOs吹打成较小的团块。注意所需施加的力度因iHO细胞系及成熟状态而异,建议起始时力度轻柔,必要时逐步增加。
- 取约100 μL的iHOs悬液(体积取决于溶液密度),加入1.5 mL基底膜基质中,短暂吹打混匀。
- 将1 × 60 μL的基底膜基质滴加至24孔板的一个孔中,静置约30秒使其凝固,随后在显微镜下检查密度。若密度过低,则向基质中补充更多iHOs。
- 重复步骤4.8,直至达到理想密度,然后将剩余基质均匀滴加至24孔板的其他孔中。
- 将板置于37 °C培养箱中孵育10分钟,随后每孔覆盖800 μL含生长因子的基础生长培养基,具体如步骤3.7所述。
- 为进行侵袭实验(如下所述),需在实验前4–5天按步骤4.1–4.10传代iHOs,但将步骤4.7中获得的120 μL基质-iHO混合液滴加至5 mm玻璃底微注射培养皿中。
- 与常规传代时将iHO悬液保持为液滴不同,应将液滴均匀铺展于培养皿底部,形成一层薄薄的基质层。随后加入2.5 mL含生长因子的基础生长培养基覆盖。
注意:若培养基中曾使用抗生素,则必须在微注射实验前去除,并替换为不含抗生素的补充培养基。
- 与常规传代时将iHO悬液保持为液滴不同,应将液滴均匀铺展于培养皿底部,形成一层薄薄的基质层。随后加入2.5 mL含生长因子的基础生长培养基覆盖。
5. 使用 rhIL-22 对 iHOs 进行预刺激
- 在侵袭实验前 18 小时,吸除 iHOs 中的培养基,并更换为新鲜的基础生长培养基(必须不含抗生素)。
- 向培养基中加入 rhIL-22,使其终浓度为 100 ng/mL。
6. 类器官显微注射与细胞内侵袭实验
- 实验前一天,将 S. Typhimurium SL1344 菌株接种于 10 mL LB 液体培养基中,37 °C 摇床过夜培养。
- 实验当天,若显微镜配有封闭式加热腔室,请提前开启并预热至 37 °C,以确保实验开始前达到所需温度。
- 用含钙和镁的 DPBS 稀释过夜培养的细菌至 600 nm 处光密度为 2(OD600),然后与酚红按 1:1 混合。
- 将含有 iHOs 的显微注射培养皿置于显微镜载物台上,取下盖子,调节焦距使 iHOs 清晰可见,准备开始注射。
- 打开显微注射仪及机械臂控制装置。确保注射压力设定为 600 kPa,注射时间为 0.5 秒。若注射臂尚未远离显微镜载物台,请旋转机械臂使其退至安全位置。
- 取出 6 μm 显微注射钻头,拆除包装及塑料套管,并从注射臂上取下夹持头。
- 用移液器吸取 10 μL 接种液加载至钻头中,操作时轻握钻头钝端。将钻头插入夹持头中,并重新安装至显微注射臂上。
- 轻柔移动机械臂,使针头位于显微注射培养皿上方 1–2 cm 处。使用机械臂控制器将针尖定位至培养皿中央,并缓慢下移至培养基表面略上方。
- 设置机械臂控制装置,使其在完成所有注射后自动将针头返回该位置。
- 调节显微镜焦距对准 iHOs,选择目标进行注射。将针头置于待注射 iHO 的右上方,随后向下并横向推进进入 iHO 腔内。
- 按下显微注射仪上的注射按钮,含酚红的细菌混合液将从针尖释放。每个 iHO 注射 3 次,每种实验条件至少注射 30 个 iHO。
注意:由于培养物中 iHO 的大小和结构存在异质性,需注射大量 iHO 以控制个体差异。 - 完成所有所需 iHO 的注射后,将显微注射板从载物台上取下,盖上盖子,并于 37 °C 孵育 90 分钟。
- 90 分钟后,吸除培养基,加入 3 mL 细胞剥离溶液,并于 4 °C 孵育 45 分钟。
- 将 iHOs 与细胞剥离溶液轻柔转移至含有 5 mL DPBS 的 15 mL 圆底离心管中。确保所有已注射的 iHOs 均已从培养板中转移(必要时可用 1 mL DPBS 冲洗培养板)。在 370 × g 条件下离心 3 分钟。
- 弃去上清液,将 iHOs 重悬于含 0.1 mg/mL 庆大霉素的基础生长培养基中(先加入 1 mL 培养基,用 P1000 移液器反复吹打约 50 次以破碎 iHOs,再加入 4 mL 培养基)。
- 于 37 °C 孵育 1 小时,以杀灭胞外细菌。
- 在 370 × g 条件下离心 3 分钟,吸除上清液,尽量去除残留液体。用 DPBS 洗涤 iHOs 一次,再次离心。
注意:此步骤旨在去除庆大霉素,因为残留的庆大霉素可能在细胞裂解后杀灭胞内细菌。 - 将 iHOs 重悬于 500 μL 裂解缓冲液(见材料表)中,通过手动吹打约 50 次使类器官解离。室温静置 5 分钟。
- 用 DPBS 对所得溶液进行 10 倍梯度稀释,制备 10-1、10-2 和 10-3 浓度的稀释液。将原液及各稀释液各取 3 份,每份 20 μL,点样于预热的 LB 琼脂平板上。
- 于 37 °C 过夜培养,进行菌落计数并计算菌落形成单位(CFU)。菌落数量反映的是细胞裂解过程中释放出的胞内细菌数量。
7. 细胞冻存与复苏
注意: 如前所述,可以对诱导性类器官(iHOs)进行深低温保存,并在需要时重新复苏。以下介绍了冷冻与解冻的具体步骤。
- 选择需要冻存的iHOs孔位,在孔中加入细胞解离液,于4 °C孵育40–50分钟,使iHOs悬浮于溶液中。
- 轻柔地将iHOs用移液器转移至15 mL锥形离心管中,静置使其沉淀。吸除培养基,并用基础生长培养基(不含生长因子)清洗iHOs一次。
- 以95 ×g离心2分钟,弃上清,加入适量细胞冻存液(参见材料表;按照生产商说明书使用),并将iHOs转移至冻存管中。
- 将冻存管置于-80 °C冰箱中过夜,以实现较缓慢的降温冻存;随后转移至液氮中长期保存。
- 复苏iHOs时,将冻存管在37 °C水浴或金属浴中快速解冻,然后轻柔地将内容物转移至10 mL基础生长培养基(不含生长因子)中。静置使iHOs沉淀,吸除上清,加入约300 μL新鲜的基础生长培养基。
- 切勿手动解离iHOs。将iHOs加入基底膜基质中,并按照第3节所述方法进行铺板。
结果
在分化过程开始后,细胞应依次经历定型内胚层形成阶段和后肠模式化阶段,然后嵌入基底膜基质中。随着诱导型类器官(iHOs)的成熟,将形成球状体,且含有大量污染物质的培养物会在数周内逐渐变得清晰。分化、嵌入及传代过程的示例图像见图1。
显微注射系统的设置如图2所示。将酚红/细菌溶液显微注射至iHOs中后,iHOs保持红色,从而可识别已感染的iHOs以避免重复注射。根据改良的庆大霉素保护实验对平板上的胞内细菌进行计数;经rhIL-22预刺激后,S. Typhimurium感染受到抑制,经rhIL-22处理后观察到的胞内细菌数量减少(图3)。我们还常规对感染的iHOs进行免疫染色或透射电镜(TEM)处理,以利于观察宿主肠上皮细胞与细菌之间的相互作用(图4)。
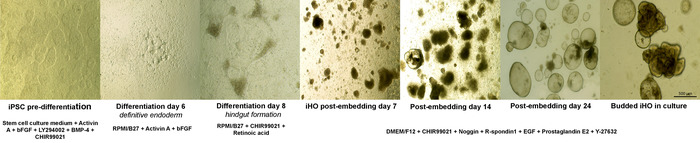
图1:iPSC向iHO的定向分化。iPSC向iHO分化的代表性过程,展示了所观察到的形态学变化以及驱动这些变化所需的生长因子。在特定浓度的激活素A(activin A)、FGF、BMP-4、LY294002和CHIR99021作用下,分化第4天形成定型内胚层。经过8天后,在特定浓度的CHIR99021和视黄酸作用下,定型内胚层发生模式化,形成后肠。包埋后可观察到球状体的形成。在使用添加了促肠增殖因子R-spondin 1、Noggin、EGF、CHIR99021和前列腺素E2的培养基,并在基底膜基质上持续传代培养后,球状体进一步发育为出芽状iHO。(图像拍摄于4x–10x放大倍数下)。请点击此处查看该图的放大版本。
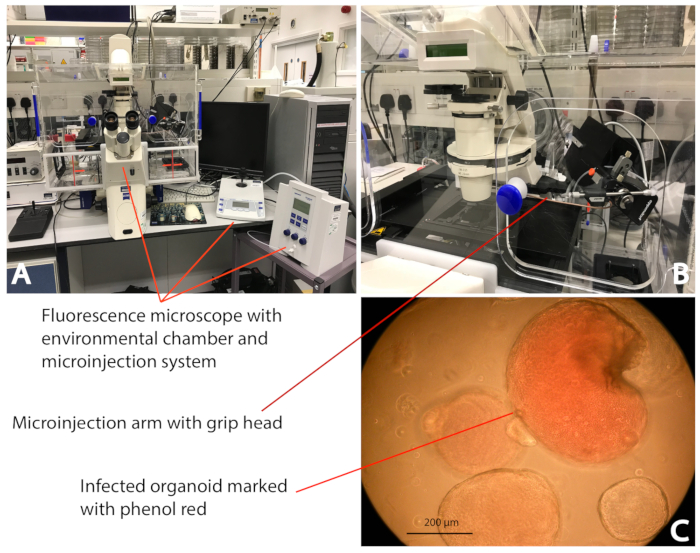
图2:iHO类器官的沙门氏菌(S. Typhimurium)显微注射。(A)置于环境培养箱内的显微注射系统(见材料表),可在受控环境(37 °C/5% CO2)下对iHO类器官进行注射。(B)通过连接至显微注射系统的微毛细管,将细菌接种物直接注入iHO类器官的腔内。(C)通过将细菌接种物与酚红混合,可清晰识别已被感染的iHO类器官,从而避免对同一类器官重复注射。图像以10倍放大倍数拍摄。请点击此处查看该图的高清版本。
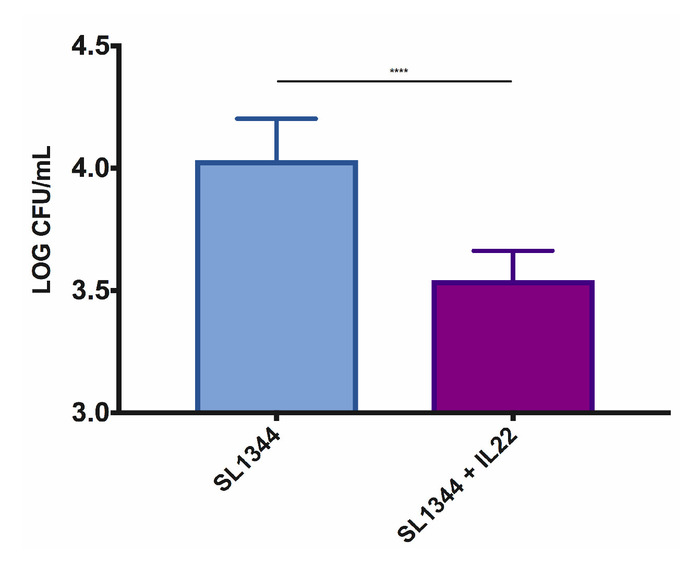
图3: 源自Kolf2细胞系的iHOs经rhIL-22预处理可限制 S. 鼠伤寒沙门氏菌SL1344侵入肠道上皮细胞 对于庆大霉素保护实验,iHOs 在感染前 18 小时经 100 ng/mL rhIL-22 处理或不做处理,并在感染后孵育 90 分钟。数据表示三次技术重复的三个生物学重复的均值 ± 标准误(SEM)。显著性检验采用 Mann-Whitney U 检验;****p < 0.0001. 请点击此处以查看此图的放大版本。
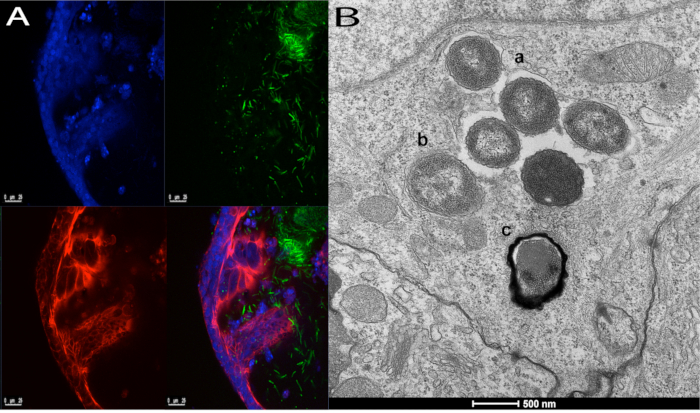
图4:IEC与鼠伤寒沙门菌SL1344的相互作用。 这些图板展示了注射了iHOs的样本 S. 鼠伤寒沙门氏菌SL1344,固定前孵育3小时,随后进行处理以用于(A) 免疫荧光或 (B透射电子显微镜。在图中 A,可见细菌位于iHO管腔内并与上皮细胞相互作用。细胞核用4′,6-二脒基-2-苯基吲哚(DAPI)双乳酸盐染色(蓝色),细胞膜用鬼笔环肽染色(红色),细菌用CSA-1染色(绿色)。图像为20倍放大倍数下拍摄。图示 B 展示了三种不同的细胞内加工途径 沙门氏菌 入侵后;可见细菌(a)内 沙门氏菌含液泡,(b)游离于细胞质中,以及(c) 发生自噬。 请点击此处以查看此图的放大版本。
| RPMI/B27 培养基 | |
| 组分: | 用量: |
| RPMI 1640 培养基(含谷氨酰胺补充剂) | 500 mL |
| B27 无血清添加剂 50x | 10 mL |
| iHO 基础生长培养基 | |
| 组分: | 用量: |
| 高级 DMEM/F12 培养基 | 500 mL |
| B27 无血清添加剂 50x | 10 mL |
| N2 无血清添加剂 100x | 5 mL |
| HEPES 1 M | 5 mL |
| L-谷氨酰胺 200 mM | 5 mL |
| iHO 基础生长培养基用生长因子 | |
| 组分: | 用量: |
| 重组人 R-spondin1 | 500 ng/mL |
| 重组人 Noggin | 100 ng/mL |
| 表皮生长因子 (EGF) | 100 ng/mL |
| 前列腺素 E2 | 2.5 µM |
| CHIR99021 | 3 µM |
| Y-27632 二盐酸一水合物 | 10 µM |
表1:培养基配方。
讨论
本方案概述了将人诱导多能干细胞(hiPSCs)分化为类肠器官(iHOs)的方法,以及将其作为模拟肠道感染模型的应用。下文阐述了该方案中的关键步骤,以及我们所做的任何修改或改进。
与先前发表的研究相比25,本方案简化了hiPSCs的分化过程。以往的方法需要将hiPSCs从其他hiPSC培养体系(例如依赖饲养层的hiPSC培养)转移至化学成分明确的培养基-聚乙烯醇(CDM-PVA)。这种向CDM-PVA的转移通常需要2–3周时间,并且需要每天更换hiPSC培养基。此外,该方法的效果并不稳定,部分分化实验会失败。因此,我们尝试使用相同的生长因子,但起始时采用在干细胞培养基中培养的hiPSCs(而非CDM-PVA),并在分化第0–3天用干细胞培养基替代CDM-PVA。迄今为止,该方法已在五个独立的hiPSC细胞系中成功应用,使分化过程更加迅速和高效。同时,该方法还允许在分化前无需在周末进行hiPSC培养,从而提高了hiPSC培养的灵活性。通过本方法生成的iHO细胞系已针对肠道上皮标志物进行了表型鉴定,鉴定方法如我们此前对hiPSC细胞系Kolf2、Yemz1和Lise1所描述的那样16,其表型与使用先前方案生成的iHOs无明显差异。
接种后,诱导类耳器官(iHOs)需要至少1个月的常规传代培养,每4–7天传代一次,以促进其成熟。需要注意的是,iHO的发育情况会因使用的诱导多能干细胞(iPSC)系以及初始培养密度的不同而存在一定差异。在最初几次传代过程中,培养物中可见一些非iHO的污染细胞,这些细胞最终会死亡,从而留下纯净的球形iHO培养物;大约4周后,iHO将出现出芽结构。此外,可在生物安全柜内使用成像系统,仅挑选具有理想形态的iHO进行传代。随着iHO逐渐成熟,通常需每6–7天传代一次,具体频率取决于其生长速度和培养密度。若出现以下任一情况,应在预定时间之前提前进行传代:iHO的腔隙开始充满死亡细胞、基底膜基质开始解体、iHO开始从基底膜基质中长出,或培养密度过高导致培养基迅速变黄。
一旦建立iHO培养物,若在任何时间观察到iHO的形态发生改变或与预期不符(例如,培养物保持球形,而不出现出芽),应通过免疫组织化学和针对细胞标志物的qPCR重新进行表型鉴定,以确保iHO内部细胞类型(如杯状细胞、潘氏细胞)的分化状态仍然完整。如果iHO不再分化,则应弃用并重新诱导分化,或复苏较早代次的iHO并重新培养。若iHO停止分化,可能的原因包括:培养物的使用时间过长(超过6个月)、生长因子活性下降(需确保按照生产商说明进行重悬,并分装成小份冷冻保存,避免反复冻融)、传代过于频繁或操作过于剧烈(通常应每周传代一次,若长期对iHO进行过于剧烈的手动解离,将导致其无法完全分化)。
我们通过RNA测序证实,感染前18小时给予IL-22刺激可上调抗菌基因及参与屏障防御表型的相关基因。在首次使用新型iHsO进行涉及rhIL-22(或若该系统用于其他细胞因子研究,则为替代性细胞因子)预刺激的实验之前,建议在iHOs经刺激后通过qPCR检测已知可被该细胞因子上调的基因(以IL-22为例,我们使用了DUOX2和LCN2)的活性,以确认受体表达及信号通路的完整性。在首次使用IL-22前,我们还进行了免疫组织化学染色以定位iHOs上的IL-22受体,确认IL-22受体表达位于基底侧,这意味着仅需将rhIL-22加入iHOs培养基中即可实现预刺激。然而,若受体表达于顶侧,则可能需要调整本方案,以实现配体的顶侧递送。
关于显微注射系统的常见问题通常与注射所需的精细针头有关。本实验中,我们使用商业化的钻头,其内径为 6 μm。虽然也可以通过玻璃毛细管自行拉制注射针头26,但这种方法制备的针头均匀性较差,可能导致针尖漏液或向诱导型类器官(iHOs)注射的体积不一致。必须确认注射已成功进入 iHO 的腔内,这也是使用酚红作为染料的原因之一:iHO 会明显膨胀并保留红色接种物,从而可明确判断哪些 iHO 已完成注射。有时针头会被 iHO 壁的碎片堵塞;若发生此情况,应先将针头尖端从 iHO 内部移出,然后按下显微注射系统上的 clean 按钮。该操作将产生短暂的较高气压,有助于清除堵塞。但同时也会导致部分细菌接种物泄漏到培养板上;因此,一旦发生此情况,应在所有培养板上重复执行 clean 操作,以确保每块板上的细菌接种量一致。由人诱导性多能干细胞(hiPSC)衍生的 iHO 的一个显著优势是其体积较大。相比之下,小鼠来源的肠类器官和原代人肠类器官要小得多(分别约为 ~100 μm 和 100–300 μm27),而 hiPSC 来源的 iHO 可达 250–1500 μm,因此对大量小型类器官进行注射将更为耗时。这使得在 hiPSC 衍生的 iHO 中开展更大规模的注射实验成为可能。此外,也可通过在感染后收集 iHO,并将其手动解离至 DPBS 中以释放腔内内容物,从而研究 iHO 的腔内成分。对于显微注射,我们建议使用高浓度的细菌。我们发现,较低浓度不足以引发构成 iHO 的肠上皮细胞(IECs)产生反应。此外,后续也难以通过显微镜观察定位已内化的细菌。不同细菌菌株可能需要优化其接种浓度。
总之,由人诱导多能干细胞(hiPSC)衍生的肠类器官(iHOs)为直接解析上皮细胞对肠道感染的反应提供了有前景的模型,无论是通过研究细胞内侵袭数量、成像分析、检测iHO上清液中的细胞因子水平,还是收集RNA以研究病原体暴露后的转录变化。未来,这类模型在建立仅感染人类的病原体感染模型方面将展现出更大的应用价值,同时也有望利用该技术推动研究的个性化,例如研究特定疾病相关基因突变及药物反应。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了惠康信托基金、盖茨基金会和剑桥生物医学研究中心的资助。E.A.L. 是由惠康信托基金支持的临床博士研究生。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2-巯基乙醇 | Sigma-Aldrich | M6250-10ML | |
| 5 mm 玻璃底注射培养皿 | MatTek 公司 | P50G-0-14-F | |
| 高级DMEM/F12 | Gibco | 12634010 | |
| Alexa Fluor 647 鬼笔环肽 | Life Technologies | A22287 | 以1:1,000浓度使用 |
| B27无血清添加剂 | Life Technologies | 17504044 | 储备液浓度50倍,终浓度1倍 |
| BMP-4 重组人蛋白 | R&研发 | PHC9534 | 储存浓度 10 μg/mL,终浓度为 10 ng/mL |
| 细胞回收溶液(细胞剥离溶液) | BD | 354253 | |
| CHIR99021 | Abcam | ab120890-5mg | 储备浓度 3 mM,终浓度 3 µM |
| IV型胶原酶粉末 | Life Technologies | 17104019 | 按0.1%重悬 |
| 康宁冷冻小瓶 | 康宁 | 430487 | |
| Costar TC 处理的 24 孔培养板 | 康宁 | CLS3527 | |
| DAPI 二乳酸盐 | Sigma-Aldrich | D9564-10MG | 使用浓度为 10 nM |
| 杜尔贝科’不含 MgCl₂ 或 CaCl₂ 的 PBS | Life Technologies | 14190-144 | |
| 杜尔贝科’s PBS(含 MgCl)2 和 CaCl2) | Sigma-Aldrich | D8662-100ML | |
| 表皮生长因子 | R&研发 | 236-EG-200 | 储存浓度 100 μg/mL,终浓度 100 ng/mL |
| Eppendorf TransferMan NK2(显微注射系统) | Eppendorf | 920000011 | |
| Eppendorf Femtojet express (显微注射系统) | Eppendorf | 5248 000.017 | |
| Essential 8 Flex 培养基试剂盒(干细胞培养基) | Life Technologies | A2858501 | |
| EVOS XL 成像系统(内置罩内成像系统) | |||
| 庆大霉素 | Sigma-Aldrich | G1272-10ML | 储存浓度 10 mg/mL,终浓度 0.1 mg/mL |
| 山羊抗沙门氏菌,CSA-1 | 英硕特生物技术 | 02-91-99 | 以1:20的浓度使用 |
| HEPES 1 M | Life Technologies | 15630056 | |
| KnockOut血清替代物(serum replacement) | Gibco | 10828010 | |
| GlutaMAX 补充剂(谷氨酰胺补充剂) | 赛默飞世尔科技 | ||
| L-谷氨酰胺 | Life Technologies | A2916801 | 储备浓度 200 mM,终浓度 2 mM |
| LY294002 | 普洛麦格英国 | V1201 | 储备浓度 50 mM,终浓度 10μM |
| 基质胶,GFR,无酚(基底膜基质) | 康宁 | 356231 | |
| MEM非必需氨基酸 溶液(100倍浓缩) | Gibco | 11140035 | |
| N2无血清补充剂 | Life Technologies | 17502048 | 储备液浓度100倍,终浓度1倍 |
| 青霉素-链霉素 | Life Technologies | 15140163 | 储存浓度 10,000 U/mL,终浓度 100 U/mL |
| 酚红 | Sigma-Aldrich | P0290-100ML | |
| Piezo钻头小鼠ICSI,25° 翻转角,6 µ毫米内径 | Eppendorf | 5195000087 | |
| 前列腺素E2 | Sigma | P0409-1MG | 储备浓度 2.5 mM,终浓度 2.5 mM |
| 重组人碱性成纤维细胞生长因子 | R&研发 | 233-FB-025 | 储存浓度 100 μg/mL,终浓度为 100 ng/mL |
| 重组人IL-22 | R&研发 | 6057-NG-100 | 储存浓度 100 μg/mL,终浓度 100 ng/mL |
| 重组人Noggin | R&研发 | 6057-NG-100 | 储存浓度 100 μg/mL,终浓度为 100 ng/mL |
| 重组人 R-spondin1 | R&研发 | 4645-RS-025 | 储存浓度 25 mg/mL,终浓度 500 ng/mL |
| 重组人/小鼠/大鼠激活素A | R&研发 | 338-AC-050 | 储存浓度 100 μg/mL,终浓度 100 ng/mL |
| 复苏细胞培养冻存液(细胞冻存液) | Gibco | 12648010 | |
| 视黄酸 | Sigma-Aldrich | R2625-50MG | 储备浓度 3 μM,终浓度 3 mM |
| 含Glutamax补充剂的RPMI 1640培养基(含L-谷氨酰胺补充剂的RPMI培养基) | Life Technologies | 61870010 | |
| Triton X-100(细胞裂解缓冲液) | Sigma-Aldrich | RES9690T-A101X | 使用浓度为1% |
| Versene(EDTA 溶液) | Life Technologies | 15040066 | |
| Vitronectin XF | Stemcell Technologies | 7180 | |
| Y-27632 二盐酸一水合物 | Sigma-Aldrich | Y0503-1MG | 储备浓度 3 mM,终浓度 10 mM |
参考文献
- Barker, N., et al. Lgr5(+ve) stem cells drive self-renewal in the stomach and build long-lived gastric units in vitro. Cell Stem Cell. 6 (1), 25-36 (2010).
- Huch, M., Boj, S. F., Clevers, H. Lgr5(+) liver stem cells, hepatic organoids and regenerative medicine. Regenerative Medicine. 8 (4), 385-387 (2013).
- Huch, M., et al. Unlimited in vitro expansion of adult bi-potent pancreas progenitors through the Lgr5/R-spondin axis. The EMBO Journal. 32 (20), 2708-2721 (2013).
- Boj, S. F., et al. Organoid models of human and mouse ductal pancreatic cancer. Cell. 160 (1-2), 324-338 (2015).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- Mariani, J., et al. Modeling human cortical development in vitro using induced pluripotent stem cells. Proceedings of the National Academy of Sciences of the United States of America. 109 (31), 12770-12775 (2012).
- Dye, B. R., et al. In vitro generation of human pluripotent stem cell derived lung organoids. eLife. 4, (2015).
- Karthaus, W. R., et al. Identification of multipotent luminal progenitor cells in human prostate organoid cultures. Cell. 159 (1), 163-175 (2014).
- Matano, M., et al. Modeling colorectal cancer using CRISPR-Cas9-mediated engineering of human intestinal organoids. Nature Medicine. 21 (3), 256-262 (2015).
- Ogawa, M., et al. Directed differentiation of cholangiocytes from human pluripotent stem cells. Nature Biotechnology. 33 (8), 853-861 (2015).
- Leha, A., et al. A high-content platform to characterise human induced pluripotent stem cell lines. Methods. 96, 85-96 (2016).
- Drost, J., et al. Sequential cancer mutations in cultured human intestinal stem cells. Nature. 521 (7550), 43-47 (2015).
- Schreiber, F., Arasteh, J. M., Lawley, T. D. Pathogen Resistance Mediated by IL-22 Signaling at the Epithelial-Microbiota Interface. Journal of Molecular Biology. 427 (23), 3676-3682 (2015).
- Sabat, R., Ouyang, W., Wolk, K. Therapeutic opportunities of the IL-22-IL-22R1 system. Nature Reviews Drug Discovery. 13 (1), 21-38 (2014).
- Kotenko, S. V., et al. Identification of the functional interleukin-22 (IL-22) receptor complex: the IL-10R2 chain (IL-10Rbeta ) is a common chain of both the IL-10 and IL-22 (IL-10-related T cell-derived inducible factor, IL-TIF) receptor complexes. Journal of Biological Chemistry. 276 (4), 2725-2732 (2001).
- Forbester, J. L., et al. Interleukin-22 promotes phagolysosomal fusion to induce protection against Salmonella enterica Typhimurium in human epithelial cells. Proceedings of the National Academy of Sciences of the United States of America. 115 (40), 10118-10123 (2018).
- Nozaki, K., et al. Co-culture with intestinal epithelial organoids allows efficient expansion and motility analysis of intraepithelial lymphocytes. Journal of Gastroenterology. 51 (3), 206-213 (2016).
- Dijkstra, K. K., et al. Generation of Tumor-Reactive T Cells by Co-culture of Peripheral Blood Lymphocytes and Tumor Organoids. Cell. 174 (6), 1586-1598 (2018).
- Schlaermann, P., et al. A novel human gastric primary cell culture system for modelling Helicobacter pylori infection in vitro. Gut. 65 (2), 202-213 (2016).
- Ettayebi, K., et al. Replication of human noroviruses in stem cell-derived human enteroids. Science. 353 (6306), 1387-1393 (2016).
- Saxena, K., et al. Human Intestinal Enteroids: a New Model To Study Human Rotavirus Infection, Host Restriction, and Pathophysiology. Journal of Virology. 90 (1), 43-56 (2016).
- Karve, S. S., Pradhan, S., Ward, D. V., Weiss, A. A. Intestinal organoids model human responses to infection by commensal and Shiga toxin producing Escherichia coli. PLOS ONE. 12 (6), e0178966(2017).
- Heo, I., et al. Modelling Cryptosporidium infection in human small intestinal and lung organoids. Nature Microbiology. 3 (7), 814-823 (2018).
- Garcez, P. P., et al. Zika virus impairs growth in human neurospheres and brain organoids. Science. 352 (6287), 816-818 (2016).
- Forbester, J. L., Hannan, N., Vallier, L., Dougan, G. Derivation of Intestinal Organoids from Human Induced Pluripotent Stem Cells for Use as an Infection System. Methods in Molecular Biology. , (2016).
- Wilson, S. S., Tocchi, A., Holly, M. K., Parks, W. C., Smith, J. G. A small intestinal organoid model of non-invasive enteric pathogen-epithelial cell interactions. Mucosal Immunology. 8 (2), 352-361 (2015).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
重印与许可
