本文介绍了一种改进继发性细菌性肺炎研究的方法,通过非侵入性方式将病原体接种至下呼吸道,随后进行病原体回收和转录组分析。这些操作步骤具有可重复性,且无需使用套管、导丝或光纤电缆等特殊设备即可完成。
本文内容
摘要
摘要
流感感染后继发的细菌性肺炎在美国始终位居十大主要死因之列。迄今为止,小鼠共感染模型是研究原发性和继发性感染病理机制的主要工具。尽管该模型应用广泛,但不同研究在病原体接种方法、接种体积和效率方面仍存在显著差异。此外,这些研究在阐明病原体如何直接影响感染后疾病进展方面仍存在较大不足。本文提供了一种精确的病原体递送、回收与分析方法,适用于小鼠继发性细菌性肺炎模型。我们证明,经气管灌注可将可控体积的病原体高效、准确地直接且均匀地递送至下呼吸道。通过切除肺组织,可回收并定量病原体负荷。在切除感染肺组织后,我们描述了一种提取高质量病原体RNA的方法,用于后续转录组分析。该方法无需手术操作,也无需使用特殊实验设备,具有操作简便、可重复性强的优点,为研究病原体在继发性细菌性肺炎中的作用提供了可靠策略。
引言
流感感染后继发的细菌性肺炎是美国的主要死亡原因之一,也是当前研究的热点领域1,2。尽管已有大量研究采用小鼠模型来模拟继发性细菌性肺炎,但在病原体接种和检测方法上仍存在不一致之处3,4,5。此外,虽然以往许多研究主要关注流感引起的免疫调节作用如何导致对继发性细菌感染的易感性增加,但近期的研究数据表明,细菌病原体自身毒力的调控在疾病发生过程中同样起着重要作用6,7,8,9。这些新发现要求建立更为精确的方法,以在共感染的小鼠模型中深入探究继发性细菌性肺炎中病原体的应答机制。
在流感共感染模型中,宿主生物体在接种继发性细菌病原体之前,会因原发性流感感染而被有意削弱免疫功能。为了最大程度地模拟在人类宿主中观察到的疾病发病机制,必须严格控制原发性和继发性病原体的接种剂量,以便分别观察每种感染病原体的独立作用以及联合作用。在小鼠中建立呼吸道感染的最常用方法是经鼻腔接种3,4,5,6,10。尽管该方法技术操作简便,在某些单一病原体感染的应用中可能是合适的,但其在共感染模型中并不适用,因为文献报道中的滴注操作、接种体积和感染效率存在高度变异性3,4,5,6。
为了更全面地理解继发性细菌性肺炎的发病机制,必须同时考虑宿主和病原体的共同作用。为此,我们建立了一种简单且可重复的方法,用于从感染的肺组织中回收具有活性的细菌及病原体RNA。该方法采用简化的、非侵入性的气管内滴注技术,随后进行细菌RNA的分离。本文所述的气管内滴注操作与先前报道的方法类似,不仅限于病原体递送11,12,13。该特定操作的优势在于成本低,且无需使用套管、导丝或光纤等特殊设备;此外,由于该方法为非侵入性,可确保小鼠受试对象承受最小应激,减少接种操作本身引发的炎症反应,并为同时感染多个动物提供高效的递送途径。简而言之,将异氟烷麻醉的小鼠通过门齿悬吊固定,用镊子轻轻夹住舌头,随后将预先装有病原体的弯曲钝头21号针头插入气管并释放病原体。该操作的有效性可通过染料在肺部均匀分布的视觉确认以及细菌载量的回收得以验证。接着,我们展示了如何从感染的肺组织中回收具有活性的Staphylococcus aureus(S. aureus),并描述了一种可重复的方法以分离高质量的病原体RNA。
方案
所有方法均符合美国国立卫生研究院指南,并已获得蒙大拿州立大学机构动物照护与使用委员会(IACUC)的批准。
1. 气管内灌注
- 准备一个工作区,包含以下用品:插管平台、无菌1 mL注射器、无菌钝头镊子、无菌21号钝头针头,以及两个锥形管用于存放注射器和镊子。
注意:插管平台可购买商用产品,也可自行制作。本文使用的插管平台由0.25英寸有机玻璃制成。简要步骤为:对有机玻璃加热后将其弯曲成约65°的内角。在插管平台外侧,相距3英寸处固定两个机用螺钉,并在两螺钉之间悬挂一根橡皮筋。 - 通过连续稀释样品制备病原体接种液,使其在总体积为50 µL时达到所需终浓度。将接种液置于冰上保存。
- 佩戴无菌手套,将21 G钝头针头弯曲至约35°。
注意:每只小鼠需使用单独的针头。 - 将弯曲后的21 G钝头针头连接至1 mL注射器。先吸取100 µL空气垫,再吸入50 µL感染性物质。将装好液体的针头和注射器放置在惯用手易于取用的位置。
- 使用4%异氟烷/氧气混合气体或其他经IACUC批准的麻醉方法对小鼠进行深度麻醉。当呼吸频率减慢至约每5–8秒一次吸气时,通常表明已达到适当麻醉深度;可通过夹捏肢体并观察小鼠无反应来确认。
注意:该麻醉方法可提供约1.5分钟的充分麻醉时间。此时间足以供本实验室成员学习并完成该滴注操作;但也可采用其他机构批准的麻醉方法11,12,13。 - 将麻醉后的小鼠从麻醉舱中取出,并将其上颌门齿悬挂在插管平台上。
- 为建立通向气管的清晰通路,使用钝头镊子轻轻夹住舌头并将其拉出口腔外。随后将舌头从镊子转移至非惯用手的拇指与食指之间固定。
- 继续保持用非惯用手固定舌头,并拿起预先装液的注射器。将针头弯曲端朝远离身体方向,将针头插入口腔至舌根部。
- 当针头位于舌根部时,轻轻倾斜手腕,使针头略微向远离身体方向推进。此步骤可确保针头进入气管而非食管。
- 缓慢将针头沿气管向下引导;当针头通过声带时,常可感受到轻微震动。继续推进针头直至遇到隆突时产生轻微阻力。
- 将针头轻微向上(近端方向)提起,使其悬停于隆突上方。此位置可确保液体进入左右主支气管。完全压下注射器活塞以输送感染性物质。随后向上提起针头将其从气管中取出,并妥善丢弃。
- 通过下压橡皮筋将小鼠从插管平台上取下,但仍保持小鼠直立姿势。用手指直接按压鼻孔以阻塞鼻腔通气道。维持该姿势约1分钟,或直至观察到数次深呼吸为止。
注意:此最后一步可确保全部接种液体被送入下呼吸道。 - 将小鼠放回笼中,并观察其完全从麻醉状态恢复。
2. 感染肺组织的切除
- 在超净工作台内操作以保持无菌状态,准备以下物品:天平和无菌称量皿、解剖平台、包含剪刀和镊子的解剖工具包、无RNase的无菌PBS以及无菌纱布。
- 使用CO2或其他经IACUC批准的安乐死方法处死感染小鼠。
- 将感染小鼠置于解剖平台上,并用大头针固定四肢末端。用乙醇喷洒小鼠体表,以帮助维持操作表面的无菌状态。
- 从脐部开始,用镊子提起皮肤,并向上至气管基部做一切口。抓住切口两侧的皮肤,将其从身体上拉开,并剪断组织连接。
注意:可在皮肤上做数个横向切口,以更充分暴露胸腔区域。 - 从剑突基部开始,做一小切口,意图刺破膈肌。这将导致胸腔内压力升高,从而使肺组织回缩。待肺回缩后,继续延长切口以游离膈肌。
- 沿肋骨两侧做切口以移除肋骨,从而完全暴露胸腔和肺组织。
- 为切除肺组织,用镊子夹住心脏基部并向上提起。将剪刀置于肺后方,一边继续向上提拉心脏,一边小心剪断肺与周围组织的连接。
- 肺组织切除后,将其放置于无菌纱布上,并移除心脏。可用镊子将心脏从肺组织上提起,并剪断残留的组织连接,即可轻松去除心脏。
- 将肺组织转移至已去皮的称量皿中,记录其重量。
- 称重后,将肺组织转移至无菌磷酸盐缓冲液(PBS)中,并暂时置于冰上保存,直至进行后续的病原体回收与分析步骤。
3. 病原体回收与分析
- 在超净工作台内继续操作,准备以下用品:组织研磨器、无菌无RNA酶的PBS、添加了β-巯基乙醇(1:100)的RLT缓冲液,以及1.5 mL无RNA酶的微量离心管。
警告:β-巯基乙醇若接触皮肤、被摄入、接触眼睛或吸入,可能具有危害性。β-巯基乙醇稀释至RLT缓冲液中时,应在通风橱内进行。 - 首先向组织研磨器中加入1 mL无菌无RNA酶的PBS。加液完成后,将组织研磨器置于冰上保存。
- 准备一系列无菌无RNA酶的梯度稀释管,用于定量从感染肺组织中回收的细菌载量。最简便的方法是先向每支微量离心管中加入900 µL无菌水,随后对病原体接种物进行梯度稀释。
注意:准确计数病原体所需的稀释管数量取决于初始病原体接种量和感染持续时间,需通过实验确定。 - 使用无菌镊子将肺组织转移至已准备好的组织研磨器中,通过向下按压并旋转研磨杵,彻底匀浆组织。
- 打开组织研磨器,用移液器吸取100 µL匀浆样品加入第一支已准备好的梯度稀释管中。对样品进行系列稀释后,接种于营养琼脂平板以计数菌落形成单位(CFU)。CFU结果可表示为CFU/mL或CFU/mL/mg肺组织。
注意:在此步骤中,可额外取出200 µL匀浆样品用于病毒RNA纯化(见材料表),或储存于-80°C以备后续分析。 - 在取出样品用于CFU测定和/或病毒RNA分离后,重新装入研磨杵,于4°C下以4,000 rpm(3724 × g)离心10分钟,使匀浆组织沉淀。
- 使用移液器小心吸出沉淀样品的上清液,并转移至1.5 mL微量离心管中。
注意:上清液不含细菌,可储存于-80°C,用于分析可溶性宿主因子及病原体分泌因子。 - 用移液器吹打或涡旋振荡,将匀浆组织沉淀重悬于700 µL RLT-β-巯基乙醇缓冲液中,并将样品转移至无菌无RNA酶的1.5 mL微量离心管中。
注意:此时样品可在-80°C保存数月。 - 使用RNA纯化试剂盒(见材料表)并稍作修改以纯化RNA;参见Voyich等200814。
- 将匀浆后的肺组织悬液转移至含有0.1 mm二氧化硅珠的2 mL微量离心管中,使用珠磨仪在6 m/s条件下处理20秒。
- 将样品以1,500 rpm离心3分钟。离心后,用移液器将上清液转移至新的1.5 mL微量离心管中。
- 向样品中加入350 µL 96%–100%乙醇,通过移液吹打或倒置充分混匀。
- 将700 µL样品转移至置于2 mL收集管中的纯化柱中。以≥8,000 × g离心15秒,弃去穿流液。将剩余样品按上述方法再次通过同一纯化柱。
- 用700 µL RW1缓冲液洗涤纯化柱,以≥8,000 × g离心15秒。弃去穿流液,将硅胶膜纯化柱转移至新的2 mL收集管中。
- 向纯化柱中加入500 µL RPE缓冲液,以≥8,000 × g离心15秒进行洗涤。弃去穿流液。
- 向RNeasy纯化柱中再加入500 µL RPE缓冲液,以8,000 × g离心2分钟。弃去穿流液后,再以≥10,000 × g离心1分钟。
- 为洗脱纯化的RNA,首先将纯化柱转移至新的1.5 mL无RNA酶微量离心管中。向纯化柱的硅胶膜上直接加入50 µL无RNA酶水,以≥8,000 × g离心1分钟。
注意:洗脱的RNA可再次通过同一纯化柱,以提高RNA得率。 - 向纯化的RNA中加入50 µL无RNA酶水,使总体积达到100 µL。随后向样品中加入350 µL RLT-β-巯基乙醇缓冲液和250 µL 96%–100%乙醇,通过移液吹打或倒置充分混匀。
- 将样品加入置于收集管中的纯化柱,以≥8,000 × g离心15秒。弃去穿流液,更换收集管。
- 向纯化柱中加入350 µL RW1缓冲液进行洗涤,随后以≥8,000 × g离心15秒。
- 通过将10 µL DNase原液(750 Kunitz单位/mL)加入70 µL RDD缓冲液中,配制约含27 Kunitz单位的DNase溶液。将80 µL DNase溶液直接加至硅胶膜上,室温孵育15分钟。
- 用350 µL RW1缓冲液洗涤纯化柱,以≥8,000 × g离心15秒,弃去穿流液。
- 重复步骤3.9.6–3.9.8以进一步纯化RNA。
注意:建议按照步骤3.9.9–3.9.10及3.9.6–3.9.8重复RNA纯化步骤(跳过DNase处理步骤3.9.11–3.9.13),该额外纯化步骤可获得高质量RNA。
- 使用分光光度计在260 nm处测定吸光值以确定RNA浓度,在260:280 nm处测定吸光值以评估纯度。获得RNA得率后,将各样品RNA浓度标准化至50 ng/µL。
注意:建议将RNA分装为多份50 ng/µL的等分试样,以避免反复冻融导致RNA降解。 - 将纯化的RNA储存于-80°C或立即用于转录本分析。
注意:在以往发表的研究中,通常将3–5只小鼠的RNA混合用于转录本分析。通过优化上述技术,已通过实验确定单只小鼠的RNA量足以满足转录本分析需求(80–120 ng/µL)。
结果
图1 使用0.1%(重量/体积)考马斯亮蓝溶液,证明气管内滴注可将接种物直接且均匀地递送至下呼吸道。图2 显示从匀浆肺组织中直接回收的细菌(S. aureus)菌落形成单位(CFU)。图3 通过绘制单只小鼠的输入与回收CFU,展示该系统在下呼吸道中实现接种物精确递送与回收的应用。图4 显示细菌看家基因gyrB的qRT-PCR扩增曲线,证明可直接从感染肺组织中提取细菌RNA,且DNA污染极低。图5 显示利用流感病毒A型M片段的qRT-PCR扩增构建标准曲线,证明病毒RNA可直接从感染肺组织中提取。
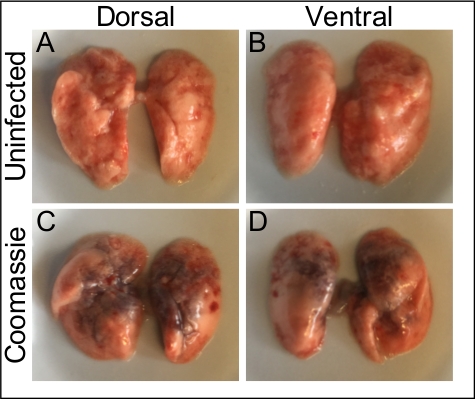
图1:经气管灌注可实现向下呼吸道的均匀分布。(A,B)通过气管灌注无菌PBS后,从小鼠体内取出未感染的肺组织,并分别从(A)背侧和(B)腹侧进行拍照。(C,D)向麻醉小鼠经气管给予50 µL 0.1%考马斯亮蓝溶液。(C)背侧。(D)腹侧。请点击此处查看该图的高清版本。
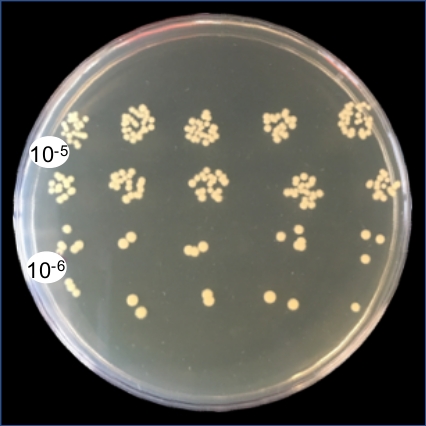
图 2:感染后肺组织匀浆中细菌CFU回收的代表性结果。在金黄色葡萄球菌(S. aureus)感染后一天切除肺组织。匀浆后,取100 µL肺匀浆液进行10-6梯度稀释。为计数回收的CFU,分别取10-5和10-6稀释度的10 µL样品点种于胰蛋白胨大豆琼脂(TSA)平板,于37 °C、5% CO2条件下过夜培养。请点击此处查看该图的放大版本。
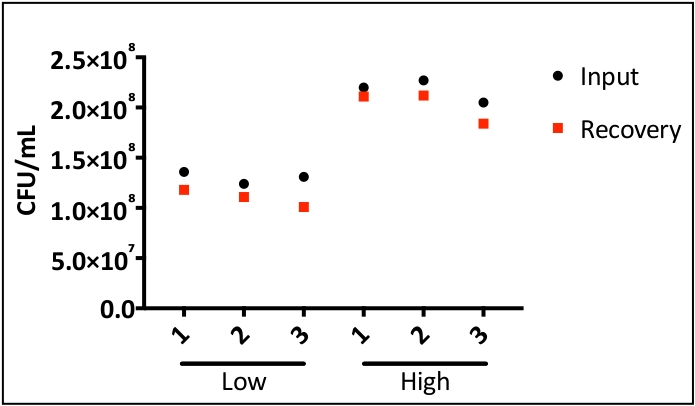
图3:经气管给药后病原体接种物的精确递送与回收。 将小鼠分为两组,每组三只。小鼠经气管灌注接种 S. aureus,浓度分别为 1 × 10⁸(低)和 2 × 10⁸(高)CFU/mL。感染后1小时处死小鼠并切除肺组织,以评估灌注与回收的精确性。将接种的细菌及从肺匀浆中回收的细菌分别接种于TSA(胰蛋白胨大豆琼脂)平板上培养。细菌输入量与回收量之间未观察到显著差异。请点击此处查看该图的放大版本。
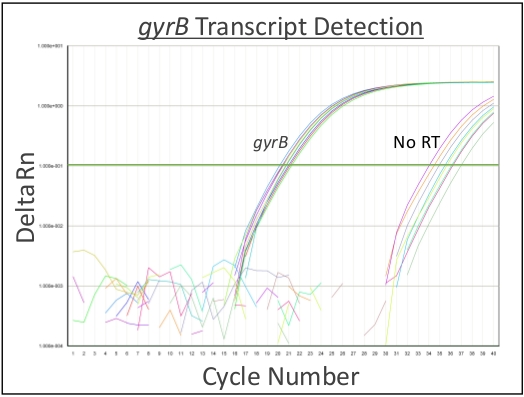
图 4:代表性细菌 RNA 回收与纯度检测结果。 经气管注入 1 × 10⁸ CFU/50 µL 的 S. aureus 后 6 小时,处死小鼠。取出肺组织并进行匀浆,随后将肺匀浆液重悬于 RLT-β-巯基乙醇缓冲液中。RNA 的纯化步骤如 3.9 步所述14。采用 qRT-PCR 检测细菌管家基因 gyrB 的转录本。设置不含逆转录酶的对照(nRT)以验证所提取 RNA 的纯度。在阈值为 0.1 时,gyrB 转录本的平均检出循环数分别为 21.1、20.3 和 20.5;而 nRT 对照组的平均检出循环数分别为 35.9、35.5 和 35.0。实验包含 3 个生物学重复,每个生物学重复包含 3 个技术重复。 请点击此处查看本图的放大版本。
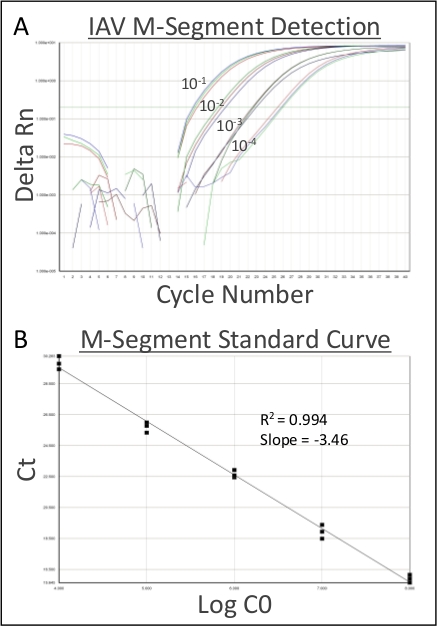
图 5:病毒 RNA 回收的代表性结果。 小鼠经气管接种 100 PFU/50 µL 流感病毒 A/PR/8/1934(H1N1) 后第 6 天实施安乐死。取肺组织并进行匀浆,收集 200 µL 匀浆液,经 70 µm 细胞滤筛过滤后用于病毒 RNA 的纯化。纯化后的 RNA 进行连续稀释(10-1–10-4),随后对流感病毒 A 的 M 基因片段进行扩增。(A)从感染肺组织中回收的流感病毒 A RNA 在稀释度为 10-1–10-4 时的扩增曲线。(B)流感病毒 A M 基因片段的标准曲线。阈值 = 0.2,R2 = 0.994,斜率 = -3.46。 请点击此处查看该图的高清版本。
讨论
使用该模型可提供一种高效且可重复的研究继发性细菌感染的方法。通过精确控制病原体接种物的递送,能够更准确地观察每种病原体单独及联合作用的效果。相较于常见的经鼻滴注方法,其操作上的不足可能导致了文献中接种剂量和浓度的不一致。缺乏精确的小鼠模型来研究继发性细菌性肺炎,很可能是导致发现与细菌特异性反应相关、影响肺部共感染严重程度的因素进展迟缓的原因。建立一种可重复的模型以研究继发性细菌感染期间毒力因子的表达,可能有助于识别可用于缓解此类感染的疫苗或药物靶点。
气管内滴注步骤对于成功建立下呼吸道感染以及后续对病原体的分析至关重要。在学习该技术时,建议在使用感染性材料前先用染料进行练习(如方法部分所述)。使用染料可直接观察接种物是否进入呼吸道。常见的错误是将钝针插入食管而非气管,这会导致接种物被送入胃部而非肺部。为纠正此错误,应将针头进一步远离身体方向倾斜,并将其插入气管内。一旦掌握,该操作将非常高效,可用于开展涉及大量小鼠的实验。通过分批麻醉小鼠,每只小鼠的气管内滴注操作可在约30秒内完成,此外,每只小鼠肺组织的切除可在2至3分钟内完成。
从感染组织中回收具有活性且纯度高的细菌RNA对于转录分析至关重要。RNase无处不在,可能迅速破坏实验结果15。某些方法包括使用RNase抑制剂;然而,我们发现将样品在RLT-β-巯基乙醇中于-80 °C冷冻,或立即使用无RNase的离心管和试剂进行RNA提取,均能有效减少RNase污染。此外,我们建议每次最多同时纯化六个样品。若超过六个样品,可能导致各步骤之间间隔时间延长,最终引起RNA降解。RNA纯化后,也应避免不必要的反复冻融。因此,若需对同一样品进行多次分析,建议将纯化的RNA分装后于-80 °C保存。
除了本文综述的技术外,还可通过在切除和匀浆肺组织之前进行支气管肺泡灌洗来补充本方法16。该操作可通过灌洗整个下呼吸道完成,也可使用缝合线结扎支气管树的一个分支,然后通过另一未结扎的分支进行灌洗。这种方法通常会导致病原体回收量减少,但可获得可用于分析乳酸脱氢酶活性、细胞群体特征以及细胞因子谱等信息的样本16。这些数据共同有助于更全面地理解继发性细菌性肺炎期间发生的宿主-病原体相互作用。
尽管上述方法是在继发性细菌性肺炎的背景下讨论的,但它们同样适用于任何小鼠下呼吸道感染模型,特别是那些需要精确控制接种物递送和回收的实验。此外,与其他许多感染途径类似,气管内滴注法也可用于非感染性应用,例如治疗药物和环境化合物的给药12。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢蒙大拿州立大学的 Nicole Meissner 医学博士/博士在建立气管内滴注方法过程中提供的帮助。本研究由美国国立卫生研究院(资助号:NIH-1R56AI135039-01A1、GM110732、R21AI128295、U54GM115371)以及蒙大拿大学系统研究计划(51040-MUSRI2015-03)和蒙大拿州立大学农业实验站的资金支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 裂解矩阵B | MP Biomedicals | 6911100 | 文中称为 "0.1 mm二氧化硅珠" |
| 21号钝头针 | SAI | B21-150 | 建议使用1.5"长度。 |
| 无RNase的DNase试剂盒 | Qiagen | 79254 | 文中所用的DNase。 |
| FastPrep-24 Classic仪器 | MP Biomedicals | 116004500 | FastPrep FP120已不再供应。文中称为 "珠磨破碎仪" |
| TaqMan AIV-Matrix试剂 | Applied Biosystems | 4405543 | 甲型流感病毒M片段qRT-PCR试剂盒。 |
| 插管支架 | Kent Scientific | ETI-MES-01 | 文中称为 "插管平台"。视频中使用的插管平台为自制。 |
| RNeasy Mini试剂盒 | Qiagen | 74106 | RNA纯化试剂盒;包含RNeasy柱、RLT缓冲液、RW1缓冲液和RPE缓冲液 |
| QIAamp病毒RNA Mini试剂盒 | Qiagen | 52904 | 病毒RNA纯化试剂盒。 |
| 组织研磨器 | Thermo Fisher Scientific | 02-542-08 | |
| 2-巯基乙醇(β-巯基乙醇) | Calbiochem | UN2966 |
参考文献
- Xu, J., Murphy, S. L., Kochanek, K. D., Bastian, B. A. National Vital Statistics Reports Deaths: Final Data for 2013. National Center for Health Statistics. 64 (2), at http://www.cdc.gov/nchs/data/nvsr64/nvsr64_02.pdf 1(2013).
- Morris, D. E., Cleary, D. W., Clarke, S. C. Secondary Bacterial Infections Associated with Influenza Pandemics. Frontiers in Microbiology. 8, 1041(2017).
- Lee, M., Arrecubieta, C., Martin, F. J., Prince, A., Borczuk, A. C., Lowy, F. D. A Postinfluenza Model of Staphylococcus aureus Pneumonia. The Journal of Infectious Diseases. 201 (4), 508-515 (2010).
- Shepardson, K. M., et al. Differential Type I Interferon Signaling Is a Master Regulator of Susceptibility to Postinfluenza Bacterial Superinfection. mBio. , (2016).
- Miller, M. A., et al. Visualization of Murine Intranasal Dosing Efficiency Using Luminescent Francisella tularensis: Effect of Instillation Volume and Form of Anesthesia. PLOS ONE. 7 (2), 31359(2012).
- Robinson, K. M., et al. Influenza a virus exacerbates staphylococcus aureus pneumonia in mice by attenuating antimicrobial peptide production. Journal of Infectious Diseases. 209 (6), 865-875 (2014).
- Reddinger, R. M., Luke-Marshall, N. R., Hakansson, A. P., Campagnari, A. A. Host physiologic changes induced by influenza a virus lead to Staphylococcus aureus biofilm dispersion and transition from asymptomatic colonization to invasive disease. mBio. 7 (4), (2016).
- Borgogna, T. R., et al. Secondary Bacterial Pneumonia by Staphylococcus aureus Following Influenza A Infection Is SaeR/S Dependent. The Journal of Infectious Diseases. 218 (5), 809-813 (2018).
- Shahangian, A., et al. Type I IFNs mediate development of postinfluenza bacterial pneumonia in mice. Journal of Clinical Investigation. 119 (7), 1910-1920 (2009).
- McAuley, J. L., et al. Expression of the 1918 Influenza A Virus PB1-F2 Enhances the Pathogenesis of Viral and Secondary Bacterial Pneumonia. Cell Host and Microbe. 2 (4), 240-249 (2007).
- Hamacher, J., et al. Microscopic wire guide-based orotracheal mouse intubation: Description, evaluation and comparison with transillumination. Laboratory Animals. 42 (2), 222-230 (2008).
- Lawrenz, M. B., Fodah, R. A., Gutierrez, M. G., Warawa, J. Intubation-mediated Intratracheal (IMIT) Instillation: A Noninvasive, Lung-specific Delivery System. Journal of Visualized Experiments. (93), e52261(2014).
- Cai, Y., Kimura, S. Noninvasive Intratracheal Intubation to Study the Pathology and Physiology of Mouse Lung. Journal of Visualized Experiments. (81), e50601(2013).
- Voyich, J. M., Sturdevant, D. E., DeLeo, F. R. Analysis of Staphylococcus aureus gene expression during PMN phagocytosis. Methods in molecular biology. 431, Clifton, N.J. 109-122 (2008).
- Dyer, K., Rosenberg, H. The RNase a superfamily: Generation of diversity and innate host defense. Molecular Diversity. 10 (4), 585-597 (2006).
- Van Hoecke, L., Job, E. R., Saelens, X., Roose, K. Bronchoalveolar Lavage of Murine Lungs to Analyze Inflammatory Cell Infiltration. Journal of Visualized Experiments. (123), e55398(2017).
重印与许可
