我们已优化了一种用于分离和纯化小鼠心脏周细胞的实验方案,以开展基础研究并探索其生物学特性及治疗潜力。
本文内容
摘要
摘要
周细胞是微血管和毛细血管周围的血管周细胞,已知在血管生成、血管稳定性和内皮屏障完整性中发挥一定作用。然而,其在心脏中的组织特异性功能尚不明确。此外,目前尚无利用易获取材料分离和纯化心脏来源周细胞的既定方案。本方案以广泛使用的小鼠这一哺乳动物模型作为细胞来源。通过酶消化法和机械解离法处理心脏组织,获得粗制细胞混合物,随后利用多种标记物进行荧光激活细胞分选(FACS)进一步纯化。由于目前尚无单一明确的周细胞特异性标记物,我们筛选了CD31-CD34-CD45-CD140b+NG2+CD146+表型的细胞。纯化后的原代细胞经培养并多次传代,其形态和标记物表达均未发生改变。通过本方案可常规获取原代小鼠心脏周细胞,我们期望借此进一步阐明周细胞在心血管生理学中的作用及其治疗潜力。
引言
一类称为周细胞的血管周围细胞包绕着血管树的微血管和毛细血管1,2。生理上,这些细胞因其与内皮细胞的密切关系,已知可促进并参与血管生成,增强屏障完整性,并稳定和成熟血管1,2。此外,这些细胞的功能障碍和/或丢失已被认为与阿尔茨海默病2,3以及多种心血管疾病4相关。这些细胞分布于全身各处,但其数量具有组织依赖性。由于血脑屏障高度血管化,周细胞在脑组织中的研究尤为广泛1,2。然而,在心脏中,周细胞的生物学特性研究仍较不足。
近年来,科研领域对心脏周细胞的兴趣日益增加,但目前尚无针对生物学研究中最常用工具之一——小鼠——的标准化周细胞分离方案。文献中已有从脑组织5、视网膜6、胎盘7以及骨骼肌8,9中分离周细胞的方案;然而,关于从心脏组织中分离周细胞的方案仍十分有限。已有多个研究团队成功分离出心脏周细胞。Nees 等人能够从包括小鼠在内的多种物种中分离出大量心脏周细胞;但其方法依赖于特定的自制设备,从而降低了实验的可重复性10。Avolio 等人11、Chen 等人12以及 Baily 等人13也成功地从人心脏组织中分离出心脏周细胞,但人体组织并非始终可得,部分研究人员难以获取。本文中,我们开发了一种从小鼠模型中分离心脏周细胞的方法,使研究人员能够利用常规易得的材料进一步深入研究其生物学特性。
利用酶消化法和基于已知关键周细胞标志物的荧光激活细胞分选技术(FACS)14,本方案可分离并纯化出一群表型为 CD31-CD34-CD45-CD140b+NG2+CD146+ 的周细胞。我们的标志物组合包含纳入和排除标志物:CD45 用于排除造血细胞;CD31 用于排除内皮细胞;CD34 用于排除造血和内皮祖细胞;CD146 是血管周细胞的标志物;最后,NG2 和 CD140b(亦称血小板源性生长因子受体β——PDGFRβ)均为公认的周细胞标志物14。所获得的原代培养细胞可多次传代培养,其形态和标志物表达均无变化。此外,这些细胞可与内皮细胞共培养,以研究二者之间的相互作用与信号交流。该细胞分离方法将使研究人员能够研究来自野生型、疾病模型及基因变异小鼠模型中心脏周细胞的生物学特性及其病理生理机制。
方案
所有动物均饲养和使用于经国际实验动物评估和认可委员会(AAALAC)认证的设施中,所有动物实验均在适当的兽医监督下进行,并遵循安进公司(Amgen Inc.)机构动物护理和使用委员会(IACUC)批准的方案执行。
1. 工具与培养基的准备
- 将外科用9 cm直头精细尖头剪刀和10 cm弯头带齿镊子进行高压灭菌。
- 在500 mL无钙镁离子的杜氏磷酸盐缓冲液(CMF-DPBS)中加入25 mL 5%胎牛血清(FBS)和5 mL 1%青霉素-链霉素(P/S)。将溶液置于冰浴中,确保使用时保持低温。取50 mL分装至50 mL锥形管中用于心脏分离,并向该50 mL分装液中加入肝素钠溶液至终浓度为250 单位/mL。此溶液称为含肝素的CMF-DPBS。
- 在500 mL高糖杜氏改良伊格尔培养基(DMEM)中加入20% FBS(100 mL)和1% P/S(5 mL)。此溶液称为无酶培养基。取20 mL DMEM + 20% FBS + 1% P/S分装,加入胶原酶B至终浓度为500 µg/mL。此溶液称为酶解液。将无酶培养基和酶解液均置于37 °C培养箱或水浴中保温。
2. 动物准备与心脏组织获取
- 使用31 G针头注射器,向小鼠腹腔内注射250单位肝素钠溶液。随后将小鼠放回其饲养笼中,保持活动状态,等待10−15分钟。
注意:本研究的代表性数据来自一只4月龄雄性C57BL/6小鼠。然而,本方案适用于任何品系、年龄、性别、体重等的小鼠。 - 用5%异氟烷麻醉小鼠。通过夹趾反射检查小鼠的 麻醉 深度。
- 将麻醉后的小鼠仰卧固定,并用胶带固定其前肢。小心打开胸腔,使用25 G蝶形针插管降主动脉。
- 在右心房处剪一小口,使用可调流速蠕动泵以2 mL/min的速度,用至少20 mL含250单位/mL肝素的无钙镁磷酸盐缓冲液(CMF-DPBS)灌注心脏。当从右心房流出的PBS液体变得清澈时,表明灌注完成。
- 在主动脉处剪下心脏,并将其置于冰冻的无钙镁磷酸盐缓冲液(CMF-DPBS)中。
3. 心脏组织的解离
- 将心脏转移至一个 15 cm × 15 cm 的培养皿中。使用弹簧剪刀和尖头镊子将心脏切成微小组织块(每块约 1 mm),加入足量酶溶液以完全覆盖组织块(10−15 mL)。
- 将组织块及溶液转移至一个 50 mL 锥形管中,用封口膜密封,在 37 °C、120 rpm 条件下于摇床中孵育 75 分钟。
- 经酶溶液消化胶原后,将液体通过 100 µm 细胞滤网倾倒入一个新的 50 mL 管中,但需保留足够液体以防止组织块干燥。
- 使用尖头镊子从管中取出组织,取少量组织块置于显微镜载玻片上。然后用两张载玻片相互研磨以充分分散组织。用不含酶的培养基冲洗载玻片,并将冲洗液收集至一个新的 50 mL 锥形管中。
- 重复步骤 3.4,直至所有组织块完全解离。
- 将步骤 3.3 至 3.5 所得溶液合并至同一管中。将所得悬液通过 100 µm 细胞滤网过滤至一个新的 50 mL 锥形管中。
- 在 220 × g、4 °C 条件下离心 5 分钟。吸除上清液,并用新鲜的不含酶培养基轻柔重悬细胞沉淀。
- 使用细胞计数仪对细胞进行计数并检测活力。用含 500 mL DPBS 和 10−25 mL 2−5% 牛血清白蛋白(BSA)的冷 FACS 染色缓冲液将细胞稀释至 1 × 10⁶/mL。细胞即可用于染色与分选。
4. 使用流式细胞术从粗细胞混合物中纯化周细胞
- 为所有对照和细胞样品准备并标记5 mL FACS管。将细胞分装(每管1 mL)用于未染色样品、荧光减一(FMO)对照和同型对照。剩余细胞用于分选。所有对照和样品可同时进行制备和染色。
注意: 一次心脏样本的代表性分选共使用13 mL细胞悬液,浓度为0.5 × 10⁶ 个细胞/mL。然而,实际体积取决于研究者从组织分离中获得的细胞数量、使用的心脏数量、心脏组织消化程度以及每颗心脏的大小等变量。- 使用补偿微珠(材料表)优化荧光补偿对照。为实验中使用的每种荧光染料在标记的5 mL FACS管中准备一个补偿对照。本实验共需准备9个补偿对照——2种未染色微珠以及来自标记物组合的7种不同荧光染料,包括NG2-FITC、CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7和细胞活力-APC-Cy7(材料表)。
- 从挤压瓶中向每管加入一滴补偿微珠(约50 µL),然后向微珠中加入1 µL抗体。对标记物组合中的每种抗体重复此操作。通过脉冲式涡旋剧烈混匀。除细胞活力微珠可在避光条件下室温孵育外,其余均在4 °C避光孵育30分钟。
- 随后,向每管加入3 mL FACS染色缓冲液,在4 °C下以300 × g离心5分钟。吸除上清液,并将每管微珠沉淀重悬于400 µL FACS染色缓冲液中。补偿对照现已准备好,置于冰上保存。
- 使用FMO对照优化因光谱重叠引起的背景染色。
- 取第4.1节中分装的1 mL细胞,置于5 mL FACS管中,加入步骤4.1.1所述标记物组合中除一种抗体外的所有抗体(稀释比例为1:100),制备FMO对照。例如,制备NG2-AF488 FMO时,加入CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7及细胞活力染料的抗体,但不加入NG2-AF488抗体。通过脉冲式涡旋轻轻混匀。对每种抗体重复此操作,共制备7个FMO对照。在4 °C避光孵育30分钟。
- 随后,向每管加入3 mL FACS染色缓冲液,在4 °C下以300 × g离心5分钟。吸除上清液,并将每管细胞沉淀重悬于400 µL FACS染色缓冲液中。FMO对照现已准备好,置于冰上保存。
- 使用同型匹配的对照抗体(材料表)评估非特异性染色。
- 在5 mL FACS管中,向第4.1节制备的1 mL细胞样品中加入同型匹配的对照抗体(材料表),每种抗体按1:100稀释。通过脉冲式涡旋轻轻混匀。在4 °C避光孵育30分钟。
- 随后,向每管加入3 mL FACS染色缓冲液,在4 °C下以300 × g离心5分钟。吸除上清液,并将每管细胞沉淀重悬于400 µL FACS染色缓冲液中。同型对照现已准备好,置于冰上保存。
- 通过向新鲜分离的细胞中加入抗体混合物,制备待分选的细胞。
- 取第4.1节制备的细胞样品,加入抗体混合物,其中包含抗小鼠NG2-AF488、CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7抗体(每种按1:100稀释)以及细胞活力染料(按1:1,000稀释)。轻轻涡旋混匀。在4 °C避光孵育30分钟。
- 染色后,用FACS染色缓冲液洗涤细胞,在4 °C下以300 × g离心5分钟。吸除上清液,将细胞沉淀重悬于FACS染色缓冲液中,调整至0.5 × 10⁶ 个细胞/mL。
- 使用带有35 µm滤膜盖的新FACS管,将染色后的细胞样品加至管盖上,依靠重力过滤获得单细胞悬液。置于冰上保存。
- 使用补偿微珠(材料表)优化荧光补偿对照。为实验中使用的每种荧光染料在标记的5 mL FACS管中准备一个补偿对照。本实验共需准备9个补偿对照——2种未染色微珠以及来自标记物组合的7种不同荧光染料,包括NG2-FITC、CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7和细胞活力-APC-Cy7(材料表)。
- 使用细胞分选仪纯化细胞。
- 在细胞分选仪上运行未染色细胞,设定各通道电压并校正背景信号(例如,前向散射电压设为490–560,侧向散射电压设为180–250)。
- 依次运行每种单色补偿微珠样品,调节各通道电压并设置阳性信号门控。收集数据,并利用软件通过计算补偿矩阵来校正光谱重叠。所有电压现已设定完成。
- 依次运行每个同型对照,其数据可用于调整非特异性结合的门控(如有必要)。
- 依次运行每个FMO样品,调节各通道电压,以校正多色组合引起的光谱溢出效应。
- 在细胞分选仪上运行染色后的细胞样品,将细胞收集至含有10 mL无酶培养基(DMEM + 20% FBS + 1% P/S)的15 mL锥形收集管中。采用以下门控策略:选择单细胞、活细胞、CD45阴性细胞、CD34和CD31阴性细胞、NG2阳性细胞,最后选择CD146和CD140b阳性细胞。
5. 周细胞的培养
- 用0.2%明胶对24孔板进行包被,作用5分钟,吸除明胶溶液。将步骤4.2.5中 freshly obtained 的细胞以DMEM + 20% FBS + 1% P/S培养基接种,密度不超过2 × 104 cells/cm2。将细胞置于37 °C、5% CO2 和95% O2的细胞培养箱中培养。
- 周细胞传代
- 当细胞融合度达到95%时,用预热的1× DPBS洗涤细胞,每孔加入200 µL 0.1%胰蛋白酶溶液,在室温下消化3–5分钟以消化细胞。
- 轻轻敲击培养板以松动细胞。
- 用5倍体积的培养基(700 µL DMEM + 20% FBS + 1% P/S)中和胰蛋白酶,并将第二代(P2)细胞以2 × 104 cells/cm2的密度接种至未包被的6孔板中。
- 每孔细胞长满后可转移至一个T-75培养瓶中作为第三代(P3)细胞,之后可按1:6比例进行传代。
6. 周细胞的表征
- 流式细胞术分析
- 采用与第4节中先前描述相同的FACS染色方案和设门策略。
- 在流式细胞仪上运行对照样本和染色样本。使用分析软件(材料表)收集数据并进行数据分析。
- 为获取明场图像,将细胞在细胞培养箱中(设定为37 °C、5% CO2 和95% O2)的培养瓶中培养。待细胞贴壁后,在显微镜下采集图像。
- 免疫细胞化学
- 将细胞在96孔板中培养至90%融合度。用预热的1×DPBS洗涤细胞,并在室温下用4%多聚甲醛固定30分钟。
- 用1×DPBS洗涤细胞3次,每次10分钟,在室温下用0.1%去垢剂进行通透处理。
- 在室温下用封闭缓冲液孵育细胞1小时。封闭后,加入用封闭缓冲液按1:100稀释的一抗(每孔一种抗体),并在4 °C下孵育过夜。所用一抗包括:抗NG2、抗CD140b、抗CD31、抗波形蛋白(vimentin)、抗结蛋白(desmin)和抗α-平滑肌肌动蛋白(alpha smooth muscle actin)。
- 次日,用洗涤缓冲液(材料表)洗涤细胞3次。加入用封闭缓冲液按1:1,000稀释的二抗,在室温避光条件下孵育2小时。二抗为FITC标记的抗兔抗体。
- 用洗涤缓冲液洗涤细胞3次,然后加入300 µM核染料(按1:1,000稀释),室温孵育5分钟。
- 用1×DPBS洗涤细胞3次,使用封片剂封片。
- 使用共聚焦显微镜对细胞成像。
结果
在对整个心脏进行酶消化和解离后、流式细胞术(FACS)分选细胞之前,细胞为包含心脏多种不同类型细胞的粗提混合物(图1A)。经过FACS分选和培养后,细胞呈现均一性,为单核、较扁平的细胞,具有典型的周细胞菱形形态(图1B)。
通过流式细胞分选(FACS),细胞被纯化至均一。未染色的对照细胞样本用于展示设门策略(图2)。首先,根据前向散射和侧向散射的分布排除碎片和双联体。然后,基于死细胞与染料的胺反应所产生的信号强于活细胞,将死细胞排除。在活细胞中,通过CD45+标记排除造血细胞。为进一步去除造血细胞和内皮细胞,排除CD34+和CD31+细胞。最后,选择NG2+以及CD140b+/CD146+细胞,因其为表达典型周细胞标志物的血管周细胞(图3)。该标志物组合也在小鼠冠状动脉内皮细胞上进行检测作为对照(补充图1)。分选后,原始细胞混合物中仅有约1%为周细胞。
为了验证这些细胞确实是周细胞,我们对细胞进行了传代以进一步表征。当细胞在T-75培养瓶中达到P3代后,生长迅速,且随着代数增加,细胞活力未发生明显变化(补充图2)。与人脑周细胞相比,这些细胞具有相似的形态(图4A);而与小鼠和人平滑肌细胞相比,其形态则有所不同(图4A)。在传代至P7代后,通过免疫染色或流式细胞术分析,未观察到细胞形态或标志物表达发生明显变化(图4B、C)。
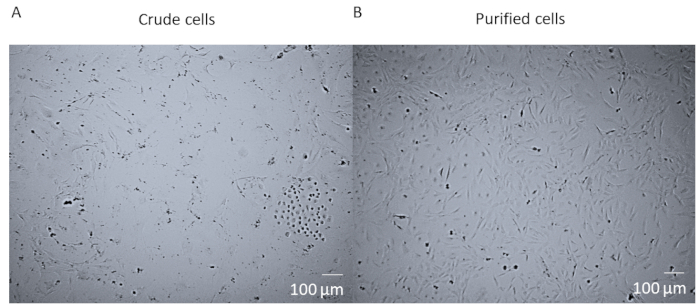
图1: 粗提细胞与纯化细胞的比较。 (A)全心组织经酶消化和解离后得到的粗提细胞混合物,在T25培养瓶中培养14天后的明场图像。 (B)分选并培养14天后获得的均一心脏周细胞群体的明场图像。比例尺 = 100 µm。 请点击此处查看该图的放大版本。

图 2:未染色细胞 FACS 分析的代表性图像。 用于纯化粗细胞混合物的设门策略示意图。设门筛选单细胞、活细胞、CD45-、CD31-、CD34-、NG2+、CD146+ 和 CD140b+ 的细胞。 请点击此处查看此图的放大版本。

图 3:粗提细胞的流式细胞术分析代表性图像。用于获得均一心脏周细胞群体的分选示意图。粗提细胞中约有 1% 为 CD31-CD34-CD45-CD140b+NG2+CD146+。 请点击此处查看该图的放大版本。

图 4:原代分离的心脏周细胞的表征(A)人脑来源(hPC)和小鼠心脏来源(mPC)培养细胞的明场图像显示,周细胞具有相似的形态,而与人平滑肌细胞(hSMC)和小鼠平滑肌细胞(mSMC)的形态不同。比例尺 = 100 µm。(B)通过免疫细胞化学方法对第7代(P7)细胞进行周细胞标志物的表型鉴定。比例尺 = 100 µm。(C)对第7代周细胞进行流式细胞术分析,设门分析阴性标志物CD31、CD34、CD45及阳性标志物NG2、CD140b和CD146。细胞群体保持均一性。请点击此处查看该图的放大版本。
补充图1:使用标记物组合对内皮细胞进行流式细胞术分析的代表性图像。 以小鼠冠状动脉内皮细胞系作为对照,验证各标记物结合的特异性。采用与分选时相同的设门策略,仅将CD31设为阳性门而非阴性门,结果显示内皮细胞如预期所示,对CD45、CD34、NG2、CD140b和CD146呈阴性,而对CD31呈阳性。 请点击此处下载该图。
补充图2:不同传代次数的小鼠胰岛周细胞(mPC)流式细胞术分析的代表性图像。 初次分离的心脏周细胞经培养并传代至第12代。细胞经碘化丙啶染色后,使用流式细胞仪进行分析。对照组群体由死细胞和活细胞混合组成。不同传代次数之间的活细胞数量无显著差异。请点击此处下载该图。
讨论
由于对心肌周细胞的研究相对较新,周细胞在心血管生理学和病理生理学中的作用尚未明确。在其他器官中,周细胞已被证实对血管稳态和灌注具有关键作用1,2。与脑等其他器官周细胞的研究文献相比,关于心肌周细胞的发表文章显著较少。分离心肌周细胞对于理解其功能特征和信号传导机制至关重要。因此,本实验方案将为研究人员提供一种更为便捷的方法,以从更易获取的组织来源中获得心肌周细胞,并推动对其生物学特性的研究。该方法将有助于回答心肌周细胞如何参与心脏稳态维持及病理生理过程的问题,并进一步探索其治疗潜力。
从鼠心脏中分离出的周细胞群体,其表型特征为 CD31-CD34-CD45-CD140b+NG2+CD146+,已进行多次传代(最多至 P12 代且仍保持良好增殖能力),细胞活力未见下降,且增殖迅速(补充图2)。这些细胞经冷冻保存后复苏,活力仍可达到至少95%。然而,我们倾向于在实验中使用 P7 代或更早代次的细胞。将本研究中周细胞的明场图像与人脑周细胞进行比较,两者细胞形态相似(图4A),但均明显区别于平滑肌细胞(图4A)。我们通过免疫细胞化学方法对 P7 代细胞进行了周细胞标志物鉴定,所用标志物部分来自FACS检测组合(NG2 和 CD140b),另包括部分未纳入组合的标志物(波形蛋白vimentin、结蛋白desmin、α平滑肌肌动蛋白αSMA),结果显示细胞均一性表达周细胞标志物(图4B)。此外,我们再次采用相同的标志物组合通过流式细胞术分析 P7 代细胞,以评估传代过程对标志物表达的影响,结果未发现表达变化(图4C)。因此,从表型和形态学两方面来看,我们的细胞均为周细胞。
Nees 等人10、Avolio 等人11、Chen 等人12 以及 Baily 等人13 的研究已成功实现了心脏周细胞的分离。然而,Nees 等人10 使用自行设计搭建的设备通过两个带有泵的腔室将蛋白酶溶液反复穿过网状堆栈,以从微血管上解离周细胞,该方法难以复制,因为他们未提供装置的示意图或图片,也未说明其构建方式。尽管 Nees 等人10 成功地从多种物种中分离出心脏周细胞,但我们始终无法重现其方法。本方案中的周细胞解离步骤仅使用大多数(即使不是全部)实验室都具备的轨道摇床(用于解离所有细胞),将组织与酶溶液置于锥形管中,随后进行机械解离。该过程无需任何定制装置。其次,现有其他方案涉及使用人体组织,因此获取人体组织对研究人员构成了限制。我们的方案是在现有方案9,12 基础上进行的改进与优化,采用小鼠模型(野生型、基因修饰型、疾病模型)及所有研究人员均可获得的材料。
由于血管周围细胞通常较为敏感,细胞的活性对于获得较高的得率至关重要。在获取心脏组织和染色细胞的过程中,组织/细胞必须始终保持冰上低温。其次,组织的酶消化步骤可能需要根据个体情况进行优化。根据所用酶试剂瓶上的活性单位,可能需要优化酶的浓度和消化时间。请确保每次均新鲜配制酶解液,否则得率会下降。第三,粗提混合物中含有大量细胞,其中部分为死亡或正在死亡的细胞,建议将染色缓冲液中胎牛血清(FBS)的浓度从5%降低至2%。如果在分选过程中出现细胞堵塞喷嘴的问题,可先使用死细胞去除试剂盒对细胞进行富集。此外,也可在分选前向细胞悬液中添加EDTA/HEPES缓冲液或DNase处理,以防止细胞聚集。最后,由于我们的抗体组合较多且使用了多种荧光染料,务必正确设置FMO对照和补偿对照。
该方法的一个局限性在于每颗心脏所能获得的心脏周细胞数量。在我们的实验中,从小鼠心脏获得的粗提混合物中仅有1.1%为周细胞,这一比例与人类心脏分离得到的比例相当,但由于小鼠心脏组织量较少,细胞总数显著偏低。由于FACS分选后的起始细胞数量非常低,因此最好一次性从多颗心脏中进行分离。然而,这样做的问题是单日内需要分选的细胞数量过于庞大。若细胞总数超过3000万个,分选过程将难以在不影响细胞活性的情况下完成。如果研究者拥有多个细胞分选仪,则在一天内从多颗心脏中分离细胞是可行的。另一个局限性在于,目前尚不清楚心脏中是否存在像骨骼肌中那样的周细胞亚群15,16,因此我们无法确定在设门策略中是否排除了某种亚型。目前我们正在对心脏周细胞进行表征,根据尚未发表的数据,这些细胞在功能上与文献中报道的其他周细胞相似。
本方案将使研究人员能够探究心肌周细胞的特性、特征、功能及其他相关方面,从而有助于明确其在心脏稳态和血流动力学中的作用。一旦对其生物学特性有了更深入的理解,这些细胞可能在心血管疾病的治疗中展现出潜在应用价值。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢安进流式细胞术核心实验室在荧光染料组合设计、故障排查和细胞分选方面提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.25% 胰蛋白酶-EDTA | 康宁 | 25-053-Cl | 用1×DPBS稀释至0.1% |
| 100 μM细胞过滤器 | FisherSci | 22363549 | |
| 15 mL Falcon 圆锥形试管 | BD | 352096 | |
| 24孔板 | 康宁 | CLS3527 | |
| 25 G 蝴蝶针 | FisherSci | 22-253-146 | |
| 31 G针头注射器 | FisherSci | B328446 | |
| 50 mL Falcon 圆锥形试管 | BD | 352098 | |
| 6孔板 | 康宁 | CLS3516 | |
| 抗α-平滑肌肌动蛋白兔单克隆抗体 | abcam | ab32575 | 免疫细胞化学中使用的抗体稀释比例为1:100 |
| 抗CD140b兔单克隆抗体 | 细胞信号传导 | 28E1 | 免疫细胞化学中使用的抗体稀释比例为1:100 |
| 兔抗CD31多克隆抗体 | abcam | ab28364 | 免疫细胞化学中使用的抗体稀释比例为1:100 |
| 兔抗结蛋白多克隆抗体 | abcam | ab8592 | 免疫细胞化学中使用的抗体稀释比例为1:100 |
| 与AF488偶联的抗NG2抗体 | Millipore | MAB5384A4 | 免疫细胞化学中使用的抗体稀释比例为1:100 |
| 兔抗波形蛋白单克隆抗体 | abcam | ab92547 | 免疫细胞化学中使用的抗体稀释比例为1:100 |
| ArC 胺反应性补偿微球试剂盒 | Invitrogen | A10346 | 用于活/死近红外染料的补偿微珠 |
| 明场显微镜 | 连接的相机 | ||
| CD140b-PE(克隆 APB5) | eBioscience | 12-1402-81 | 流式细胞术中使用的抗体稀释比例为1:100 |
| CD146-BV605(克隆号 ME-9F1) | BD | 740434 | 流式细胞术中使用的抗体稀释比例为1:100 |
| CD31-APC(克隆 MEC 13.3) | BD | 551262 | 流式细胞术中使用的抗体稀释比例为1:100 |
| CD34-BV421(克隆号 RAM 34) | BD | 56268 | 流式细胞术中使用的抗体稀释比例为1:100 |
| CD45-PE-Cy7(克隆号 30-F11) | BD | 552848 | 流式细胞术中使用的抗体稀释比例为1:100 |
| 离心 | Eppendorf | ||
| 胶原酶B | 罗氏 | 11088815001 | 0.226 U/mg 冻干粉 |
| 共聚焦显微镜 | |||
| DAPI | ThermoFisher | D1306 | 核染色 |
| 含4.5 g/L葡萄糖和L-谷氨酰胺的DMEM & 丙酮酸钠 | 康宁 | 10-013-CV | 500 mL |
| 邓氏剪刀 | FST | 15040-11 | |
| 杜氏磷酸盐缓冲液(DPBS) | 康宁 | 21-030-CV | 500 mL |
| 不含钙和镁的杜尔贝科磷酸盐缓冲液(CMF-DPBS) | 康宁 | 21-031-CV | 500 mL |
| Dumont #5 精细镊子 | FST | 11254-20 | |
| FACSAria 细胞分选仪 | BD | 激光器:405 nm 50 mW,488 nm 100 mW,561 nm 50 mW,633 nm 11 mW | |
| FACSAria 软件 | BD | ||
| 5 mL 圆底聚丙烯 Falcon 管 | BD | 38057 | |
| 带细胞过滤帽的5 mL Falcon管 | BD | 08-771-23 | |
| 胎牛血清 | 康宁 | 35-015-CV | 500 mL |
| 精细剪刀 | FST | 14060-09 | |
| FlowJo 软件 | FlowJo LLC | ||
| Fortessa LSR 流式细胞仪 | BD | 激光器:405 nm 50 mW,488 nm 100 mW,561 nm 50 mW,633 nm 11 mW | |
| 明胶基涂层 | 细胞生物学 | 6950 | |
| 山羊抗兔IgG(H+L)交叉吸附二抗,Alexa Fluor 488 | Invitrogen | A-11008 | 免疫细胞化学中使用的抗体稀释比例为1:1000 |
| 格拉费镊子 | FST | 11049-10 | |
| 肝素钠溶液 | Hospira | NDC 0409-2720-02 | 10,000 USP 单位/10 mL;来源于猪肠道 |
| 培养箱 | 设定为37 °C,5% CO2,95% O2 | ||
| 活/死-近红外 | Life Technologies | L10119 | |
| 显微镜载玻片 | FisherSci | 12-550-343 | |
| NG2-FITC | Millipore | AB5320A4 | 流式细胞术中使用的抗体稀释比例为1:100 |
| 轨道摇床 | VWR | 37内部 °C孵箱或室温 | |
| 多聚甲醛 | FisherSci | 50-980-487 | 用1×DPBS稀释至4% |
| 青霉素-链霉素 | 康宁 | 30-002-CI | |
| 培养皿 | FisherSci | FB0875714 | |
| 移液器和吸头 | |||
| ProLong Diamond | ThermoFisher | P36965 | 封片剂 |
| 碘化丙啶 | ThermoFisher | 补充图2的细胞活力染料 | |
| 兔IgG FITC | eBiosciences | 11-4614-80 | 同型对照抗体 - FITC |
| 大鼠 IgG2a APC | Biolegend | 400512 | 同型对照抗体 - APC |
| 大鼠 IgG2a BV421 | Biolegend | 400536 | 同型对照抗体 - BV421 |
| 大鼠 IgG2a BV605 | BD | 563144 | 同型对照抗体 - BV605 |
| 大鼠 IgG2a PE | Biolegend | 400308 | 同型对照抗体 - PE |
| 大鼠 IgG2b PE-Cy7 | Biolegend | 400617 | 同型对照抗体 - PE-Cy7 |
| SuperBlock | 赛默飞世尔科技 | 37515 | 封闭缓冲液 |
| T75 | ThermoFisher | 156499 | |
| Triton X-100 | Sigma | X100 | 洗涤剂,用 x DPBS 稀释至 0.1% |
| UltraComp 珠 | Invitrogen | 01-2222-42 | 补偿微珠 |
| 可变流速蠕动泵 | FisherSci | 13-876-1 | |
| ViCell 细胞计数仪 | 贝克曼 | ||
| 洗涤缓冲液 | 1× DPBS 中含 1:10 稀释的 Superblock |
参考文献
- Armulik, A., Abramsson, A., Betsholtz, C. Endothelial/pericyte interactions. Circulation Research. 97 (6), 512-523 (2005).
- Armulik, A., Genove, G., Betsholtz, C. Pericytes: developmental, physiological, and pathological perspectives, problems, and promises. Developmental Cell. 21 (2), 193-215 (2011).
- Sengillo, J. D., et al. Deficiency in mural vascular cells coincides with blood-brain barrier disruption in Alzheimer's disease. Brain Pathology. 23 (3), 303-310 (2013).
- Avolio, E., Madeddu, P. Discovering cardiac pericyte biology: From physiopathological mechanisms to potential therapeutic applications in ischemic heart disease. Vascular Pharmacology. 86, 53-63 (2016).
- Dore-Duffy, P. Isolation and characterization of cerebral microvascular pericytes. Methods in Molecular Medicine. 89, 375-382 (2003).
- Bryan, B. A., D'Amore, P. A. Pericyte isolation and use in endothelial/pericyte coculture models. Methods in Enzymology. 443, 315-331 (2008).
- Maier, C. L., Shepherd, B. R., Yi, T., Pober, J. S. Explant outgrowth, propagation and characterization of human pericytes. Microcirculation. 17 (5), 367-380 (2010).
- Crisan, M., Corselli, M., Chen, W. C., Peault, B. Perivascular cells for regenerative medicine. Journal of Cellular Molecular Medicine. 16 (12), 2851-2860 (2012).
- Crisan, M., et al. Purification and long-term culture of multipotent progenitor cells affiliated with the walls of human blood vessels: myoendothelial cells and pericytes. Methods in Cellular Biology. 86, 295-309 (2008).
- Nees, S., et al. Isolation, bulk cultivation, and characterization of coronary microvascular pericytes: the second most frequent myocardial cell type in vitro. American Journal of Physiology Heart Circulatory Physiology. 302 (1), H69-H84 (2012).
- Avolio, E., et al. Expansion and characterization of neonatal cardiac pericytes provides a novel cellular option for tissue engineering in congenital heart disease. Journal of the American Heart Association. 4 (6), e002043(2015).
- Chen, W. C., et al. Human myocardial pericytes: multipotent mesodermal precursors exhibiting cardiac specificity. Stem Cells. 33 (2), 557-573 (2015).
- Baily, J. E., et al. Isolation of Perivascular Multipotent Precursor Cell Populations from Human Cardiac Tissue. Journal of Visualized Experiments. (116), e54252(2016).
- Murray, I. R., et al. Skeletal and cardiac muscle pericytes: Functions and therapeutic potential. Pharmacology & Therapeutics. 171, 65-74 (2017).
- Birbrair, A., et al. Role of pericytes in skeletal muscle regeneration and fat accumulation. Stem Cells Development. 22 (16), 2298-2314 (2013).
- Birbrair, A., et al. Skeletal muscle pericyte subtypes differ in their differentiation potential. Stem Cell Research. 10 (1), 67-84 (2013).
重印与许可
